本文介绍了一种用于诱导神经元稳态可塑性的方案改良方法,以研究星形胶质细胞G蛋白偶联受体的可塑性。该方法近期已被用于检测幼年小鼠星形胶质细胞I型代谢型谷氨酸受体(mGluRs)的变化,也可应用于测量成年小鼠组织中多种星形胶质细胞GPCR的表达上调或下调,可在原位(in situ)和在体(in vivo)条件下进行,并有助于更深入理解星形胶质细胞受体对神经元活动变化的敏感性。
本文内容
摘要
摘要
近二十年的研究已经证实,星形胶质细胞 原位 和 体内 表达多种可被神经元释放的神经递质激活的G蛋白偶联受体(GPCRs)。然而,星形胶质细胞受体在神经元活动变化时表现出可塑性的能力,目前尚未得到充分关注。本文介绍了一种可在急性脑切片中全局性上调或下调星形胶质细胞I型代谢型谷氨酸受体(mGluRs)的模型系统。内容包括制备旁矢状位海马切片的方法、构建适用于长期切片孵育的孵育室、双向调控神经元动作电位频率的技术,以及使用荧光Ca²⁺指示剂对星形胶质细胞及其突起进行染色的方法。2+ 指示剂,并通过记录星形胶质细胞的自发性和诱发性 Ca²⁺ 信号来测量星形胶质细胞 Gq 偶联 G 蛋白偶联受体活性的变化2+ 使用共聚焦显微镜检测这些事件。本质上,该方法提供了用于测量星形胶质细胞Gq G蛋白偶联受体可塑性的“钙成像路线图”。本文讨论了该技术在星形胶质细胞研究中的应用。了解星形胶质细胞受体信号传导如何受到神经元活动变化的影响,对于理解正常突触功能以及神经系统疾病和神经退行性疾病相关过程均具有重要意义。
引言
星形胶质细胞在神经元或神经元轴突受到刺激后数秒内即发生胞质Ca²⁺升高反应2+ 几乎完全由星形胶质细胞Gq G蛋白偶联受体的激活引起。例如,毒蕈碱型乙酰胆碱受体1大麻素受体2,α1A 肾上腺素能受体3,4,以及I组mGluRs(见下文)均为星形胶质细胞上的Gq型G蛋白偶联受体亚型,可急性响应神经元活动。在刺激神经元谷氨酸能传入纤维后,星形胶质细胞I组mGluRs的激活已被最广泛地证实 原位 (例如急性海马切片)5-7,以及成年小鼠大脑皮层中 体内 感觉刺激后8星形胶质细胞Gq GPCR信号通路激活对星形胶质细胞、神经元或星形胶质细胞-神经元相互作用的生物学与生理学影响一直存在争议9-12神经元到星形胶质细胞受体信号传导的功能尚需一段时间才能被充分认识。
尽管已有研究表明,通过实验手段神经元能够激活星形胶质细胞上的受体,但神经元与星形胶质细胞之间受体通信的某些方面仍不清楚。首先,激活星形胶质细胞Gq型G蛋白偶联受体(GPCR)所需的神经元活动实际强度尚不明确;其次,星形胶质细胞受体是否具有使用依赖性可塑性,目前也鲜有研究。为初步解决这些问题,我们近期建立了一种实验方案,可在急性分离的幼年小鼠海马脑片中,通过长期改变依赖动作电位(AP)的突触活动,诱导星形胶质细胞I型代谢型谷氨酸受体(group I mGluRs)发生双向调节。类似于神经元离子型谷氨酸受体的双向稳态可塑性现象13,14,当神经元动作电位被阻断时,星形胶质细胞I型mGluRs表达上调;而当神经元动作电位频率增加时,其表达则下调15。这些星形胶质细胞受体的代偿性变化可通过记录自发性和诱发性星形胶质细胞Ca2+瞬变信号,并将其特性与对照条件下星形胶质细胞的信号进行比较来检测。在本文中,我们详细描述了该实验方案的完整方法,包括急性海马脑片的制备、诱导星形胶质细胞受体调节的孵育条件、星形胶质细胞Ca2+指示剂染料的负载、利用共聚焦显微镜进行Ca2+成像的技术,以及对星形胶质细胞Gq GPCR活性的预期影响。星形胶质细胞Ca2+信号特性的可预测变化——与此前在转染了不同表达水平Gq GPCR的培养细胞中记录到的结果一致——为今后研究提供了可用于检测星形胶质细胞GPCR表达变化的“路线图”。该技术的潜在影响与应用前景将有助于加深我们对健康与疾病状态下星形胶质细胞-神经元相互作用的理解。
方案
以下程序已获得加州大学河滨分校机构动物护理和使用委员会的批准。
1. 培养室和切片支架的构建
- 构建孵育室:使用无毒材料构建孵育室 。确保孵育室具有可控的空气循环,能够容纳足量的人工脑脊液(ACSF),使脑片架可漂浮其中,并且体积足够大,使得脑片架可位于孵育室的一端,而氧气管的气体分散装置位于另一端。 带密封盖的移液器储存盒的抽屉部分(图 1A)完全符合这些要求。
- 在容器侧面距离顶部约1¼英寸、侧边约¼英寸处钻一个小孔。将一段柔性管穿过该孔(图1B)。钻孔时需注意位置,既要足够低以避免盖上盖子时压到管子,又要足够高以确保管子位于液面之上。
- 使用硅胶密封剂(“水族箱密封胶”)在氧气管与孵育室连接处形成防水密封。
- 使用公Luer接头将管子的“外部”端连接至气体钢瓶(95%氧气,5%二氧化碳)。为实现定制连接,可将天然斜面的200 µl移液器吸头剪裁至合适长度(图1C)。
- 将管子的“内部”端连接至一个一分六的塑料分流管。将六个20 µl Eppendorf微载吸头剪裁至合适长度,分别连接至分流管的六个出口(图1D)。微载吸头的细小开口非常适合产生稳定的小气泡流。
- 为实现通风,在容器盖上钻两个微小孔(图1E)。
- 构建脑片架:脑片架由浮动气泡架(Floating Bubble Rack)制成(图1F)。
- 移除气泡架底部的“支脚”,并将顶部裁剪至约1¾英寸高。
- 使用氰基丙烯酸盐胶水(如标准Krazy Glue)将一片尼龙网固定在圆形架底部,制成一个八孔脑片架(图1G)。每个孔可容纳一片小鼠海马脑片。
- 将脑片架置于孵育室的一端,微载吸头-分流管装置置于另一端。使微载吸头尖端接触孵育室底部(图1H)。该设计旨在确保急性海马脑片的顶部和底部均获得充分供氧,同时避免气泡直接从脑片架下方冒出,以最大限度减少脑片扰动,并防止气泡与海马脑片直接接触。
- 每次实验后,用ddH2O彻底冲洗孵育室和脑片架,并每周用70%乙醇去污染。 若需在不同溶液中孵育脑片,则需要多个孵育室/脑片架。
2. 溶液与药物
- 人工脑脊液(ACSF):使用去离子水(ddH2O)配制4 L标准ACSF,成分如下(单位为mM):125 NaCl、2.5 KCl、2.5 CaCl2、1.3 MgCl2、1.25 NaH2PO4、26.0 NaHCO3、15 葡萄糖和0.1 Trolox。使用渗透压计测量溶液的渗透压,应约为310 mOsm。实验条件下使用的ACSF配方见下文(参见方案3)。所有溶液均需使用0.22 µm瓶顶滤器过滤至已灭菌的玻璃瓶中。溶液在4 °C下可稳定保存长达一个月。
- 切片缓冲液:使用改良型ACSF配制切片溶液,成分如下(单位为mM):125 NaCl、2.5 KCl、3.8 MgCl2、1.25 NaH2PO4、26.0 NaHCO3、15 葡萄糖和1.3 抗坏血酸。使用渗透压计测量溶液的渗透压,应约为310 mOsm。在切片缓冲液中以MgCl2替代CaCl2有助于提高脑片的存活状态。
- 磺酰罗丹明101(SR-101,1 µM)用于在急性海马脑片中识别星形胶质细胞。通过将60.67 mg SR-101溶解于100 ml改良低钙ACSF中,配制1 mM的SR-101储备液,低钙ACSF配方如下(单位为mM):125 NaCl、2.5 KCl、0.5 CaCl2、6 MgCl2、1.25 NaH2PO4、26.0 NaHCO3、15 葡萄糖和1.3 抗坏血酸。确认低钙ACSF的渗透压约为310 mOsm。将1 mM的SR-101储备液用改良低Ca2+ ACSF稀释1,000倍后用于加载。最终的SR-101溶液应于4 °C避光保存,直至实验使用。
3. 急性海马脑片中长期神经元放电频率的调控
在独立的实验中采用以下两种孵育方案之一来调控神经元的长期放电频率:
- 抑制神经元放电:在河豚毒素(TTX,1 µM)中孵育:注意:TTX 若摄入足量可致死,操作时需谨慎。建议佩戴手套和护目镜。TTX 可完全消除急性脑片中动作电位驱动的神经元放电。在实验条件下,将脑片孵育于含 1 µM TTX 的 3.5 mM K+ ACSF 中;在对照条件下,将脑片孵育于不含 TTX 的 3.5 mM K+ ACSF 中。两种条件之间的比较可揭示星形胶质细胞 Gq 偶联 G 蛋白偶联受体(GPCR)活性的上调效应。采用 3.5 mM K+ ACSF 作为对照条件(而非例如 2.5 mM K+),旨在最大化 TTX 处理的效果。
—— 或 ——
- 提高神经元放电频率至基础水平以上:使用高钾溶液孵育。提高细胞外 K+ 浓度可使神经元去极化,从而增加其基础放电频率。与使用 2.5 mM K+ ACSF 相比,使用 5.0 mM K+ ACSF 孵育可显著提高神经元动作电位频率15。实验组使用 5.0 mM K+ ACSF 孵育脑片,对照组使用标准的 2.5 mM K+ ACSF 孵育脑片。两种条件之间的比较可揭示星形胶质细胞 Gq GPCR 活性的下调效应。
4. 急性海马脑片制备
- 设置温暖恢复室:
- 将水浴加热至 35 °C,然后将准备好的孵育 chamber 置于其中。向水浴中加水,直至水位达到孵育 chamber 内 ACSF 的高度图1G).
- 用95% O₂和5% CO₂饱和实验组和对照组的ACSF2,5% CO₂2微载管-歧管装置释放的气泡应细小且充足,但同时要轻柔;灌流 chamber 内的 ACSF 不应出现可见的流动。
- 设置冰冻解剖室:
- 取两个装有冰块的容器。将一瓶约300 ml的切片缓冲液放入其中一个冰桶中,并用95% O₂持续供氧2,5% CO₂2 孵育20分钟。将一个100 mm的培养皿浸入另一个装有冰的容器中,使其刚好位于冰面下方,确保培养皿的侧壁与冰直接接触。向培养皿中加入适量切片缓冲液,并同样保持其充氧状态。
- 将单刃剃须刀片的刃口浸入培养皿中的冰冻切割缓冲液中超过1分钟,以冷却刃口。
- 振动切片机设置:
- 打开振动切片机,并确保排水口已关闭。
- 将切片室固定在振动切片机中,并在切片室周围放置冰块,预冷至0–4 °C。
- 将双面剃须刀片浸入70% EtOH中5分钟,以去除出厂时的油脂,随后用ddH2O冲洗。小心地将刀片切成两半(切勿弯曲刀片),并将其中一半固定在切片块上。
- 取出小鼠大脑
- 将一只12至18日龄的C57BL/6J小鼠置于预装有0.5 ml异氟烷(滴加于Kimwipe纸或棉球上)的小型麻醉 chamber 中进行麻醉。轻轻夹捏小鼠脚趾,确认无疼痛反射。
- 使用锋利的剪刀将小鼠断头,然后用小镊子去除头皮。用小骨剪沿正中裂从 cerebellum(小脑)至 olfactory bulbs(嗅球)剪开颅骨。用小镊子移除颅骨瓣。用解剖刀轻轻取出脑组织,浸入培养皿中冰冷的含氧切片缓冲液内。
- 用预冷的剃刀片在培养皿中将小鼠脑组织沿中线切开,以增加冷却和氧合的表面积。将切开的脑半球置于冰冻切片缓冲液中静置 2–3 分钟,直至脑组织完全冷却并变得坚实。
- 在振动切片机的平台上涂抹一层薄薄的氰基丙烯酸酯胶。将两个半脑以切面朝下、外侧朝上的方式粘附在平台上,嗅球朝前。将平台固定在切片室中,然后向切片室内加入冰冷且充分氧合的切片缓冲液。
- 在使用振动切片机准备300 µm厚的旁矢状切片时,持续为切片室供氧。切片参数设置为:频率85 Hz,前进速度0.20 mm/sec,振幅1.40 mm。 注:我们发现,制备健康的急性海马切片最关键的变量是振动切片机的质量。本实验室使用配备vibrocheck功能的Leica VT 1200 S磁力驱动振动切片机,以减少“z”方向的振动。
- 切片后,使用锋利的镊子在振动切片机的切片室中,从每片旁矢状面脑片上分离出海马体及其相邻的内嗅皮层。此操作需在冰上、冷切片缓冲液中进行,并确保缓冲液充分供氧。镊子的锋利程度对脑片的健康状态至关重要,因其可最大限度减少对脑片的机械损伤。
- 使用玻璃巴斯德移液管制作转移移液管:将移液管的长尖端折断,并在断裂端连接一个移液球。这样即可利用移液管的粗端来转移组织切片。请确保订购的移液管在粗端无棉花塞(见材料表)。由于切片制备过程不在无菌条件下进行,因此使用前无需对移液管进行高压灭菌,但每次实验应制备并使用新的移液管。
- 将每个海马脑片转移至35 °C水浴中的孵育 chamber,操作时需将转移移液管浸入切片架各孔内的ACSF中,吸取脑片。此过程中应尽量减少脑片的移动。直接将脑片转移至预热的孵育浴中,所得脑片质量优于通过逐步升温(“ramping”)的方式。
- 让海马脑片在温水浴中恢复,总时长为45分钟,具体步骤如下:先将脑片在含1 µM SR-101的低钙人工脑脊液(ACSF)中孵育20分钟,随后转移至不含SR-101的低钙ACSF中孵育10分钟。接着,将脑片转移至对照或实验用ACSF中,继续在温浴条件下孵育剩余的15分钟。
- 45分钟温育恢复后,小心地将孵育 chamber 从35 °C水浴转移至实验台,随后让脑片在室温下继续孵育,总孵育时间达到3小时后,开始进行团注加载方案(见下文)。
5. 使用 Ca2+ 指示剂对星形胶质细胞进行团注加载
- 准备 Ca2+ 指示剂团注染料:
- 每瓶染料(50 µg)加入 3.87 µl 新鲜的二甲基亚砜(DMSO),并充分涡旋混匀。DMSO 的新鲜程度对染料加载效果至关重要,因此每次均应开启新的安瓿瓶。
- 加入 9 µl 20% 普流尼克酸(pluronic acid),充分涡旋混匀;再将染料与 100 µl 相应的实验组或对照组人工脑脊液(ACSF)混合,并充分涡旋,最终染料浓度为 10 µM。
- 使用离心过滤管过滤该溶液。此步骤可防止染料注射过程中移液管堵塞。
- 使用硼硅酸盐玻璃毛细管拉制移液管,当其内充满染料溶液时,电阻应约为 1.3 MΩ。
- 将海马脑片置于专为显微镜设计的记录室中,并持续灌流与其孵育时相同成分的含氧 ACSF(流速 1.5 ml/min)。在选择海马脑片时,交替使用对照条件和实验条件。
- 弃用外观不健康的海马脑片。即使在同一实验中,脑片质量也可能存在差异。目前尚无量化脑片健康状况的统一标准,因此脑片健康状况的判断主要依赖经验,具有主观性。
- 一般而言,应保留表面平滑、健康 CA1 锥体细胞比例较高的脑片(图 2A)。CA1 锥体细胞对中枢神经系统损伤特别敏感且易受损,因此若健康 CA1 锥体神经元比例较高(≥75%),可作为接受或弃用脑片的有用参考标准。
- 若脑片中死亡神经元比例约为 >25%,则应弃用。死亡神经元呈现“煎蛋样”外观(图 2B)。注意:我们观察到切片角度对神经元是否呈现健康状态有重要影响。若神经元树突向上(即伸出脑片表面),则神经元大多已死亡。这可能是因为神经元体积的大部分位于树突树中,切断树突会导致细胞死亡。相反,若树突平行于脑片表面或向下延伸,则健康神经元比例较高。因此,有时脑片一侧神经元大多死亡,而另一侧则外观健康。
- 在距脑片表面下方 40–70 μm 处,利用微分干涉差(DIC)光学系统,根据大小、形态和位置选择一个合适的辐射层(stratum radiatum)星形胶质细胞区域。
- 将玻璃移液管填充染料溶液,并使用标准膜片钳微电极夹持器将其降至该区域上方的脑片表面。当移液管位于脑片表面时,向移液管施加回压以开始喷出染料。在 DIC 光学系统及适当的激光(如绿色染料的 488 nm 激光线)下均可观察到染料的喷出。
- 使用显微操作器缓慢将移液管下移至脑片表面下方约 40 μm 处,持续喷出染料约 45–60 秒。随后,再将移液管下移 35 μm(即脑片表面下方 75 μm),继续喷出染料约 45–60 秒。然后缓慢将移液管尖端从脑片中撤出。注射时间过短可能导致染料加载不足,而时间过长则易增加背景染色,降低记录的信噪比。
- 为确保大量星形胶质细胞摄取染料,通常可在稍远距离处注射第二团染料。将移液管抬升回脑片表面,确认其未堵塞后,沿辐射层将移液管移动至距离第一次注射位点约 80–100 μm 处,重复团注注射。
- 注射后需等待 30–45 分钟,使星形胶质细胞充分摄取染料并降低背景信号。此期间将脑片保留在灌流室中。请确保将此孵育时间纳入实验总处理时间 4 小时内。在此期间可获取下一片脑片,并重复步骤 5.2–5.8。
6. 记录海马脑片中星形胶质细胞的自发性及Gq GPCR激动剂诱发的Ca2+活动
- 设置共聚焦显微镜进行成像:
- 限制切片对激光的暴露至关重要,因为高强度暴露可能导致染料漂白和/或光毒性。使用更高的光学放大倍数或增加缩放设置会提高成像区域的光照强度。因此,应将每种激光的默认值设置为高光电倍增管设定、1倍增益和0.5%激光输出功率。
- 应用1.5倍缩放以更好地观察星形胶质细胞的突起。
- 将扫描分辨率设为512 × 512像素。
- 将扫描速度设为最快模式,使用单向扫描模式时约为每帧1.2秒。
- 使用带通滤光片收集发射光谱:488 nm激光对应503–548 nm,559 nm激光对应624–724 nm。这些设置可在足够高的分辨率下以相对较快的速度成像约5–8个星形胶质细胞的区域,足以观察星形胶质细胞胞体及其主要突起。理想情况下,视野中的星形胶质细胞应足够明亮以清晰可见,但不出现像素饱和。
- 通过559 nm激光观察SR-101共标记,确认加载了Ca2+染料的细胞为星形胶质细胞。
- 记录星形胶质细胞Ca2+活性:
- 使用图像采集软件在细胞内的感兴趣区域(ROIs)上绘制方框,本实验中为星形胶质细胞胞体。为获得最佳信噪比,方框不应包含背景像素,并额外绘制一个背景区域作为参考。
- 将灌流切换至实验用人工脑脊液(ACSF)并添加1 µM TTX(Abcam),并在后续实验过程中保持该灌流。此举可消除神经元动作电位驱动的星形胶质细胞钙反应。此后观察到的星形胶质细胞Ca2+浓度升高将归因于量子化囊泡释放、组成型(基础)G蛋白偶联受体(GPCR)活性,或两者共同作用。
- 记录所有感兴趣区域随时间变化的荧光信号。任何超出基线的荧光增强均表明胞浆Ca2+浓度升高16,从而反映星形胶质细胞中GPCR的激活10,17,18。为避免TTX对星形胶质细胞受体可能产生的早期调节效应,应在开始灌流1 µM TTX后的40分钟内完成实验。
- 在获得10分钟自发Ca2+活性基线记录后,依次递增浓度施加目标激动剂(如DHPG)。每次施加之间至少间隔5分钟,以减少受体脱敏的可能性。
- 在记录结束时,施加一组针对其他星形胶质细胞Gq型GPCR的激动剂混合物,作为星形胶质细胞Gq-GPCR信号通路完整性的阳性对照。激动剂混合物的具体成分取决于研究的目标受体。常用的组合包括:组胺(10 µM,激活组胺H1受体[H1R])、卡巴胆碱(10 µM,激活毒蕈碱型乙酰胆碱受体[mAchR])和2Na-ATP(10 µM,激活嘌呤能受体[P2YR])。
- 实验后图像采集:
- 完成Ca2+记录后,使用488 nm和559 nm激光获取静态图像,用于后续确认星形胶质细胞身份及感兴趣区域的定位准确性。此时可自由调整激光功率和高压(HV)设置以获得最佳共定位图像,因不再需要考虑激光强度对数据的影响(图2A)。
- 重复步骤6.1–6.3,总共约进行8个脑片、每组约40个星形胶质细胞的实验。脑片应来自至少3只不同的小鼠。
7. 星形胶质细胞 Ca2+ 活性的分析
- 定义 Ca2+ 高程:定义钙的标准化2+ 瞬变信号在科学界尚未确立明确的定义。以下是一种典型方案,旨在提高检测灵敏度的同时,最大限度减少基线噪声中假阳性事件的检出。
- 让另一位实验室成员为每一片样本分配一个数字编码,以便进行盲法分析。分析结束后,对每一片样本进行解码。
- 分析星形胶质细胞的自发性和诱发性钙信号2+ 使用图像分析软件离线分析高程。根据需要重新绘制和/或调整感兴趣区域(ROIs)的大小、形状和位置。
- 荧光强度相对于基线升高,表明Ca2+ 升高,如果峰幅值在至少两个连续采样点中超过30秒平均基线荧光均值以上两个标准差(S.D.)。对于噪声特别大的记录(信噪比较低),此标准可能需要调整为超过平均基线荧光均值以上3个标准差。定义每个Ca²⁺事件的起始点为2+ 荧光强度超过平均值以上一个标准差时的升高值作为最后一个数据点。
- 区分多峰 与 连续的单峰事件。当峰间荧光强度在≤9个连续数据点(10.8秒)内未恢复至基线水平(低于平均基线值+2倍标准差)时,判定该事件为“多峰”。因此,单峰事件之间应具有10个或更多连续的基线数据点。
- 当荧光强度维持在峰值幅度(峰值的±10%范围内)至少3.6秒时,将事件分类为“plateau”型反应。
- 分析自发性及激动剂诱发的钙瞬变的幅度、频率和动力学特征。
- 定义Ca峰值幅度2+ 以强度值最高的数据点作为峰顶(对于“多峰”响应,使用第一个峰;参见 图2B).
- 将反应起始时间与对应峰值振幅的时间之差计算为上升时间。注意:为获得足够数量的数据点以确定时间值,可能需要使用0到100%的上升时间;此处扫描速度是一个重要变量。
- 将潜伏期计算为从激动剂灌注开始至反应起始之间的时间。在脑片实验中,上升时间可能是更有用的指标,因为较长的灌注时间会干扰反应潜伏期的准确计算。
- 使用独立样本t检验确定两组之间各参数是否存在统计学显著差异 t-检验。以星形胶质细胞数量作为“n”。采用皮尔逊卡方检验比较Ca2+ 对照组与处理组之间的活动模式。使用Fisher精确检验(双尾)比较特定Ca的百分比2+ 对照组与处理组之间的活动模式差异。以 *p 表示差异显著性 < 0.05,**p < 0.01,以及 ***p < 0.001.
结果
代表性结果 图3 显示在TTX中孵育4-6小时对急性小鼠海马脑片s.r.星形胶质细胞Ca的影响2+ 活性。数据包括自发的 Ca2+ 瞬变和DHPG诱导的I型mGluR Ca2+ 对照 ACSF 中孵育的脑片所记录的反应 与 ACSF 加 TTX。除基本的形态学特征外,还包括星形突起的组装和较小的胞体尺寸(~10 µm),通过Ca信号在辐射层中鉴定星形胶质细胞2+ 指示剂OGB-1 AM与选择性星形胶质细胞标记物SR-10119,20 (图3A). 星形胶质细胞胞体上方的编号方框对应于下方所示随时间变化的编号荧光轨迹 图3B. 应用第1组代谢型谷氨酸受体(group 1 mGluR)激动剂(RS)-3,5-DHPG,以确定其对星形胶质细胞中第1组mGluR特异性缩放效应的影响。为区分第1组mGluR在缩放效应中的生理特异性与其他Gq偶联G蛋白偶联受体(Gq GPCRs)之间的差异,在每次实验结束时施加一组激动剂混合物。本研究中采用的混合激动剂包括 10 µM 每种Gq偶联GPCR激动剂,包括组胺、氯化卡巴胆碱(carbachol)和5’-三磷酸腺苷二钠(Na-ATP)。该激动剂混合物还可作为阳性对照,用于鉴定具有活性且可响应的星形胶质细胞,以应对某些细胞对DHPG无反应的情况,原因可能是这些特定的星形胶质细胞表达的受体数量不足,无法对DHPG产生响应。
我们使用了不同浓度的 DHPG,包括 5 µM 和 15 µM (图3B以及 30 µM 和 50 µM (图 4A) 以帮助揭示星形胶质细胞中 I 型代谢型谷氨酸受体(mGluRs)的变化。细胞内 Ca2+ 先前已研究过反应与Gq GPCR表达水平之间的关系 体外21-24首先,细胞对特定激动剂浓度产生反应的阈值取决于每个细胞表达的受体密度。在细胞群体中,表达受体密度较高的细胞对激动剂更敏感,因此在相同浓度下会有更多细胞产生钙信号响应。2+ 当细胞被转染更高密度的受体时,对给定浓度激动剂产生反应的星形胶质细胞比例升高。在TTX中孵育脑片后,群体中对固定浓度激动剂产生反应的星形胶质细胞百分比增加(图3B 和 3C)。我们发现 5 µM 和 15 µM DHPG 显示对照组与 TTX 处理组细胞中反应性星形胶质细胞的百分比存在明显差异,而 30 和 50 µM DHPG 用于比较 5.0 mM K 条件下 I 组 mGluR 的反应+ 处理组与对照组细胞(图 4A).
星形胶质细胞 Ca2+ 反应模式与激动剂浓度之间的关系也已在原位(in situ)得到研究。随着激动剂浓度的增加,星形胶质细胞的 Ca2+ 反应模式会从单峰型 Ca2+ 升高转变为多峰型和平台型 Ca2+ 升高25-27。基于这些先前的研究结果,我们推测,若受体表达水平发生变化,则对单一浓度激动剂的反应模式也将发生改变。因此,根据所采用的两种缩放方法中哪一种(抑制或增强神经元放电),产生特定反应模式所需的激动剂浓度将相应升高或降低。例如,经河豚毒素(TTX)孵育的星形胶质细胞,其由 DHPG 诱发的 Ca2+ 反应模式更倾向于平台型 Ca2+ 升高,并且相较于对照组星形胶质细胞,对较低浓度的激动剂即可产生反应(图 3C)。结合此前的研究,这些观察结果提示,星形胶质细胞中 I 组代谢型谷氨酸受体(mGluR)的表达水平有所上调。
Ca2+升高事件的上升时间与起始时间(潜伏期)已被证明与培养细胞中Gq型G蛋白偶联受体(GPCR)表达水平的变化直接相关22-24。受体表达水平越高,反应潜伏期越短,上升速度越快;而受体密度降低则产生相反效果。对于在TTX中孵育的星形胶质细胞,施加DHPG所诱发的Ca2+瞬变的上升时间显著快于在对照ACSF中孵育的星形胶质细胞(图3D)。如前所述,无论激动剂浓度或缩放模型如何,激动剂诱发的Ca2+反应幅度均保持不变15(图3D)。
除了通过DHPG直接激活I型mGluR所观察到的变化外,这种操作也显著影响星形胶质细胞的自发性Ca2+活动。我们发现,在TTX孵育条件下,自发性活跃星形胶质细胞的比例较对照组增加了2.26倍。该比例从对照组星形胶质细胞胞体中仅有12.9%表现出自发性活动,上升至TTX孵育组的42.1%(图3E)。已知G蛋白偶联受体(GPCR)在无激动剂存在时具有“固有”或组成性活性21,26,28,且这种固有活性水平随受体表达量的增加而升高。因此,这些数据提示,在长期降低神经元动作电位发放后,星形胶质细胞中Gq型GPCR的密度有所增加。与激动剂诱发的反应类似,自发性Ca2+升高的上升时间也有所延长(图3E)。
使用第二种方案(在高细胞外钾浓度(5.0 mM)中孵育)的代表性数据如图4所示。细胞外K+浓度从2.5 mM升高至5.0 mM,可显著增加CA3神经元的基础动作电位频率15。为了在高钾环境中孵育的星形胶质细胞中诱发I型mGluR介导的Ca2+反应,需要使用更高浓度的DHPG(30 µM和50 µM)(图4A和4B)。这与神经元动作电位长期增加后,星形胶质细胞中I型mGluR反应性降低的现象一致。此外,对固定浓度DHPG的诱发反应模式从平台样反应转变为较弱的单峰反应(图4B)。比较两种钾浓度条件下自发活跃的星形胶质细胞百分比发现,高K+环境中孵育的星形胶质细胞中自发活跃的比例低于对照条件(图4C)。该效应与TTX处理条件下的结果相反,在TTX条件下,表现出自发性Ca2+升高的星形胶质细胞比例增加。最后,在高K+环境中孵育的星形胶质细胞中,诱发性和自发性Ca2+升高的上升时间均比对照条件更慢(图4C和4D)。总体而言,这些数据表明,星形胶质细胞Gq偶联GPCR的表达水平会根据神经元动作电位活动在较长时间内的变化程度发生双向调节。

图1. 脑片孵育腔室的制作与组装。 (A)使用Brinkmann移液器储存盒的抽屉部分及其密封盖来构建脑片孵育腔室。(B)在容器侧面距离顶部约1¼英寸、侧边¼英寸处钻一个孔,并插入一段柔性管。(C)将微加载器-多通装置连接至柔性管的内端。注意经裁剪适配的天然200 µl移液器吸头(白色箭头)。(D)将六个20 µl Eppendorf微加载器裁剪后连接至一分六通道的多通装置,形成微加载器-多通装置。(E)在盖子上钻两个小孔。(F)用于制作脑片支架的浮式气泡架。(G)移除浮式气泡架底部的“支脚”,以便将一片尼龙网材料粘贴到底部。(H)向孵育腔室中加入足量的ACSF,使脑片支架能够漂浮。调节管路长度,使微加载器的尖端可置于腔室底部的一角。将孵育腔室放入水浴中时,水浴中的液面应与腔室内的ACSF液面齐平。点击此处查看高清图像。

图 2. 脑片健康状态的评估。 (A)使用微分干涉差(DIC)光学观察的外观健康的海马脑片。健康的脑片表面平滑,呈天鹅绒状,且CA1区锥体神经元存活率较高。注意向辐射层(stratum radiatum)延伸的顶树突。对如图所示外观良好的神经元进行膜片钳记录,显示在标准的2.5 mM K+人工脑脊液(ACSF)中,静息膜电位较低(-61 至 -62 mV),且自发动作电位较少。膜电位和放电频率会随细胞外K+浓度而变化(Xie et al.15)。箭头指向星形胶质细胞。缩写:s.r.,stratum radiatum(辐射层);s.py.,stratum pyramidale(锥体层)。比例尺,10 µm。(B)不健康的脑片中CA1区锥体神经元死亡比例较高,死亡神经元外观类似“煎蛋”(白色箭头指向死亡神经元的细胞核——即“煎蛋”的蛋黄)。点击此处查看高分辨率图像。
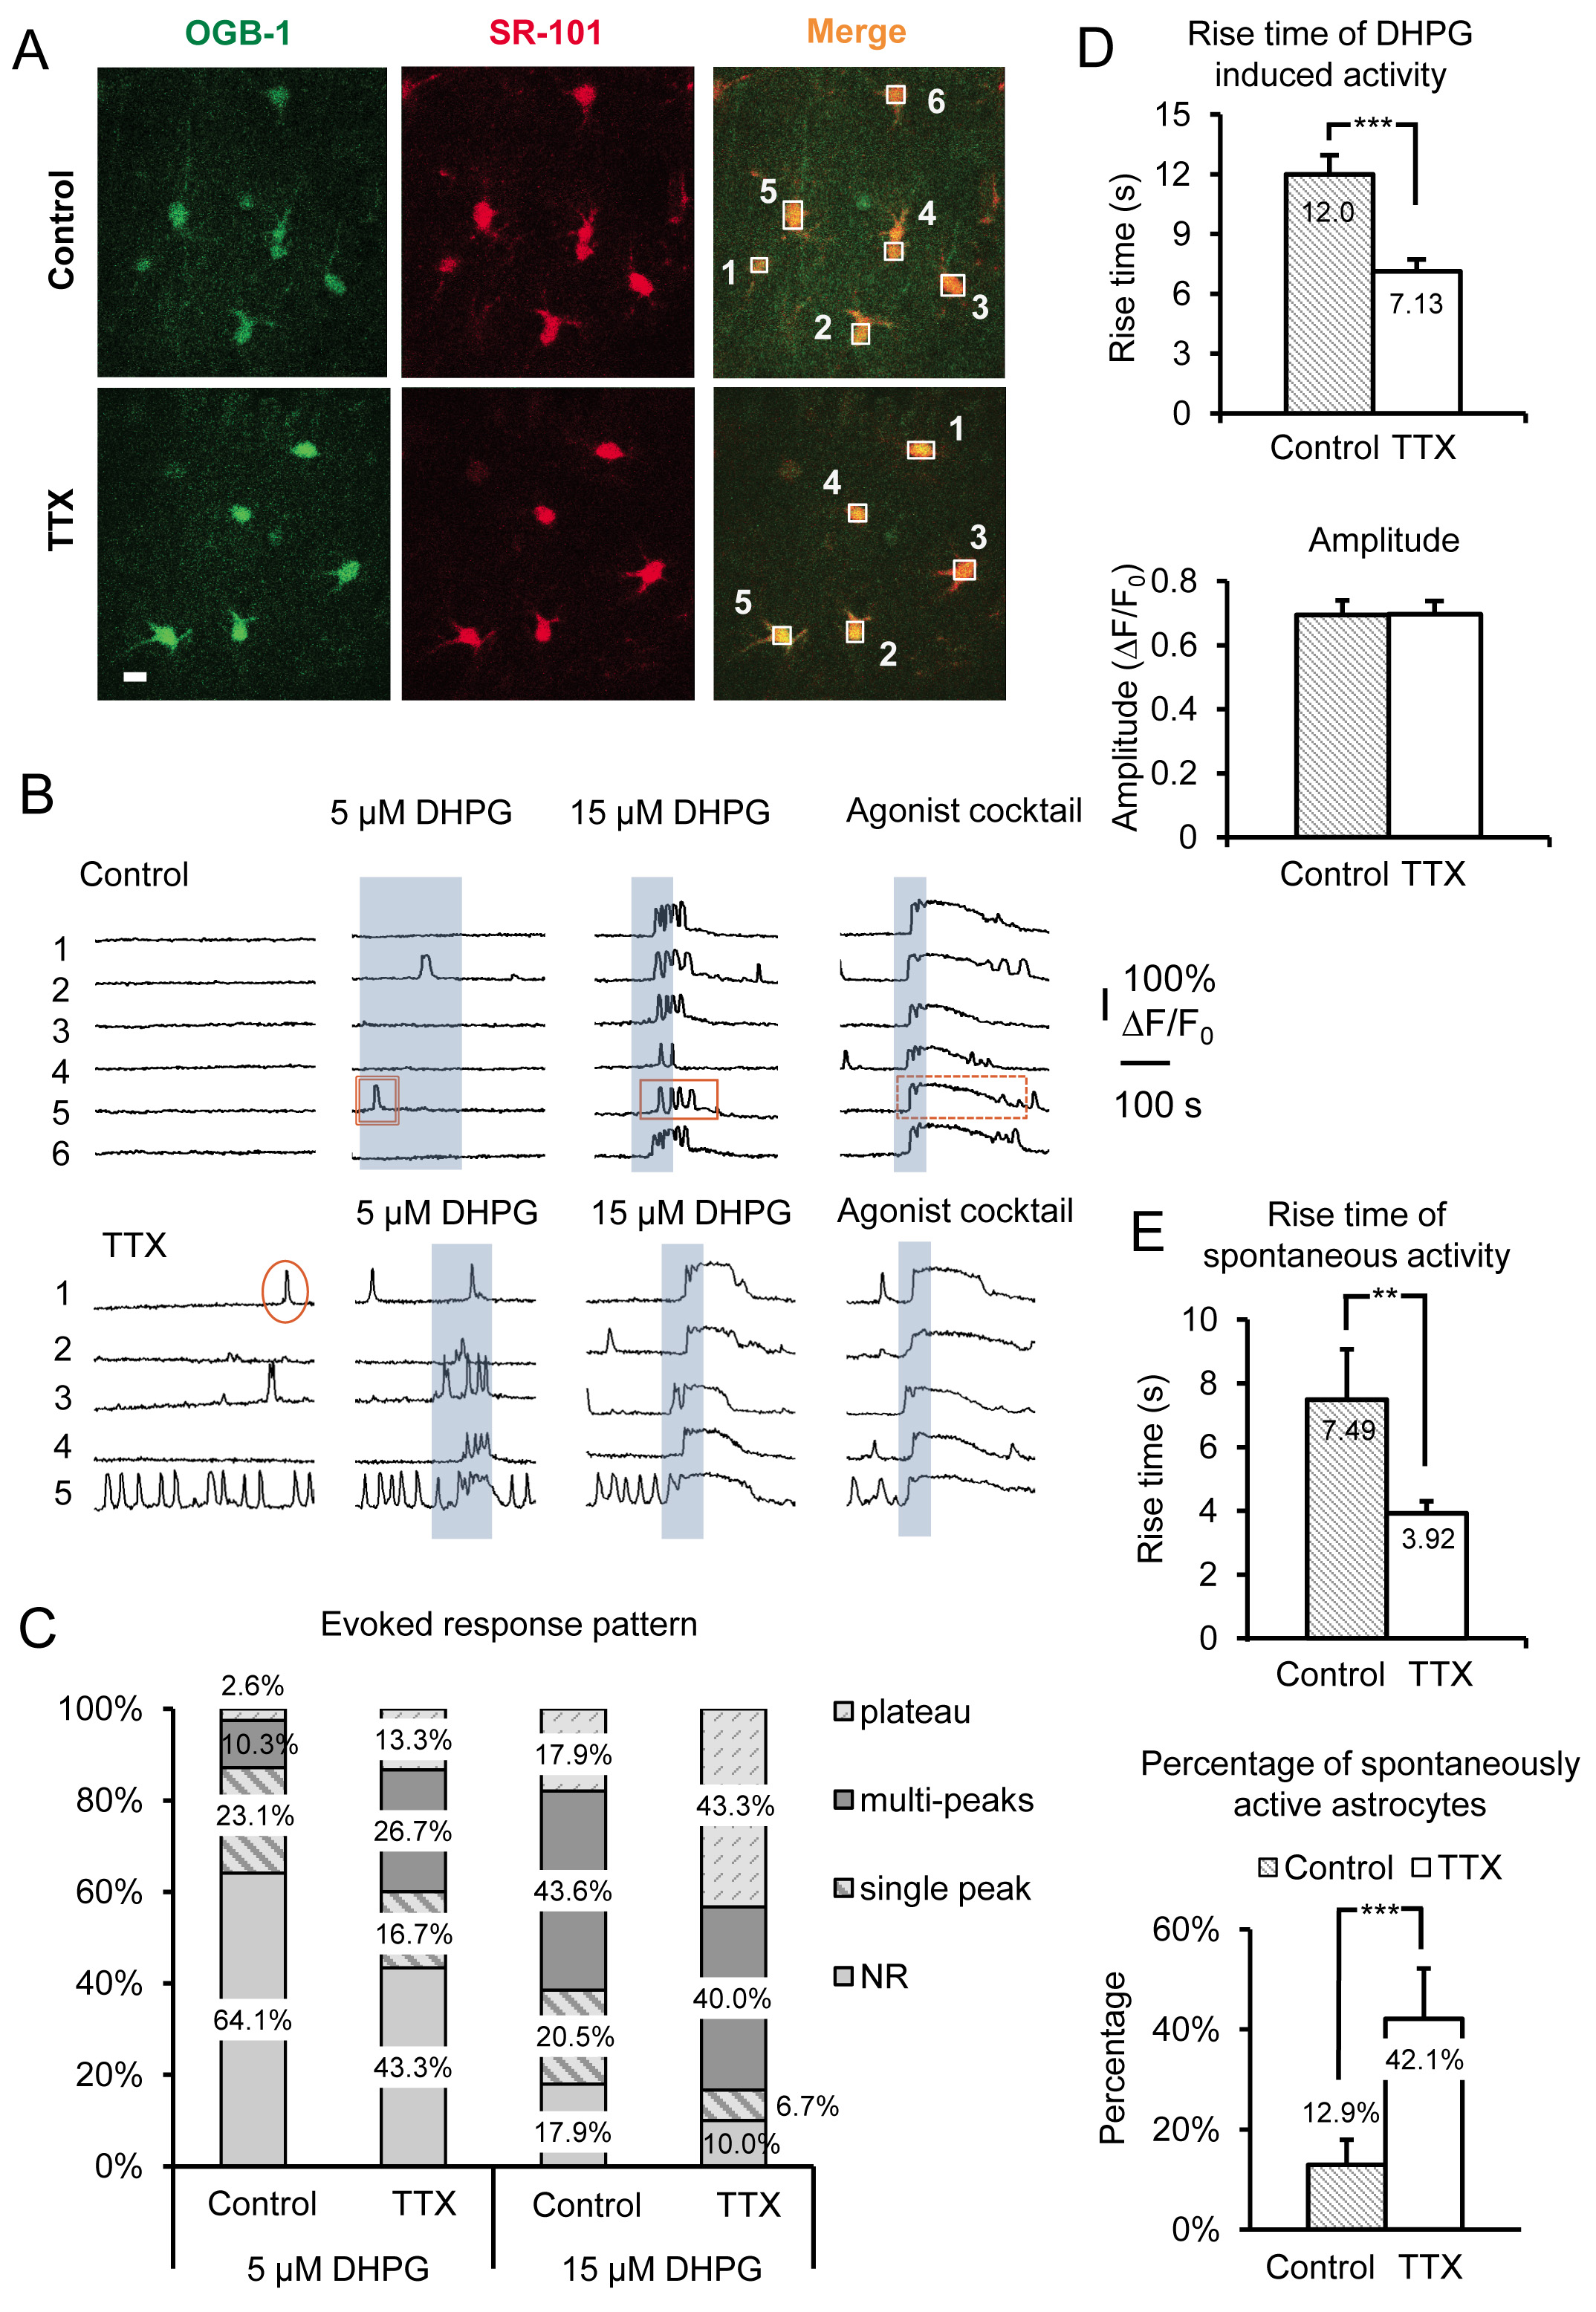
图3. 记录放大后的Gq GPCR活性及诱发的I型mGluR Ca2+ 长期用TTX孵育抑制神经元动作电位后的反应 (A在对照条件(上图)或TTX处理(下图)下孵育的记录视野中细胞摄取Oregon Green BAPTA-1 AM钙指示剂的代表性图像2+ 指示剂染料(左图)和SR-101(中图)。比例尺为 10 µm两种信号叠加(“合并”)表明星形胶质细胞内钙离子水平升高2+ 指示剂。在绿色通道中,对单个星形胶质细胞胞体绘制方框,以记录随时间变化的荧光强度,从而监测 Ca2+ 星形胶质细胞中的活性。B) 记录箱中的样本轨迹 A) 的 Ca2+ 星形胶质细胞中的活性。在TTX中孵育的星形胶质细胞表现出增强的自发活性以及更强的由I型mGluR介导的诱发性Ca2+ 由反应模式的变化所证明的响应。单峰(圆圈)、多峰(矩形)和平台型(虚线矩形)Ca2+ 瞬变过程如图所示。C使用不同浓度的I型代谢型谷氨酸受体(mGluR)激动剂DHPG时,反应模式的变化尤为明显。在特定激动剂浓度下,与对照组相比,经TTX孵育后出现更多多峰和平台型反应。DDHPG诱导的Ca²⁺上升时间2+ 与对照组相比,经TTX孵育的星形胶质细胞反应速度更快(上图),而反应幅度不变(下图),表明一旦达到反应阈值,反应幅度即呈现“全或无”特征。E自发性星形胶质细胞Ca²⁺上升时间2+ 与对照组孵育的星形胶质细胞相比,经TTX孵育的星形胶质细胞中瞬时反应也更快(上图),而群体中表现出自发性Gq GPCR Ca²⁺瞬变的星形胶质细胞百分比2+ 活性增加(下图)。 单击此处查看大图。

图4. 通过在高浓度细胞外钾中孵育以长期增加神经元动作电位(AP),记录星形胶质细胞Gq GPCR活性降低及I型代谢型谷氨酸受体(mGluR)诱导的Ca2+反应减弱。 (A)在5.0 mM K+人工脑脊液(ACSF)中孵育脑片,使神经元去极化并提高其基础放电频率,与对照组ACSF(2.5 mM K+ ACSF)相比,记录得到的星形胶质细胞Ca2+代表性轨迹显示:在5.0 mM K+ ACSF中孵育的星形胶质细胞,其自发性胞体Ca2+瞬变事件更少,且DHPG诱导的反应更弱。 (B)对不同浓度DHPG诱导的反应模式进行比较,发现神经元AP长期增加后,反应强度减弱。 (C)与对照ACSF相比,长期在高K+环境中孵育后,群体中表现出自发性Ca2+活动的星形胶质细胞比例降低(上图),同时自发性活动的上升时间变慢(下图)。 (D)与在对照ACSF中孵育的星形胶质细胞相比,经5.0 mM K+处理后,星形胶质细胞对不同浓度DHPG诱导的Ca2+反应上升时间变慢。 点击此处查看大图。
讨论
所述的缩放模型代表了研究星形胶质细胞I型代谢型谷氨酸受体(group I mGluRs)长期可塑性的实用方法。通过成像自发性和诱发性Ca2+事件,可灵敏地检测星形胶质细胞Gq偶联G蛋白偶联受体(Gq GPCR)活性的变化,已有充分证据表明,星形胶质细胞内Ca2+浓度升高发生在Gq GPCR激活后下游的IP3R敏感性钙库释放过程中10,12,17,18。群体中星形胶质细胞对I型mGluR激动剂的反应比例及其Ca2+反应模式,可反映星形胶质细胞I型mGluR功能状态的变化。
在设计用于检测星形胶质细胞Gq GPCR活性变化的实验时,选择何种特定技术将Ca2+指示剂载入星形胶质细胞是一个重要的考虑因素。可通过团注加载(bolus-loading)或批量加载(bulk-loading)多个星形胶质细胞,或通过膜片钳技术对单个星形胶质细胞进行加载,以成像星形胶质细胞中的Ca2+瞬变信号。每种方法各有优缺点。通过膜片钳直接将Ca2+指示剂注入星形胶质细胞,可明确鉴定该细胞为星形胶质细胞,而无需使用SR-101等二次标记物。膜片钳递送指示剂还可记录来自星形胶质细胞较小区室(包括致密的细小突起)的Ca2+活动,尤其是在切片更深层、细胞状态更健康且与突触保持更完整相互作用的区域(取决于可用的激光功率)。然而,膜片钳加载的通量较低,因为数据需逐个细胞采集。相比之下,批量加载可同时将大量星形胶质细胞载入Ca2+指示剂并进行成像。但只有靠近切片表面(<20 µm)的星形胶质细胞能够被有效加载,这引发了关于这些细胞健康状况及其突触连接完整性的担忧。
本文介绍的反压团注加载方案提供了一种折中选择,具有相对较高的通量,并能够监测脑片更深层(40–75 µm)的Ca2+活性。与批量加载相比,采用团注加载技术后,自发性活跃星形胶质细胞的比例显著增加,表明神经元突触与星形胶质细胞突起之间的连接更为完整15。在加载效果良好的情况下,通常可利用双光子显微镜监测星形胶质细胞主突起(数据未显示)甚至更小区室的Ca2+活性。然而,在将较小的突起归属于特定星形胶质细胞时需格外谨慎,因为其边界会与非特异性背景染色相互融合。使用批量加载或团注加载方法时另一个需要注意的问题是需要使用次级标记物来鉴定星形胶质细胞。尽管多年来已知星形胶质细胞优先摄取AM酯类Ca2+指示剂,但通常仍使用次级标记物SR-101来确认所加载的细胞为星形胶质细胞。然而,SR-101本身可能改变神经元的固有兴奋性29。使用SR-101进一步说明了在所有星形胶质细胞Ca2+测量实验中均需加入TTX,以限制SR-101对神经元兴奋性可能产生的影响。假设对照组和实验组均包含SR-101,则该标记物本身不应成为长期调控神经元动作电位后所观察到的星形胶质细胞Ca2+信号变化的原因。然而,在高K+实验中,SR-101可能更值得关注,因为它可能减弱2.5 mM K+与5.0 mM K+之间的差异,特别是当基础放电频率未按比例改变时。
一种极具前景的递送Ca2+ 一种新型星形胶质细胞指示剂最近出现,为传统依赖Ca的检测方法提供了颇具吸引力的替代方案2+ 染料。近年来,在将基因编码的钙离子指示剂(GECIs)靶向星形胶质细胞方面已取得显著进展30-32. 可通过以下方式将GECIs递送至星形胶质细胞 体内 将腺相关病毒载体微量注射至目标脑区(如海马体)。病毒感染约两周后可实现GECIs的表达32使用GECI研究星形胶质细胞具有诸多优势。首先,通过使用星形胶质细胞特异性启动子,可将载体靶向星形胶质细胞,从而确保被标记的细胞即为星形胶质细胞32其次,信号噪声比现在似乎可与采用膜片钳技术递送染料时获得的水平相媲美,但却避免了膜片钳电极对细胞造成的侵入性损伤32第三,这些指示剂可在成年组织中递送并表达,而使用批量负载递送方法则存在困难。此外,其表达呈马赛克式分布,能够区分多个星形胶质细胞。因此,可同时对多个星形胶质细胞进行成像,同时记录细胞体和细小分支的活动。因此,单一技术有望替代三种独立的技术(批量负载、团注负载和膜片钳负载),用于记录星形胶质细胞Gq G蛋白偶联受体的缩放活性,从而显著提高实验效率。
使用病毒介导的方式将Ca2+指示剂递送至星形胶质细胞的一个潜在缺点是可能影响脑片的健康状态32。先前研究表明,用于递送基因编码钙指示剂(GECI)的腺相关病毒载体可引起星形胶质细胞的反应性胶质增生33。通常情况下,脑片制备过程本身可能已启动了早期病理变化,包括炎性分子的释放10。因此,结合星形胶质细胞受体缩放调节所需的较长孵育时间,在此类实验中使用病毒载体递送GECIs时,需更加审慎地评估其对脑片健康的影响。
采用本方案时,需要注意激动剂产生反应的作用时间会因受体可用性的不同而变化。对于给定浓度的激动剂,若受体数量下调,则需要更长的给药时间;若受体数量上调,则需要更短的给药时间,以使药物在组织中达到足够的浓度,充分激活受体并引发Ca2+反应。因此,可能需要根据预期的缩放方向调整药物的作用时间,甚至其浓度。例如,在使用TTX的情况下,可能需要降低激动剂浓度以避免反应饱和;而在高K+孵育脑片后,则可能需要提高浓度才能观察到反应。具体而言,为了研究Ca2+反应模式,DHPG浓度在TTX处理后调整为5–15 µM,而在5.0 mM K+处理后则调整为30–50 µM,因为5–15 µM的浓度在I型mGluR受体下调后常常不足以在星形胶质细胞中产生可靠的反应。
星形胶质细胞Ca²⁺记录2+ 该活动并未提供受体插入或从质膜内化的确凿直接证据。然而,基于本研究数据与以往研究数据的高度相似性 体外 探讨了Gq GPCR表达水平与自发性和诱发性Ca之间的直接关系2+ 瞬时表达21-24,对Ca变化最合理的解释2+ 信号传导的变化在于星形胶质细胞表面受体的表达水平发生了改变。如果希望为效应作用位点提供额外证据,采用互补性方法可能是一个重要考虑因素。2+ 活性。我们采用的一种策略是检测河豚毒素(TTX)孵育对星形胶质细胞特异性表达MrgA1R的转基因小鼠海马脑片的作用。这些转基因小鼠仅在星形胶质细胞中表达一种外源性Gq蛋白偶联受体(MrgA1R)。由于该受体并非脑内天然存在,因此不存在可内源性调节其活性的神经递质。先前的研究表明,该受体在相同的星形胶质细胞中可激活与内源性I型代谢型谷氨酸受体(mGluRs)相同的细胞内信号分子34在TTX中长期孵育MrgA1R小鼠的脑片后,若与同窝对照组孵育的脑片相比,激动剂诱导的MrgA1R反应无差异,则可证明该处理对星形胶质细胞Ca²⁺2+ 活性变化是由于表面受体的局部改变所致,尤其是在同一星形胶质细胞中I组mGluR反应仍显著增强的情况下。另一种可能更为复杂但可行的策略是,从脑片中分离星形胶质细胞进行蛋白质印迹分析,前提是能够分析膜组分中表面受体表达水平的变化。此时,荧光激活细胞分选(FACS)或流式细胞术可能有所帮助。
该技术在神经元、星形胶质细胞以及星形胶质细胞-神经元相互作用研究中的潜在应用十分广泛。在我们的实验中,仅观察到由DHPG诱导的I型mGluR介导的星形胶质细胞Ca2+ 在来自幼年小鼠的急性海马脑片中研究了这些反应。该制备方法不仅保留了完整的传入纤维(Schaffer侧支),还保留了产生这些纤维的神经元(CA3锥体细胞),从而可以调控这些谷氨酸能神经元对突触后细胞(CA1锥体细胞)以及辐射层中与这些突触相关联的星形胶质细胞过程的放电频率。然而,急性海马脑片可能并非操控其他类型神经元放电频率的最佳制备方式,因为许多传入纤维与其起源神经元之间的连接已被切断。尽管如此,在某些特定的脑片制备中,仍有可能观察到其他星形胶质细胞Gq偶联G蛋白偶联受体亚型的可塑性变化。例如,可制备保留基底前脑胆碱能神经元及其向海马投射通路完整的脑片。将此类脑片孵育于TTX或高钾环境中+ 会影响胆碱能神经元的基础放电频率,从而导致接收大量胆碱能输入的门区星形胶质细胞中的毒蕈碱型乙酰胆碱受体(mAchRs)发生比例性调节1一种尚未经过验证但可替代的研究方法,是在脑内特定区域保持所有神经连接完整的情况下,研究星形胶质细胞受体的缩放调节,可采用一种 体内 通过在目标区域上方植入塑料聚合物 Elvax 40W,实现河豚毒素(TTX)的持续释放的模型35该方法此前已用于神经元比例调节的研究,但也应适用于星形胶质细胞的比例调节。最后,通过适当的检测手段,未来的研究可进一步考察其他G蛋白偶联受体家族,包括G蛋白信号通路中的变化s 或 Gi GPCRs。人们可能会预测星形胶质细胞中的GABAB Gi 在任何脑片制备中,当局部投射的GABA中间神经元的放电活动被抑制后,可能影响的GPCR。开发靶向其他信号分子的新指示剂,例如第二信使cAMP的实时指示剂,将开辟神经元-星形胶质细胞受体通讯研究的全新领域。
通过调控基础神经元放电频率来双向调节星形胶质细胞mGluR,可用来评估星形胶质细胞对动作电位介导的神经递质释放的敏感性。即使在细胞外K⁺浓度正常的情况下,星形胶质细胞似乎也能感知到Schaffer侧支-CA1锥体细胞突触处的自发性动作电位及谷氨酸释放。+ 处于生理范围内。急性应用TTX不会降低星形胶质细胞自发性Ca2+ 活性18,36,37,Ca2+ 星形胶质细胞群体中的活动变得去相关36,提供证据表明星形胶质细胞受体是动作电位检测器。这表明星形胶质细胞能够感知自发性神经元动作电位,而不会影响其整体钙信号2+ 活性。普遍认为,细胞内IP的浓度3 需要达到阈值水平才能刺激IP3Rs 足够强,从而引起可检测的 Ca2+ 升高。自发性神经元动作电位能否在不引发可测Ca信号的情况下激活星形胶质细胞的GPCR2+ 升高?未来的研究可利用荧光共振能量转移(FRET)或类似技术(如BRET),来检测G蛋白与受体的偶联(作为受体激活的指标)与Ca2+ 来自细胞内储存的释放。BRET 已被广泛使用 体外 检测G蛋白与G蛋白偶联受体的偶联38,尽管在完整的组织样本中应用该技术可能还需要一段时间。目前的钙成像技术可能无法记录到星形胶质细胞Gq型G蛋白偶联受体(Gq GPCRs)实际被激活的全部频率,其激活频率或许远高于现有记录所能反映的水平2+ 成像工具。除了感知动作电位外,星形胶质细胞的Gq G蛋白偶联受体还可能检测到神经递质的微型量子化释放,这一点已在最近的一项研究中被报道39此处所述的双向缩放方法可在未来的研究中用于评估星形胶质细胞Gq GPCR检测神经递质量子化囊泡释放的程度,方法是在孵育方案中加入巴佛洛霉素A1。
迄今为止,这些缩放实验方案仅在幼年小鼠(p12-p18)的海马脑片中应用过。因此,目前尚不清楚成年小鼠组织中的星形胶质细胞受体是否也能诱导出类似的缩放效应。最近一项引人注目的研究表明,星形胶质细胞中I型mGluR的表达在出生后第一周内显著下降,并持续减少直至成年,在成年小鼠星形胶质细胞中受体表达水平极低40。因此,若能在成年小鼠海马脑片中通过长期抑制神经元放电,观察到星形胶质细胞mGluR表达上调至接近幼年小鼠星形胶质细胞的水平,将具有重要意义。这一发现将表明,星形胶质细胞受体的表达并非在特定年龄阶段固定不变,而是能够根据神经元活动水平迅速发生改变。与成年小鼠I型mGluR表达减少相反,越来越多的证据表明,肾上腺素能受体(包括α1A、α2A和β1亚型)在成年脑中主要由星形胶质细胞表达3,4。其中α1A肾上腺素能Gq偶联G蛋白偶联受体(GPCR)可能成为未来研究神经元-星形胶质细胞 通讯的有吸引力的靶点,例如探究这些受体是否对肾上腺素能神经元放电频率的变化具有敏感性。
披露
作者希望声明,本研究中使用的河豚毒素购自 Abcam。Abcam 未参与本研究的假设提出、实验设计或数据收集。所有关于 Abcam 资助本工作的沟通均在同行评审过程完成后进行。
致谢
作者谨此感谢加州大学河滨分校胶质-神经元相互作用研究中心在扩增方案和数据讨论方面提供的宝贵意见。作者还诚挚感谢Abcam对本 研究发表的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 孵育室耗材 | |||
| Brinkmann 移液管储存容器 | Fisher Scientific | 03-491 | 使用抽屉部分作为孵育室 |
| 电钻 | |||
| 柔性管路 | Tygon | R-3603 | |
| 硅酮接缝密封剂 | 也称为水族箱接缝密封胶 | ||
| 气体钢瓶 | 95% 氧气,5% 二氧化碳 | ||
| 天然斜面移液管尖端 | USA Scientific | 1111-1000 | 按需截断以连接充氧管路 |
| 一进六出分流管 | Warner Instruments | 64-0210 (MP-6) | 用于微加载器-分流管装置 |
| 微加载器 | Eppendorf | 5242 956.003 | 用于微加载器-分流管装置,按需截断 |
| 浮式气泡架 | Bel Art Scienceware | F18875-0400 | 用作脑片支架 |
| 600 µm Sefar Nitex 尼龙网 | ELKO Filtering Co. | 06-600/51 | 用作脑片支架 |
| Krazy Glue 胶水 | 用于脑片支架 | ||
| 试剂 | |||
| 异氟烷 | Baxter | 1001936060 | |
| NaCl | Fisher | S271-3 | |
| KCl | Fisher | P333-500 | |
| CaCl2 | Fisher | C79-500 | |
| MgCl2 | Fisher | M33-500 | |
| NaH2PO4 | Fisher | S369-500 | |
| NaHCO3 | Fisher | S233-500 | |
| 葡萄糖 | Fisher | Fisher | |
| (±)-6-羟基-2,5,7,8-四甲基色满-2-羧酸(Trolox) | Acros Organics | 53188-07-1 | |
| 抗坏血酸 | Acros Organics | 401471000 | |
| 河豚毒素柠檬酸盐(TTX) | Abcam | ab120055 | |
| 磺酰罗丹明101(SR-101) | Sigma-Aldrich | 284912 | |
| 二甲基亚砜(DMSO) | Fisher Scientific | D128-500 | |
| Pluronic 酸 F-127 | Invitrogen, Molecular Probes | P6867 | |
| Oregon Green 488 BAPTA-1 AM *细胞渗透性(特殊包装) | Invitrogen, Molecular Probes | O6807 | |
| (RS)-3,5-DHPG | Abcam | ab120020 | |
| 组胺 | Sigma-Aldrich | H7125 | |
| 卡巴胆碱氯化物(Carbachol) | Sigma-Aldrich | C4382 | |
| 腺苷5’-ATP二钠盐(Na-ATP) | Sigma-Aldrich | A7699 | |
| 解剖工具 | |||
| 单刃剃须刀片 | GEM | 62-0161 | 用于脑组织中线切开 |
| 双刃剃须刀片 | TED PELLA, INC. | 121-6 | 用于切片 |
| Mayo 剪刀,超锐型 | WPI | 14010-15 | 用于断头 |
| 精细虹膜剪刀,直头 | Fine Science Tools | 14094-11 | 用于切开头骨 |
| 虹膜镊,弯头 | WPI | 15915 | 用于去除皮肤和头骨 |
| 小型刮铲 | 用于取出/转移脑组织 | ||
| Dumostar Dumont #5 生物学尖头镊 | Fine Science Tools | 11295-10 | 用于海马体解剖 |
| 玻璃巴斯德移液管 | Fisher | 13-678-20B | 用于转移脑片 |
| 巴斯德移液管橡胶吸头 | Fisher | 03-448-22 | 用于转移脑片 |
| 聚苯乙烯 100 mm 组织培养皿 | Corning | 25020 | |
| 振动切片机 | Leica | VT 1200S | |
| 水浴锅 | Fisher | ISOTEMP 210 | 用于温育 |
| 微量移液管拉制仪 | Narishige | PC-10 | 用于制备团注加载移液管 |
| 共聚焦显微镜 | Olympus | Olympus Fluoview 1000 | |
| 带 PM-1 平台的低剖面开放式钻石浴成像室 | Warner Instruments | RC-26GLP | 低剖面钻石浴 |
| 硼硅酸盐玻璃移液管 | World Precision Instruments | TW150F-4 | 用于团注加载移液管 |
| 显微操作器 | Sutter Instrument | ROE-200 | 用于团注加载移液管 |
| Spin-X 离心管滤器,含 0.22 µm 醋酸纤维素膜 | Costar | 8161 |
参考文献
- Araque, A., Martin, E. D., Perea, G., Arellano, J. I., Buno, W. Synaptically released acetylcholine evokes Ca2+ elevations in astrocytes in hippocampal slices. J. Neurosci. 22, 2443-2450 (2002).
- Navarrete, M., Araque, A. Endocannabinoids mediate neuron-astrocyte communication. Neuron. 57, 883-893 (2008).
- Bekar, L. K., He, W., Nedergaard, M. Locus coeruleus alpha-adrenergic-mediated activation of cortical astrocytes in vivo. Cereb. Cortex. 18, 2789-2795 (2008).
- Hertz, L., Lovatt, D., Goldman, S. A., Nedergaard, M. Adrenoceptors in brain: cellular gene expression and effects on astrocytic metabolism and Ca2. Neurochem. Int. 57, 411-420 (2010).
- Porter, J. T., McCarthy, K. D. Hippocampal astrocytes in situ respond to glutamate released from synaptic terminals. J. Neurosci. 16, 5073-5081 (1996).
- Bernardinelli, Y., et al. Astrocytes display complex and localized calcium responses to single-neuron stimulation in the hippocampus. J. Neurosci. 31, 8905-8919 (2011).
- Panatier, A., et al. Astrocytes are endogenous regulators of basal transmission at central synapses. Cell. 146, 785-798 (2011).
- Wang, X., et al. Astrocytic Ca2+ signaling evoked by sensory stimulation in vivo. Nat. Neurosci. 9, 816-823 (2006).
- Fiacco, T. A., Agulhon, C., McCarthy, K. D. Sorting out astrocyte physiology from pharmacology. Annu. Rev. Pharmacol. Toxicol. 49, 151-174 (2009).
- Agulhon, C., et al. Calcium Signaling and Gliotransmission in Normal vs Reactive Astrocytes. Front. Pharmacol. 3, 139 (2012).
- Nedergaard, M., Verkhratsky, A. Artifact versus reality--how astrocytes contribute to synaptic events. Glia. 60, 1013-1023 (2012).
- Nizar, K., et al. In vivo stimulus-induced vasodilation occurs without IP3 receptor activation and may precede astrocytic calcium increase. J. Neurosci. 33, 8411-8422 (2013).
- Sutton, M. A., et al. Miniature neurotransmission stabilizes synaptic function via tonic suppression of local dendritic protein synthesis. Cell. 125, 785-799 (2006).
- Ibata, K., Sun, Q., Turrigiano, G. G. Rapid synaptic scaling induced by changes in postsynaptic firing. Neuron. 57, 819-826 (2008).
- Xie, A. X., et al. Bidirectional scaling of astrocytic metabotropic glutamate receptor signaling following long-term changes in neuronal firing rates. PLoS ONE. 7, (2012).
- Takahashi, A., Camacho, P., Lechleiter, J. D., Herman, B. Measurement of intracellular calcium. Physiol. Rev. 79, 1089-1125 (1999).
- Petravicz, J., Fiacco, T. A., McCarthy, K. D. Loss of IP3 receptor-dependent Ca2+ increases in hippocampal astrocytes does not affect baseline CA1 pyramidal neuron synaptic activity. J. Neurosci. 28, 4967-4973 (2008).
- Nett, W. J., Oloff, S. H., McCarthy, K. D. Hippocampal astrocytes in situ exhibit calcium oscillations that occur independent of neuronal activity. J. Neurophysiol. 87, 528-537 (2002).
- Garaschuk, O., Milos, R. I., Konnerth, A. Targeted bulk-loading of fluorescent indicators for two-photon brain imaging in vivo. Nat Protoc. 1, 380-386 (2006).
- Nimmerjahn, A., Kirchhoff, F., Kerr, J. N., Helmchen, F. Sulforhodamine 101 as a specific marker of astroglia in the neocortex in vivo. Nat. Methods. 1, 31-37 (2004).
- Prezeau, L., et al. Changes in the carboxyl-terminal domain of metabotropic glutamate receptor 1 by alternative splicing generate receptors with differing agonist-independent activity. Mol. Pharmacol. 49, 422-429 (1996).
- Shao, Y., McCarthy, K. D. Quantitative relationship between alpha 1-adrenergic receptor density and the receptor-mediated calcium response in individual astroglial cells. Mol. Pharmacol. 44, 247-254 (1993).
- Wang, S. S., Thompson, S. H. Measurement of changes in functional muscarinic acetylcholine receptor density in single neuroblastoma cells using calcium release kinetics. Cell Calcium. 15, 483-496 (1994).
- Ostasov, P., Krusek, J., Durchankova, D., Svoboda, P., Novotny, J. Ca2+ responses to thyrotropin-releasing hormone and angiotensin II: the role of plasma membrane integrity and effect of G11alpha protein overexpression on homologous and heterologous desensitization. Cell Biochem. Funct. 26, 264-274 (2008).
- Shelton, M. K., McCarthy, K. D. Hippocampal astrocytes exhibit Ca2+-elevating muscarinic cholinergic and histaminergic receptors in situ. J. Neurochem. 74, 555-563 (2000).
- Hermans, E., Challiss, R. A. Structural signalling and regulatory properties of the group I metabotropic glutamate receptors: prototypic family C G-protein-coupled receptors. Biochem. J. 359, 465-484 (2001).
- Zur Nieden, R., Deitmer, J. W. The Role of Metabotropic Glutamate Receptors for the Generation of Calcium Oscillations in Rat Hippocampal Astrocytes In Situ. Cortex. 16 (5), 676-687 (2005).
- de Ligt, R. A., Kourounakis, A. P., AP, I. J. Inverse agonism at G protein-coupled receptors: (patho)physiological relevance and implications for drug discovery. Br. J. Pharmacol. 130, 1-12 (2000).
- Kang, J., et al. Sulforhodamine 101 induces long-term potentiation of intrinsic excitability and synaptic efficacy in hippocampal CA1 pyramidal neurons. Neuroscience. 169, 1601-1609 (2010).
- Tong, X., Shigetomi, E., Looger, L. L., Khakh, B. S. Genetically encoded calcium indicators and astrocyte calcium microdomains. Neuroscientist. 19, 274-291 (2013).
- Akerboom, J., et al. Optimization of a GCaMP Calcium Indicator for Neural Activity Imaging. J. Neurosci. 32, 13819-13840 (2012).
- Shigetomi, E., et al. Imaging calcium microdomains within entire astrocyte territories and endfeet with GCaMPs expressed using adeno-associated viruses. J. Gen. Physiol. 141, 633-647 (2013).
- Ortinski, P. I., et al. Selective induction of astrocytic gliosis generates deficits in neuronal inhibition. Nat. Neurosci. 13, 584-591 (2010).
- Fiacco, T. A., et al. Selective stimulation of astrocyte calcium in situ does not affect neuronal excitatory synaptic activity. Neuron. 54, 611-626 (2007).
- Echegoyen, J., Neu, A., Graber, K. D., Soltesz, I. Homeostatic plasticity studied using in vivo hippocampal activity-blockade: synaptic scaling, intrinsic plasticity and age-dependence. PLoS One. 2, (2007).
- Aguado, F., Espinosa-Parrilla, J. F., Carmona, M. A., Soriano, E. Neuronal activity regulates correlated network properties of spontaneous calcium transients in astrocytes in situ. J. Neurosci. 22, 9430-9444 (2002).
- Takata, N., Hirase, H. Cortical layer 1 and layer 2/3 astrocytes exhibit distinct calcium dynamics in vivo. PLoS ONE. 3, e2525 (2008).
- Salahpour, A., et al. BRET biosensors to study GPCR biology, pharmacology, and signal transduction. Front. Endocrinol. 3 (105), (2012).
- Di Castro, M. A., et al. Local Ca2+ detection and modulation of synaptic release by astrocytes. Nat. Neurosci. 14, 1276-1284 (2011).
- Sun, W., et al. Glutamate-dependent neuroglial calcium signaling differs between young and adult. Science. 339, 197-200 (2013).
重印与许可
