代谢紊乱是人类最常见的疾病之一。利用遗传操作简便的模式生物 D. melanogaster 可用于鉴定调控代谢的新型基因。本文描述了一种相对简单的方法,通过测量果蝇的 CO2 产生量来研究其代谢速率。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
代谢紊乱是影响人类健康的常见问题。因此,了解调控代谢的机制是一项至关重要的科学任务。人类中许多致病基因在果蝇中具有同源基因,这使得 黑腹果蝇 研究不同疾病发生过程中相关信号通路的良好模型。此外,其可操作性 果蝇 简化了遗传筛选,有助于识别可能调控代谢的新型治疗靶点。为了开展此类筛选,需要一种简单快速的方法来鉴定果蝇代谢状态的变化。通常,二氧化碳的产生是底物氧化和能量消耗的良好指标,可提供有关代谢状态的信息。在本方案中,我们介绍一种简便的测定CO₂2 果蝇代谢产物的检测。该技术有望帮助识别影响代谢率的遗传扰动。
引言
生化克雷布斯循环通过氧化来自碳水化合物、脂肪和蛋白质的乙酸盐生成ATP,并产生CO2。在Drosophila中,O2的摄入与CO2的排出直接相关,反映了代谢水平1。因此,CO2排出量的测定已成功应用于与衰老和代谢相关的研究2-5。本实验室改进了先前设计的实验装置,可在无需任何专用设备的情况下同时测量多达十八个样品的CO2生成量。我们及其他研究者此前已利用该方法揭示了在缺乏与肌营养不良症相关蛋白Dystroglycan(Dg)的果蝇中,其代谢率存在差异6-8。
用于氧化代谢的 O2 会转化为 CO2,并作为呼吸废物被排出体外。本文描述了手工制作呼吸计的方法,可用于测定消耗 O2 的速率。将果蝇置于一个密闭容器中,容器内含有可吸收排出 CO2 的物质,从而高效地将其从气相中清除。通过测量连接在密闭呼吸计上的玻璃毛细管中液体的移动,来测定气体体积的变化(即压力降低)。
与其他方法相比,该技术的主要优势在于成本。以往的研究通过气体分析仪和技术上更先进的呼吸测定系统来测量果蝇(Drosophila)的 CO2 产生量1,9。尽管这些设备更为复杂,但本文所述方法的灵敏度与已有报道的数值相近(表1)。此外,已有多个研究团队采用该技术的变体来测定果蝇(Drosophila)的相对代谢率4-6。因此,本检测方法无需购置专业设备,可在任何实验室建立,并可用于教学目的,同时能够产生与果蝇(Drosophila)代谢相关的可靠且可重复的数据。
通常,测定生物体代谢的公认技术是测量产生的 CO2、消耗的 O2,或同时测量两者3,4,9。尽管可以假设一当量的 O2 生成一当量的 CO2,但生成 CO2 的精确比例取决于所利用的代谢底物10。因此,若要准确地以能量单位确定代谢率,必须同时测量消耗的 O2 和产生的 CO2。正因如此,本文所述方法特别适用于比较不同动物之间 CO2 生成量的差异,而非其绝对值。我们的技术在一段时间(1–2 小时)内整合多个动物的 CO2 生成量,从而得出动物活动水平的平均值。如果存在理由认为实验组动物的活动性低于对照组动物,则测量结果可能反映的是活动水平的差异,而不一定是代谢率的差异。
访问受限。请登录或开始试用以查看此内容。
方案
1. 呼吸计的准备
- 用剃刀片切割1,000 μl枪头,以便插入50 μl毛细玻璃微量移液管,尽量使枪头切口保持平直。
- 将一块泡沫放入枪头内,并将其推入枪头底部。
- 加入少量CO2吸收剂,并用第二块泡沫将其固定在内。
- 在毛细玻璃微量移液管插入枪头的位置涂抹胶水。
- 将呼吸计放置过夜,使胶水充分干燥。
呼吸计的示意图见图1A。
2. 测量室的准备
- 按比例将水与伊红混合,配制腔室溶液,比例应使溶液呈现可见的着色效果。
- 将伊红/水溶液倒入腔室内。
- 用厘米刻度尺标记腔室的一侧。
3. 将果蝇放入呼吸测定仪
- 用记号笔标记各个呼吸计。
- 使用非 CO2 的方法麻醉果蝇,并将 3–5 只所需基因型的果蝇放入每个呼吸计中。
- 用橡皮泥密封呼吸计顶部,确保密封严密。
- 让果蝇从麻醉状态中恢复约 15 分钟。
- 准备一个不含果蝇的呼吸计,作为大气对照。
4. 实验操作
- 通过在腔室顶部安装一个顶部和底部均开口的1.5 ml Eppendorf管架,将呼吸计悬挂在腔室内。
- 将呼吸计插入腔室,微移液管尖端朝下,使尖端浸入染色溶液中。
- 在盖子与腔室之间涂抹凡士林,以更好地隔绝温度和压力波动。
- 关闭盖子,使系统平衡15分钟。
- 拍摄腔室照片,确保每根微移液管内的液面高度和刻度均清晰可见(参见图1B所示示例)。
- 1–2小时后,再拍摄一张照片。
- 实验结束后,从呼吸计中取出果蝇,可根据需要进行称重,或将其转移回试剂瓶中备用。
5. 结果分析
- 使用 ImageJ 软件打开获取的图像11。
- 根据每张图片中的标尺,在软件中设置像素比例。
- 测量液体在实验开始时(d1)和实验结束时(d2)从确定的参考点移动的距离(Δd)。图 1C 展示了一个示意图例。
- 使用以下公式计算产生的 CO2 量(µl/hr/fly):
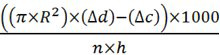
R = 微量移液管的半径,单位为厘米
Δd = 测试样品中液体在微量移液管内上升的距离,单位为厘米
Δc = 阴性对照样品(无果蝇)中液体在微量移液管内上升的距离
n = 使用的果蝇数量
h = 小时
访问受限。请登录或开始试用以查看此内容。
结果
为了证明该方法的灵敏度,我们测定了野生型(Oregon R)雄性果蝇以及Dg突变体果蝇在18、25和29 °C下的CO2产生量。果蝇在25 °C下培养,测量前转移至实验温度下适应5天。正如对该变温物种所预期的那样,CO2的产生量随温度升高而增加(图2)。我们此前已证明,无糖饮食可降低野生型和Dg突变体果蝇的代谢率7。Dg基因的缺失导致代谢水平升高(图2)。
 <...
访问受限。请登录或开始试用以查看此内容。
讨论
在本实验方案中,我们描述了一种经济且可靠的测量果蝇 CO2 产生量的方法。我们发现该实验操作简便、耗时短,所获得的数据具有良好的可重复性,并与其他研究结果一致1,6,9。本文所述方案可根据各实验室的预算和现有材料灵活调整。只要保证呼吸室密封良好,每个个体呼吸计的构建均可进行相应修改。然而,较长且较细的微移液管相比短粗的微移液管可提供更高的测量精度。只要环境温度和压力无显著变化,外层腔室的使用可为可选步骤;环境稳定性可通过阴性对照以及生物样本测量值的变异程度来判断。此外,CO2 吸收剂可选用任意类型,只要其对果蝇无毒性即可(例如, 氢氧化钾)。设置阴性对照至关重要,以确保该技术正确运行。最常见的问题是呼吸计未完全密封;若出现此情况,测量结果将与阴性对照相近。其他可能的问题还包括果蝇尚未从麻醉状态中充分恢复或已死亡。
本方案中最关键的步骤是呼吸计的构建。如上所述,呼吸计必须完全密封。将微移液管连接到较大的移...
访问受限。请登录或开始试用以查看此内容。
披露
我们没有需要披露的内容。
致谢
我们感谢马普学会对本研究的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| BlauBrand IntraMark 50 µl 微量移液器 | VWR | 612-1413 | |
| 钠石灰 | Wako | CDN6847 | |
| 伊红 | Sigma | 031M4359 | 任何能够使液体产生可见着色的染料均可使用 |
| 薄层色谱(TLC)展开室 | VWR | 21432-761 | 任何可加盖密封的透明玻璃容器均可使用 |
| 麻醉装置,Lull-A-Fly 套件 | Flinn | FB1438 | |
| Power Gel 胶水 | Pritt | ||
| 1 ml 移液器吸头 | 任意品牌 | ||
| 泡沫材料 | 任意类型 | ||
| 油灰状塑形黏土 | 任意品牌 | ||
| 手术刀 | 任意品牌 | ||
| 镊子 | 任意品牌 |
参考文献
- Van Voorhies, W. A., Khazaeli, A. A., Curtsinger, J. W. Testing the "rate of living" model: further evidence that longevity and metabolic rate are not inversely correlated in Drosophila melanogaster. J Appl Physiol. 97, 1915-1922 (2004).
- Ross, R. E. Age-specific decrease in aerobic efficiency associated with increase in oxygen free radical production in Drosophila melanogaster. Journal of Insect Physiology. 46, 1477-1480 (2000).
- van Voorhies, W. A., Khazaeli, A. A., Curtsinger, J. W. Selected contribution: long-lived Drosophila melanogaster. lines exhibit normal metabolic rates. J Appl Physiol. 95, 2605-2613 (2003).
- Hulbert, A. J., et al. Metabolic rate is not reduced by dietary-restriction or by lowered insulin/IGF-1 signalling and is not correlated with individual lifespan in Drosophila melanogaster. Experimental Gerontology. 39, 1137-1143 (2004).
- Ueno, T., Tomita, J., Kume, S., Kume, K. Dopamine modulates metabolic rate and temperature sensitivity in Drosophila melanogaster. PLoS ONE. 7, (2012).
- Takeuchi, K., et al. Changes in temperature preferences and energy homeostasis in dystroglycan mutants. Science. 323, 1740-1743 (2009).
- Kucherenko, M. M., Marrone, A. K., Rishko, V. M., Magliarelli Hde, F., Shcherbata, H. R. Stress and muscular dystrophy: a genetic screen for dystroglycan and dystrophin interactors in Drosophila. identifies cellular stress response components. Developmental Biology. 352, 228-242 (2011).
- Marrone, A. K., Kucherenko, M. M., Wiek, R., Gopfert, M. C., Shcherbata, H. R. Hyperthermic seizures and aberrant cellular homeostasis in Drosophila dystrophic. muscles. Scientific Reports. 1, 47 (2011).
- Khazaeli, A. A., Van Voorhies, W., Curtsinger, J. W. Longevity and metabolism in Drosophila melanogaster: genetic correlations between life span and age-specific metabolic rate in populations artificially selected for long life. Genetics. 169, 231-242 (2005).
- Elia, M. Energy equivalents of CO2 and their importance in assessing energy expenditure when using tracer techniques. The American Journal of Physiology. 260, (1991).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- Bharucha, K. N. The epicurean fly: using Drosophila melanogaster. to study metabolism. Pediatric Research. 65, 132-137 (2009).
- Rajan, A., Perrimon, N. Of flies and men: insights on organismal metabolism from fruit flies. BMC Biology. 11, 38 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
