本方案介绍了Lgr5阳性原代类器官的培养以及后续的逆转录病毒转导操作。该方法可实现由Cre诱导的外源转基因过表达或敲低,从而在新型模型中开展功能研究 体外 器官型 模型系统.
本文内容
摘要
摘要
Lgr5阳性干细胞可添加必需的生长因子Egf、Noggin和R-Spondin,从而支持不断扩增的原代三维上皮结构的培养 体外. 这些“迷你肠道”(也称为类器官)的结构和生理特性均与其 体内 对应物。这使得它们成为研究小肠上皮的理想模型系统。通过逆转录病毒转导,现在可实现条件性基因过表达或基因敲低,从而开展功能遗传学研究。本视频演示了类器官培养、逆转录病毒制备以及类器官的逆转录病毒转导操作流程,以辅助对小肠上皮的表型分析 体外这种新型的器官型模型系统结合逆转录病毒介导的基因表达,为基因功能的快速分析提供了有价值的工具 体外 无需耗费高昂成本且耗时的转基因动物制备过程。
引言
高通量功能遗传学对于增进我们对机体生物学的理解、提升当前基础科学与医学水平至关重要。小鼠遗传学一直是研究基因功能的金标准。 体内,尽管这种方法既耗时又昂贵。细胞系是另一种常见的选择,通量较高且成本较低。然而,由于细胞系无法重现适当的微环境,因而难以模拟出相应的生理反应 体内 因此,迫切需要一种易于操作的模型系统,该系统能够在模拟生理反应的同时,实现成本和时间高效的大规模高通量分析 体内 转基因(tg)小鼠实验。
对于内胚层上皮,一种这样的模型系统于2009年出现1在发现Lgr5阳性肠干细胞的过程中,人们获得了有关干细胞微环境的知识,即维持干细胞所必需的细胞外基质和生长因子。利用这些信息,人们得以成功建立“迷你肠道”结构,也称为类器官。2最近,一种共识性命名法 体外 培养物中,类器官被称为“肠类器官”(enteroids)3与细胞系类似,类器官可长期扩增,并易于用配体和抑制剂处理。然而,类器官并非二维结构,而是三维自组织结构,能够保留小肠(SI)的隐窝-绒毛结构以及干细胞和分化的细胞谱系。类器官由单层上皮细胞构成,围绕形成一个管腔区域。向外突出的芽状结构对应于含有干细胞区室的小肠隐窝。从芽状结构的顶端开始,前体细胞在向上皮层迁移的过程中逐步分化,终末分化的细胞最终脱落进入管腔。与细胞系相比,这种 离体 该系统更接近地模拟了正常的生理状态,因此是小肠上皮一种颇具前景的模型系统。
在本视频协议中,我们介绍了逆转录病毒转导的方法,该方法可在这种新型类器官培养系统中实现体外基因功能研究。我们首先逐步描述类器官的培养过程,接着演示 逆转录病毒的制备及转导操作流程。最后提供了一些关于问题排查的附加建议。该技术的一个优势在于,可与活细胞成像或药物筛选相结合,用于研究肠上皮中的稳态维持、细胞命运决定以及细胞间相互作用。由于类器官结构简单且更新速度快,是研究成体干细胞生物学的理想模型系统。此外,逆转录病毒转导还可应用于来自已建立的转基因小鼠以及人类患者样本的类器官。鉴于基因敲入和基因敲除技术难以在人类中应用,人类小肠类器官因此成为一种极具吸引力的替代方案。
总之,通过逆转录病毒转导进行基因操作,可对源自小鼠或人类组织样本的小肠类器官进行表型分析,从而补充了小鼠遗传学和细胞系研究,同时为人类来源组织的研究开辟了新途径。逆转录病毒转导可在类器官培养系统中实现基因的获得和缺失功能研究4。这使其成为研究基因功能、成体干细胞生物学及疾病的重要工具,同时也符合“3R原则”(减少、优化和替代)。
方案
本方案中使用的所有小鼠均饲养于特定病原体阴性环境中,所有操作均依照英国英国内政部法规进行。
1. 准备
- 使用前1小时准备培养基(详见表1和材料列表),并在使用前至少提前10分钟放入37 °C水浴中预热。
2. 小肠类器官的培养
注意:除非另有说明,所有孵育均在37 °C、5% CO2的湿化培养箱中进行。与活细胞接触的设备和试剂必须无菌。
预热组织培养板非常重要,可防止接种时基底膜基质(Matrigel 或 BME)液滴扩散。同时,基底膜基质应始终置于冰上。储存于 -20 °C,使用前在冰上解冻。
- 分离隐窝
- 为分离小肠,根据国家法规实施小鼠安乐死,然后将动物仰卧放置,并用70%乙醇清洗腹部。从腹股沟至胸骨做纵行正中切口。先切开皮肤,再切开皮下组织。从小肠盲肠端至胃端完整取出小肠。从十二指肠、空肠和回肠分离的隐窝均可用于类器官培养。
- 用预冷的无钙镁磷酸盐缓冲液(PBS0)清洗分离的小肠。
- 将组织切成3-5 cm长的小段,用剪刀纵向剪开,并用镊子将组织展开。
- 用盖玻片刮除绒毛。注意:用力过大会导致组织撕裂,从而减少后续步骤中隐窝的得率。
- 用镊子将组织转移至含有预冷PBS0的50 ml离心管中。通过剧烈振荡清洗组织碎片,并更换PBS0。重复2-3次 或直至PBS0变得不再浑浊。
- 将组织置于含30 ml PBS0和1 mM乙二胺四乙酸(EDTA)的50 ml离心管中,在4 °C下于旋转仪上孵育30分钟。
- 剧烈振荡离心管,然后将组织转移至另一含有30 ml PBS0和5 mM EDTA的50 ml离心管中。先前含有组织的1 mM EDTA溶液将含有隐窝和绒毛的混合物。该部分不适合用于类器官接种,因其通常含有较高比例的绒毛。
- 继续在4 °C下于旋转仪上孵育组织1小时。
- 剧烈振荡离心管,收集上清液至洁净的50 ml离心管中。通过显微镜检查确认隐窝的存在并估算其数量,例如,通过光学显微镜计数50 µl中的隐窝数量。计算获得50-100个隐窝所需的体积,并将其转移至1.5 ml离心管中。
- 在300 x g下离心5分钟。弃去上清液,将沉淀重悬于50 µl基底膜基质中,并接种至预温的24孔板中。将培养板置于组织培养孵箱中孵育5-15分钟,使基底膜基质聚合。
- 每孔加入500 µl ENR培养基(见表1)。接种后约24小时,类器官呈现小的圆形囊状结构,再经过2-3天后可见出芽样结构。每3天更换一次新鲜ENR培养基。
- 每7天传代一次类器官培养物。
- 类器官的传代与维持
- 每3天更换一次培养基以维持类器官生长,当腔内充满死亡细胞时(约每7天)按1:3或1:5比例进行传代。
- 用1 ml移液枪头吸取培养基破坏基底膜基质圆顶结构,并将其从孔中转移至1.5 ml离心管中。
- 使用细口径枪头(例如,200 µl)反复吹打约50次 ,以机械方式解离类器官。
- 在300 x g下离心5分钟。
- 弃去上清液,将沉淀重悬于150-250 µl基底膜基质中。接种至预温的24孔板中(每孔50 µl基底膜基质)。接种前,将基底膜基质缓慢吹吸一次,以使枪头内壁均匀涂布。缓慢移液以避免产生气泡,并将基底膜基质接种于孔中央,防止其扩散。理想情况下,应在孔中央形成一个基底膜基质圆顶结构。
- 置于组织培养孵箱中孵育5-15分钟,使基底膜基质聚合。每孔加入500 µl ENR培养基。
3. SI 类器官的感染前处理
注意:图1 展示了转导过程。
- 将培养基更换为ENRWntNic(见表1),并将类器官在此培养基中培养至少3天,或直至其呈现囊状形态。Wnt3a可增加干细胞和潘氏细胞的数量,而烟酰胺(Nic)可提高培养效率。
4. 病毒生产
- 每次感染需要一个 150 mm 的 Platinum-E 细胞培养皿。在含有嘌呤霉素(1 µg/ml)和杀稻瘟菌素(10 µg/ml)的 15–18 ml 培养基(DMEM + 10% FBS)中接种约 5 × 10⁶ 个细胞。待细胞培养 2–3 天并达到 70–80% 融合度时进行转染。转染前更换为不含嘌呤霉素和杀稻瘟菌素的 DMEM + 10% FBS 培养基。
- 将 30 µg 逆转录病毒 DNA 构建体和 240 µl 聚乙烯亚胺(PEI)分别加入含有 1 ml opti-MEM 的离心管中。混匀后室温孵育 5 分钟。
- 将两种溶液合并,室温孵育 20–30 分钟。将混合液加入 Platinum-E 细胞的培养基中,轻轻摇动培养皿以确保 DNA-PEI 复合物均匀分布。
- 将 Platinum-E 细胞与转染混合物共孵育过夜,次日更换新鲜培养基。将细胞在新培养基中继续培养 2 天。
- 收集培养上清液至 50 ml Falcon 管中,经 0.45 µm 滤器过滤后,在 4 °C 条件下以 8,000 × g 离心 12–16 小时。弃去上清液,将沉淀重悬于 250 µl 转导培养基中(见表 1)。
5. 类器官片段制备
- 一次感染需要使用24孔板中的一个孔。用1 ml移液器吸头将培养基推入基底膜基质穹顶使其破碎,然后转移至1.5 ml离心管中。
- 使用更精细的容积吸头(例如,200 µl吸头)通过反复吹打(30–50次)对类器官进行机械性解离。溶液将变得浑浊,不应再有完整的类器官可见。
- 室温下以900 × g离心5分钟。
- 弃去上清液,将沉淀重悬于500 µl细胞培养级重组蛋白酶中例如,TrypLE)。在37 °C下孵育5分钟。孵育后,使用光学显微镜检查类器官片段的大小,并计数每个片段中的细胞数量。含有5-10个细胞的片段最为理想。如果大多数片段所含细胞数量较多,可每次增加2分钟孵育时间。
- 通过加入 500 µl ENR 培养基终止消化过程。
- 室温下以 900 × g 离心 5 分钟。弃上清,将沉淀置于冰上或 4 °C 保存。
6. 逆转录病毒转导
- 在48孔板的一个孔中,将类器官碎片与250 µl逆转录病毒溶液(来自第4.5节)混合。使用1 ml移液枪头缓慢吹打,轻轻混匀。
- 用Parafilm密封板子。
7. 离心接种与铺板
- 将培养板在 32 °C、600 × g 条件下离心 1 小时。小心移除封口膜,然后将培养板置于组织培养孵箱中孵育 6 小时。
8. 接种感染的类器官片段
- 将感染的类器官片段和转导培养基从孔中转移至1.5 ml离心管中,在900 × g下离心5分钟。
- 弃去上清液,将含有沉淀的离心管置于冰上冷却5分钟。加入100 µl基底膜基质,通过缓慢吹打重悬沉淀。
- 在新的24孔板中接种每滴50 µl的“基底膜基质-细胞混合液”。将培养板置于37 °C孵育5–15分钟,直至基底膜基质凝固。
- 向各孔中加入不含polybrene的转导培养基,并将培养板放入组织培养孵箱中孵育。每2–3天更换一次培养基。
9. 筛选
- 转导后 2-3 天开始加入嘌呤霉素(1 µg/ml)进行筛选。
- 当类器官片段开始形成类器官时,将转导培养基更换为添加嘌呤霉素(1 µg/ml)的 ENR 培养基。
10. SI 类器官感染后的处理
- 根据“类器官的传代与维持”方案(第2.2.1节)培养经转导的类器官。1至2周后,小肠类器官将重新形成出芽结构。
- 在出现出芽结构后,通过添加4-羟基他莫昔芬(4-OHT)至终浓度1 µM,诱导miRNA或cDNA的表达。请注意,此步骤仅适用于使用Addgene提供的逆转录病毒载体(pMSCV-loxp-dsRed-loxp-eGFP-Puro-WPRE(32702)、pMSCV-loxp-dsRed-loxp-3xHA-Puro-WPRE(32703)和pMSCV-FLIP-puro-dsRed-GFP-miRNA(32704))且表达Cre-ERT2的类器官。
11. 感染确认及目的基因的表达/抑制验证
- 若使用来自 Addgene 的逆转录病毒载体(32702、32703 和 32704),可通过观察 dsRed 表达来确认转导效率。此外,目的基因的表达或抑制可通过 Western Blot 检测 GFP 或 3xHA 表位(用于基因过表达)以及通过 qPCR(用于基因敲低)进行验证,如 Koo et al4 所示。
结果
当类器官中央腔因存在死亡细胞而变暗时,即可进行传代(图2)。经过2-3天的预处理后,类器官应呈现圆形囊状形态(图3),此形态可增加干细胞数量,从而提高获得稳定整合的几率。病毒上清液离心后所得病毒沉淀的大小可能有所差异,这很可能与不同量的细胞碎片进入沉淀有关。目前未观察到沉淀大小与转导效率之间存在明确相关性。在筛选过程中,未转导的类器官将死亡,而成功实现稳定整合的类器官则会存活。在转导后2-3天内,可在源自存活类器官的细胞中观察到MSCV-eGFP逆转录病毒表达的荧光蛋白,这些细胞具有囊状形态(图4)。

图 1. 逆转录病毒转导流程示意图。 在感染前,类器官需使用 ENRWntNic 预处理,直至其形成囊状结构(步骤 1)。Platinum-E 细胞作为包装细胞系,培养至汇合度达 70–80% 后,使用 PEI 转染逆转录病毒载体。两天后收集病毒(步骤 2)。类器官经胰酶消化,获得含 1–10 个细胞的片段(步骤 3),随后进行感染(步骤 4)。通过离心感染(spinoculation)以提高感染效率(步骤 5),将感染后的类器官片段接种培养(步骤 6),2–3 天后可对稳定整合的阳性克隆进行筛选(步骤 7)。

图 2. 器官样体培养 4–6 天后的代表性图像。 腔内充满死亡细胞,因而呈现暗色。此阶段的器官样体已可进行传代。
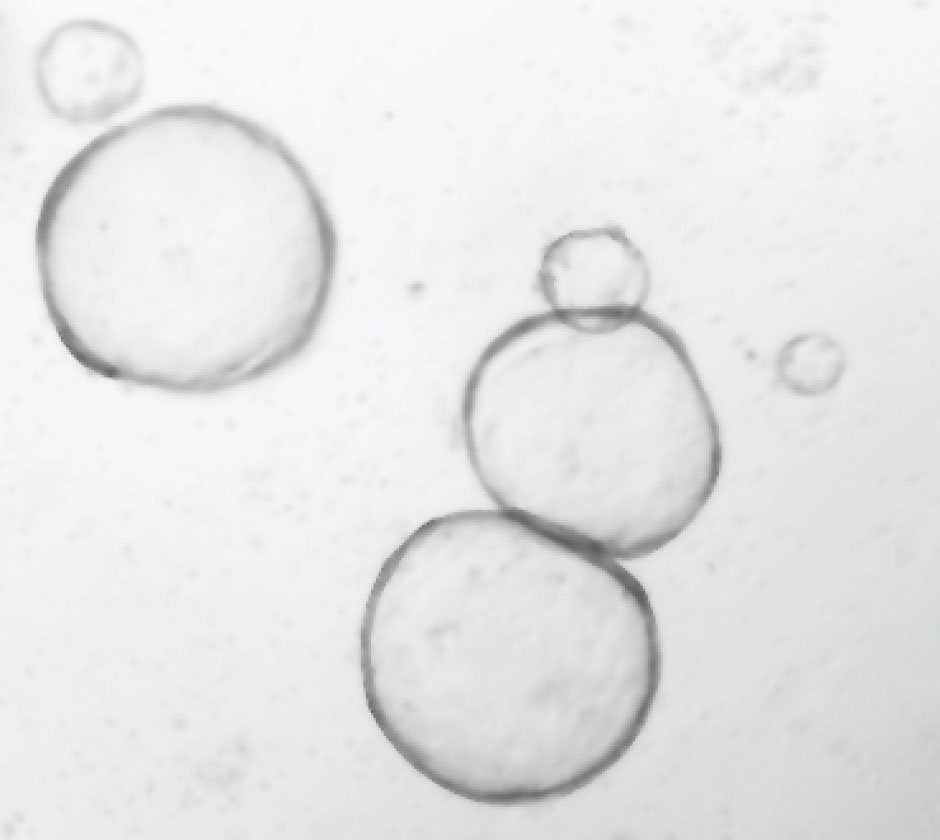
图3. 小肠类器官在ENRWntNic培养基中培养3-4天的代表性图像。 类器官呈现囊状形态。
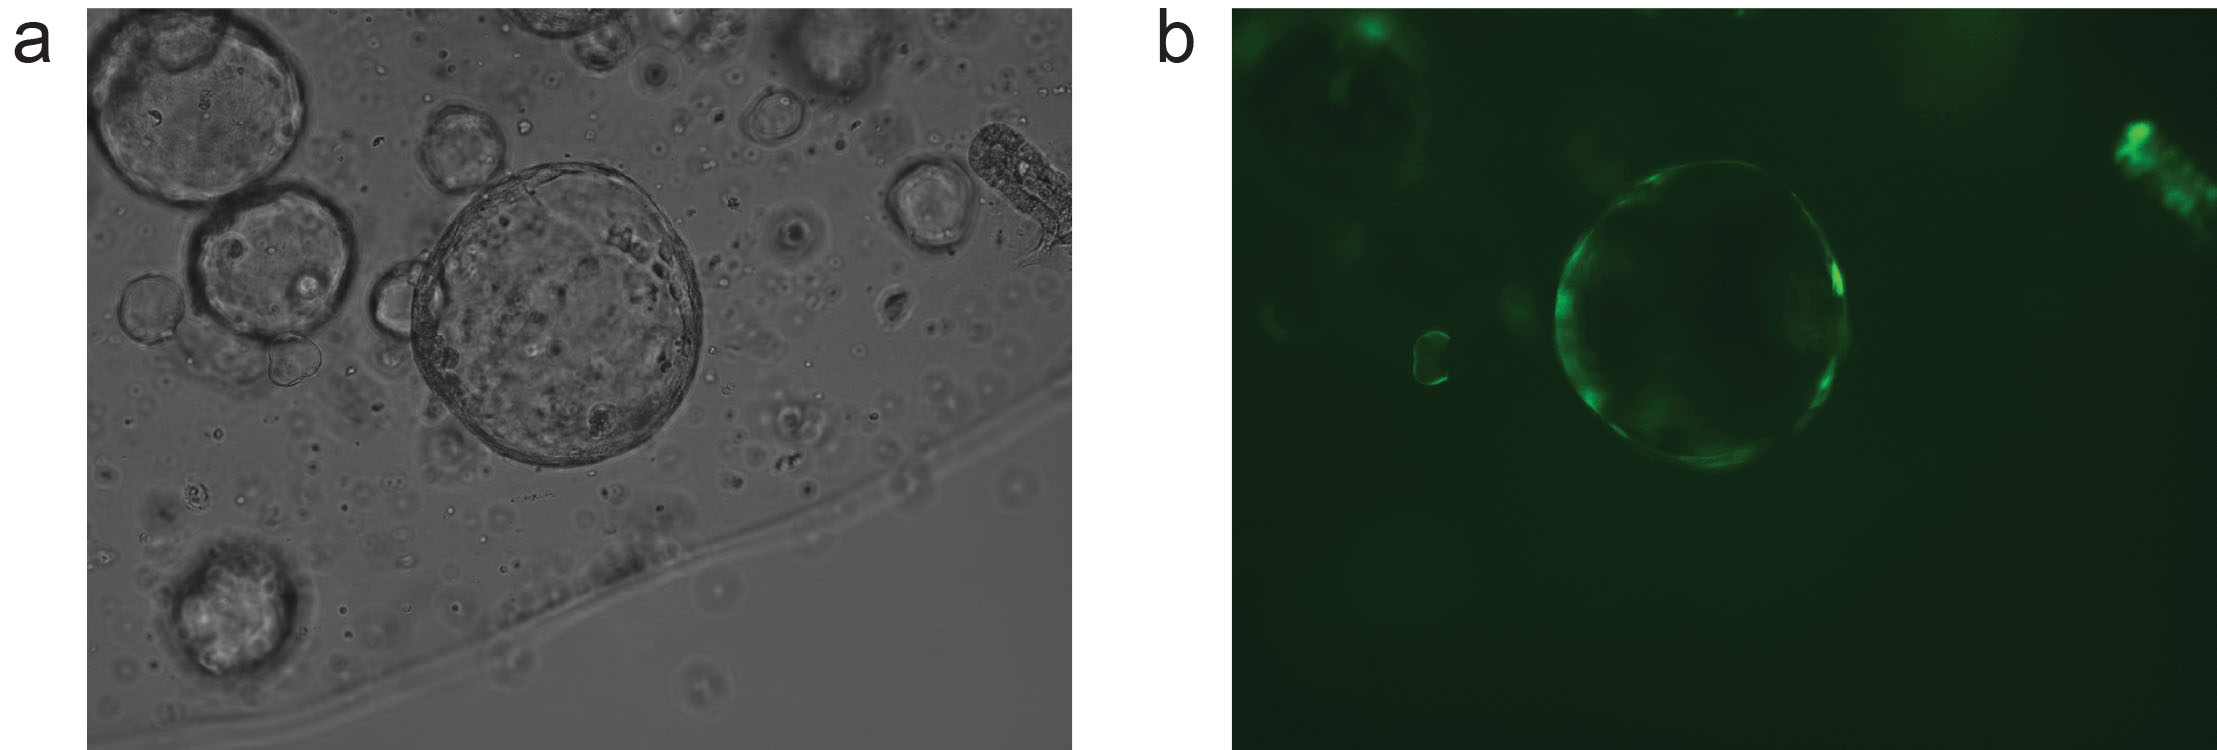
图 4. 小肠类器官的代表性图像(a),显示病毒转基因表达(b,eGFP)。
| Advanced DMEM/F12 +++ | |
| 4 °C 下保存 4 周 | |
| Advanced DMEM/F12 | 500 ml |
| Glutamax 100x | 5 ml |
| Hepes 1 M | 5 ml |
| Antibiotics 100x | 5 ml |
| ENRWntNic 培养基(配制 20 ml) | |
| 4 °C 下保存 2 周 | |
| Advanced DMEM/F12 +++ | 7.2 ml |
| B27 补充剂(50x) | 400 µl |
| N2 补充剂(100x) | 200 µl |
| n-乙酰半胱氨酸(500 mM) | 50 µl |
| 小鼠 EGF(500 µg/ml) | 2 µl |
| 小鼠 Noggin(100 µg/ml) | 20 µl |
| R-Spondin 条件培养基 | 2 ml |
| Wnt3a 条件培养基 | 10 ml |
| 烟酰胺(1 M) | 200 µl |
| 转导培养基(配制 20 ml) | |
| 现配现用 | |
| ENRWntNic 培养基 | 20 ml |
| Y-27632(10 µM) | 20 µl |
| Polybrene(8 µg/ml) | 20 µl |
| ENR 培养基(配制 20 ml) | |
| 4 °C 下保存 4 周 | |
| Advanced DMEM/F12 +++ | 17.4 ml |
| B27 补充剂(50x) | 400 µl |
| N2 补充剂(100x) | 200 µl |
| n-乙酰半胱氨酸(500 mM) | 50 µl |
| 小鼠 EGF(500 µg/ml) | 2 µl |
| 小鼠 Noggin(100 µg/ml) | 20 µl |
| R-Spondin 条件培养基 | 2 ml |
| Platinum-E 细胞培养基(配制 500 ml) | |
| 4 °C 下保存 12 周 | |
| DMEM | 449.45 ml |
| 胎牛血清(FBS) | 50 ml |
| Puromycin(1 μg/ml) | 50 µl |
| Blasticidin(10 μg/ml) | 500 µl |
表1. Advanced DMEM/F12 +++, ENRWntNic 培养基、转导培养基、ENR 培养基以及 Platinum-E 细胞培养基的成分组成。
讨论
为实现高效的转导,某些因素至关重要。其一是使用 ENRWntNic 培养基对类器官进行预处理,直至其呈现圆形囊状结构。这能够增加干细胞数量,从而提高外源基因稳定整合的可能性,同时提升小肠类器官在转导过程中的存活率。另一个关键参数是自旋感染(spinoculation)后的孵育时间。孵育时间过短或过长将分别导致转导效率低下和类器官存活率下降。自旋感染步骤虽非必需,但可显著提高被转导类器官的比例。最后,高滴度病毒是成功转导的关键。病毒滴度取决于包装细胞系和病毒类型。研究发现,Platinum-E 细胞系与小鼠干细胞病毒(murine stem cell virus, MSCV)的组合可产生足以用于类器官转导的高滴度病毒。
以下是一些故障排除建议,可能有助于实现成功的转导。首先,若包装细胞系的转染效果不佳,请确保细胞融合度在70–80%之间,并且PEI-DNA混合物的孵育时间为20–30分钟。类器官在转导过程中的存活率在很大程度上取决于片段大小。过度的胰蛋白酶消化会导致大多数片段包含少于3个细胞,从而降低类器官的存活率。另一个因素是Wnt条件培养基的活性,如果活性过低,可通过添加终浓度为5 μM的CHIR99021来增强其活性,从而提高存活率。CHIR99021可抑制GSK3,进而增强Wnt信号通路。此外,由于类器官在转导前会被解离为含有1–10个细胞的片段,因此在转导培养基中添加可防止失巢凋亡的Y-27362,以提高类器官的存活率。 如上所述,离心接种后的孵育时间不应超过6小时。最后,如果观察到转导效率较低,应考虑前述影响病毒滴度的因素以及逆转录病毒载体对插入片段大小的限制。基因敲低的效率在很大程度上取决于miRNA。由于不同靶基因与miRNA组合的效率存在差异,建议进行效率筛选,以确定效果最佳的组合。
该技术目前仅限于类器官系统的上皮现象研究。未来,或许可以通过病原体共培养或利用免疫系统来源的组分进行重建,分别研究感染性疾病或免疫介导的疾病。此外,逆转录病毒只能携带相对较小片段的插入序列,因此必须排除天然存在的调控区域,导致转基因的表达无法模拟内源基因的表达模式。如上所述,基因敲低效率取决于靶基因和miRNA。如果无法找到具有合适敲低效率的miRNA,则可能限制该技术在特定靶基因上的应用。
理论上,类器官适用于所有用于细胞系的标准操作技术。逆转录病毒转导是首个被报道的方法4,最近细菌人工染色体(BAC)转基因技术已可应用5总生成时间为2-3周,在将病毒质粒转染至包装细胞系后,其速度明显快于转基因(tg)小鼠的制备。通过维持 体内 在包含干细胞及肠上皮所有分化细胞谱系的同时,模拟隐窝-绒毛结构的类器官培养系统,填补了转基因动物模型与既往细胞培养之间的空白。
此处所述方案提供了一种对内胚层上皮进行表型分析的方法 体外 通过功能获得和功能缺失研究,可在成体干细胞生物学中探讨具有生理相关性的问题,同时对转基因小鼠的需求降至最低。例如,可利用围产期致死性突变小鼠的新生个体来源类器官,避免构建条件性基因敲除小鼠6此外,该技术还可应用于先前建立的基因敲除小鼠所衍生的类器官,通过进一步敲低来研究旁系同源基因的功能。7,8.
在建立小肠类器官后,通过对原始培养方案进行改进,现已能够培养胰腺、肝脏、结肠和胃上皮类器官9-11。此外,已从正常人活检组织、原发性腺瘤以及结直肠癌活检样本中成功获得人类肠道类器官和肿瘤类器官10。该病毒感染方案可轻松扩展至这些类型的类器官,为在人源组织中开展功能研究提供了前所未有的途径。
综上所述,逆转录病毒转导小肠类器官是研究干细胞维持、分化与细胞命运决定,以及细胞信号传导和细胞间相互作用的宝贵资源。
披露
作者无任何利益冲突需要披露。作者声明无任何利益冲突。
致谢
Koo BK 和 Mustata RC 获得惠康信托基金会(Wellcome Trust)的西尔·亨利·戴尔研究员项目资助,Andersson-Rolf A 获得英国医学研究理事会(MRC)资助。Fink J 获得惠康信托基金会四年制博士项目资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 高级DMEM/F12 | Invitrogen | 12634-034 | |
| Glutamax 100倍 | Invitrogen | 35050-068 | |
| HEPES 1 M | Invitrogen | 15630-056 | |
| 青霉素-链霉素 100倍 | Invitrogen | 15140-122 | |
| B27添加剂 50倍 | Invitrogen | 17504-044 | |
| N2添加剂 100倍 | Invitrogen | 17502-048 | |
| N-乙酰半胱氨酸 500 mM | Sigma-Aldrich | A9165-5G | |
| 小鼠EGF 500 µg/ml | Invitrogen Biosource | PMG8043 | |
| 小鼠Noggin 100 µg/ml | Peprotech | 250-38 | |
| R-Spondin条件培养基 | 条件培养基由HEK293细胞产生,具体细节参见Sato和Clevers 2013年研究。 | ||
| Wnt条件培养基 | 条件培养基由L细胞产生,具体细节参见Sato和Clevers 2013年研究。 | ||
| 烟酰胺 1 M | Sigma | N0636 | |
| Y-27632 10 µM | Sigma | Y0503-1MG | |
| Polybrene(8 µg/ml) | Sigma | H9268-5G | |
| 标准BD Matrigel基质 | BD Biosciences | 356231 | 基底膜基质提取物(Cultrex PathClear BME低生长因子型2,3533-005-02) 可由AMSBIO提供作为替代品。 |
| 24孔板 | Greiner Bio One | 662960 | |
| 48孔板 | Greiner Bio One | 677980 | |
| CHIR99021 | Sigma | A3734-1MG | |
| Platinum-E细胞 | Cell Biolabs | RV-102 | |
| 嘌呤霉素 | Invitrogen | A1113802 | |
| 杀稻瘟菌素 | Invitrogen | A1113902 | |
| 聚乙烯亚胺(PEI) | Polysciences | 23966 | |
| opti-MEM | Life Technologies | 51985-034 | |
| TrypLE | Invitrogen | 12605-010 | |
| Parafilm封口膜 | Sigma | P7793-1EA | |
| 4-OHT | Sigma | H7904 |
参考文献
- Sato, T., et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459, 262-265 (2009).
- Sato, T., Clevers, H. Growing self-organizing mini-guts from a single intestinal stem cell: mechanism and applications. Science. 340, 1190-1194 (2013).
- Stelzner, M., et al. A nomenclature for intestinal in vitro cultures. American journal of physiology. Gastrointestinal and liver physiology. 302, G1359-G1363 (2012).
- Koo, B. K., et al. Controlled gene expression in primary Lgr5 organoid cultures. Nature. 9, 81-83 (2012).
- Schwank, G., Andersson-Rolf, A., Koo, B. K., Sasaki, N., Clevers, H. Generation of BAC Transgenic Epithelial Organoids. PloS one. 8, e76871(2013).
- Mustata, R. C., et al. Lgr4 is required for Paneth cell differentiation and maintenance of intestinal stem cells ex vivo. EMBO reports. 12, 558-564 (2011).
- Lau, W., et al. Lgr5 homologues associate with Wnt receptors and mediate R-spondin signalling. Nature. 476, 293-297 (2011).
- Koo, B. K., et al. Tumour suppressor RNF43 is a stem-cell E3 ligase that induces endocytosis of Wnt receptors. Nature. 488, 665-669 (2012).
- Huch, M., et al. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. The EMBO journal. 32, 2708-2721 (2013).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141, 1762-1772 (2011).
- Huch, M., et al. In vitro expansion of single Lgr5+ liver stem cells induced by Wnt-driven regeneration. Nature. 494, 247-250 (2013).
重印与许可
