在心肌细胞中,管状膜结构形成细胞内网络。本文描述了以下优化方案:i)从小鼠心脏分离心肌细胞(包括质量控制),ii)用于先进荧光显微镜成像的活细胞染色,以及 iii)直接图像分析,以量化细胞内膜网络的组分复杂性与可塑性。
本文内容
摘要
摘要
在心肌细胞中,复杂的膜小管网络——即横轴小管系统(TATS)——调控着深层细胞内的信号传导功能。尽管细胞外表面膜及其相关的TATS膜组分在形态上看似连续,但它们在脂质和蛋白质组成上存在显著差异。在心室肌细胞(VMs)中,某些TATS组分含量丰富,有助于形成规则的直线状小管网络及有序分支的三维结构。目前认为,外周TATS组分可将动作电位从细胞表面传导至数千个远端的肌浆内质网(SER)膜接触区域,从而激活细胞内Ca2+释放单位(CRUs)。与心室肌细胞不同,心房肌细胞(AMs)中TATS膜的组织结构和功能作用存在显著差异,且目前了解甚少。综上所述,对健康与病变心肌细胞中TATS膜网络进行定量结构表征,是深入理解其功能可塑性及病理生理重构的必要前提。本文介绍了一套策略性组合方案,可用于对活体心室肌细胞和心房肌细胞中的TATS膜网络进行直接定量分析。为此,我们在分离小鼠心室肌细胞和/或心房肌细胞的原代细胞后,结合关键的质量控制步骤,并采用直接膜染色方法,对TATS膜进行荧光成像。通过优化共聚焦或超分辨率TATS图像处理流程,生成二值化和骨架化数据,用于对TATS网络及其组分的定量分析。与以往发表的间接区域聚合图像分析策略不同,本方案能够直接表征特定组分,并利用高通量及开源软件工具,解析活体心肌细胞中TATS膜网络的复杂生理特性。总之,该组合方案可广泛应用于生理条件下心肌细胞适应过程或疾病状态变化中的TATS网络定量研究、不同类型心肌或骨骼肌细胞的比较、转基因模型的表型分析,以及药理学或治疗干预研究。
引言
在健康的横纹肌细胞中,存在大量与细胞主轴垂直的、具有“横向”走向的管状膜结构(T小管)。因此,T小管被认为是肌细胞主要“侧向”表面膜(肌膜)的连续延伸,深入细胞质并朝向细胞中心。T小管与细胞外表面膜连续的生理作用在于,通过电压门控L型Ca2+通道(Cav1.2)内向电流 (ICa) 与邻近兰尼碱受体(RyR2)介导的肌浆网(SER)Ca2+释放之间在纳米级距离上的紧密耦合,实现由SER细胞器接触区域在整个相对较大的心肌细胞体积内形成的远端细胞内区室之间的快速电耦合。在心室肌细胞(VMs)中,连接型SER区域与T小管之间的非连续性膜接触(“连接结构”)被认为可调控每个细胞中成千上万个独立的细胞内Ca2+释放纳米结构域1。
对于任意给定的接触结构域,横管(T-tubule)与周围(连接性)肌浆网(SER)的相邻膜区域彼此相距约15 nm,因此被称为纳米结构域。这种结构分隔出非常微小的独立胞质亚空间,使其能够实现准细胞自主性的区室行为。当传入的动作电位激活心肌细胞(VMs)横管中的Cav1.2通道时,相对较小的Ca2+内向电流会迅速提高阿托升(attoliter)体积级纳米结构域中的亚空间Ca2+浓度[Ca2+]S1。随后,[Ca2+]S的升高会激活邻近SER膜连接区中纳米距离范围内的Ca2+门控兰尼碱受体(RyR2),该耦联过程在整个电耦联的心肌细胞纳米结构域中广泛发生。RyR2以密集的多通道簇形式存在,其化学计量比约为每1个Cav1.2通道对应5–10个RyR2通道2。由于肌浆网与胞质之间的[Ca2+]梯度极为陡峭(比例达104:1),且RyR2在功能耦联的簇中作为高导通性的Ca2+释放通道发挥作用,因此RyR2的激活可导致大量Ca2+从与横管相连的连接性肌浆网结构域中释放,在1–2毫秒内使局部亚空间[Ca2+]S升高至100 µM或更高3,4。这种心脏信号放大现象也被称为Ca2+诱导的Ca2+释放(CICR)。综上所述,横管是至关重要的膜结构,在兴奋-收缩(EC)耦联过程中,通过与连接性纳米结构域肌浆网的接触,快速触发Ca2+释放信号及全细胞范围的CICR。
除了横管(T-tubules)外,电子显微镜(EM)、共聚焦显微镜和双光子显微镜研究还记录到一种轴向小管(A-tubules),其走向明显不同,与细胞主轴(纵向)平行。例如,通过细胞外示踪剂和固定豚鼠心室肌细胞(VMs)的EM成像,发现肌原纤维之间存在一个贯穿全细胞的连续A-tubules晶格结构,并在肌节Z线附近与T-tubules相互连接5。利用细胞外葡聚糖连接荧光素染色及大鼠心室肌细胞的活体双光子成像,观察到一个复杂的网状三维小管网络,其中约60%为T-tubules,约40%为A-tubules6。该研究不仅实现了对大量A-tubules的三维可视化,还揭示了在分析诸如横轴向小管系统(TATS)这类复杂且动态的膜网络时,用于EM观察的切片方法本身存在局限性。因此,发展了使用di-8-ANNEPS直接染色TATS膜并进行活细胞共聚焦成像的技术。若对活细胞TATS网络进行傅里叶变换分析,则可通过条纹信号区域的集合功率谱反映出T-tubules组分在空间上、靠近肌节Z线处的规律排列特征7。这种间接分析策略已被用于检测疾病模型中心肌细胞全范围内TATS组分规律性的区域性变化7。例如,通过shRNA介导的junctophilin-2敲低导致心力衰竭,且该亚型特异性蛋白缺乏引起T-tubules重组,并伴随纳米结构域Ca2+释放功能障碍8。我们最近进一步拓展了对TATS膜网络的分析,采用直接定量方法,并结合使用受激发射损耗(STED)纳米显微镜对小鼠心室肌细胞中单个TATS组分进行活细胞超分辨率成像9。纳米级图像分辨率使得能够直接分析更小的单个TATS组分,其横向与轴向小管取向的比例约为50:50,从而在定量上证实健康小鼠心脏中存在两种丰富但取向不同的单个TATS组分9。这些策略将在下文的实验方案部分进一步阐述。
尽管成年心脏中丰富的A小管组分的生理作用仍不明确,但电镜研究已记录到与A小管相关的肌浆网膜结构,提示其可能存在内源性Ca2+ 豚鼠和大鼠VMs中的释放纳米结构域5,10Cav1.2与RyR2在A小管连接处的共定位具有高度重叠,经共聚焦分析发现10由于约20%的自发性Ca2+ 大鼠心室肌细胞中的钙火花起源于距离Z线纹较远的位置,而T小管通常位于Z线附近,因此有观点认为,A小管相关的纳米结构域可能确实存在,并可作为钙信号功能单位2+ 释放位点11,12有趣的是,T小管的形成与成熟仅在出生后发生,并且与心肌细胞的生长同步进行。 例如通过小鼠出生后第5天(P5)前体肌膜内陷的出芽,以及出生后第10天(P10)不成熟的分支TATS网络组装13Junctophilin-2 似乎对出生后TATS网络的成熟尤为重要,因为shRNA敲低会阻止T小管膜与肌浆网连接处的锚定,从而导致钙信号延迟2+ 释放及病理性TATS结构,符合以未成熟A型小管为主的心室肌细胞架构13这些观察结果最终可能证明,T小管通过膜内陷过程形成,而A小管则可能通过其他甚至不同的细胞内机制成形。14.
在心脏病理生理学研究中,对TATS膜结构改变的表征已成为一个重要研究领域。最初在 pacing 诱导的心力衰竭犬模型中的报告表明,T小管和Cav1.2电流(ICa)出现丢失15。在缺血性心肌病猪模型中,观察到T小管密度降低以及细胞内Ca2+释放同步性下降16。利用自发性高血压大鼠(SHR)心力衰竭模型,发现T小管丢失与Cav1.2和RyR2之间的纳米结构域耦合减弱相关,其提出机制为“RyR2失偶联”7。在来自缺血性、扩张型和肥厚型心肌病患者的心室肌细胞(VMs)中也观察到了T小管的丢失17。此外,在人类扩张型心肌病组织切片中报道了A小管的增加18。在心肌梗死后,我们在小鼠心室肌细胞中发现TATS重构存在差异性机制,表现为T小管显著减少,而A小管组分则增加9。重要的是,通过活细胞超分辨率STED显微镜实现的局部膜对比度提升,使得可通过直接测量进行详细的定量组分分析,结果显示A小管显著增殖,TATS网络总长度及分支复杂性均增加9。此外,已有研究表明,运动训练可逆转心肌梗死后大鼠的T小管重构19,而心脏再同步化治疗可能逆转房性快速起搏诱导心力衰竭犬的T小管重构20。综上所述,无论是在患病的人类及动物心室肌细胞中的研究,还是潜在治疗干预的探索,均将得益于高质量的细胞分离流程以及如下文方案与结果部分所述的详细定量分析策略。
此外,最近关于KATP通道亚型在侧膜与TATS膜之间转运的研究表明21,应将心房肌细胞(AMs)视为在生物学上具有显著差异的细胞类型,并将其作为与心室肌细胞(VMs)相比较的心脏细胞模型。近期已有研究记录到绵羊和人类AMs中存在T小管结构22。目前的证据表明,AM细胞中T小管数量较少,通常仅存在于绵羊和人类等较大哺乳动物中,而不存在于小鼠等小型啮齿类动物中23。与VMs不同,AMs中的细胞内Ca2+释放主要起始于细胞表面,并通过扩散向细胞中心传播,从而形成显著的空间和时间上的Ca2+梯度23。在此背景下,阐明诸如心房颤动等常见疾病状态下细胞内Ca2+信号不稳定机制显得尤为重要24。总之,健康与病变心脏的AM和VM细胞分离均为常用的实验方法。只有当细胞分离质量经显微镜评估达到足够标准时,AM和VM样本才可用于定量TATS分析。因此,以下各实验步骤均依赖于从小鼠或其他物种获得的高质量细胞样本,并通过活细胞显微镜观察来分析完整的TATS膜结构。如前所述,TATS膜的表征是一个具有挑战性的研究领域,容易受到固定和制备过程中的人工假象6、渗透压改变引起的膜结构变化,以及传统光学显微镜分辨率限制的影响9。我们注意到,本期刊此前已发表过关于人AMs用于Ca2+成像和膜片钳实验以及大鼠VMs用于细胞培养的最新标准分离方案25,26。
方案
注意:所有动物实验程序均经哥廷根大学医学中心机构动物护理和使用委员会审查并批准,符合实验动物的人道护理和使用规范。
1. 小鼠心脏心房和心室肌细胞的分离
- 尽可能轻柔地处理动物,并遵循批准的实验方案,以最大限度地减少动物应激,特别是避免神经激素过度释放对分离的心脏细胞产生潜在的显著不良影响。此外,在小鼠心脏提取前至少20分钟,每只小鼠皮下注射肝素(500 IU/kg体重),以防止血液凝固和微小栓塞,这些因素可能在细胞分离过程中显著影响心脏细胞的得率和完整性。
- 通过吸入异氟烷对12周龄或以上的小鼠进行麻醉,确认其无痛觉退缩反射后,采用颈椎脱位法处死动物。
- 按照先前已建立的专家方案迅速取出心脏(例如,参见 Kaestner 等.26 和 Louch 等.27)。避免因不必要的挤压或拉伸而对心房造成意外损伤。
- 使用一对残端钳和直剪刀仔细保护升主动脉近端的组织,沿主动脉管壁建立连续的横向切口边缘,这对于成功插管和心脏灌注至关重要。
- 将切除的心脏立即放入冰浴的无钙任氏液中2+ 游离灌注缓冲液(溶液配制见 表1转移心脏时,需保持大血管处于夹闭状态,避免在空气中转移至缓冲液过程中意外发生空气栓塞,直至心脏完全浸入液面下。缓冲液中应加入BDM,并使用冰浴冷却的溶液以抑制心脏收缩。
- 使用具有充足三维照明的双目变焦显微镜。
- 在心脏的全景立体视觉下,使用一根表面光滑且经过抛光处理的21 G套管(外径0.81 mm;适用于正常小鼠心脏重量)插管主动脉,套管必须完全充满缓冲液。通过连接近端溶液储液器,确保套管内无气泡例如,通过一个双向鲁尔阀的注射器,可实现快速溶液流速控制。
- 在双目放大镜下确认套管正确置于主动脉内,位置约在主动脉瓣和冠状动脉分支上方1 mm处。必须避免套管穿过或意外穿破主动脉瓣(这将永久性破坏主动脉瓣的闭合功能,进而影响心脏灌注)。
- 用两根丝线将主动脉轻轻结扎在导管末端附近自制的环形防滑凹槽上。在任何步骤中均不得用力冲洗冠状动脉。将装有灌注液且已与主动脉结扎的导管和心脏连接至定制并预先校准的灌注系统(即改良的Langendorff装置)的紧密贴合式流出端接头(可采用恒定压力或恒定流量模式;详见下文讨论部分)。
- 尽快用37 °C的含氧灌注缓冲液对心脏进行灌注,持续4分钟(目标灌注速率为4 ml/min)。随后切换至含有胶原酶的消化缓冲液(II型胶原酶,600 U/ml),在37 °C下继续灌注8–10分钟以启动消化过程。通过观察心脏表面组织的宏观变化(如透明度降低、质地变软和松弛)来监测组织消化的进展。
- 根据消化情况,必要时解剖心脏各腔室。将插管的心脏置于体视显微镜下,观察心脏后壁,剔除残留的非心脏组织。 例如,肺和血管部分,以避免在消化缓冲液中使用微型剪刀造成细胞污染(例如,8 mm直刃弹簧剪)如图所示 图1.
- 遵循检查清单,确定应从经胶原酶消化的心脏中收获哪些特定的心腔、区域和/或细胞图1左心房和/或右心房、游离左心室壁和/或右心室壁,和/或室间隔。
- 用于特定心脏组织的解剖时,使用一个相对较宽且平坦的解剖浴槽,其内表面覆盖一层数毫米厚的硅胶弹性体。用细的不锈钢昆虫针将心脏心尖固定在底部的弹性体层上。
- 将右心耳牵开,在房室瓣上方解剖右心房。随后继续解剖左心房。解剖并去除纤维性瓣膜结构。最后根据需要解剖左、右心室游离壁及室间隔和/或较小的组织部分。
- 仅限受训人员:为获得操作经验,可先使用未消化的小鼠心脏进行练习。为便于解剖定位,应在双目显微镜下练习组织操作,包括如图所示的所有连续解剖步骤 图1一旦熟悉了三维解剖结构、在双目视觉下的手动操作以及解剖步骤,即可按照上述方法继续进行胶原酶消化的小鼠心脏实验。
- 用于心室肌细胞(VM)分离:将心室组织转移至 2.5 ml 新鲜消化缓冲液中。若同时从多个器官部位进行细胞分离, 例如,尝试分离心房和心室时,可由第二人接手细胞解离步骤中的一部分操作,以便通过协调处理多个心脏组织来最小化并优化小鼠的使用。继续进行步骤1.9.1–1.9.4,随后执行步骤1.10。
- 解剖整个心室组织或其特定部分(例如,左心室、右心室、游离壁和/或室间隔)切成约1 mm3 用锋利的剪刀将组织剪成 2.5 ml 消化缓冲液中的小块例如,8毫米直刃弹簧剪)置于60毫米培养皿中。
- 使用移液管缓慢吹打组织块,将腹侧中脑组织(VMs)轻柔地解离成单细胞悬液。避免细胞悬液中产生气泡。
- 向VM细胞悬液中加入8 ml终止缓冲液,并将细胞悬液转移至15 ml锥形管中。静置约15秒,使较大的组织碎片沉降至管底,但时间不宜过长,以确保分离的细胞仍保持悬浮状态。随后,将上清液转移至新的15 ml离心管中,从而收集VM细胞悬液。若存在过多组织碎片,可改用孔径不小于200 µm的尼龙筛网,将组织碎片与细胞悬液分离。
- 让VM细胞悬液在15 ml锥形管中依靠重力沉降到管底,静置8 min。
- 洗涤步骤:移除上清液,并将剩余的VM沉淀物在10 ml灌注缓冲液中轻轻重悬。重复步骤1.9.5(可选:增加额外的洗涤步骤,以逐步提高Ca2+ 根据需要调整浓度。
- 将沉淀的中脑腹侧区(VM)细胞团块重悬于10 ml灌流缓冲液中,并将剩余的细胞悬液分装至1.5 ml微量离心管中(每管约含50,000个VM细胞)。
- 对于心房肌细胞(AM)的分离:将消化/解离后的心房组织转移至1 ml新鲜消化缓冲液中。
- 将部分消化的心房组织切成约1 mm大小3 在小型培养皿中,使用显微剪将组织剪成小块,每块加入1 ml消化缓冲液(例如,直径60 mm)。使用剪去尖端的1 ml塑料移液枪头,通过吹打将消化后的组织块中的羊膜细胞轻柔地解离成单细胞悬液,以避免产生损伤性液流。吹打过程中严格避免细胞悬液中出现气泡。机械振荡后,加入4 ml终止缓冲液(50 µM CaCl₂)2;10% BCS)以终止细胞悬液中残余的胶原酶活性。
- 将AM细胞悬液转移至15 ml锥形管中。静置约15秒,使剩余的组织碎片沉降至管底,但时间不宜过长,以确保已分离的细胞仍保持悬浮状态。通过液体转移,收集含有游离AM细胞的上清液至新的15 ml离心管中。
- 离心AM细胞悬液, 例如,室温下20 × g离心2分钟;或对于膜研究更优的方法是:将细胞置于15 ml锥形管中,静置20分钟,使其依靠重力自然沉降。
- 洗涤步骤:弃去上清液,用5 ml灌注缓冲液轻轻重悬AM沉淀。重复步骤1.10.4。
- 轻轻将AM细胞重悬于5 ml灌流缓冲液中。将细胞悬液分装至1.5 ml微量离心管中(每管约1,000个AM细胞)。
- 使用台盼蓝染色法分析并记录每颗心脏的分离细胞群体质量,包括细胞得率。
- 为此,用1 ml截短的移液枪头,将500 µl细胞悬液与台盼蓝溶液(终浓度0.02%)按1:1体积比稀释。通过极缓慢的上下吹打,轻柔混匀细胞与台盼蓝。立即将含台盼蓝的细胞悬液加入改良型Neubauer计数板,使用倒置显微镜计数完整的心肌细胞。
- 排除任何有明显损伤、细胞膜出泡、横纹断裂、收缩或细胞内蓄积台盼蓝的细胞图2)。同时排除自发性收缩的细胞,因其易发生后续细胞死亡。为评估悬浮液中完整细胞的数量,仅使用在整个细胞体积内具有规则横纹且不吸收台盼蓝的心肌细胞。
- 通过透射光显微镜评估单个心房和心室肌细胞的完整性。将明场图像保存为 Tif 文件,用于记录和进一步分析。
- 使用以下标准对心肌细胞完整性进行分析:
- 确认在整个可见细胞体积中存在规则的横纹;
- 确认沿肌丝方向的细胞两侧侧表面膜的连续完整性;
- 在细胞两侧的闰盘处观察到清晰的锯齿状结构,反映出特定细胞膜表面结构的完整性;以及
- 如第3节所述,将TATS膜(或免疫标记的caveolin-3蛋白或其他膜标志物)的荧光信号与相应细胞特异性明场图像的形态进行定位关联分析例如,使用 ImageJ 将两张图像合并为叠加复合图像。
- 从明场图像中确定肌节长度。对于平均肌节长度,测量连续排列的肌节条纹之间的距离,并将该距离除以肌节数量。每细胞至少测量两个位置。可使用商业软件或离线使用ImageJ进行分析。
注意:若使用解偶联剂处理,来自小鼠心脏的完整松弛态心肌细胞的平均肌节长度约为 1.9 µm28.
- 使用以下标准对心肌细胞完整性进行分析:
- 从透射光显微镜图像中定量分析单个心房和心室肌细胞的形态与尺寸。注意心房肌细胞(AM)与心室肌细胞(VM)在大小上存在显著差异。测量细胞的长度、宽度和面积,并计算长度与宽度的比值。
- 使用 ImageJ 中的多边形选择工具和添加到 ROI 管理器命令,从透射光图像中分析二维细胞尺寸,方法类似于 图3若在特定研究背景下预期会出现形态学变化,需进一步记录所有细胞所来源的小鼠品系、年龄、性别、心脏大小以及任何干预措施,以便后续进行数据分类。
2. 活体心房和心室肌细胞TATS膜的染色
- 加载成像腔室(例如,POC-R2)上,盖上一片直径为42 mm的玻璃盖玻片。为确保心肌细胞稳定贴附于盖玻片,用生理灌流缓冲液将层粘连蛋白储备液按1:10稀释,配制20 µl层粘连蛋白工作液(终浓度为0.2 mg/ml)。将20 µl层粘连蛋白溶液均匀涂布于玻璃盖玻片表面。
- 在灌流缓冲液中配制800 µl的50 µM di-8-ANEPPS溶液。具体操作为:将20 µl的2 mM di-8-ANEPPS储备液加入780 µl生理缓冲液中稀释。
- 对心室肌细胞(VMs)进行染色时,将细胞置于1.5 ml反应管中,静置8分钟,使其依靠重力沉降。对心房肌细胞(AMs)进行染色时,可选择重力沉降法,或以2分钟离心处理细胞悬液(参见1.10.3)。对于AMs和VMs,均需小心吸除上清液,避免对细胞沉淀造成不必要的扰动,并将细胞沉淀轻柔重悬于800 µl含50 µM di-8-ANEPPS的溶液中。立即将di-8-ANEPPS/心肌细胞悬液转移至成像腔室中预先包被有层粘连蛋白的盖玻片上。
- 在室温避光条件下,将VM悬液染色15分钟。
- 使用手动移液器缓慢吸取成像腔侧面的液面弯月面以去除多余液体体积。确认大部分经di-8-ANEPPS染色的心肌细胞仍牢固贴附于层粘连蛋白包被的盖玻片上,且未暴露于空气中。随后,通过缓慢加入1 ml灌流缓冲液洗涤贴壁的心肌细胞悬液一次,并去除包括非贴壁细胞在内的多余液体。
- 从成像室侧边缓慢加入1 ml灌流缓冲液,覆盖已染色并贴壁的肌细胞。将成像室置于显微镜载物台上。
3. 活体心房和心室肌细胞中TATS膜结构的成像
- 通常情况下,应仔细选择最适合TATS膜成像的荧光显微镜选项。对于共聚焦成像,建议采用新一代现代化荧光显微镜,配备优化的光电倍增管(PMT)阵列探测器和光子回收路径,以最大化荧光信号强度。对于TATS膜结构更细微部分的共聚焦成像,使用63X 1.4 NA油镜物镜;或根据设备条件,采用STED超分辨率显微镜以观察最小的TATS细节,相关心肌细胞特异性应用可参考Kohl et al.34 的综述。有关高分辨率荧光显微镜的一般原理,请参见讨论部分。
- 设置成像参数,以检测特定心肌细胞成像平面上尽可能多、理想情况下全部的di-8-ANEPPS染色的细胞内膜结构。以下参数可作为共聚焦激光扫描显微镜的起始设置:激发波长458 nm e.g.,激光最大功率的3%;检测发射信号范围为550 nm至740 nm;探测器增益(e.g.,主控命令800);针孔大小为1 AU,对应光学切片厚度为900 nm。调整这些参数以优化信噪比。
- 使用明场模式,根据需要选择完整的心房肌(AM)或心室肌(VM)细胞(图4A 和 4B)。参考步骤1.12中关于判断细胞完整性的相关标准以选择细胞,总结如下:全细胞范围内规则的横纹结构、均匀的肌节间距、清晰的表面边缘、四侧均具锯齿状结构、侧膜连续完整,且无任何膜泡形成。
- 获取心肌细胞中央区域的一个细胞内截面样本图像。使用“裁剪”功能调整感兴趣区域(ROI)→ 调整裁剪窗口 → 最终像素尺寸为100 nm × 100 nm。调整裁剪窗口的x轴,使其与心肌细胞的主要(轴向/纵向)轴对齐。
- 选择最终的成像平面。通过单帧图像手动选择z方向上的合适成像平面。确认在焦平面上可清晰观察到TATS膜结构,包括T小管和A小管组分。注意,典型的细胞内成像平面可能包含细胞核,可作为细胞内参考点。参见 图4A 和 图4B 中的示例。
注意:通常情况下,应尽可能缩短细胞暴露于激光下的时间。如有可能,使用单帧图像确定心肌细胞的最佳焦平面。 - 将像素驻留时间调整至约0.5 µsec。选择16次平均扫描,并以快照方式记录图像。根据步骤3.5中所述TATS膜结构的成像平面确定方法,重复图像快照步骤(如需要)。
- 保存最终图像,并确认文件已成功保存至目标文件夹。通常情况下,所有图像文件应统一保存为相同格式(e.g.,lsm),以便后续分析软件的统一处理。在进行任何图像分析之前,再次离线确认细胞完整性是否足够(参考步骤1.12.1中列出的标准),并将所有受损细胞排除在分析之外。参见 图4C 和 图4D 中的示例。
4. TATS 膜网络及其组分的分析
用于直接分析TATS膜组分的以下图像处理步骤总结为自上而下的工作流程图,如图5A和5B所示。
- 在 Fiji(http://fiji.sc/)中打开经 di-8-ANEPPS 染色的心肌细胞图像文件,Fiji 是 ImageJ 的一个免费版本,包含图像处理所必需的分析插件。有关更多信息,请参阅 Schindelin et al29。
- 保存图像 →文件 →另存为 →Tif。
- 为分析 TATS 膜结构成分,选择适当的 ROI,排除外表面膜信号,然后使用“多边形选择”工具划定 ROI 边界,排除外表面膜(肌膜),并包含 TATS 膜的胞内部分,如 图 5A(ROI)所示。通过执行 分析 →工具 →ROI 管理器,将选定的 ROI 添加至“ROI 管理器”。
- 为对 TATS 成分进行取向分析而选择特定 ROI 时,应使细胞主要的纵向轴与图像 x 轴平行。若细胞略有弯曲,可选择多个 ROI 并分别对齐。分析中应排除所有细胞核。应排除过度弯曲的细胞,因为此类细胞的 ROI 精确对齐将愈发困难,并在分析过程中增加取向误差。
- 删除外表面膜的无关信号信息:编辑 →清除外部,以生成“选定的 ROI”(图 5A)。确保所选 ROI 仅包含对应于 TATS 网络的胞内膜部分。
- 在进行后续定量分析之前,执行以下图像处理步骤(命令),如 图 5A 所示。
- 点击 →处理 →减去背景。将滚动球半径设置为 5 像素。
注:若待分析图像的像素尺寸为 100 nm × 100 nm,则将滚动球半径设为 5 像素。对于其他像素尺寸,应将滚动球半径设为与约 500 nm 物理半径相对应的像素数。 - 点击 →处理 →增强局部对比度(CLAHE)。将区块大小设为 49,直方图灰阶数设为 256,最大斜率设为 3,掩模设为“无”。
- 点击 →处理 →平滑。
- 点击 →插件 →分割 →统计区域合并。将参数设为 Q100 →点击“显示平均值”。
- 确认统计区域合并已完全处理完毕,表现为系统自动显示新的图像帧,并确认标签“SRM Q=100”已出现。后续步骤使用此图像文件。点击 →图像 →类型 →8 位。
- 点击 →图像 →调整 →阈值。将阈值设得足够低,以检测大多数(理想情况下为全部)TATS 结构,尤其避免遗漏信号强度较低的 TATS 成分(可将 40 作为起始阈值)。请参阅“代表性结果”部分以获取详细数据输出及 图 6 中的示例(上限为 255)。记录最终选定的阈值参数。需注意,正确选择的阈值应仅产生特异性的 TATS 膜结构,而不因背景噪声导致假阳性信号。
- 确认 TATS 图像细节与提取的骨架数据之间的正确叠加,特别是对于中等和高强度荧光信号,其应与骨架结构的(不)连续性相匹配。一旦确定合适的阈值,在所有图像的分析中均应使用相同的阈值,并重复原始信号与骨架数据的叠加比较,以一致地最小化这一潜在偏差来源。
- 点击 →应用:图像数据变为二值图像,如 图 5 中“阈值”所示。
- 点击 →插件 →骨架 →骨架化(2D/3D)。通过点击 →文件 →另存为 →Tif,将骨架化后的 2D 图像(如 图 5 所示)保存为 Tif 文件。通过点击 →插件 →分析骨架(2D/3D)对骨架化图像文件进行定量数据分析。选择剪枝循环方法:无。确认系统自动生成结果数据表。
- 将自动生成的数据表保存为 txt 文件。选择相关定量参数,例如,总分支点数或平均分支长度,如 图 7 中示例数据所示。可根据需要使用 Excel 等补充/支持性软件工具进行进一步数据分析。
- 点击 →处理 →减去背景。将滚动球半径设置为 5 像素。
- 尽可能使用自动化的图像处理流程,包括第 4.5 节所述的所有必要步骤,以在单个图像和/或图像批次之间实现分析的标准化。使用提供的补充代码文件,其中包含为 Fiji 编程的图像处理宏(根据需要调整程序)。
- 利用 Fiji 插件“Directionality”分析来自骨架化图像数据的所有或选定 TATS 网络成分的个体取向。生成一个方向性直方图,其中轴向取向的 A 小管或横向取向的 T 小管成分分别由 0° 或 90° 区间表示。注意图像取向的正确参考,图像的 x 轴应与心肌细胞的主要(纵向)0° 轴尽可能一致,如 图 8 及“代表性结果”所示。
- 点击 →分析 →方向性 →指定方法:傅里叶分量,Nbins 180,直方图起始 -45 →点击“显示表格”。
- 将新生成并显示的结果表格及其关联的直方图数据保存为 txt 文件。可根据需要使用 Excel 等补充软件工具对 txt 文件数据进行进一步分析。
- 为生成分组数据的子类,例如,针对相同处理条件(及可能的其他条件)下的所有细胞,根据需要对所有相关图像重复执行 4.1–4.7 的分析步骤。将所有图像的骨架化数据参数导入一个合并的 Excel 文件,以计算平均值。此外,将同一分组数据集的所有方向性直方图数据导入一个合并的 Excel 文件,以计算并生成平均方向性直方图。可根据需要对分组数据集进行进一步处理,以分析单个或不同处理组之间感兴趣的其他 TATS 网络参数。
结果
此外,除了TATS膜网络分析外,许多常用的细胞生物学技术,如细胞内Ca2+成像、膜片钳电生理学或药理学剂量-反应研究,都高度依赖于从心房、心室或心脏组织特定区域分离出高质量的原代细胞,以实现对成熟、已分化且结构和生理功能完整的心肌细胞的表征。因此,第1节中所述的AM和VM细胞的分离及质量评估,最终可广泛应用于多种不同的研究问题,包括本文所述的TATS网络分析,后者对完整的膜结构和细胞完整性具有高度依赖性。
图1 以分步图像形式展示了从小鼠心脏的心房开始进行心脏组织解剖的操作流程。随后根据需要制备并分离心室腔和室间隔。准确选择和制备正确的组织部分对于可靠地分离出具有足够细胞纯度的心房肌细胞(AM)和心室肌细胞(VM)至关重要。在胶原酶消化后,心房与心室组织之间正确的解剖分界线可能较难辨认;而一旦AM和VM细胞在细胞悬液中发生非特异性混合,则无法逆转该混合细胞群体。因此,准确的解剖定位、三维组织结构的可视化、对消化后组织操作的充分经验、特定组织部分的正确识别及其解剖边界的判定,均是细胞分离成功的关键因素。
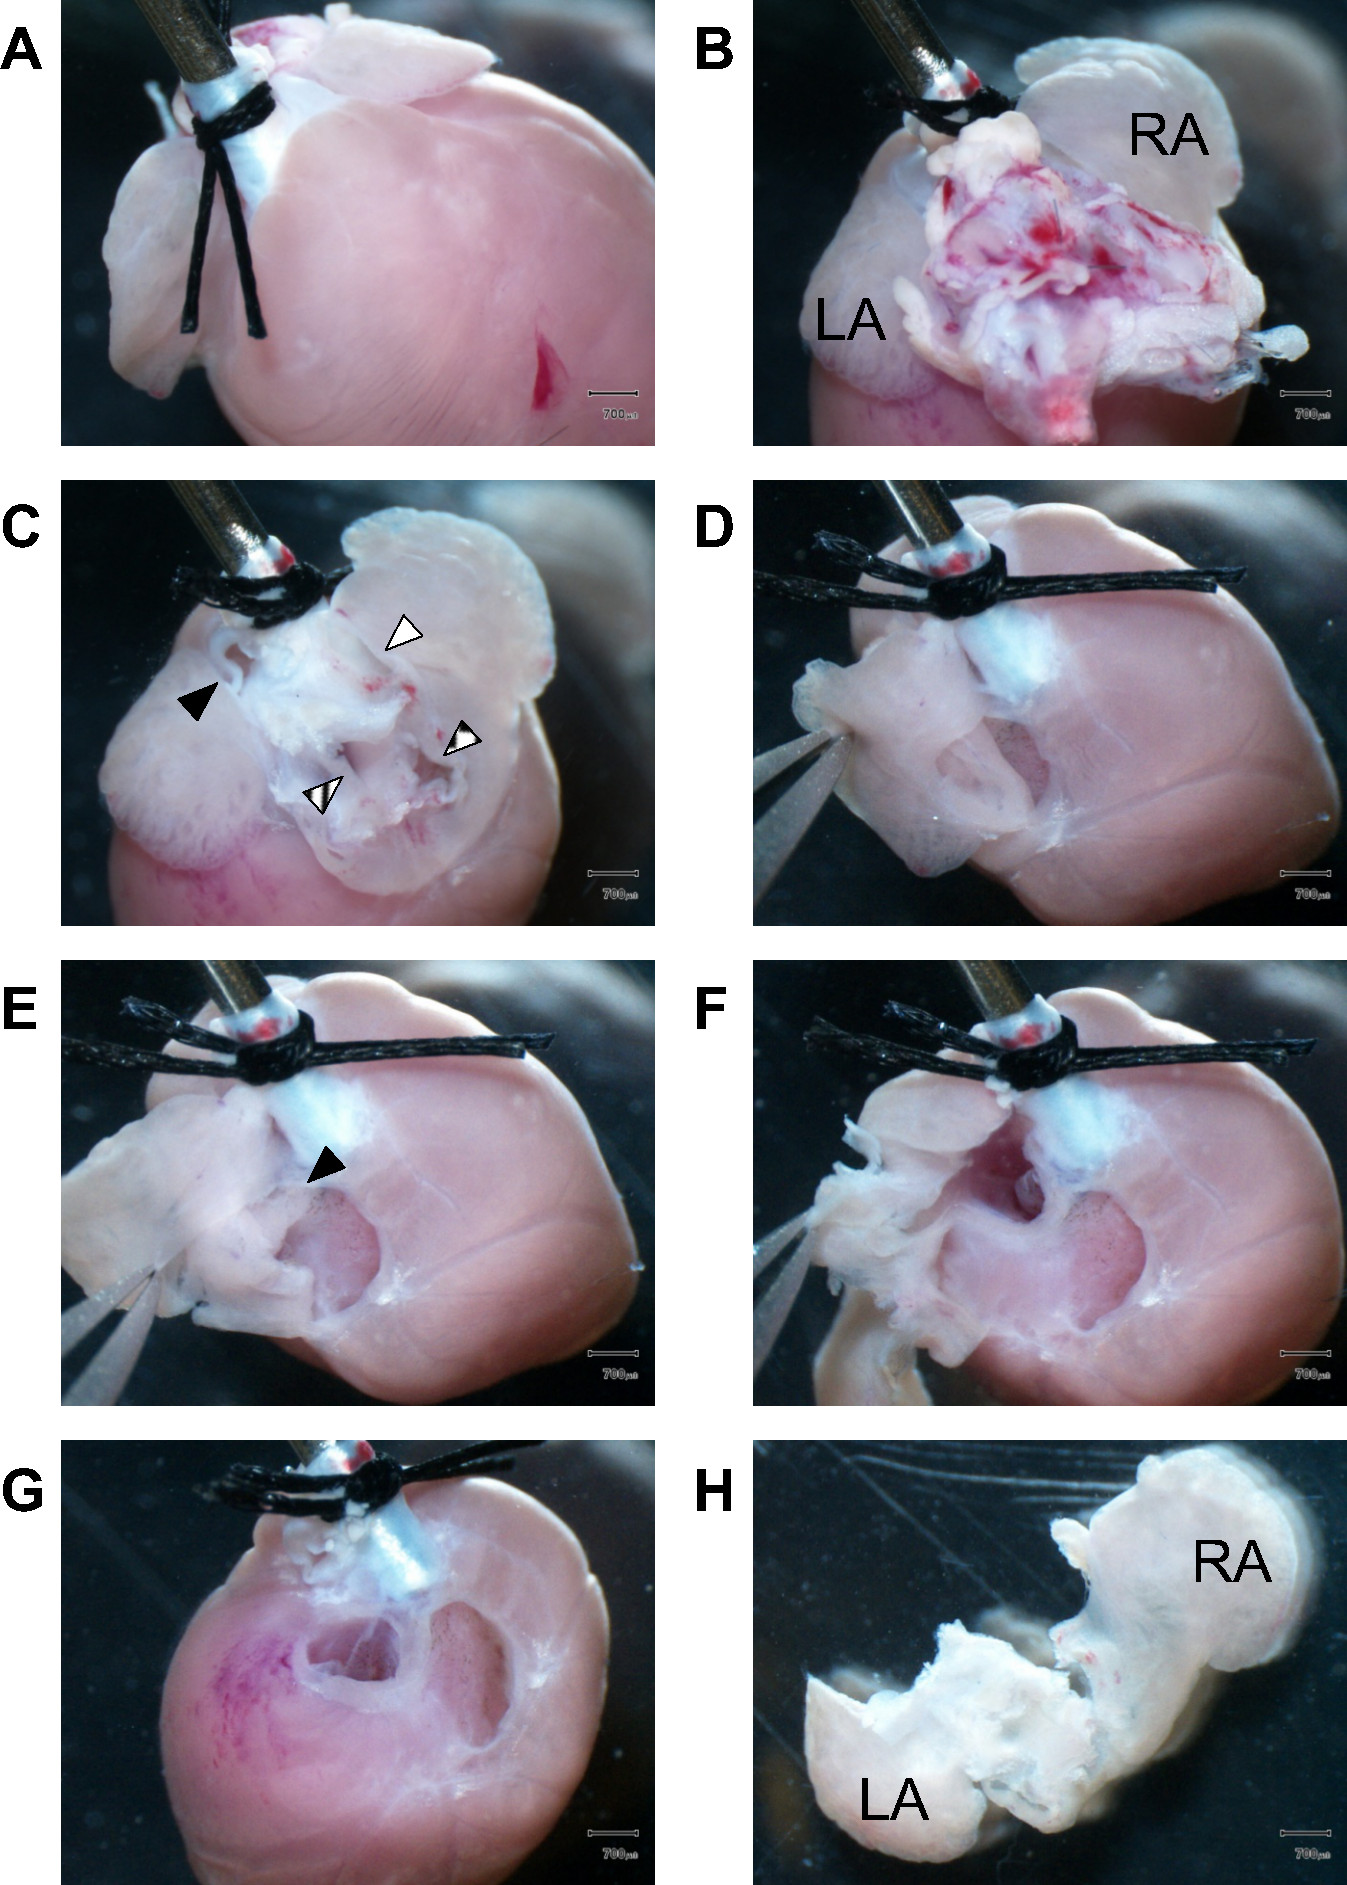
图1. 心房组织的解剖。(A)面对心脏前部,两条手术缝线将近端主动脉固定在21 G钢制套管的残端上。(B)朝向心脏基底部的视图显示,在解剖过程中残留的肺组织阻碍了心房腔的观察。LA,左心房;RA,右心房。(C)去除残留的肺组织和大血管以暴露心房腔。实心黑色三角形,肺动脉;条纹状三角形,肺静脉;空心黑色三角形,上腔静脉;带框三角形,下腔静脉。(D)首先解剖右心房壁,同时用镊子夹住心耳。(E)观察右心房腔内部。黑色三角形标记完整的房间隔。(F)继续解剖以进入左心房腔。(G)在完全解剖分离左心房和右心房后,房室瓣变得可见。将纤维性瓣膜结构解剖并弃去,以便后续仅收获心室肌组织。(H)分离后的左心房和右心房的后视图。LA,左心房;RA,右心房。比例尺:700 µm。
为评估细胞分离的质量,图2展示了典型杆状或砖形横纹完整心肌细胞(包括心房肌细胞AMs和心室肌细胞VMs)在收获率和存活率评估过程中的典型细胞示例。可通过台盼蓝排斥法(见1.11节所述)轻松识别轻微损伤、外观不明显以及严重损伤的细胞,后者表现为异常过度弯曲的形态或异常球形细胞。当完整心肌细胞暴露于细胞外台盼蓝时,仍保持明亮且横纹均匀;而受损细胞通常表现出多个细胞膜出泡和/或迅速在胞内积聚台盼蓝,提示细胞膜损伤。然而,台盼蓝本身若孵育时间过长可能对细胞造成损害,因此必须立即进行细胞质量评估。如肌原纤维收缩或严重影响细胞完整性的表面明显损伤等更明显的细胞损伤形式,见于图4C和4D。请点击此处查看该图的高清版本。

图2.台盼蓝排斥法细胞染色。 分离的(A)AM细胞和(B)VM细胞与台盼蓝混合悬浮后,通过倒置光学显微镜在40倍放大下观察。注意图中(A)和(B)内摄取了台盼蓝的异常球形细胞,表明细胞膜渗漏和结构损伤。相比之下,中央具有完整细胞膜的AM和VM细胞排斥台盼蓝,如图所示。此外,可见完整的AM和VM细胞在整个细胞体积内呈现肌节条纹,无膜出泡现象,两侧边缘及两端闰盘均清晰锐利。比例尺:20 µm。
成功分离后,从单个小鼠心脏消化中可获得 5 × 10⁵ 至 106 个心肌细胞(VM)。而心房肌细胞(AM)的产量显著较低,约为 3 × 10³ 至 3 × 10⁴ 个呈杆状且能排除台盼蓝的细胞。与心肌细胞(VM)不同,即使由经验丰富的操作者进行,心房肌细胞(AM)的分离有时也会失败。步骤 1.11 概述了如何估算悬浮液中健康分离细胞的产量。此外,可通过步骤 1.13 确定单个 AM 或 VM 细胞分离物的平均细胞尺寸,或根据需要并排比较 AM 与 VM 的细胞群体(如 图 3 所示)。请点击此处查看该图的高清版本。
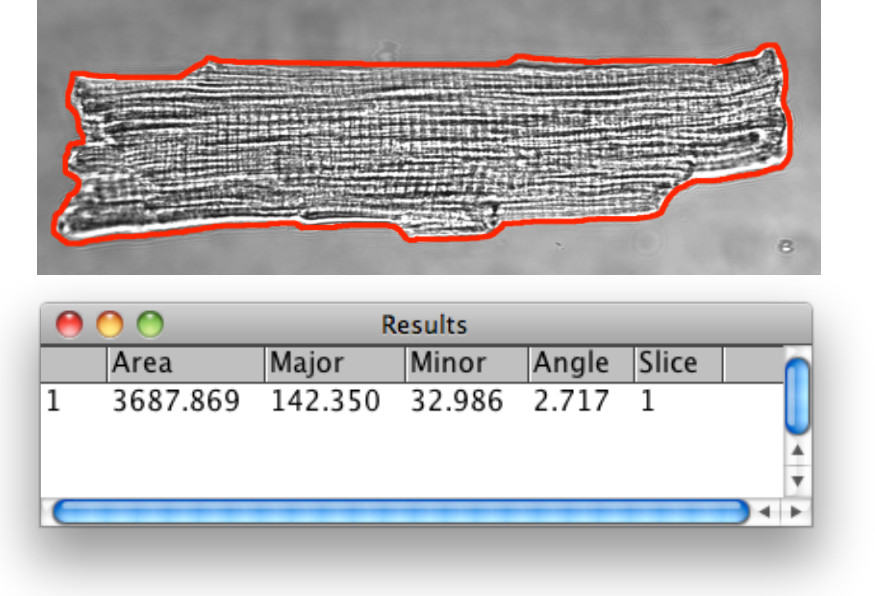
图 3. 心肌细胞的明场形态计量分析。 使用步骤 1.13 中描述的图像分析工具检测心室肌(VM)轮廓。使用多边形选择工具在图像上目视标记并定义由细胞外膜外表面界定的细胞胞外边界,用于后续分析。将选定的兴趣区域(ROI)添加至 ROI 管理器,随后进行一维距离测量。在进行心房肌(AM)与心室肌(VM)尺寸的比较研究时,建议记录细胞长度、宽度和面积,并计算长度与宽度的比值(length:width ratio)。
为了对心房肌(AM)或心室肌(VM)细胞中的横管-肌膜连接系统(TATS)膜进行荧光染色,采用第2节所述方法使用整合膜染料di-8-ANEPPS染色,随后进行共聚焦显微镜观察,得到如图4A和图4B所示的代表性TATS网络图像。此外,图4A展示了完整AM的透射光图像,与共聚焦TATS图像并列显示(图像采集方法见第3节)。如步骤1.12所述,通过透射光图像评估活心肌细胞的形态学特征及细胞膜完整性。di-8-ANEPPS信号的放大区域突出了AM中TATS网络的底层结构,其特征为丰富的轴向(纵向)膜小管。相比之下,如图4B所示,健康VM的TATS结构则包含数量大致相等的轴向和横向组分。相反,图4C和图4D展示了应排除在进一步分析之外的受损心肌细胞示例。具体而言,图4C中的AM细胞表现为收缩状态,表现为肌节长度异常缩短至1.2 µm,且TATS网络不规则、扭曲;而图4D中的VM细胞则出现多个细胞膜出泡现象(部分由红色三角形标示),提示存在膜结构破坏,这种破坏可能发生在细胞外表面膜,也可能发生在TATS膜上。请点击此处查看该图的高清版本。

图4. 完整心房和心室心肌细胞的活体膜染色。 分别为活体经di-8-ANEPPS染色的完整(A)AM和(B)VM细胞的透射光与共聚焦图像。相比之下,(C)显示一个部分收缩且可能受损的AM,其肌节长度为1.2 µm。收缩的心肌细胞通常表现出异常缩短且扭曲的TATS结构,因此应排除在进一步分析之外。另一个提示细胞膜缺陷的重要指标是膜出泡(红色三角形),如(D)中VM所示。膜出泡代表受损的表面膜结构,带有出泡的细胞应排除在进一步的TATS分析之外。此外,该VM表现出明显的大范围损伤,其左下部分整段缺失(星号标记)。综上所述,通过比较透射光与共聚焦图像,可记录细胞形态和表面完整性,并结合荧光信号信息进行评估。‘N’标记的是细胞核,不在TATS膜染色分析范围内。黄色标尺指示上方同一共聚焦图像中放大的感兴趣区域(ROI)。比例尺:10 µm。 请点击此处查看该图的放大版本。
如图4A和图4B所示,具有足够信噪比的TATS膜共聚焦图像可用于进一步的定量分析。TATS膜分析基于从荧光直线信号成分获得的骨架化数据。图5展示了各个图像处理步骤的工作流程图,具体步骤在4.3至4.5中详细描述。这些步骤生成了代表直线型TATS膜网络的骨架化图像,分别针对每个分离的VM细胞(图5A)和AM细胞(图5B)进行展示。
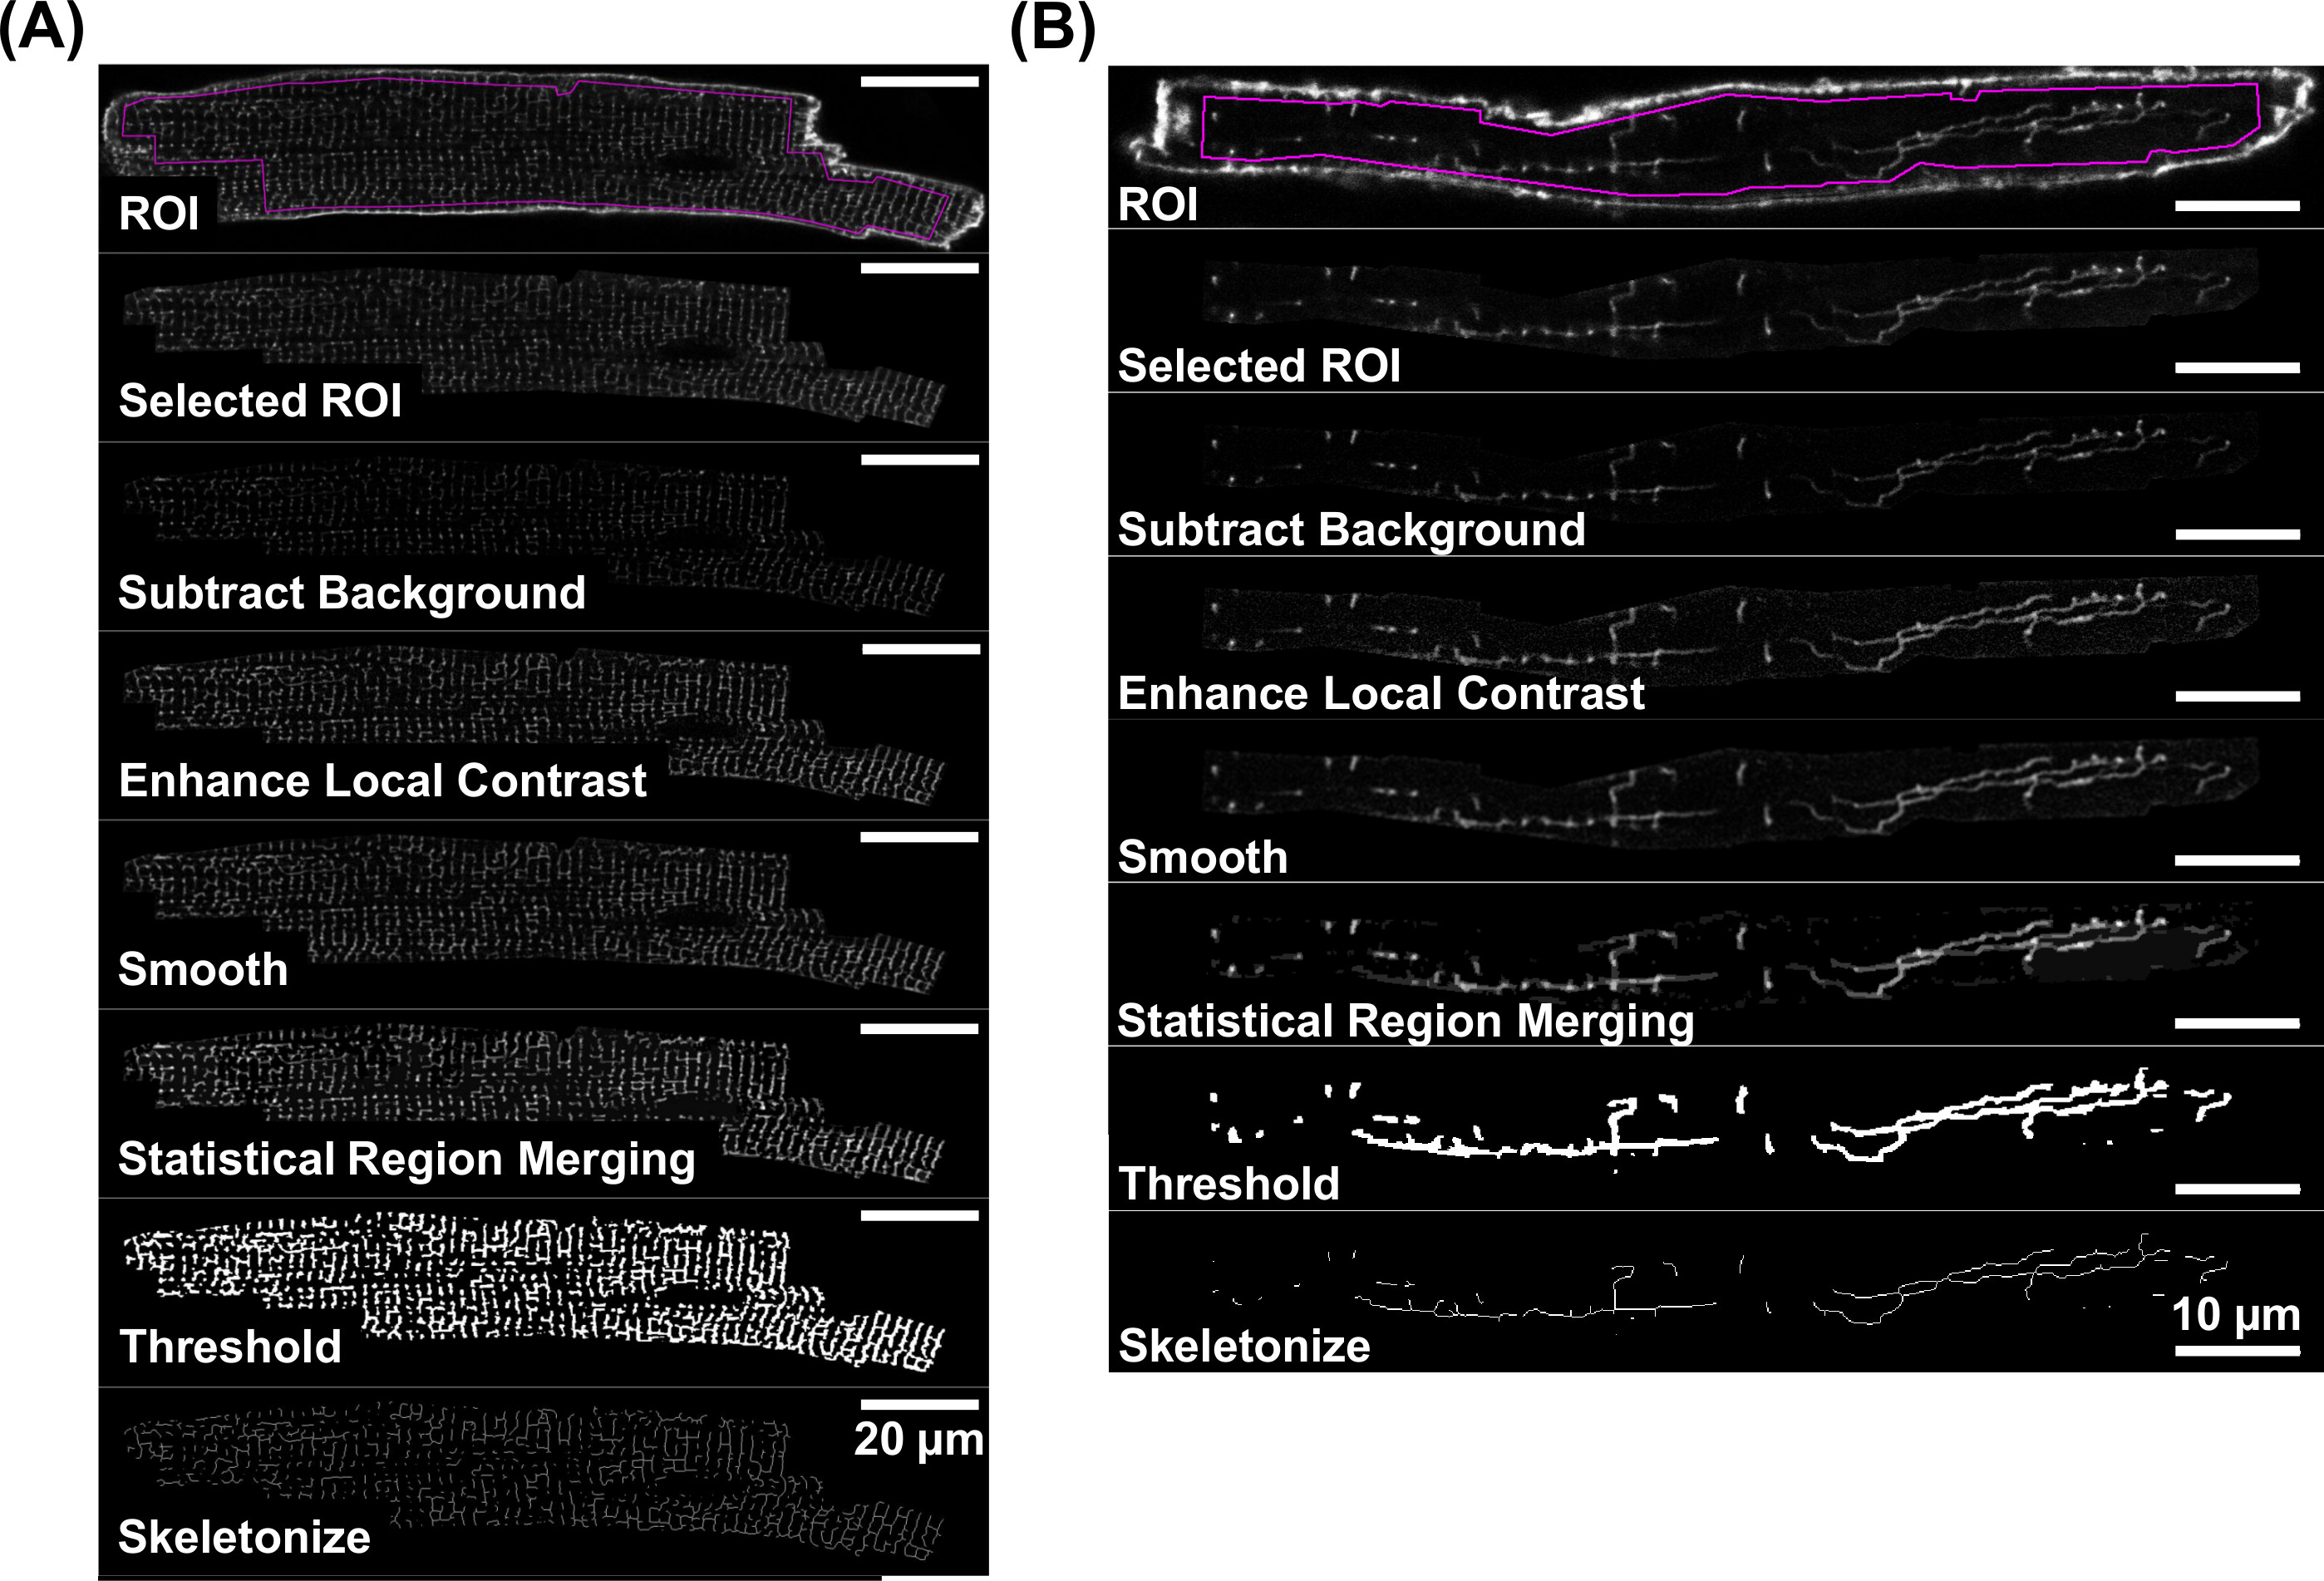
图5. 荧光TATS图像骨架化的操作流程。 图像处理的各个步骤通过逐步图像示例展示,最终生成TATS网络的骨架化图像,分别对应于di-8-ANEPPS染色的心室肌细胞(A)和心房肌细胞(B)。各步图像处理详情请参见第4节。注意比例尺差异:20µm(A)和10µm(B)。 请点击此处查看该图的放大版本。
图像处理过程中的一个关键步骤是确定数据二值化的合适阈值,具体方法如第 4.5.6 节所述。所得的二值图像应仅包含来自TATS网络的真实膜信号,而不包含因背景信号噪声错误设定阈值而产生的伪结构。然而,阈值必须足够低,以确保检测到所有真实的TATS结构,从而避免在图像分析过程中真实TATS组分被错误遗漏。图6 展示了在数据二值化过程中如何选择阈值。如 图6B 和 图6C 所示,阈值设为40时似乎能够单独识别所有真实的TATS结构;而选择更高的阈值,例如 如 图6A 所示的60,则无法检测到较微弱的轴向膜结构(ATs),如黄色三角形所示。相反,选择较低的阈值,例如 如 图6D 所示的20,会导致将背景噪声错误地识别为假阳性的TATS结构,如黄色三角形所示。
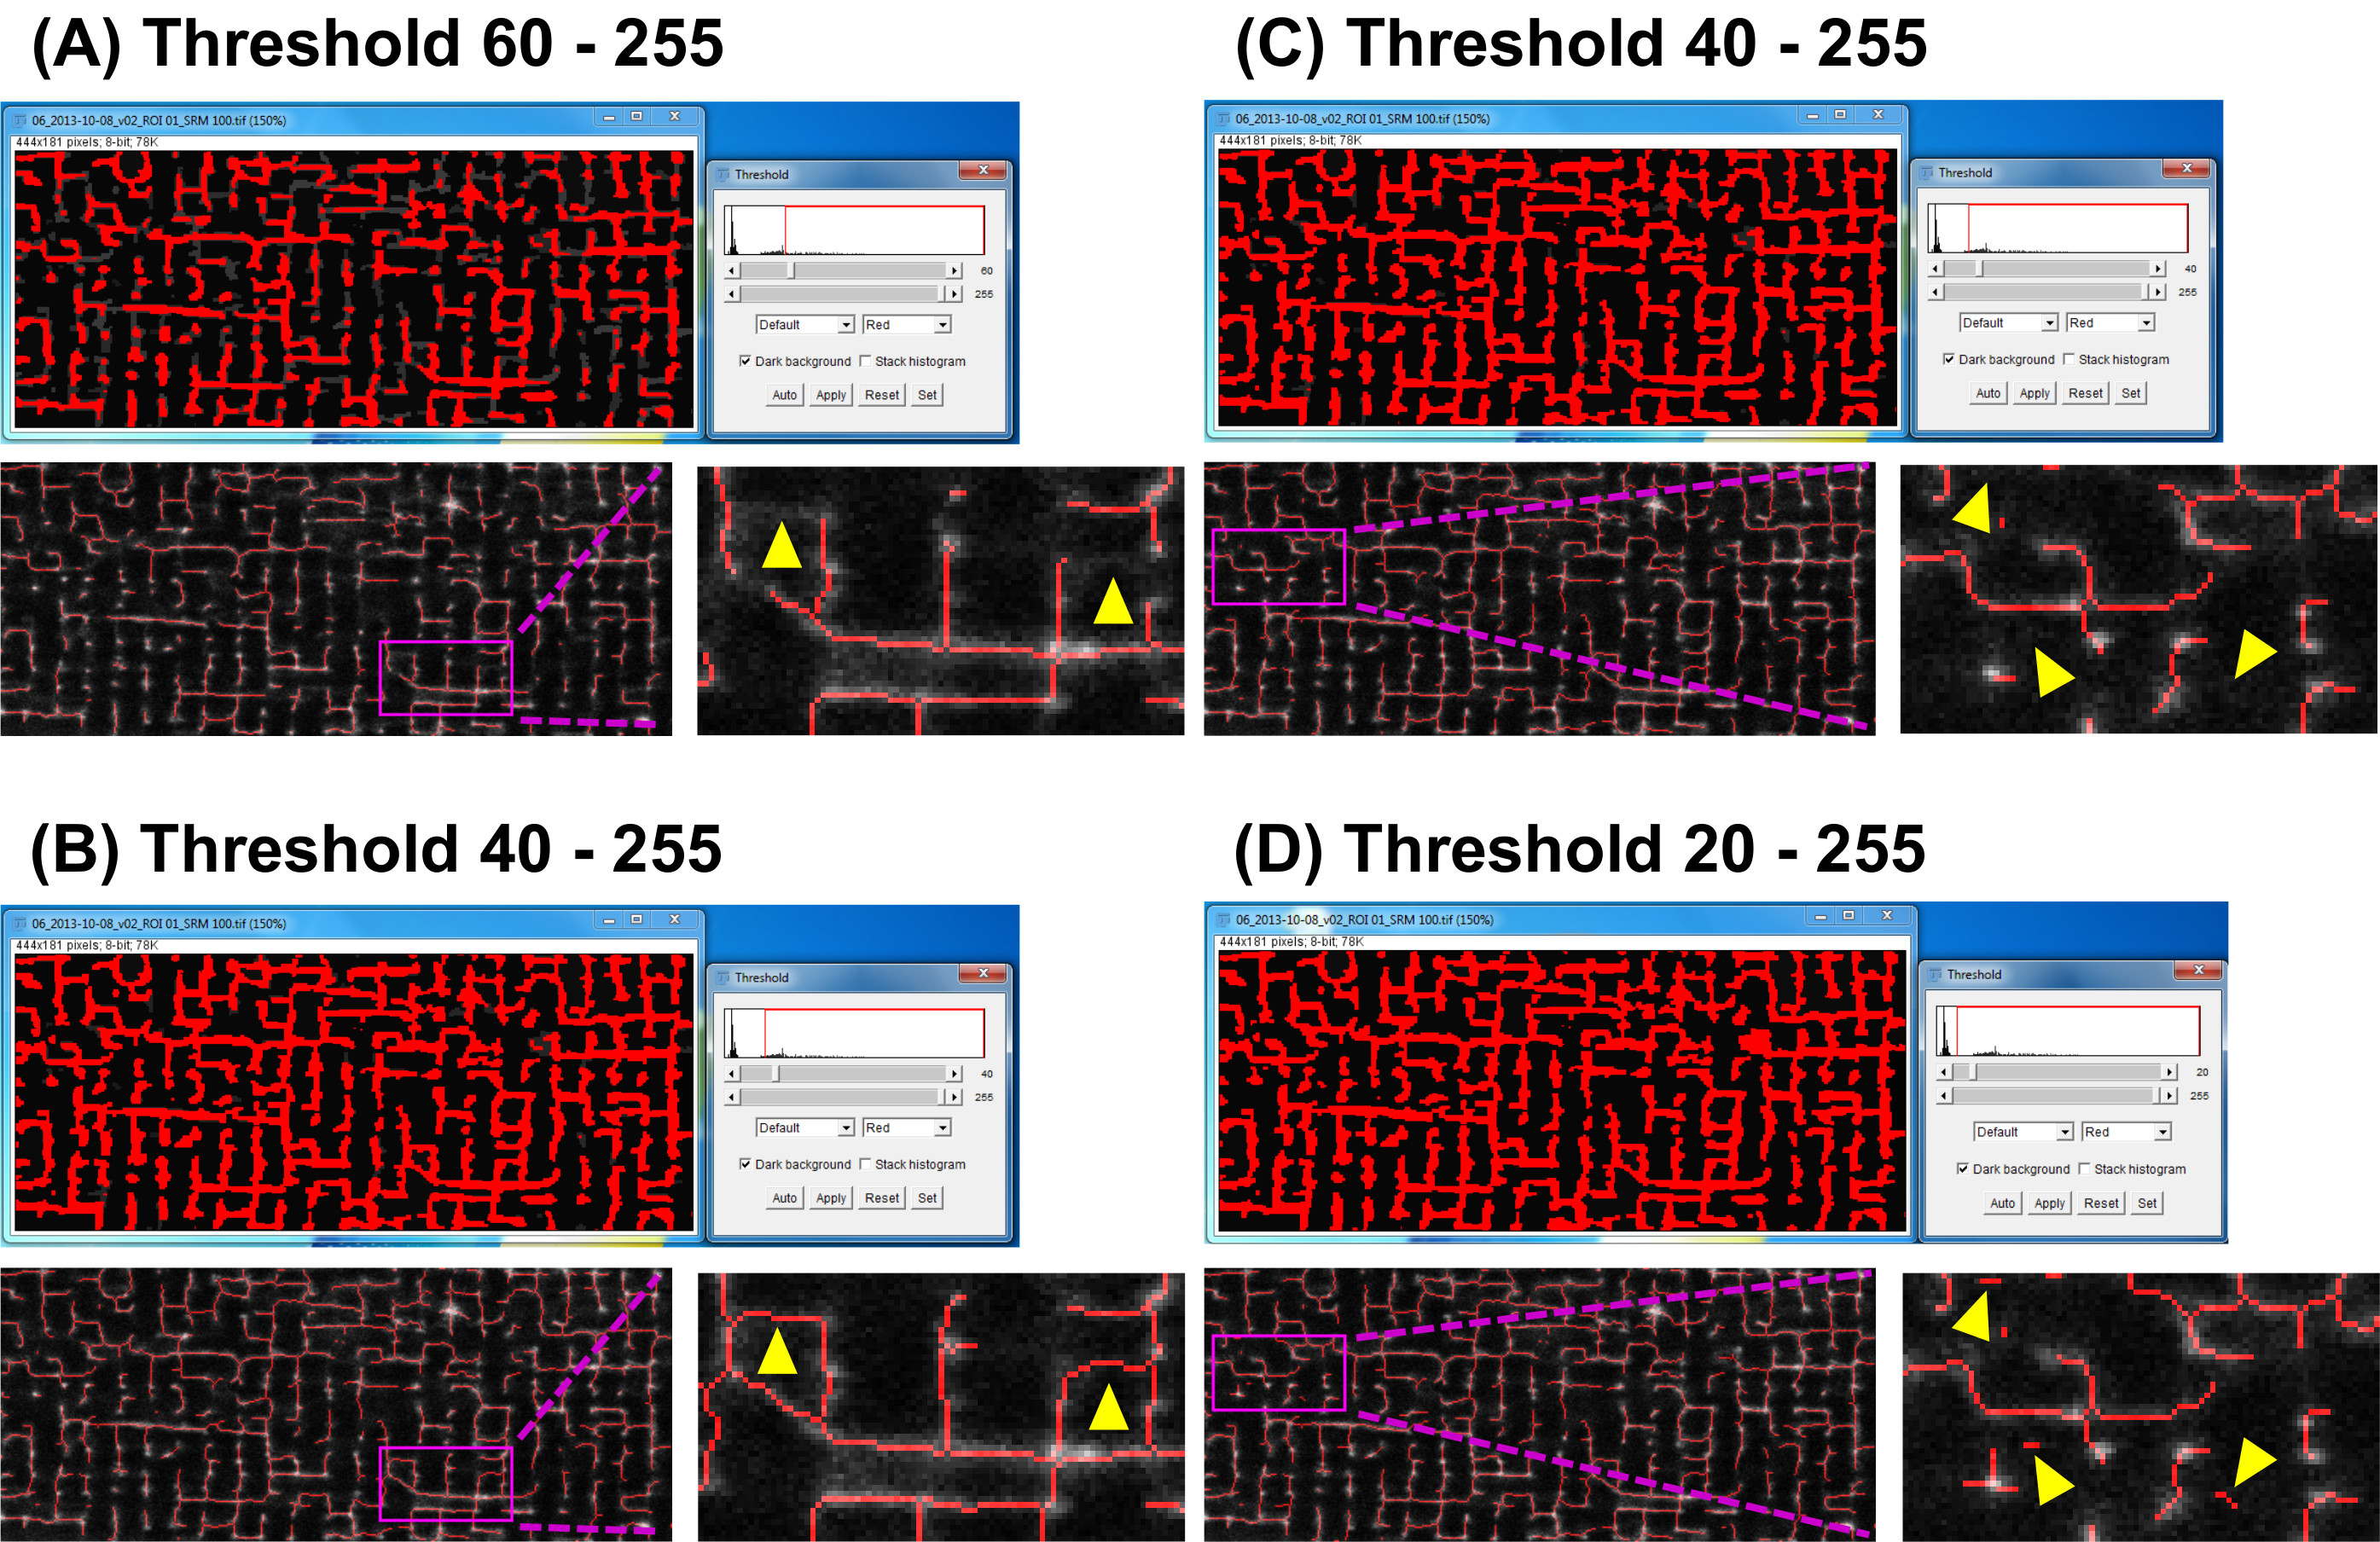
图6. 如何在TATS图像数据骨架化过程中确定信号阈值。 示例展示了在数据二值化过程中针对不同阈值生成的TATS骨架 4.5)。上图:显示使用 Fiji 进行阈值调整的结果。下图:骨架化图像与相应的输入荧光图像的叠加,以及如图所示的放大区域。高阈值 例如,60 应用于(A)显然不适合检测所有真实的TATS结构,如放大区域中黄色三角形所示。在(中应用的阈值为40B)和(C)可检测到所有TATS结构,并能正确避免检测到背景噪声,而低阈值则不能 例如,20 英寸(D错误地将背景噪声识别为TATS结构,从而产生不存在的膜结构的假阳性信号。放大的插图中用黄色三角形标示出假阳性信号。 请点击此处以查看此图的放大版本。
“Analyze Skeleton (2D/3D)”插件支持对骨架化的TATS结构进行详细分析。运行后,该插件将生成一个包含以下骨架参数的数据表:分支数(#branches)、连接点数(#junctions)、端点体素数(#end-point voxels)、平均分支长度、三分叉点数(#triple points)、四分叉点数(#quadruple points)以及最大分支长度。有关所有可能输出参数的详细说明,请参见http://fiji.sc/wiki/index.php/AnalyzeSkeleton及相关文献29-31。典型的输出数据表示例见图7A。
这些参数还可用于计算单位面积的总骨架长度或单位面积的分支节点数量。以分支数量乘以平均分支长度为例,可得到二维条件下连续骨架的总长度:
每个 ROI 的总骨骼长度:
∑(分支数 × 平均分支长度)= 5155 像素 = 515.5 µm
骨架的总长度可以归一化到图像面积。对于图7所示的示例,归一化后的骨架长度为0.64µm/µm2,所有连接点的总和计算如下:
标准化骨架长度:
515.5 µm / 803.6 µm2 = 0.64 µm/µm2
标准化连接数:
155 个连接 / 803.6 µm2 = 0.19 个连接/µm2
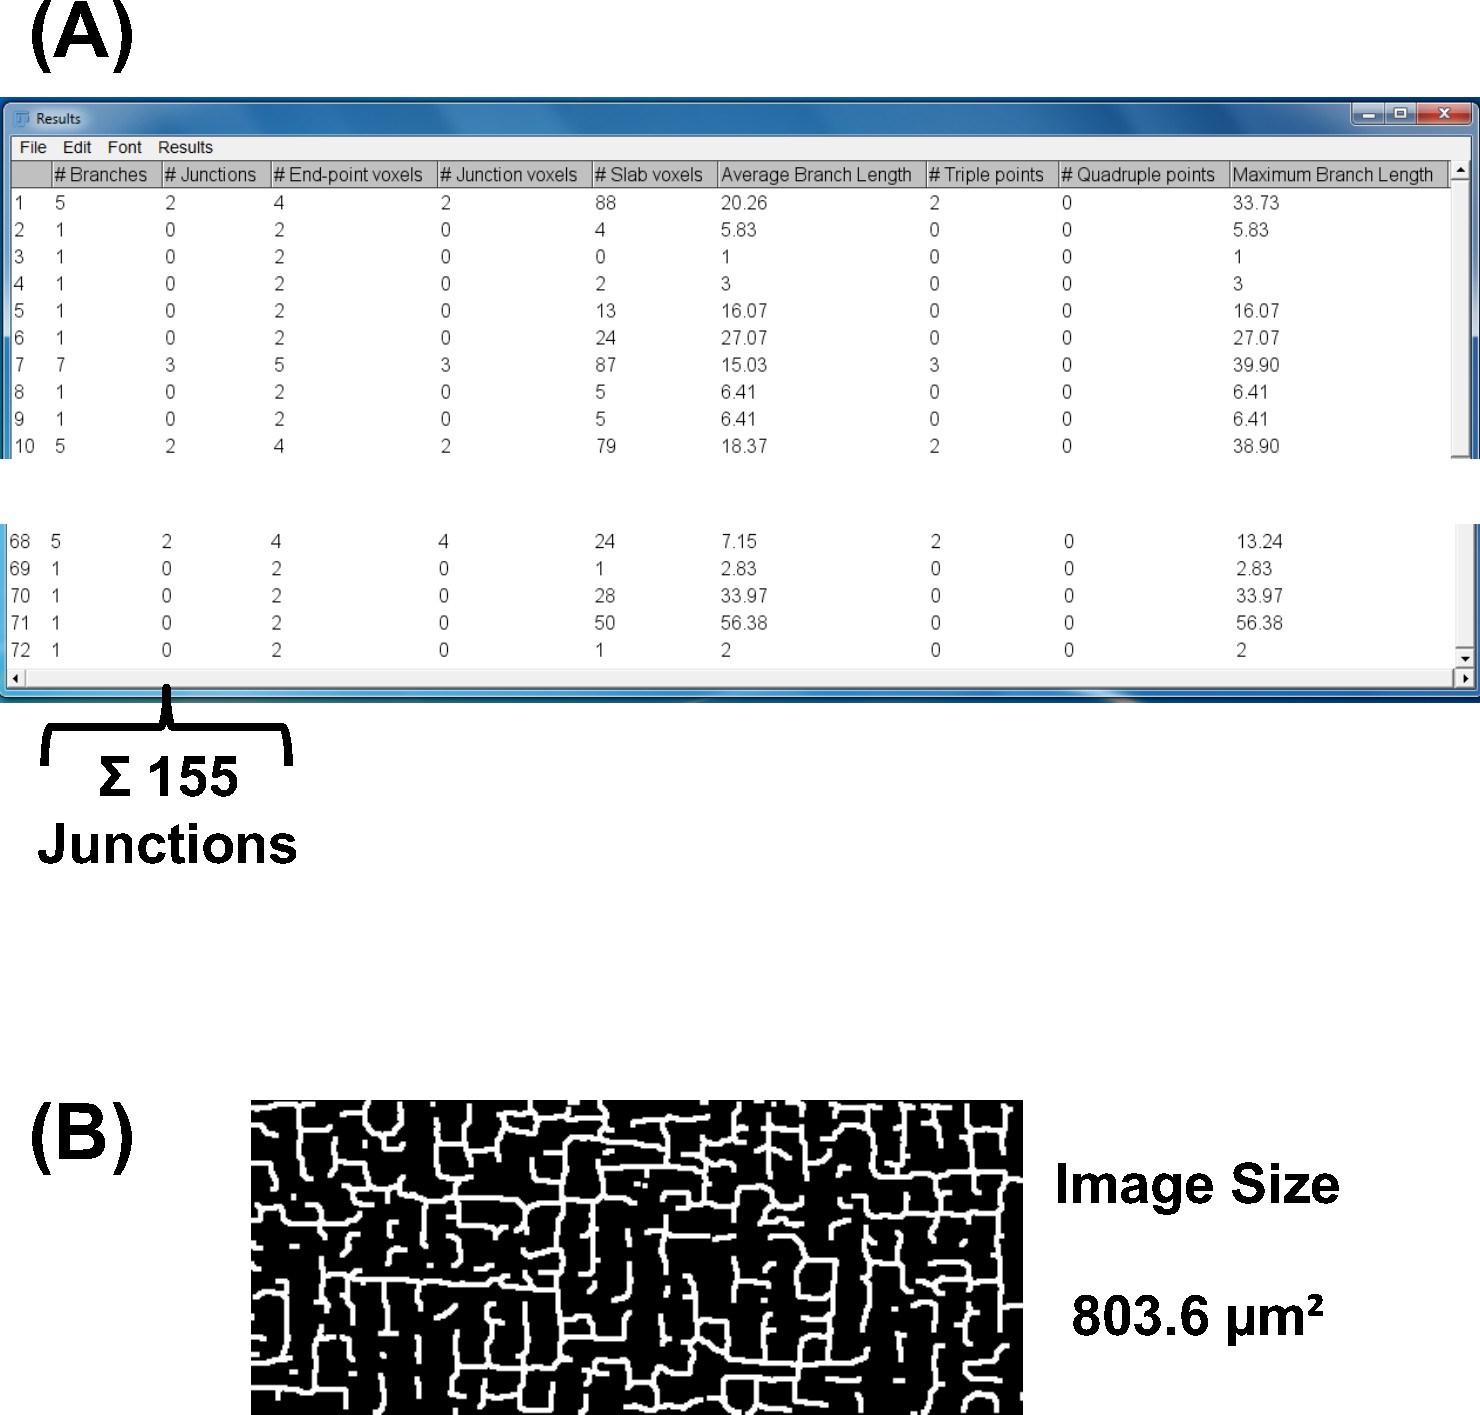
图 7. 来自骨架化图像的自动数据输出。(A) 由(B)所示骨架化图像通过“Analyze Skeleton (2D/3D)”插件生成的典型数据表格。有关可能输出参数的详细说明,请参见 http://fiji.sc/wiki/index.php/AnalyzeSkeleton。请点击此处查看该图的放大版本。
在4.5节中描述并由图5所示的图像处理步骤,可通过提供的Fiji宏(作为补充代码文件)实现自动化。该宏命令通过迭代步骤定义了图像处理的重复过程。此宏可应用于通过步骤4.3和4.4生成的完整输入图像堆栈。该宏在分析完整的数据集组时具有优势,例如,可为每个独立处理组分别准备单独的输入图像堆栈,并使用宏命令进行自动化分析。
上述软件策略还可进一步用于对所有组分进行TATS网络取向分析。为此,可使用“Directionality”插件(http://fiji.sc/Directionality)29,31,该插件可生成直方图数据,显示所有TATS组分取向的分布情况。若输入图像的x轴对应于特定心室肌细胞(VM)或心房肌细胞(AM)的主轴,则轴向(纵向)TATS组分将由0°区间表示,而横向组分则由90°区间表示。图8展示了来自骨架化TATS图像的典型取向直方图,分别为心室肌细胞(8A)与心房肌细胞(8B)。典型心室肌细胞的取向直方图在0°和90°处呈现双峰分布,而心房肌细胞的直方图则在0°处出现单一主导峰。这些结果与先前观察一致:心室肌细胞的TATS组分在T小管和A小管之间近乎均等分布,而心房肌细胞的TATS组分则主要由A小管构成。
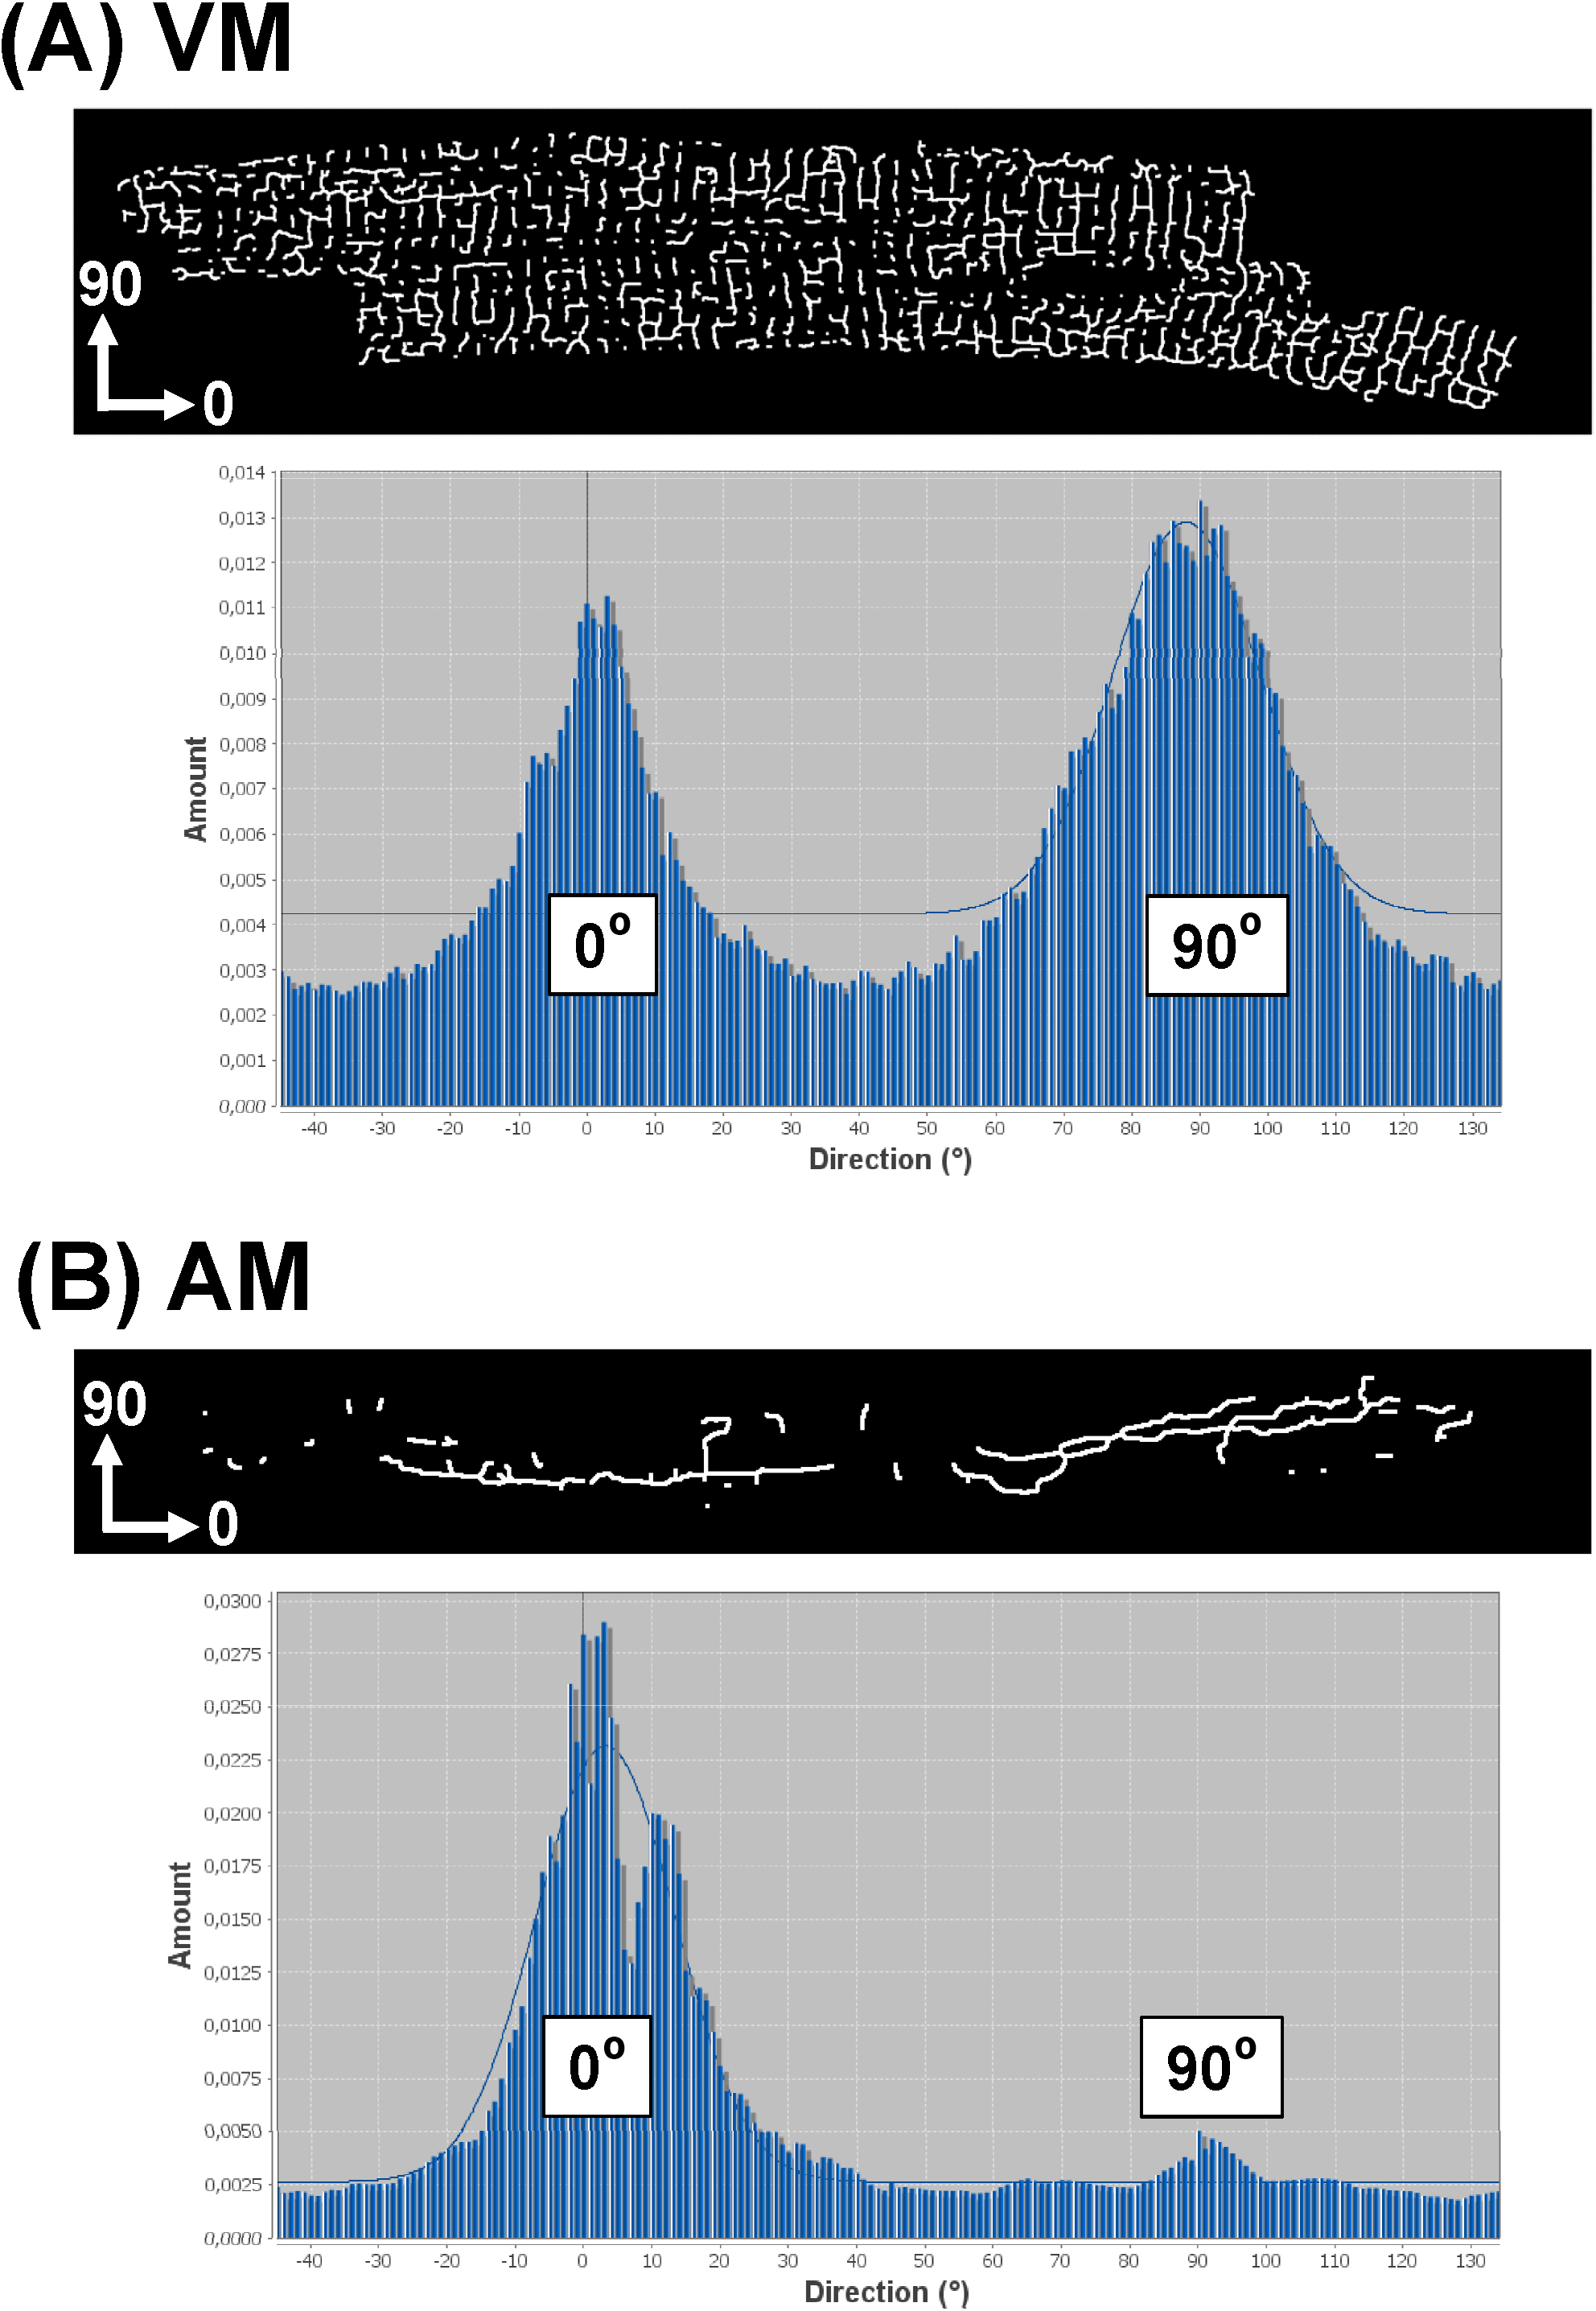
图8. 来自单个细胞TATS网络的代表性方向性直方图。方向性直方图由单个心室肌细胞(VM)(A)与心房肌细胞(AM)(B)TATS网络的骨架化图像生成。由于分析图像的x轴对应于心肌细胞的主轴(纵向轴),如图所示,A小管成分由0°区间表示,而T小管成分由90°区间表示。高斯拟合仅针对主要直方图峰值,如背景图所示。请点击此处查看该图的放大版本。
| 灌注缓冲液 | mM |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| 牛磺酸 | 30 |
| 2,3-丁二酮单肟 | 10 |
| 葡萄糖 | 5.5 |
| pH 7.4 | |
| 消化缓冲液 | mM(如未特别说明) |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| 牛磺酸 | 30 |
| 2,3-丁二酮单肟 | 10 |
| 葡萄糖 | 5.5 |
| II型胶原酶 | 600 U/ml |
| pH 7.4 | |
| 终止缓冲液 | mM(如未特别说明) |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| 牛磺酸 | 30 |
| 2,3-丁二酮单肟 | 10 |
| 葡萄糖 | 5.5 |
| CaCl2 | 0.0125 |
| 小牛血清 | 10% |
| pH 7.4 | |
表1. 缓冲溶液。 总结了三种不同生理缓冲溶液在细胞分离与成像中的组成。
讨论
尽管数十年来心肌细胞已被分离并开展研究32,但最近的一项综述指出,获得一致的高质量心肌细胞分离仍具挑战性27。这反映出原代心肌细胞分离的方案相对复杂,且缺乏通用的标准方法、共享的元数据以及透明的细胞质量记录。细胞分离方案通常由各个研究团队自行定制,所得细胞分离物的结果存在差异,依赖于特定的模型设置(例如,物种、年龄、共存的心脏状况),并通常根据特定实验条件进行调整。在本文所介绍的关于TATS膜的定量研究及方案背景下,质量评估和记录的一个关键方面是对单个细胞膜结构进行共聚焦或超分辨率显微镜观察,这些结构在心房肌(AM)或心室肌(VM)中均易受代谢状态及分离方案相关因素的影响而发生改变。重要的是,即使细胞分离产量较高提示获得了健康完整的肌细胞,研究者仍需针对每个单个细胞,依据形态学标准,仔细记录并严格评估其表面膜和TATS膜的完整性,以区分由分离操作引起的非特异性损伤与相对于对照条件因不同干预措施导致的特异性变化。在心肌细胞分离过程中,一个重要的变量是特定批次胶原酶的酶活性。在选择新批次胶原酶时,应根据生产商的说明,通过评估不同胶原酶样品的心肌细胞得率和质量,相互比较其酶活性。理想情况下,应选用酶活性与先前成功使用过的批次相近的新批次胶原酶(有关可能的酶活性的进一步评估,请参见材料与方法表中的“胶原酶批次选择工具”)。 综上所述,TATS膜的可视化定量分析在很大程度上依赖于细胞分离的质量;反之,若TATS显微镜观察显示细胞分离导致了非特异性膜损伤,则应促使研究者对分离方案进行严格审查和修正。由于细胞分离质量与TATS膜的可视化及定量分析本质上密切相关,本文讨论的方案涵盖了作为连续策略的各个主要方面。
心脏研究中的另一个挑战和常见问题是,由于代谢干扰性干预,会发生细胞损伤和/或细胞丢失 例如,心肌梗死后9,但仍需评估其可能造成的无意损害 例如在细胞分离过程中因未察觉的空气栓塞可能导致额外的细胞损失。从病变心脏中分离心肌细胞可能会导致进一步的显著细胞丢失和细胞得率降低。因此,若采用标准化的细胞分离与计数方案并保持操作一致,则在对照组与病变心脏之间比较所分离的完整细胞总数具有实际意义。因此,通过适当的对照组来评估细胞完整性至关重要,该对照组应反映心肌细胞分离所能达到的最佳质量。值得注意的是,单个细胞的质量以及健康心肌细胞、病变心肌细胞与因分离过程意外受损的心肌细胞在活细胞显微成像中的差异,可能显著影响对TATS膜网络的分析结果。因此,本文所介绍的实验方案强调在细胞分离及完整膜结构的活细胞显微观察过程中,维持生理膜组分的完整性与稳定性。整个工作流程被设计为连续策略,旨在获取并保持完整的TATS膜结构,同时排除受损细胞,因为这些细胞会表现出依赖于分离过程的膜假象,如膜小管断裂、膜出泡以及TATS网络异常,从而在对照条件下错误地干扰后续的定量分析。反之,对于可能破坏TATS膜结构的干预性研究,同样必须采用这些策略,以确保在真正健康与真正病变且存在TATS膜改变的心肌细胞之间进行有意义的对照比较。
此外,我们介绍了实现心房肌细胞(AM细胞)分离的技术方案,该过程在技术上更具挑战性。尽管已有进展并改进了相关实验方案,但需要强调的是,要重复获得高质量的心室肌细胞(VM细胞)分离结果并非易事,而心房肌细胞(AM细胞)的分离则更不可靠。这主要是由于AM细胞总体得率较低,因此在细胞分离过程中即使出现微小的误差或波动,也可能导致AM细胞分离完全失败;相比之下,由于VM细胞数量相对较多,即使存在轻度损伤,在细胞悬液中也不易察觉。由于AM细胞在分离后可能呈现弯曲形态,因此如步骤4.3所述,通过多个感兴趣区域(ROI)进行分析可能更具优势。在详细描述细胞分离步骤之后,我们提供了一种针对VM细胞和AM细胞的TATS网络进行直接全膜染色以及共聚焦或STED超分辨率成像的实验方案。这些方案可通过已建立的参数,实现对TATS膜特定组分的定量分析和区分。与心室肌细胞相比,目前对心房肌细胞中TATS网络的三维结构及其功能行为的理解仍较为有限。
在活细胞中成像TATS膜的实验步骤(步骤3.1至3.7)是使用商用共聚焦显微镜(材料/设备表)和定制的STED荧光显微镜9开发的。为了优化显微镜设置以生成荧光图像并进行定量TATS分析,以下几点具有普遍重要性:
- 目标
为了分辨TATS膜结构的细微特征,需通过实验验证哪种物镜可在细胞内部数微米深度处提供最佳图像质量。某些共聚焦显微镜使用水镜或甘油镜时性能可能更优,而不同于本实验所用的63X 1.4 NA油镜。100X放大倍数的物镜常用于超分辨率STED显微技术,以视野范围缩小为代价实现纳米级分辨率34. - 激发与增益
激发光功率和探测器增益的最佳设置取决于显微镜光路、激光器性能以及样品特性。理想情况下,应调节激光功率和增益,以充分利用探测器的动态范围,同时避免图像饱和。商用显微成像软件通常提供查找表,用于显示动态范围的上下限。此外,为尽量减少染料漂白,应使用尽可能低的激光功率,同时仍能获得足够的TATS膜结构细节。激发功率还应足够低,以避免累积性光损伤导致心肌细胞收缩和死亡。 - 像素大小
使用与奈奎斯特采样定理兼容的像素尺寸,约为当前设置下所达到分辨率的一半。对于共聚焦成像,100 nm × 100 nm 的像素尺寸是合适的,同时也有助于减少光漂白。对于超分辨率显微镜,则需使用显著更小的像素尺寸。 例如,用于STED显微镜的20 nm × 20 nm9. - 停留时间
共聚焦显微镜提供信号平均功能。通常,应使用尽可能短的像素驻留时间,结合信号平均,以避免光漂白 例如,线平均值 ≥ 8 以提高信噪比。 - 通过元数据记录应用显微镜设置
一旦在特定共聚焦显微镜上优化了用于成像TATS膜结构细节的设置,应安全保存和/或记录这些设置(实验方案元数据)。在同一个(或多个)细胞组内采集所有图像时,须使用相同的目标物镜、激发光功率、增益、像素尺寸、像素驻留时间及平均扫描次数。采用一致的成像条件,可实现细胞组内(或组间)图像的直接比较与定量分析。 - 有关共聚焦显微镜原理与应用的一般性指导及更多详细信息,请参阅《生物共聚焦显微镜手册》(Pawley J.B.,第3版)。rd 版次,2006,施普林格科学+商业媒体有限责任公司
与本文介绍的直接分析策略不同,以往描述TATS膜及其疾病相关变化的研究通常采用区域性汇总读数来定量T小管密度16,17,或基于条纹状膜信号的傅里叶变换分析进行间接区域评估,以衡量T小管组分的规则性7。相比之下,本文所述的定量方法直接关联单个TATS组分,并提供多个额外参数,包括膜网络特性以及特定组分(如A型小管所占百分比 )。此外,TATS网络密度可被量化为每单位ROI面积内提取出的完整骨架的归一化长度。三个独立且连续连接的小管组分形成的三叉连接点数量可用于评估TATS膜网络的分支复杂性。需要注意的是,对最小TATS组分的任何分析均依赖于染色方法。根据我们的经验,使用800 µl浓度为50 µM的di-8-ANEPPS溶液足以对含有50,000个心室肌细胞(VM细胞)的细胞沉淀中的完整TATS网络进行染色9。然而,若细胞沉淀中包含的心肌细胞数量较少,或具备高灵敏度荧光检测器,且研究关注的是整体TATS网络分布而非最小膜结构细节或定量变化时,可根据经验测试使用较低的染料浓度。最后,为上述分析编写的软件宏可用于自动化图像处理步骤,从而便于大规模数据集的分析,这对于不同处理组(e.g.,药物)、细胞类型(e.g.,心房肌细胞AM与心室肌细胞VM)以及病理生理干预(e.g.,假手术组与心肌梗死组)之间的比较尤为有用。
对于TATS网络的图像分析,采用以下一系列基本步骤:1)滚球法背景扣除(4.5.1),以消除背景强度的空间变化;2)局部对比度增强(4.5.2);3)图像平滑(4.5.3);4)统计区域合并(4.5.4);5)确定图像二值化的阈值(4.5.6);以及6)骨架数据的计算(4.5.8)。在荧光TATS图像的骨架化过程中,一个关键步骤是如图6所示的图像二值化。相关的阈值设定步骤最终决定了哪些真实的膜结构被识别为TATS的基本组分,而哪些可能是由背景噪声引起的假阳性结构。正确的二值化图像分析阈值应与真实的TATS膜结构相对应,这取决于共聚焦显微镜和超分辨率显微镜成像方法各自具备足够高的信噪比(SNR)。因此,应首先确保足够的图像质量,并结合明场图像等所列方式对单个细胞质量进行严格评估。针对特定显微镜数据输出或生理学问题,可选用其他图像分割方案的替代方法,包括图像去卷积,以及作为ImageJ插件提供的“Otsu”或“Iso-data”等其他阈值分割方法。无论采用何种最终的分割流程,我们都认为将提取结果与原始数据通过图像叠加进行比较,是必不可少的质量控制步骤。总之,单个分离心肌细胞的形态学特征与膜完整性、细胞内TATS膜的充分染色、荧光成像参数的优化,以及提取骨架数据的叠加对照,均对荧光TATS图像的质量和定量分析结果具有重要影响。
如果使用比小鼠更大的物种进行细胞分离,可相应地对方案进行适当调整。对于体型稍大的下一个物种,大鼠心脏可用钝头14 G型套管(外径2.1 mm)并以8 ml/min的速度灌注。明显更年老或病变的心脏可能需要更大的套管尺寸。通常,心脏灌注可通过恒定压力进行 例如,可通过储液器与主动脉之间1米高的水柱产生的恒定压力,或使用蠕动泵实现恒定流速灌注。对于从小型啮齿类动物(如小鼠和大鼠)心脏中分离细胞,恒定流速可能更具优势,因为胶原酶消化最终会破坏冠状动脉阻力血管,导致血管床渗漏而引起过高的灌注速率,而恒定流速方案可在一定程度上控制该现象。相比之下,当需要优先监测灌注流速并确保导管插入正确时,恒定压力灌注更为有利,这在研究血管阻力发生改变的干预模型以及在细胞分离操作技术培训中具有优势。
如上所述,细胞质量对于内源性膜系统的定量研究至关重要。然而,在心脏灌注和胶原酶消化过程中,众多因素可能严重影响细胞分离的质量,这些因素在方案优化或故障排查过程中绝不可忽视。27特别是,应针对特定目标组织确定给定批次胶原酶的活性 例如,在执行正式的实验研究之前,需对心房或心室进行处理,以建立并维持整个研究过程中所需的分离条件。此外,灌流系统的水质、pH值、温度、优化设置及清洁程度将有助于最大限度地降低污染物和栓塞造成意外损伤的风险;在细胞分离过程中,可能还需监测其他因素,以建立最佳的稳态环境。BDM(2,3-丁二酮单肟)是一种可逆性肌球蛋白ATP酶横桥抑制剂,常在组织解剖和消化过程中使用,以维持心肌的松弛状态,从而提高细胞分离的得率。然而,研究者需注意,BDM可能具有非特异性的磷酸酶活性,从而导致脱靶效应。 例如,Na⁺的抑制+/Ca2+ 在特定条件下的交换电流33对于某些实验,使用blebbistatin替代BDM作为心脏停搏液可能更具优势。blebbistatin在微摩尔浓度下对肌球蛋白具有高亲和力,但其具有毒性、相对昂贵,且可能存在其他脱靶效应。在无电刺激的情况下,静息状态的健康心肌细胞不应出现任何收缩,此类细胞应排除在后续分析之外。另一方面,在生理细胞外Ca²⁺浓度条件下,心肌细胞应能对电刺激产生收缩与舒张反应。2+ 可利用浓度来建立正常的收缩行为,作为评估细胞功能质量以及比较心脏病细胞与健康对照细胞是否存在异常行为的额外指标。
综上所述,本文所述的单细胞分离和定量图像分析方案已成功应用于心室肌细胞(VM9)和心房肌细胞(AM)中TATS膜网络的共聚焦显微镜和超分辨率显微镜研究21,以及固定心脏肌细胞中微管网络的定量分析(数据未显示)。这些方案及其未来的应用可能为多种实验问题提供研究途径,例如在不同发育阶段对TATS膜进行表征,或分析与TATS网络接触并发挥高度局部化、区域特异性信号功能的膜相关蛋白或细胞器结构。
披露
作者声明不存在利益冲突。
致谢
本工作获得了德国研究基金会SFB 1002(项目A05和B05授予S.E.L.)和KFO 155(子项目4授予S.E.L.)的支持,Halbach基金会向S.E.L.提供的奖项用于支持E.W.;德国心脏病学会向S.B.提供的资助;以及德国学术交流中心(DAAD)交流项目对T.K.在马里兰大学访学期间的支持。本研究工作所获得的成果得到了欧洲共同体第七框架计划FP7/2007-2013(资助协议号HEALTH-F2-2009-241526,EUTrigTreat,授予S.E.L.)的资助。S.E.L.是德国心血管研究中心(DZHK)的主要研究员。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>化学品与酶 | |||
| 2,3-丁二酮单肟 | Sigma-Aldrich,德国慕尼黑 | B0753 | |
| 牛犊血清 | 赛默飞世尔科技,施韦尔特,德国 | SH30073 | 三重 0.1 µm 无菌过滤。 |
| CaCl2 | Sigma-Aldrich,德国慕尼黑 | 21115 | 用超纯水按1:10稀释,得到100 mM CaCl₂2 储存浓度 |
| II型胶原酶 | Worthington via Cell Systems,特罗伊瑟多夫,德国 | 应要求 | 酶活性取决于不同批次的胶原酶。可对胶原酶II及其他酶活性(酪蛋白酶、梭菌蛋白酶、胰蛋白酶样活性)进行测定 "胶原酶批次选择工具". 针对每一批新到的胶原酶,分别测定细胞产量和质量。 |
| 葡萄糖 | Carl Roth,德国卡尔斯鲁厄 | HN06.1 | |
| 肝素 | Rotexmedica,德国特里陶 | PZN-03862340 | 用0.9% NaCl稀释后,皮下注射于腹部皮肤。 |
| HEPES | Carl Roth,德国卡尔斯鲁厄 | 9105.4 | |
| Forene 100% (V/V) | Abbott,利伯蒂维尔,伊利诺伊州,美国 | B506 | 活性物质:异氟烷,250 ml。在空气/氧气输送装置中使用,浓度约为 2 Vol%。 |
| KCl | Carl Roth,德国卡尔斯鲁厄 | 6781.3 | |
| KH2PO4 | Carl Roth,德国卡尔斯鲁厄 | 3904.2 | |
| 层粘连蛋白(2 mg/ml) | BD 生物科学,德国海德堡 | 354232 | 层压步骤在2.1步中描述。 |
| MgCl₂2·6H2O | Carl Roth,德国卡尔斯鲁厄 | 2189.2 | |
| MgSO₄4·7H2O | Carl Roth,德国卡尔斯鲁厄 | 8283.2 | |
| Na2HPO4·2H2O | Carl Roth,德国卡尔斯鲁厄 | 4984.2 | |
| NaHCO₃3 | Carl Roth,德国卡尔斯鲁厄 | HN01.1 | |
| 牛磺酸 | Carl Roth,德国卡尔斯鲁厄 | 4721.2 | |
| <强>染料 | |||
| Di-8-ANEPPS | Molecular Probes,Life Technologies,德国达姆施塔特 | D-3167 | 2 mM DMSO 储存液 |
| 台盼蓝 | Sigma-Aldrich,德国慕尼黑 | T8154 | 台盼蓝通过剪去尖端的1 ml塑料移液器与细胞悬液以1:1比例轻轻混匀,随后在Neubauer血细胞计数板中进行细胞计数。 |
| <强>朗根多夫灌流装置 | |||
| 循环恒温器 | 劳达,劳达-Kö尼格斯霍芬,德国 | 请参阅 Louch 等 (JMCC 2011)。将灌流管路中的恒温器和缓冲液加热至37 °使用前将 C 预冷 15 分钟。 | |
| 用于蠕动泵的柔性硅胶管路 Tygon | VWR,德国达姆施塔特 | 224-2252 | 导管需要定期更换。 |
| 用于恒温器的柔性硅胶管路 Tygon | VWR,德国达姆施塔特 | 228-4340 | |
| 环绕灌流管路的加热线圈 | Rettberg, Gö德国蒂宾根 | 定制 | 加热丝和管路在使用后需用MQ水彻底清洗,切勿使用洗涤剂。玻璃组件应定期浸泡清洗 在10 mM NaOH中过夜。 |
| 蠕动泵 | Ismatec,德国韦尔泰姆 | ISM830 | |
| 三通旋塞阀 Discofix C 鲁尔锁 10 cm | Braun,德国美尔松根,瑞士 | 16500C | |
| 三通旋塞阀 Discofix 3SC | Braun,美尔松根,瑞士 | 4095146 | |
| <强>仪器 | |||
| 42 mm 玻璃盖玻片 | Menzel Glä赛默飞世尔科技,德国施韦尔特 | 应要求 | 0.13–0.16 mm 厚度 |
| 21 G 套管针 | Becton, Dickinson and Company,美国新泽西州富兰克林湖 | 304432 | 切成约5 mm长,用砂纸打磨粗糙。 |
| Neubauer血球计数板盖玻片 24 x 24 mm | 门策尔 Glä赛默飞世尔科技,德国施韦尔特 | 应要求 | 0.38–0.42 mm 厚度 |
| 格劳费镊子,0.5 mm 尖端,轻微弯曲 | Fine Science Tools,德国海德堡 | 11151-10 | |
| LSM 710 NLO | 卡尔·蔡司,耶拿,德国 | 63倍,数值孔径1.4,油镜物镜 | |
| 改进型纽鲍尔计数板 | Labor Optik,德国弗里德里希斯多夫 | 1100000 | 计数步骤:用70%乙醇擦拭计数室及其配套的盖玻片。轻轻将盖玻片压在计数室上,使两片玻璃表面接触并可观察到牛顿环。随后,加入10–20 µ可将细胞悬液滴加至盖玻片边缘,通过毛细作用吸入空隙中。利用血细胞计数板网格中的方格(每个方格对应100 nl)计数完整与有缺陷的心肌细胞。在血细胞计数板上的第二个网格重复计数过程。结合任何稀释倍数及计数区域的换算,计算原始细胞悬液中的细胞密度。 |
| POC-R2 成像室 | Pecon,德国埃尔巴赫 | 细胞悬液体积:800 µl;理想的铺板密度:约1,000个AM和约10,000个VM | |
| 弹簧剪,8 mm刀片,直型,钝头 | Fine Science Tools,德国海德堡 | 15025-10 | |
| 学生型 Dumont #7 镊子,不锈钢 | Fine Science Tools,德国海德堡 | 91197-00 | |
| 学生用虹膜剪,弯型,11.5 cm | Fine Science Tools,德国海德堡 | 91461-11 | |
| 学生用虹膜剪,直型,11.5 cm | Fine Science Tools,德国海德堡 | 91460-11 | |
| 学生用外科剪,直型,锋利,12 cm | Fine Science Tools,德国海德堡 | 91402-12 | |
| 组织镊,1×2齿,细长型,10 cm | Fine Science Tools,德国海德堡 | 11023-10 |
参考文献
- Prosser, B. L., Ward, C. W., Lederer, W. J. Subcellular Ca2+ signaling in the heart the role of ryanodine receptor sensitivity. J Gen Physiol. 136 (2), 135-142 (2010).
- Wehrens, X. H., Lehnart, S. E., Marks, A. R. Intracellular calcium release and cardiac disease. Annu Rev Physiol. 67, 69-98 (2005).
- Cheng, H., Cannell, M. B., Lederer, W. J. Propagation of excitation-contraction coupling into ventricular myocytes. Pflugers Arch. 428 (3-4), 415-417 (1994).
- Williams, G. S., Chikando, A. C., Tuan, H. T., Sobie, E. A., Lederer, W. J., Jafri, M. S. Dynamics of calcium sparks and calcium leak in the heart. Biophys J. 101 (6), 1287-1296 (2011).
- Sperelakis, N., Rubio, R. orderly lattice of axial tubules which interconnect adjacent transverse tubules in guinea-pig ventricular myocardium. J Mol Cell Cardiol. 2 (3), 211-220 (1971).
- Soeller, C., Cannell, M. B. of the transverse tubular system in living cardiac rat myocytes by 2-photon microscopy and digital image-processing techniques. Circ Res. 84 (3), 266-275 (1999).
- Song, L. S., et al. et al. ryanodine receptors in the failing heart. Proc Natl Acad Sci USA. 103 (11), 4305-4310 (2006).
- Oort, R. J., et al. Disrupted junctional membrane complexes and hyperactive ryanodine receptors after acute junctophilin knockdown in mice. Circulation. 123 (9), 979-988 (2011).
- Wagner, E., et al. Stimulated emission depletion live-cell super-resolution imaging shows proliferative remodeling of T-tubule membrane structures after myocardial infarction. Circ Res. 111 (4), 402-414 (2012).
- Asghari, P., Schulson, M., Scriven, D. R., Martens, G., Moore, E. D. Axial tubules of rat ventricular myocytes form multiple junctions with the sarcoplasmic reticulum. Biophys J. 96 (11), 4651-4660 (2009).
- Lukyanenko, V., Ziman, A., Lukyanenko, A., Salnikov, V., Lederer, W. J. Functional groups of ryanodine receptors in rat ventricular cells. J Physiol. 583 (Pt 1), 251-269 (2007).
- Shacklock, P. S., Wier, W. G., Balke, C. W. Local Ca2+ transients (Ca2+ sparks) originate at transverse tubules in rat heart cells. J Physiol. 487 (Pt 3), 601-608 (1995).
- Reynolds, J. O., et al. Junctophilin-2 is necessary for T-tubule maturation during mouse heart development. Cardiovasc Res. 100 (1), 44-53 (2013).
- Di Maio, A., Karko, K., Snopko, R. M., Mejia-Alvarez, R., Franzini-Armstrong, C. T-tubule formation in cardiac myocytes two possible mechanisms. J Muscle Res Cell Motil. 28 (4-5), 231-241 (2007).
- He, J., et al. Reduction in density of transverse tubules and L-type Ca(2+) channels in canine tachycardia-induced heart failure. Cardiovasc Res. 49 (2), 298-307 (2001).
- Heinzel, F. R., et al. Remodeling of T-tubules and reduced synchrony of Ca2+ release in myocytes from chronically ischemic myocardium. Circ Res. 102 (3), 338-346 (2008).
- Lyon, A. R., et al. Loss of T-tubules and other changes to surface topography in ventricular myocytes from failing human and rat heart. Proc Natl Acad Sci USA. 106 (16), 6854-6859 (2009).
- Crossman, D. J., Ruygrok, P. N., Soeller, C., Cannell, M. B. Changes in the organization of excitation-contraction coupling structures in failing human heart. PLoS One. 6 (3), e17901(2011).
- Kemi, O. J., et al. The effect of exercise training on transverse tubules in normal, remodeled, and reverse remodeled hearts. J Cell Physiol. 226 (9), 2235-2243 (2011).
- Sachse, F. B., et al. Subcellular structures and function of myocytes impaired during heart failure are restored by cardiac resynchronization therapy. Circ Res. 110 (4), 588-597 (2012).
- Arakel, E. C., et al. Tuning the electrical properties of the heart by differential trafficking of KATP ion channel complexes. J Cell Sciences. 127 (Pt 9), 2106-2119 (2014).
- Richards, M. A., et al. Transverse tubules are a common feature in large mammalian atrial myocytes including human. Am J Physiol Heart Circ Physiol. 301 (5), H1996-H2005 (2011).
- Trafford, A. W., Clarke, J. D., Richards, M. A., Eisner, D. A., Dibb, K. M. Calcium signalling microdomains and the t-tubular system in atrial mycoytes potential roles in cardiac disease and arrhythmias. Cardiovasc Res. 98 (2), 192-203 (2013).
- Greiser, M., Schotten, U. Dynamic remodeling of intracellular Ca2+ signaling during atrial fibrillation. J Mol Cell Cardiol. 58, 134-142 (2013).
- Voigt, N., Zhou, X. B., Dobrev, D. Isolation of human atrial myocytes for simultaneous measurements of Ca2+ transients and membrane currents. J Vis Exp. (77), 10-3791 (2013).
- Kaestner, L., et al. Isolation and genetic manipulation of adult cardiac myocytes for confocal imaging. J Vis Exp. (31), (2009).
- Louch, W. E., Sheehan, K. A., Wolska, B. M. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 51 (3), 288-298 (2011).
- King, N. M., et al. Mouse intact cardiac myocyte mechanics cross-bridge and titin-based stress in unactivated cells. J Gen Physiol. 137 (1), 81-91 (2011).
- Schindelin, J., et al. Fiji, an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., Fernandez-Gonzalez, R., Munoz-Barrutia, A., Ortiz-De-Solorzano, C. 3D reconstruction of histological sections Application to mammary gland tissue. Microsc Res Tech. 73 (11), 1019-1029 (2010).
- Liu, Z. Q. Scale space approach to directional analysis of images. Appl Opt. 30 (11), 1369-1373 (1991).
- Powell, T., Twist, V. W. A rapid technique for the isolation and purification of adult cardiac muscle cells having respiratory control and a tolerance to calcium. Biochem Biophys Res Commun. 72 (1), 327-333 (1976).
- Watanabe, Y., et al. Inhibitory effect of 2,3-butanedione monoxime (BDM) on Na(+)/Ca(2+) exchange current in guinea-pig cardiac ventricular myocytes. Br J Pharmacol. 132 (6), 1317-1325 (2001).
- Kohl, T., Westphal, V., Hell, S. W., Lehnart, S. E. Superresolution microscopy in heart - cardiac nanoscopy. J Mol Cell Cardiol. 58, 13-21 (2013).
重印与许可
