本实验方案的目的是在气液界面条件下,将人源类器官三维支气管和鼻组织模型暴露于香烟主流烟雾(CS)中。随后通过细胞色素P450活性检测、纤毛搏动测量以及系统生物学方法,评估烟雾对组织的影响。
本文内容
摘要
摘要
香烟烟雾(CS)对肺部生物学具有重大影响,可能导致慢性阻塞性肺疾病或肺癌等肺部疾病的发生。为了理解疾病发生背后的机制,直接研究香烟烟雾暴露对肺组织的影响显得尤为重要。然而,这种方法在流行病学研究中难以实施,因为肺组织取样过程复杂且具有侵入性。相比之下,组织培养模型有助于评估暴露因素对肺组织的影响。传统的浸没式二维细胞培养模型,如正常人支气管上皮(NHBE)细胞培养,已被广泛用于此类研究。然而,这类模型无法以与体内相似的方式直接暴露于烟雾中 体内 暴露情况。近年来开发的3D组织培养模型能更真实地反映 体内 由于可以在气液界面(ALI)培养,因此能够模拟这种状态。其基底侧浸没在培养基中,而顶端侧则暴露于空气中。此外,包含多种类型细胞的类器官组织培养物更能真实地反映组织的生理状态。 体内在此研究中,采用了一种 体外 展示了一种暴露系统,用于将人源类器官支气管和鼻组织模型暴露于主流香烟烟雾(CS)中。通过检测纤毛搏动频率以及细胞色素P450酶(CYP)1A1/1B1的活性,评估CS对组织的功能影响。此外,为在分子水平上考察CS诱导的改变,对暴露后的组织进行了基因表达谱分析。与空气暴露组相比,CS暴露组组织中CYP1A1/1B1活性略有升高。基于网络分析和转录组学的系统生物学方法具有足够的稳健性,能够揭示CS引起的异源物质代谢相关改变,这些改变与从吸烟者获取的支气管和鼻上皮细胞中观察到的变化相似。
引言
肺部直接且持续地暴露于吸入的空气,这些空气中可能含有多种有毒物质,例如污染物和香烟烟雾(CS)的成分。在研究这些有毒物质暴露对呼吸组织的影响时,若采用模拟真实暴露条件的方式进行,所得结果最具信息价值 体内 暴露。与经典的二维浸没式细胞培养(例如,正常人支气管上皮细胞(NHBE),三维类器官组织模型能更真实地再现人呼吸道上皮的形态学、生理学和分子特征 体内1,23D 组织模型包含了所观察到的多种细胞类型 体内,包括分化的上皮细胞、纤毛细胞和非纤毛细胞、杯状细胞以及基底细胞。它们具有功能性的紧密连接,并表现出黏液纤毛表型。 1-3此外,可将细胞培养于多孔透性膜上,形成气液界面,从而使细胞顶面直接暴露于气溶胶中(而基底面则浸没在培养基中)。 3-5Dvorak 及其同事报道,支气管组织模型的基因表达谱与从人支气管刷检样本获得的基因表达谱相似 3此外,Mathis 及其同事表明,这些组织模型对香烟烟雾(CS)的反应与从吸烟者和非吸烟者获取的支气管上皮细胞之间观察到的差异相似。 6最后,由于支气管组织模型可培养长达数月之久 4,5它们可能可用于研究测试物品长期暴露的影响。
在化学物质刺激后或评估特定化合物或混合物的毒性时,细胞毒性评估是常见的检测指标。例如,可通过发光法检测细胞膜完整性,从而测定化合物对细胞培养物产生的剂量依赖性细胞毒性效应7。然而,为了评估化合物在亚毒性浓度下的病理生理效应,还需测量其他参数。例如,通过跨上皮电阻(TEER)检测法测定组织完整性,可反映紧密连接的功能状态,并监测上皮层的破坏情况8,9。纤毛摆动频率也可用于评估香烟烟雾(CS)对呼吸组织的影响。呼吸道上皮纤毛的正常摆动频率对于防御气道感染至关重要10。呼吸上皮的每根柱状纤毛上皮细胞均具有200–300根纤毛,以特定频率摆动,清除被散在分布的杯状细胞所分泌黏液捕获的病原体或吸入的颗粒物11。香烟烟雾中含有可抑制纤毛摆动的化学物质12,导致呼吸道防御能力下降。本研究显示,可在类器官组织模型中检测纤毛摆动频率。该方法可用于评估上皮细胞在类器官组织培养中是否维持其正常功能。香烟烟雾还可激活呼吸系统中外源性物质代谢反应,以代谢烟草烟雾中的成分13。可检测组织模型中I相外源性物质代谢酶CYP1A1和CYP1B1的活性。此外,如先前报道,可在类器官支气管组织模型中检测全基因表达谱6,14,15。本研究采用转录组学数据结合基于网络的系统生物学方法,评估香烟烟雾对外源性物质代谢的影响15。
本文详细介绍了使用体外暴露系统将原代三维支气管和鼻部组织模型暴露于主流香烟烟雾(CS),并与新鲜空气暴露(对照)进行比较,以检测组织对暴露反应的方法学。
方案
1. 器官型组织支气管培养模型的培养
注意:重建的组织模型以可直接使用的插入式培养皿形式购买。或者,也可使用原代细胞自行构建培养体系,具体方法可参见 Karp 及其同事的描述16。组织以无菌包装形式收到后,始终应在无菌条件下操作人源类器官组织。
- 在生物安全柜中,向新的无菌24孔板的每个孔中加入0.7 ml预热(37 °C)的检测培养基。
- 在生物安全柜中拆开组织包装,并将组织培养插件转移至新准备的24孔板中(如步骤1.1所述)。
- 将组织置于37 °C培养箱中(5% CO2,90%湿度)进行维持和培养。
- 每2天更换一次培养基。
- 在更换培养基时,使用光学显微镜检查组织,以确保无污染且无培养基渗漏。
2. 使用体外暴露系统进行香烟烟雾(CS)暴露
- 暴露实验前3天,用200 µl培养基清洗组织培养物的顶侧。
- 暴露当天,若计划在暴露前测量纤毛搏动,则按照第3节所述操作组织进行纤毛搏动测量。
- 将体外暴露系统的气候室和培养基底模块预热至37 °C。每行培养基底模块中加入17.5 ml培养基。
- 从培养箱中取出组织,在生物安全柜中将组织培养小室从培养板转移至体外暴露系统的培养基底模块中,并用玻璃盖盖住培养基底模块。
- 将组织转移至体外暴露系统的气候室内,进行主流烟气(CS)暴露。
- 如果体外暴露系统配备微量天平,在开始暴露前设置石英晶体微量天平,使用微量天平软件实时测量烟雾颗粒在石英晶体上的沉积情况。
- 更换连接至稀释/分配系统每行的微量天平模块中的晶体。
- 将微量天平模块连接至微量天平软件,并在软件中将测量量程调零。
- 根据实验方案进行组织暴露(例如,如图1所示)
注意:暴露前,参照ISO标准3402,将参考香烟(3R4F)在22 ± 1 °C、相对湿度60 ± 3%的受控条件下平衡7至21天。- 使用30孔转盘式吸烟机,按照加拿大卫生部强化抽吸模式产生香烟烟雾(例如,来自3R4F香烟):以每分钟两次、每次55 ml持续2秒的抽吸量,抽吸至标准烟蒂长度(即,约35 mm),泵排气时间为8秒。
注意:如有必要,稀释主流烟气以避免剂量毒性过高。本研究中报告的结果采用16%(vol/vol)的稀释浓度。 - 对照样本使用60%湿度的空气(空气暴露)。
- 在体外暴露系统中对组织进行6–7分钟 (即,1支香烟或空气暴露)的暴露。
- 将组织放回37 °C培养箱(5% CO2,90%湿度)中孵育1小时。
- 重复步骤2.7.3和2.7.4共三次。
- 使用30孔转盘式吸烟机,按照加拿大卫生部强化抽吸模式产生香烟烟雾(例如,来自3R4F香烟):以每分钟两次、每次55 ml持续2秒的抽吸量,抽吸至标准烟蒂长度(即,约35 mm),泵排气时间为8秒。
- 暴露实验结束后,停止微量天平软件运行。软件将生成包含所有测量数据及颗粒沉积图示的文件。
- 将组织从培养基底模块转移回培养板,并放回37 °C培养箱(5% CO2,90%湿度)中,直至在特定暴露后时间点进行各项终点指标的测量。
3. 纤毛搏动的测量
注意: 根据实验设计(图1),在暴露前和暴露后立即记录纤毛搏动情况。
- 从培养箱中取出组织培养板,置于超净台内室温(RT)环境中静置30分钟 ,以稳定纤毛摆动。
- 将组织置于连接CiliaMetrix软件的光学显微镜下。
- 记录纤毛摆动的视频及其频率(单位:赫兹)。每3秒测量一次频率,持续1分钟。
- 将组织放回37 °C(5% CO2,90%湿度)的培养箱中。
4. 跨上皮电阻(TEER)测量
注意:在实验开始前3天以及48小时后进行TEER的测量 在生物安全柜内,使用连接至伏特-欧姆表的筷子状电极(STX-2),于无菌条件下暴露后进行检测。
- 向人支气管组织的顶侧表面加入 200 µl 培养基。
- 打开 EVOMX 仪器,用 70% 乙醇溶液清洗电极。
- 用培养基冲洗电极。
- 将电极插入组织培养物顶侧的培养基中,测量电阻(Ω),注意勿接触组织。
- 重复步骤 4.4 共五次,以获得五个重复测量值。
- 测量完成后,使用吸液器轻轻移除组织培养物顶侧的培养基。
- 将组织培养物放回培养箱中,在 37 °C(5% CO2,90% 湿度)条件下继续培养。
5. 细胞色素P450(CYP)1A1/1B1活性
- 在研究开始前,根据生产商说明书,将适当体积的复溶缓冲液全部转移至含有荧光素检测试剂的棕色瓶中,配制荧光素检测试剂。将试剂分装为每份2 ml,于-20 °C保存,最长保存1个月。
- 对于暴露后48小时的时间点,在香烟烟雾(CS)暴露后,将组织于37 °C继续孵育48小时。
- 将荧光素检测试剂恢复至室温(RT)。
- 将组织插入物在基础培养基中与荧光素-CEE底物(按1:50稀释)共同孵育3小时或过夜(O/N)。
- 在室温下,从每个组织插入物中转移50 µl培养基至96孔不透明白色发光检测板中。
- 向每孔中加入50 µl荧光素检测试剂,以启动发光反应。
- 将检测板于室温孵育20分钟。
- 使用发光仪读取发光信号。
注意:使用发光仪时,建议每孔积分时间为0.25–1秒 作为参考。
6. RNA 提取。
- 在收集三维类器官组织插入物之前,准备好以下物品:1)装有干冰的盒子,2)足够数量的刀片(每个三维插入物使用一个),3)不含氯化钙和氯化镁的冷PBS缓冲液,4)一支25 ml玻璃移液管,以及5)用于抽吸的无菌玻璃针。
- 标记装有陶瓷珠的用于均质化固体细胞样品的离心管,并加入700 µl Qiazol裂解液。
- 打开抽吸装置。
- 从培养箱中取出含有三维类器官组织插入物的培养板。
- 用冷PBS缓冲液在培养板上对每个插入物清洗3次。每次清洗之间使用玻璃针抽吸PBS。第三次清洗后,抽吸PBS并盖好培养板,防止插入物干燥。
- 对于培养板上的每个插入物,将其膜(三维组织插入物所在位置)切割下来,直至膜平整地贴附在刀片上。
- 将组织(连同插入膜)从刀片转移至已正确标记的均质化管中,拧紧管盖,轻轻振荡并涡旋混匀。
- 将样品置于干冰中速冻,随后保存于-80 °C冰箱中,或直接进行RNA提取。
注意:在开始RNA提取前,应根据随机化设计方案(如适用)标记所有离心管和纯化柱;按照试剂盒说明书配制所有试剂;从-80 °C冰箱中取出样品并在冰上解冻,直至完全融化。
- 均质化
- 使用均质化仪器在6000 Hz条件下研磨样品45秒。若样品未充分均质化,可重复一次,之后将样品在室温下静置5分钟。
- 向样品中加入140 µl氯仿,涡旋10–15秒。
- 将均质化管中的上清液转移至相分离管(Phase lock tube)中,在恒温振荡器上以1400 rpm振荡2分钟,温度保持在室温。
- 继续在室温下孵育2分钟,随后在4 °C条件下以12,000 × g离心15分钟。
- RNA沉淀、洗涤、重悬及在QIAcube仪器中的纯化
- 将上层水相转移至新的2 ml离心管中。
- 根据制造商提供的操作说明,将所有必需试剂装载到提取机器人中,选择合适的提取程序,设定洗脱体积(30 µl),然后运行提取程序。
- 程序结束后,取下转子适配器,立即将洗脱管置于4 °C保存以备后续分析,或置于-80 °C长期保存。
- 分离RNA的质量控制
- 按照制造商说明书,使用紫外分光光度计测定所分离RNA的浓度。
- 根据制造商说明书,利用基于微流控凝胶芯片系统和紫外分光光度计检测RNA的质量和完整性。
7. 芯片实验流程
注意:以下所述过程主要针对Affymetrix GeneChip高通量3’IVT Express试剂盒的方法,该试剂盒用于从RNA制备开始,至使用复杂液体处理系统为止,为Affymetrix 3’基因表达芯片杂交提供靶标合成例如移液、稀释、分液或整合
- 样品制备
- 对样品进行随机化处理,以避免批次效应。每批次处理的样品数量为1至96个,每批次包含一个阳性对照(商用人类通用参考RNA)和一个阴性对照(RNase-free水)。
- 使用3 µl无RNase的水中含100 ng总RNA开始靶标合成。对于100 ng总RNA,孵育时间为16小时。
- RNA扩增
- 通过将Poly-A RNA原液用Poly-A对照稀释缓冲液进行系列稀释,制备Poly-A RNA spike-in对照溶液:
- 稀释1:将2 µl Poly-A对照原液加入36 µl稀释缓冲液中。
- 稀释2:将2 µl稀释1溶液加入98 µl稀释缓冲液中。
- 稀释3:将4 µl稀释2溶液加入196 µl稀释缓冲液中。
- 稀释4:将20 µl稀释3溶液加入180 µl稀释缓冲液中。
- 将RNA用无RNase水稀释至浓度为33.3 ng/µl。
- 在96孔板中,直接向3 µl总RNA样品中加入2 µl Poly-A对照溶液。此步骤由液体处理系统完成。
- 准备液体处理系统和靶标合成程序。将板放置在机器人上,并将所有所需试剂和实验耗材放置于工作台上。机器人将自动配制相应的主混合液,并在远程控制的自动化PCR模块中孵育样品。
- 第一次质量控制检查:扩增过程控制
- 若aRNA质量合格,则向每个样品中加入8 µl 5X片段化缓冲液进行片段化步骤(此步骤由液体处理系统完成)。若不合格,则从RNA起始步骤重新执行前述操作。片段化后的aRNA应立即使用,或未稀释状态下于-20 °C保存(长期保存可置于-70 °C)。
- 随机选取板中12个样品,取1 µl转移至基于微流控凝胶的系统,进行第二次质量控制分析,以检测片段化效率。
- 通过将Poly-A RNA原液用Poly-A对照稀释缓冲液进行系列稀释,制备Poly-A RNA spike-in对照溶液:
- 杂交程序
- 扫描芯片条形码,并根据制造商软件说明在软件中注册每个样品。
- 按以下方式配制杂交混合液(单个反应),并将其加入33 µl已片段化并标记的aRNA中:3nM的对照寡核苷酸B2 4.2 µl、20x真核杂交对照12.5 µl、100% DMSO 25 µl、2x杂交缓冲液125 µl、H2O 50 µl,最终体积为216.7 µl
注意:在处理样品前,应先对阳性和阴性对照进行杂交、洗涤和扫描。 - 使用杂交洗涤与染色试剂盒中的预杂交混合液200 µl预湿芯片。
- 将芯片置于设定为45 °C、60 RPM的杂交炉中,孵育10分钟。
- 同时,在PCR模块中将含有最终杂交混合液的板于99 °C变性5分钟,再于45 °C孵育5分钟。
- 从芯片中移除预杂交混合液,并替换为200 µl杂交混合液(每芯片对应一个样品)。
- 将芯片放入设定为45 °C、转速60 RPM的杂交炉中孵育16小时(过夜)。
- 洗涤与染色
- 从软件菜单栏运行“Fluidics”程序。在Fluidics对话框中选择目标模块(1–4),然后为所有模块选择Prime_450程序。将Wash Buffer A的管路插入装有400 ml缓冲液的瓶子中,Wash Buffer B插入200 ml瓶子中,MilliQ水插入500 ml瓶子中。
- 随后按照LCD屏幕提示操作。抬起针头,在位置#1和#2分别放置含有600 µl染色混合液1(SAPE溶液混合液)和600 µl染色混合液2(抗体溶液混合液)的微量离心管,在位置#3放置900 µl芯片保存缓冲液。
- 过夜孵育后,从芯片中吸出混合液,并用250 µl Wash Buffer A填充微阵列。为每个模块分配正确的芯片,选择FS450-001程序,并根据屏幕提示运行各模块。该过程持续90分钟。
- 当LCD屏幕显示“Eject Cartridge”提示时,取出芯片并检查是否存在气泡。若发现气泡,需用芯片保存缓冲液完全填充芯片。在隔膜上贴上密封贴纸,防止扫描仪中发生泄漏,并在加载至扫描仪前清洁微阵列窗口。
- 扫描
- 预热扫描仪。将芯片装入扫描仪的自动进样器中并开始扫描。
注意:每芯片约12分钟后生成一个.CEL文件。 - 检查图像,并根据需要将网格对齐至斑点,以识别探针细胞。
注意:该数据集已提交至ArrayExpress数据库(登录号 = E-MTAB-1721)。
- 预热扫描仪。将芯片装入扫描仪的自动进样器中并开始扫描。
8. 基于网络的系统生物学分析用于影响评估
- 基因芯片数据处理。
注意:数据处理和评分方法使用 R 统计环境版本 2.14 实现。- 启动 R 18 会话,并通过运行以下命令加载已安装的 affy 19、gcrma 和 affyPLM 软件包:library(affy) > library(gcrma) > library(affyPLM)
- 运行命令读取原始数据文件:data.affybatch<-ReadAffy(“存储 CEL 文件的文件夹路径”)
- 使用 gcrma 软件包运行命令,进行背景校正和分位数归一化,以生成探针集表达值:eset.norm<-gcrma(data.affybatch)
- 质量控制。
- 使用命令生成 RNA 降解图:deg<-AffyRNAdeg(data.affybatch)
- 运行命令提取 RNA 降解斜率的系数:slope=deg$slope
- 绘制斜率系数图,并识别可能的离群值。
- 运行以下命令生成 NUSE 和 RLE 图:Pset<-fitPLM(data.affybatch) > RLE(Pset) > NUSE(Pset)。
- 判断生成的箱线图中是否存在离群值:若以下定义的三个质量控制指标中至少有两个与其他样本偏离,则认为该芯片为离群值:
- deg$slope 与平均 deg$slope 不同
- NUSE 图:若上四分位数低于 0.95 或下四分位数高于 1.05,则认为该芯片为离群值,即,若箱线图整体高于 1.05 或整体低于 0.95
- RLE 图:若 RLE 分布的中位数大于 0.1 或小于 -0.1,则认为该芯片为离群值。 - 若某芯片被识别为离群值,则将其剔除,并从步骤 8.1.2 重新开始。
- 针对感兴趣的特定对比(即,“处理”与“对照”条件的比较),对数据拟合整体线性模型,为微阵列上的每个探针集生成原始 P 值,后续可使用 Limma 软件包中的 Benjamini-Hochberg 方法进行校正。按照第 20 步所述方法,为每个基因选择一个代表性探针集用于后续分析。
注意:在数据处理模型中已考虑实验设计中的一个区组因子(暴露板)。
- 基于网络的分析。
注意:此处实现的方法在 Martin 等人(正在 BMC Bioinformatics 审稿中)中有详细描述。- 对于每一个感兴趣的成对比较,从网络中每个基因计算得到的(log2)倍数变化(处理组 vs. 对照组)开始(来自步骤 8.2)。
- 计算网络的带符号拉普拉斯矩阵 L,定义如下:若节点 i 与 j 之间存在权重为 w(i,j) 的边,则 L(i,j) = -sign(i~j)w(i,j);L(i,i) = deg(i) 为节点 i 的加权度;其余情况下 L(i,j) = 0。权重 w(i,j) 在 i 和 j 均属于骨干网络时等于 1;当 i 为骨干节点,j 为其转录层中的 n 个邻居之一时,w(i,j) = 1/n。
- 通过 f = L3⁻¹L2ᵀx 计算骨干网络的得分,其中 L3 是 L 中对应于骨干节点的子矩阵,L2 是 L 中行对应转录层节点、列对应骨干节点的子矩阵。
- 计算骨干网络的带符号拉普拉斯矩阵 Q,其中所有边的符号均被反转。
- 通过 NPA = fᵀQf 计算 NPA 得分。
- 计算置信区间、骨干边置换 P 值和转录层置换 P 值。
注意:除了考虑实验误差(例如,实验组内样本间的生物学变异)的 NPA 得分置信区间外,还推导出辅助统计量以描述 NPA 得分对网络中所述生物学特异性的程度。由于 NPA 是倍数变化的二次型,其方差可根据倍数变化估计的方差计算,并基于中心极限定理进一步推导出置信区间。实施了两种置换检验 21:第一种用于评估结果是否特异于模型中的基础证据(即,基因倍数变化),从而得到置换 P 值(当 P 值 < 0.05 时在图中用 *O 表示);第二种用于评估网络的“因果”层是否显著影响网络扰动的幅度(当 P 值 < 0.05 时在图中用 K* 表示)。 - 若置信区间不包含零,且两个置换 P 值均 < 0.05,则认为该网络受到处理的影响。
- 计算主导节点,即对 NPA 得分贡献达到 80% 的关键骨干节点。
结果
在下文所述结果中,类器官组织由来自健康、非吸烟白人供体的原代人上皮细胞分离获得,并使用成纤维细胞重建15。
3D 支气管和鼻腔组织模型
体外 支气管和鼻部类器官模型在细胞水平上类似于人类呼吸道上皮组织(图2).
香烟烟雾(CS)暴露
在气液界面处,可对支气管和鼻部类器官组织模型进行重复的主流烟雾(CS)暴露。本研究结果所采用的烟雾暴露实验流程如图1所示。
记录纤毛摆动
如视频所示,在暴露于空气的组织中记录纤毛摆动。与假暴露组及暴露前相比,香烟烟雾(CS)暴露与纤毛摆动频率降低相关:在假暴露组及暴露前约4 Hz处观察到的较强峰值,在香烟烟雾暴露后不再出现(图3)。这种频率的降低将导致纤毛清除黏液和病原体的效率下降22。
跨上皮电阻(TEER)和CYP1A1/1B1活性的测定
在末次暴露后 48 小时测量 TEER,以确保组织仍具有功能。CYP1A1/1B1 活性也在暴露结束 48 小时后进行测量,如图所示。 图1. 与空气暴露组组织相比,CS暴露组组织的TEER值无显著差异,表明在此浓度下烟雾无明显细胞毒性作用。暴露后48 h,组织的CYP1A1/1B1活性略有升高,提示暴露后组织防御机制轻度增强(图4).
基因表达谱及基于网络的系统生物学方法研究香烟烟雾暴露对异源物质代谢改变的影响
在暴露后 48 小时时间点采集组织。随后进行微阵列分析,以获得香烟烟雾(CS)暴露组与空气暴露组组织的基因表达谱。利用基于网络的系统生物学方法,结合基因表达谱数据并参照先前报道,研究香烟烟雾暴露对异源物代谢的影响 15. 采用基于网络的系统生物学方法表明,香烟烟雾暴露对异生物质代谢网络模型中骨架节点水平的影响在不同样本间具有良好的相关性 体外 和 体内 数据集(图5)。相比之下,在各个单个基因表达变化的水平上,观察到的相关性较差 体外 (CS暴露组与空气暴露组)以及 体内 (吸烟者与非吸烟者)
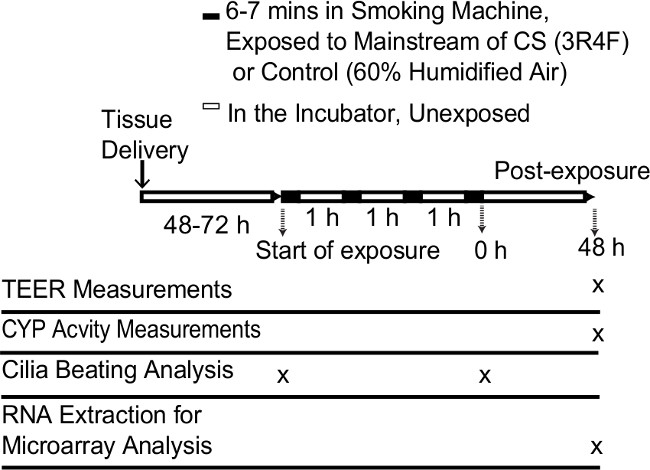
图1. 香烟烟雾对类器官支气管组织模型重复暴露的示意图。 缩写:CYP,细胞色素P450;CS,香烟烟雾;TEER,跨上皮电阻。
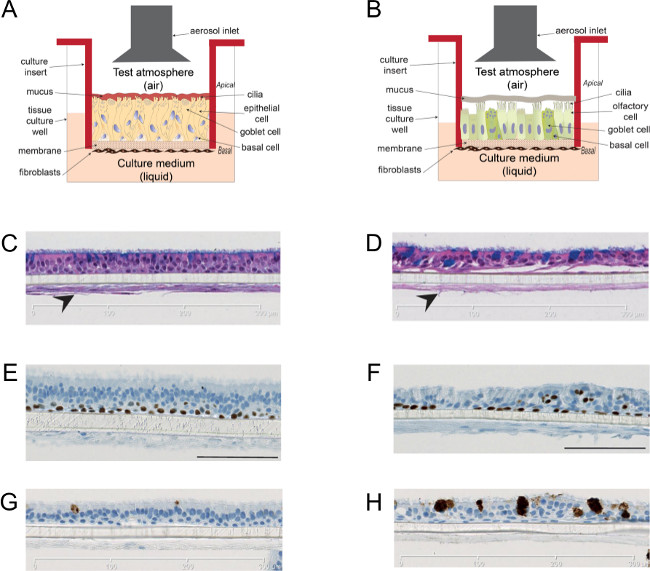
图 2. 支气管和鼻腔上皮组织的类器官培养模型。 示意图展示了支气管 (A) 和鼻腔 (B) 组织培养小室在气液界面的设置方式。体外 模型包含纤毛细胞,如苏木精与伊红染色细胞的顶端层所示(支气管为 C,鼻腔为 D),结果与先前报道一致15。该模型与成纤维细胞共培养,成纤维细胞对上皮细胞的生长和分化具有重要作用(箭头所示)。气道谱系标志物染色结果:p63(支气管为 E,鼻腔为 F)和 Muc5AC(支气管为 G,鼻腔为 H)显示如前所述15。请点击此处查看该图的放大版本。
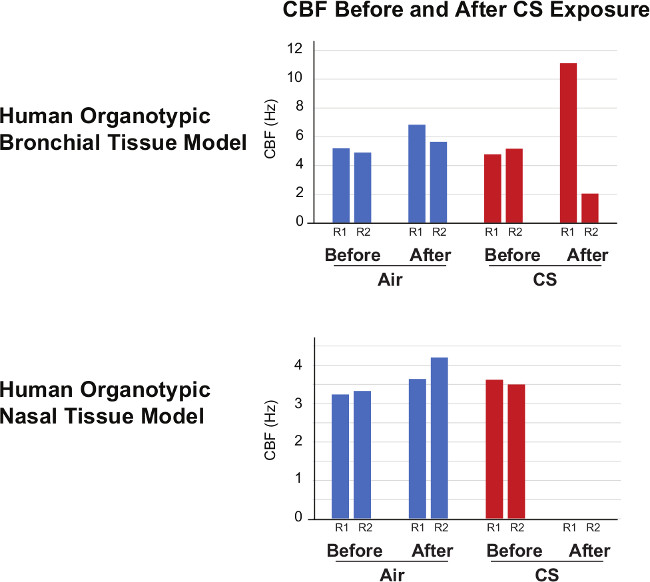
图3. 纤毛摆动频率。 在空气暴露组以及培养体系中,分别于暴露前后检测纤毛摆动频率(CBF)。暴露于香烟烟雾(CS)后,CBF下降(显示了两个插入膜上的代表性结果,分别为重复1(R1)和重复2(R2))。
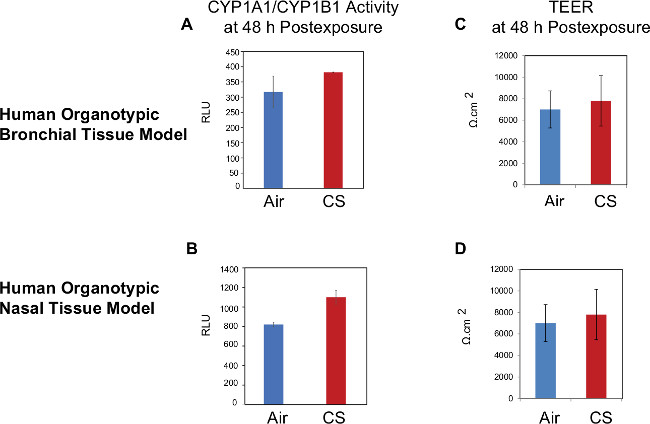
图4. CYP1A1/CYP1B1 活性与跨上皮电阻(TEER)的测定。 左侧图示支气管 (A) 和鼻腔 (B) 组织模型中 CYP1A1/CYP1B1 的活性。右侧图示支气管 (C) 和鼻腔 (D) 组织模型的 TEER 测量结果。数据以均值 ± 标准差表示。缩写:CS,香烟烟雾;CYP,细胞色素P450;TEER,跨上皮电阻;RLU,相对发光单位。
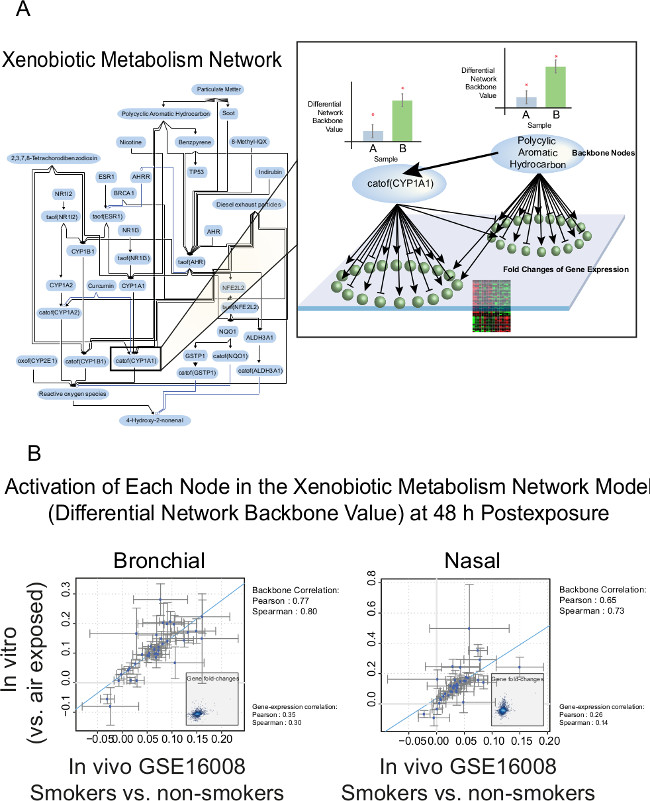
图 5. 基于网络的系统生物学方法用于评估香烟烟雾(CS)暴露对异生物质代谢的影响。 基因表达水平的变化被用于计算异生物质代谢网络模型中骨架节点的激活状态(A),该方法如先前发表的研究中所述15。右侧图示说明了使用网络扰动幅度(NPA)方法对骨架节点进行量化(也称为“差异网络骨架值”)的概念。蓝色椭圆代表骨架节点的活性(即,功能层),绿色球体代表基因的表达(即,转录层)。比较了在暴露后48小时,香烟烟雾(CS)对类器官支气管组织(体外,CS暴露组与空气暴露组)的影响与吸烟对人体支气管上皮(通过支气管镜采集)和鼻上皮(通过刮取下鼻甲获取,GSE16008)的影响(体内,吸烟者与非吸烟者)(B)。插图:体外与体内数据集之间基因表达变化的相关性。缩写:CS,香烟烟雾(cigarette smoke);NPA,网络扰动幅度(network perturbation amplitude)。请点击此处查看该图的放大版本。
讨论
在此,我们展示了人源类器官支气管和鼻组织模型在评估反复暴露于香烟烟雾(CS)影响方面的适用性。作为动物实验的替代方案,已开发出多种暴露系统,用于气溶胶暴露的毒理学评估。 体外 (例如,Vitrocell,Cultex,ALICE等)。这些暴露模块也可用于对空气污染物、空气颗粒物、纳米颗粒等进行毒理学评估。在本研究中,我们采用了Vitrocell系统,该系统可同时容纳多达48个不同的样品,从而支持更大规模的实验,并降低处理组之间的变异性。每次气溶胶暴露 体外组织培养污染的风险仍然是一个主要问题,必须在整个实验过程中谨慎操作组织培养物以降低该风险。
在暴露实验期间,利用微量天平实时测量颗粒物沉积量,可监测暴露系统产生的香烟烟雾(CS)剂量是否符合预期。为确保颗粒物沉积量测量的准确性,暴露前正确设置在线测量系统至关重要。 例如,将量程调至0。此外,由于微量天平的面积(cm2)以及组织培养小室(0.33 cm²)2),我们将最终计算结果校正为培养插件的面积:微天平上沉积量的仅有33%反映了培养插件内的实际沉积量。
测量经上皮电阻(TEER)以确定紧密连接屏障功能并评估上皮层的破坏情况,是一种相对容易实施的方法,本文对此进行了报道。然而,由于支气管和鼻组织模型中含有分泌黏液的杯状细胞,因此在进行TEER测量前必须进行顶端冲洗。这一步骤至关重要,因为黏液层的存在及其厚度的变异性可能会影响TEER测量结果,从而干扰香烟烟雾(CS)暴露效应的评估。这一观点与Hilgendorf及其同事的研究结果一致,他们发现Caco-2细胞的通透性会因与分泌黏液的杯状细胞系HT29共培养而受到影响23。必须在TEER测量前将黏液冲洗干净,因为若在暴露前立即进行顶端冲洗,可能会干扰组织对CS的反应。因此,TEER测量应在暴露前3天进行,而不是在暴露前立即进行。
我们证明了在香烟烟雾(CS)暴露后,可以从类器官培养模型中检测到CYP1A1/CYP1B1的活性,尽管CS仅使该活性轻微升高。通过延长CYP1A1/1B1底物的孵育时间,可增强这一微弱信号。即,例如孵育24小时(数据未显示)。本研究中CYP活性测定的一个局限性在于未对CYP蛋白水平或细胞数量进行归一化处理,未来的研究可考虑纳入这些因素,以确保酶活性的变化不受蛋白水平或细胞数量变化的影响。
我们报道了香烟烟雾(CS)暴露抑制了鼻腔和支气管组织模型中的纤毛摆动。在多种哺乳动物和非哺乳动物模型中也观察到了类似现象12。在进行纤毛摆动频率测量时,确保组织以相似的方式处理和操作至关重要;例如,如果实施了培养基更换,应统一应用于所有样本。Sutto 及其同事报道,pH 值会影响哺乳动物纤毛的摆动频率24。因此,在比较经不同化合物/混合物处理的细胞之间的摆动频率时,应考虑调节pH值,以尽量减少纤毛摆动测量的变异性。此外,测量时的温度也至关重要,因为纤毛摆动频率会随温度降低而下降。为尽量减少这些因素引起的变异性,本研究使用了配备温度、CO2和湿度控制的载台式培养箱。尽管如此,我们仍观察到香烟烟雾暴露后支气管组织中的纤毛摆动频率存在高度变异性(即,一个插入物中增加,而另一个插入物中减少),表明暴露后纤毛摆动受到严重干扰。相比之下,我们观察到香烟烟雾暴露后鼻腔组织中无法测得纤毛摆动频率,提示鼻腔组织的反应更为敏感且一致。这与先前一项研究结果一致,该研究表明,与支气管相比,鼻腔组织的解毒能力较低25。
最后,我们证明了在暴露于香烟烟雾(CS)的支气管和鼻部类器官组织模型中,基因表达谱分析能够揭示CS对外源性物质代谢的影响。有趣的是,在支气管和鼻部类器官组织模型中观察到的外源性物质代谢改变 体外 暴露于香烟烟雾(CS)的模型与之相似 体内 吸烟者的情况,详见先前发表的文章 15对于基因表达分析,使用机器人仪器可实现高通量分析。此外,自动化的机器人操作进一步提高了基因表达结果的一致性和准确性。然而,组织样本的快速采集至关重要,以避免RNA在提取过程中发生降解。本文所述的RNA处理和转录组学方法也可应用于 在体 组织样本
披露
本研究由菲利普莫里斯国际公司资助。
致谢
作者感谢 Maurice Smith 和 Marja Talikka 对手稿的审阅。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| MucilAir-人成纤维细胞-支气管 | Epithelix Sárl, 日内瓦, 瑞士 | http://www.epithelix.com/content/view/122/19/lang,zh/ | |
| MucilAir 培养基 | Epithelix Sárl, 日内瓦, 瑞士 | http://www.epithelix.com/content/view/84/16/lang,zh/ | |
| VITROCELL | VITROCELL systems GmbH,德国瓦尔德基尔希 | http://www.vitrocell.com/index.php?Nav_Nummer=2&R= | |
| 3R4F 参考香烟 | 肯塔基大学 | http://www2.ca.uky.edu/refcig/ | |
| 30孔转盘式吸烟机 SM2000 | 菲利普莫里斯国际公司 | ||
| CiliaMetrix 相机和软件 | La Haute É日内瓦高等专业学院(HESGE)管理学院,瑞士 | ||
| Leica DMIL 显微镜 | Leica,Heerbrugg,瑞士 | ||
| LED 光源 | Titan Tool Supplies,纽约州布法罗 | ||
| 筷子电极 STX-2 | World Precision Instruments | http://www.wpiinc.com/products/physiology/stx2-chopstick-electrode-set-for-evom2/ | |
| EVOMXTM 上皮伏特计 | World Precision Instruments | http://www.wpiinc.com/products/physiology/evom2-evom2-epithelial-voltohmmeter-for-teer/ | |
| 荧光素检测试剂 | |||
| MagNA Lyser 仪器 | 罗氏 | http://www.roche.com/products/product-details.htm?region=us&产品类型&id=66 | |
| 氯仿 | Sigma-Aldrich | http://www.sigmaaldrich.com/catalog/product/sial/288306?lang=en&区域= | |
| QIAcube | Qiagen | 9001882 | |
| NanoDrop | Thermo Scientific | http://www.nanodrop.com/ | |
| Agilent 2100 Bioanalyzer | 安捷伦 | http://www.genomics.agilent.com/zh/Bioanalyzer-系统/2100-Bioanalyzer-仪器/?cid=AG-PT-106 | |
| Affymetrix GeneChip 高通量 3’IVT Express试剂盒 | Affymetrix | http://www.affymetrix.com/catalog/prod370001/AFFY/High-Throughput-(HT)-Whole-Transcript-(WT)-Kit | |
| Scanner 3000 7G | Affymetrix | http://www.affymetrix.com/catalog/131503/AFFY/Scanner-3000-7G |
参考文献
- Pezzulo, A. A., et al. The air-liquid interface and use of primary cell cultures are important to recapitulate the transcriptional profile of in vivo airway epithelia. American Journal of Physiology - Lung Cellular and Molecular Physiolog. 300, L25-L31 (2011).
- Pampaloni, F., Reynaud, E. G., Stelzer, E. H. The third dimension bridges the gap between cell culture and live tissue. Nature reviews Molecular cell biolog. 8, 839-845 (2007).
- Dvorak, A., Tilley, A. E., Shaykhiev, R., Wang, R., Crystal, R. G. Do airway epithelium air–liquid cultures represent the in vivo airway epithelium transcriptome. American journal of respiratory cell and molecular biolog. 44, 465(2011).
- Wiszniewski, L., et al. Long-term cultures of polarized airway epithelial cells from patients with cystic fibrosis. American Journal of Respiratory Cell and Molecular Biolog. 34, 39-48 (2006).
- Balharry, D., Sexton, K., BéruBé, K. A. An in vitro approach to assess the toxicity of inhaled tobacco smoke components: nicotine, cadmium, formaldehyde and urethane. Toxicolog. 244, 66-76 (2008).
- Mathis, C., et al. Human bronchial epithelial cells exposed in vitro to cigarette smoke at the air-liquid interface resemble bronchial epithelium from human smokers. Am J Physiol Lung Cell Mol Physio. 304, L489-L503 (2013).
- Cho, M. -H., et al. A bioluminescent cytotoxicity assay for assessment of membrane integrity using a proteolytic biomarker. Toxicology in Vitr. 22, 1099-1106 (2008).
- Stewart, C. E., Torr, E. E., Mohd Jamili, N. H., Bosquillon, C., Sayers, I. Evaluation of Differentiated Human Bronchial Epithelial Cell Culture Systems for Asthma Research. Journal of Allerg. 2012, 11(2012).
- Blume, L. F., Denker, M., Gieseler, F., Kunze, T. Temperature corrected transepithelial electrical resistance (TEER) measurement to quantify rapid changes in paracellular permeability. Pharmazi. , 19-24 (2010).
- Chhin, B., et al. Ciliary beating recovery in deficient human airway epithelial cells after lentivirus ex vivo gene therapy. PLoS genetic. 5, e1000422(2009).
- Jiao, J., Meng, N., Wang, H., Zhang, L. Comparison of human nasal epithelial cells grown as explant outgrowth cultures or dissociated tissue cultures in vitro. Front Me. 7, 486-491 (2013).
- Talbot, P. In vitro assessment of reproductive toxicity of tobacco smoke and its constituents. Birth defects research. Part C, Embryo today : review. 84, 61-72 (2008).
- Port, J. L., et al. Tobacco smoke induces CYP1B1 in the aerodigestive tract. Carcinogenesi. 25, 2275-2281 (2004).
- Hoeng, J., et al. A network-based approach to quantifying the impact of biologically active substances. Drug Discov Toda. 17, 413-418 (2012).
- Iskandar, A. R., et al. Systems approaches evaluating the perturbation of xenobiotic metabolism in response to cigarette smoke exposure in nasal and bronchial tissues. Biomed Res In. 2013, 512086(2013).
- Karp, P. H., et al. An in vitro model of differentiated human airway epithelia. Methods for establishing primary cultures. Methods in molecular biolog. 188, 115-137 (2002).
- ISO 3402: Tobacco and tobacco products -- Atmosphere for conditioning and testing. , International Organization for Standardization. (1999).
- R: A Language and Environment for Statistical Computing. , The R Core Team. (2011).
- Gautier, L., Moller, M., Friis-Hansen, L., Knudsen, S. Alternative mapping of probes to genes for Affymetrix chips. BMC Bioinformatic. 5, 111(2004).
- Hermida, L., et al. Confero: an integrated contrast data and gene set platform for computational analysis and biological interpretation of omics data. BMC genomic. 14, 514(2013).
- Thomson, T. M., et al. Quantitative assessment of biological impact using transcriptomic data and mechanistic network models. Toxicology and applied pharmacolog. 272, 863-878 (2013).
- Teff, Z., Priel, Z., Gheber, L. A. The forces applied by cilia depend linearly on their frequency due to constant geometry of the effective stroke. Biophysical journa. 94, 298-305 (2008).
- Hilgendorf, C., et al. Caco-2 versus Caco-2/HT29-MTX co-cultured cell lines: permeabilities via diffusion, inside- and outside-directed carrier-mediated transport. J Pharm Sc. 89, 63-75 (2000).
- Sutto, Z., Conner, G. E., Salathe, M. Regulation of human airway ciliary beat frequency by intracellular pH. The Journal of physiolog. 560, 519-532 (2004).
- Zhang, X., et al. Similarities and differences between smoking-related gene expression in nasal and bronchial epithelium. Physiological genomic. 41, 1-8 (2010).
重印与许可
