一种全细胞生物报告基因检测方法 Burkholderia sartisoli RP037-mChe 被开发用于检测有机污染物的微量成分(即, 在水分不饱和的模型系统中,菌丝跨越充气孔隙进行主动运输后,可供细菌降解的芴(fluorene)。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
污染物的生物可利用性是其在土壤中有效发生生物降解的前提条件。然而,污染物的平均整体浓度并不能准确反映其可利用性;生物可利用性实际上取决于化合物向微生物细胞传递的潜在传质通量(flux)与后者降解该化合物能力之间的动态相互作用。在土壤非饱和含水区域,菌丝已被证明可通过主动运输和迁移有机化合物(迁移距离可达厘米级)来克服生物可利用性的限制。尽管菌丝介导的传输范围可通过化学方法简便地量化,但验证污染物对细菌细胞的生物可利用性则需要采用生物学方法。为解决这一限制,我们选用多环芳烃菲并(FLU)作为模型化合物,构建了一种非饱和水条件下的模型微宇宙系统,该系统通过Pythium ultimum的菌丝网络,将空间上分离的FLU点源与能够降解FLU的生物感应菌Burkholderia sartisoli RP037-mChe连接起来。由于该生物感应菌在多环芳烃向细胞传递时会表达eGFP,因此可通过共聚焦激光扫描显微镜(CLSM)在微宇宙系统中直接监测细菌对FLU的暴露及其降解过程。CLSM及图像分析结果显示,在存在P. ultimum菌丝的情况下,eGFP表达量显著高于无菌丝或无FLU的对照组,表明经菌丝介导的传输后,FLU对细菌具有生物可利用性。在相同微宇宙系统中进行的化学分析结果也支持了CLSM的观察结论。所构建的微宇宙系统适用于研究污染物的生物可利用性,并可同时可视化细菌与菌丝之间的相互作用过程。
引言
土壤中栖息着大量多样的微生物1,2,例如细菌。然而,这种生境中的环境条件十分严苛,尤其是在水分可利用性方面3。细菌在异质环境中需要持续寻找最佳生存条件4,但由于缺乏连续的水膜,其运动能力受到限制5,难以自由扩散。此外,在非饱和条件下,溶质(例如,营养物质)的扩散速率也会降低6。因此,细菌与营养物质常常在物理空间上被分隔,导致营养物质的可获取性受限3。由此看来,一种不依赖连续水相的化学物质运输载体可能有助于克服这些限制。事实上,许多微生物(如真菌和卵菌)已进化出丝状生长形态,能够穿过充满空气的孔隙生长,从而远距离地到达并活化物理上分离的营养物质7和含碳8物质。它们甚至可作为生物运输载体,将糖类及其他能源物质输送给细菌9。在菌丝体生物中,已有研究证实其可吸收并运输疏水性有机污染物,例如在Pythium ultimum10或丛枝菌根真菌11中对多环芳烃(PAH)的运输。由于PAH在土壤中广泛存在且水溶性极低12,菌丝介导的运输可能有助于提高这些污染物对潜在降解细菌的生物可利用性。虽然污染物运输总量可通过化学方法直接定量测定10,但由菌丝运输至降解菌及其他生物的污染物的生物可利用性却难以准确评估。
以下方案介绍了一种直接评估菌丝对污染物在细菌降解菌中生物可利用性影响的方法;该方法可用于获取有关污染物对微生物生态系统时空影响的信息。我们描述了如何通过菌丝运输载体,将物理分离的多环芳烃(PAH)点源与PAH降解型生物报告细菌连接,从而构建一个复杂的非饱和微宇宙系统,以模拟土壤中的气-水界面。由于排除了空气传播途径,因此可以独立研究基于菌丝的运输对PAH在细菌中生物可利用性的影响。具体而言,在所述的微宇宙系统中应用了三环PAH菲、菌丝生物Pythium ultimum以及生物报告菌Burkholderia sartisoli RP037-mChe13。B. sartisoli RP037-mChe最初被构建用于研究菲蒽向细胞的迁移通量14,当PAH进入细胞时会表达增强型绿色荧光蛋白(eGFP),而红色荧光蛋白mCherry则为组成型表达。有关该报告菌构建的详细信息见Tecon et al.13。在初步测试中,该细菌未表现出游动能力,仅具有极缓慢的群集迁移能力。当以高密度悬浮液形式接种于Pythium ultimum菌丝上方时,细菌能够沿菌丝缓慢迁移。但在本方案中,由于细菌被包埋于琼脂糖中,因此未发生沿菌丝的迁移现象。
利用共聚焦激光扫描显微镜(CLSM),可直接在微宇宙系统中观察生物感应细菌,并借助ImageJ软件,通过eGFP表达水平与细胞数量(与mCherry信号成正比)的关系进行定量分析。该方法可用于不同条件下生物可利用性的定性比较。即, 较高或较低)。研究发现,FLU 在经过菌丝运输后仍具有生物可利用性。 P. ultimum (即, 高于阴性对照组)。此外,该方案还描述了如何通过化学方法定量测定菌丝介导的总运输量,并在相同的微宇宙体系中利用硅胶涂层玻璃纤维(SPME纤维)验证污染物的生物可利用性。采用该微宇宙装置的研究结果已发表,并针对以下组合进行了讨论: P. ultimum,芴和 B. sartisoli RP037-mChe15此处重点在于详细的方法描述以及对实验方案中潜在问题的识别,以期为可能的后续应用提供参考。这些应用可能涉及多种真菌和细菌物种(例如, 来自污染场地)及其他污染物(例如, 农药)或污染物供给(例如, 老化土壤
访问受限。请登录或开始试用以查看此内容。
方案
1. 培养皿、载玻片和培养室的准备
- 为每个微宇宙系统准备以下材料:一个大号塑料培养皿底(直径 = 10 cm)、一个经修改的(见步骤 1.2)小号塑料培养皿底(直径 = 5 cm)及其盖子,以及一个带有三个腔室的计数板。
- 取所需数量的小号塑料培养皿底(直径 = 5 cm)。使用锯子切去部分边缘,使其恰好能容纳载玻片(边长 26 mm)。为对系统进行灭菌,将培养皿底和盖浸泡于 70% 乙醇中过夜,随后在超净工作台内经紫外光照射下干燥至少 2 小时。将培养皿存放在密封的塑料容器中,该容器也需经紫外光照射 2 小时。
- 用 70% 乙醇擦拭所需数量的载玻片,并使其自然风干。用铝箔包裹载玻片后放入马弗炉中,在 450 °C 下灼烧 5 小时,以去除可能的污染物。
- 准备带盖的玻璃培养室。用 70% 乙醇清洁后,将开放的培养室置于超净工作台中,经紫外光照射至少 2 小时。
注意:可使用带盖的大号干燥器(直径约 30 cm)作为培养室;每个干燥器最多可容纳十个微宇宙装置。
2. 培养基与培养物的制备
- 为运行20个平行微宇宙系统,需准备100 ml改良型胰蛋白胨-酵母提取物培养基(mTY)14约150 ml的21C最小培养基16 (MM),5 ml 最小培养基琼脂(MMA;0.5%,w/v),三个马铃薯葡萄糖琼脂平板(PDA;1.5%,w/v)用于 P. ultimum,四个空白平板,一个含有2 mg L⁻¹-1 环己酰亚胺,四个含0.3 g ml的琼脂糖平板(3%,w/v)-1 活性炭和40 mg氟西汀(FLU),每次2 mg。
- 制备含 50 mg L 的 mTY-1 卡那霉素(卡那霉素用于维持eGFP报告质粒)以及含10 mM乙酸盐的MM培养基用于细菌培养。使用不含乙酸盐的MM培养基制备0.5% MMA,用于微生态系统中细菌的固定,同时制备每皿20 ml的1.5% PDA平板用于真菌培养。 Pythium ultimum 和微宇宙实验装置。
- 接种一些菌丝 P. ultimum 在三个新鲜的PDA平板上接种,并于暗处25°C培养 25 °C 培养约 72 小时。然后确保培养皿完全被新鲜且蓬松的菌丝覆盖。
- 开始两组培养物 B. sartisoli 从甘油菌种中将RP037-mChe接种于50 ml mTY培养基中。30°C培养 30 °C 以230 rpm转速旋转烧瓶过夜。
- 在 578 nm 处测定培养物的光密度(OD),并在 1,000 × g 下离心 10 分钟(用于 B. sartisoli RP037-mChe,预期的OD578 约为1.0(细胞处于对数生长期)。弃上清液,用适量MM重悬细胞,使OD578 0.4。接种20 ml含有50 mg/L的MM-1 卡那霉素与 400 µl 重悬细胞的。在 30 °C 以230 rpm转速旋转烧瓶过夜。
- 测量 OD578 MM 培养基中的培养 B. sartisoli RP037-mChe,预期的OD578 约为0.2,细胞处于对数生长期早期)。在2,000 × g下离心培养物10分钟,弃上清,用适量MM重悬细胞,使OD值达到0.4。混匀 50 µl 细胞悬液的 500 µl 2 ml 塞满温热液态 MMA 的试管,并储存于 50 °C 直至使用时。使用 150 µl 每个微宇宙中MMA的细胞数量。
- 倒入含有活性炭的琼脂糖凝胶平板。将琼脂糖(3% w/v)溶于双蒸水中,充分熔化后,与活性炭(0.3 g/ml)充分混匀。-1)并将混合物倒入塑料培养皿(d = 10 cm)中。
3. 微型生态系统装置的安装
注意:完整的微宇宙装置示意图见图1。后续所有单独步骤请参考图1。以下步骤描述了含有菌丝运输载体的样品(SAM)以及三种不同对照装置(CONAIR、CONNEG、CONPOS)的制备过程。所有不同装置的汇总见表1。
- 取所需数量的培养皿和载玻片,在超净工作台内用紫外光照射30分钟。
- 将小培养皿放入大培养皿中,并将载玻片插入小培养皿的缝隙中。取一份温热的细胞悬浮液(MMA),吸取150 µl加入到一张载玻片的中央腔室中。重复此步骤,直至所有载玻片的中央腔室均加入MMA。静置5分钟,使MMA凝固。
- 使用直径1 cm的打孔器从空白PDA平板上打取圆形菌饼。将一个菌饼放置在小培养皿内MMA旁边约2 mm处。添加该菌饼以促进实验体系中的菌丝生长(见图1中的PDA 3)。
- 制备弯曲状PDA菌饼作为机械屏障。取一个洁净且无菌的小培养皿底部,压入PDA平板中,再用刮铲在琼脂内侧0.5 cm处切割出一个更小的环形区域,形成一个PDA环。
- 切下一小块恰好能嵌入微宇宙装置中小培养皿缝隙的PDA环,将其放置在载玻片上方的缝隙中。确保MMA与环形PDA屏障之间的距离约为2 mm。轻轻盖上小培养皿的盖子,并将其压入PDA屏障中。
- 使用含2 g L-1放线菌酮的PDA平板重复步骤3.4和3.4.1。
注意:此为控制气载传播(CONAIR)的对照设置,因放线菌酮抑制菌丝生长,可防止其覆盖MMA。
- 使用直径1 cm的打孔器从空白PDA平板上打取圆形菌饼,再用直径0.5 cm的打孔器将第一个菌饼中心挖除,形成一个小PDA环。将该PDA环放置在PDA屏障旁约1 mm处(见图1中的PDA 1)。
- 向PDA 1的孔洞中加入2 mg氟烯烃(FLU)。使用直径1 cm的打孔器从已被P. ultimum菌丝完全覆盖的PDA平板上打取菌饼,并将其中一个菌饼(见图1中的PDA 2)底面朝下放置于PDA环上,使菌丝层正对FLU晶体。
- 重复前述步骤,但不添加FLU晶体。
注意:此为阴性对照(CONNEG),用于测定生物报告细胞的背景荧光水平。
- 重复前述步骤,但不添加FLU晶体。
- 使用直径1 cm的打孔器从含有活性炭的琼脂中打取圆形菌饼。在每个微宇宙装置中放置四个菌饼,以进一步降低气态FLU浓度(见图1)。
- 制备阳性对照(CONPOS):将少量FLU晶体加入200 µl MMA细胞悬浮液中,然后将其注入一个空载玻片的腔室内。
- 在培养箱底部放置一个直径为10 cm的培养皿,内含活性炭粉末,以降低培养箱内气态FLU浓度。同时在底部放置四至五个盛有无菌水的50 ml烧杯,以维持培养箱内高湿度环境。
- 将微宇宙装置转移至培养箱中,在25 °C下培养96小时。将样品随机放置于不同的培养箱中,以排除位置效应的影响。
注意:该培养时间适用于卵菌P. ultimum,其他生物可能需要不同的培养时间。
- 将微宇宙装置转移至培养箱中,在25 °C下培养96小时。将样品随机放置于不同的培养箱中,以排除位置效应的影响。
4. 共聚焦激光扫描显微镜
- 理想情况下,使用配备正置显微镜的共聚焦激光扫描显微镜(CLSM)系统。
注意:可配备提供常规激光的装置 例如, 488、561 和 633 nm 激发谱线,或使用可调谐白光激光光源。 - 使用以下设置采集图像:激发波长:490 nm(eGFP)和585 nm(mCherry),采用适当的激光强度(同时激发);发射波长范围:500 至 550 nm(eGFP)和605 至 650 nm(mCherry);物镜:63倍 NA 0.9 水浸物镜(因其工作距离较长);z轴层距: 0.5 µm.
- 打开微型生态系统装置,使用解剖刀移除PDA 1、PDA 2、PDA 3以及PDA屏障。将玻璃盖玻片置于MMA上方,轻轻按压以去除气泡。将载玻片固定在显微镜载物台上。在盖玻片上方滴加一滴水,使用mCherry设置在样品中定位生物报告细胞。
- 使用红(mCherry)和绿(eGFP)通道的过载-溢出-欠载伪彩查找表,快速查看样品并优化信噪比。选择样品上的一个随机位置以分析生物报告荧光。
注意:菌丝可能在生物报告基因发射光谱范围内表现出自发荧光例如, 绿色自发荧光17如果存在菌丝,请务必选择无菌丝的区域。 - 为每个位置的绿色(eGFP)和红色(mCherry)通道定义并记录z轴层扫图像。避免样品因长时间暴露于落射荧光光源或激光光源而发生漂白。
- 对十个随机且均匀分布的位置重复上一步骤。
- 使用相同的设置对测试轨道的所有样本重复上述所有步骤SAM), 对照组空气 , CONNEG 以及对照组阳性.
5. 图像分析
注意:为了分析所记录的z轴堆栈图像中的红色(mCherry)和绿色(eGFP)荧光,可选用免费软件 ImageJ18(http://rsb.info.nih.gov/ij/download.html)进行处理。
- 请确保安装 logi_tool 插件(http://downloads.openmicroscopy.org/bio-formats/4.4.10/)。
- 在 ImageJ 中打开文件。选择“拆分通道”并关闭绿色通道。使用作为补充代码文件提供的宏“mCherry area”来量化 z-堆栈中红色荧光的面积。在宏中调整首选设置(以粗体标示)。
- 输出为一个表格,包含 z-堆栈中高于阈值(且大于定义的最小尺寸)的测量像素。
注意:所有数值的总和即为堆栈中红色像素(面积)的总数。
- 输出为一个表格,包含 z-堆栈中高于阈值(且大于定义的最小尺寸)的测量像素。
- 在 ImageJ 中打开文件。选择“拆分通道”并关闭红色通道。使用作为补充代码文件提供的宏“eGFP int”来量化 z-堆栈中绿色荧光的强度。在宏中调整首选设置(以粗体标示)。
- 输出为一个表格,包含 z-堆栈中所有高于阈值(且大于定义的最小尺寸)的绿色对象的平均强度及其面积。要计算堆栈中绿色像素的总强度,请将每个平均强度乘以其对应的面积。
- 计算相对 eGFP 诱导量(eGFPrel):
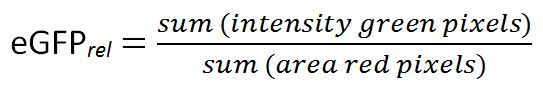 (1)
注意:由于 mCherry 为组成型表达,因此 eGFPrel 的结果值可用于相对衡量一定数量细胞所表达的 eGFP 量。有关 eGFPrel 的计算详情,请参见Table 3。
6. 化学定量分析
注意:微宇宙装置也可用于定量检测转位的荧光物质含量,无论是否存在非生物污染物汇。
- 用铝箔包裹 15 ml 玻璃瓶、1 ml 气相色谱-质谱(GC/MS)小瓶及内衬管。在蒸发皿中装入 Na2SO4;将所有物品置于马弗炉中,在 450 °C 下加热 5 小时以去除可能的污染。将 Na2SO4 储存在活化干燥器内。
- 将聚二甲基硅氧烷(PDMS)涂层玻璃纤维切成 0.5 cm 长度。用新鲜甲醇振荡清洗纤维 4 次,每次 2 小时。再用超纯水重复清洗 4 次,并将洁净的纤维保存在密封玻璃瓶中的超纯水中。
- 配制 1.5 L 含 10 µg L-1 菲-d10 的甲苯/丙酮混合溶剂(体积比 3:1)。
- 执行方案中的步骤 1、2 和 3。准备不含生物感应细胞的微宇宙体系以研究氟蒽(FLU)的迁移(SAM(-) 和 CONAIR(-)),以及含生物感应细胞的体系(SAM)以验证 FLU 的降解。
- 可选(不含生物感应细胞):使用精细镊子将三根 PDMS 涂层玻璃纤维(通常用于固相微萃取实验)作为人工且可定量的污染物汇,放入 SAM(-) 的 MMA 中。
- 用精细镊子取出玻璃纤维,分别转移至带有内衬管的 GC/MS 小瓶中。
- 加入 200 µl 甲苯,垂直振荡过夜,然后通过 GC/MS 分析。使用 表 2 中提供的参数设置。
- 将中间腔室中的 MMA 转移至 15 ml 玻璃瓶中,并加入约三药匙的 Na2SO4。用刮刀充分混匀后加入 10 ml 溶剂。涡旋混合后,在避光条件下水平振荡过夜。
- 取 100 µl 样品转移至带内衬管的 GC/MS 小瓶中,加入 10 µl 萘并四烯-d08(10 mg L-1),然后使用与 6.4.3 节所述相同的程序进行 GC/MS 分析。
访问受限。请登录或开始试用以查看此内容。
结果
本文所展示的结果此前已发表15。有关详细的机制与环境讨论,请参阅该文章。
通过共聚焦激光扫描显微镜(CLSM)记录图像后,可使用相应的显微镜软件或ImageJ进行最大强度投影,以初步观察样品及对照的形态(图2)。随后,可利用特定的可视化软件对数据集进行不同方式的投影,以展示有意义的特征。阳性对照(CONPOS)显示出明显的eGFP诱导表达(图2A),而空气对照(CONAIR)仅呈现背景水平的eGFP荧光(图2B)。测试样品(SAM)中的eGFP荧光强度较CONAIR有所升高,但不如CONPOS
访问受限。请登录或开始试用以查看此内容。
讨论
本研究所采用的微宇宙装置适用于研究降解微生物对经菌丝吸收和转运后的空间分离化学物质的生物可利用性。该系统可防止部分挥发性化合物发生气相迁移,同时无需复杂的样品前处理即可直接观察细菌生物感应细胞,从而最大程度减少对敏感系统的干扰。此外,可方便地对样品进行化学分析,有助于准确控制实验结果并量化总转运量。然而,在开展实验前及实验过程中需仔细考虑若干因素。重要的一点是确保微宇宙系统避免任何细菌或化学交叉污染。由于通常需要并行运行多个微宇宙系统,因而需要较大的培养容器(如干燥器),这使得污染控制更具挑战性。因此,在构建系统前必须对所有组件进行严格灭菌。另一个需要注意的问题是微宇宙中使用塑料培养皿。尽管多环芳烃(PAH)与生物感应剂并未直接接触,但部分PAH可能被塑料材料吸附。不过,我们认为在本描述的实验方案中这一问题并不严重,因为即使发生吸附,也只会导致菌丝PAH转运和/或生物可利用性的低估。在需要精确量化的情况下,建议将塑料部件替换为玻璃部件,尽管操作会相对不便。其他需考虑的因素包括所选细菌和真菌菌株(可能的相互抑制、生长速率、运动性及自发荧光)、所用化学物质(对微生物的毒性效应、挥发性、检测限)以及实际操作问题(荧光漂白、eGFP诱导的限制及...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在相互竞争的经济利益。
致谢
感谢德国环境基金会(DBU)的资助。作者感谢 Ute Kuhlicke 在共聚焦激光扫描显微镜(CLSM)分析中的技术支持,以及 Birgit Würz、Rita Remer 和 Jana Reichenbach 在实验方面的专业协助。作者特别感谢 Prof. Jan Roelof van der Meer 和 Dr. Robin Tecon 富有成效的讨论以及提供生物传感菌株。本研究是亥姆霍兹联合会“环境中的化学品”(CITE)研究计划的一部分。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 共聚焦显微镜 | Leica | TCS SP5X, LAS AF - 版本 2.6.1;或等效的 CLSM | |
| GC HP 7890 系列气相色谱仪与安捷伦 5975C 质谱仪 | Agilent | 可使用等效的气相色谱-质谱联用仪 | |
| GC 毛细管柱 J&W 121-5522 | Agilent | ||
| 打孔器 | Fisher Scientific | 12863952 | 或其他任意品牌 |
| 盖玻片 | Marienfeld | 107222 | 高性能,No.1.5H |
| GC/MS 进样衬管 | WICOM | WIC 47080 | |
| GC/MS 瓶 2 ml | WICOM | WIC 41150 | |
| 螺口瓶盖/隔垫 | DIONEX | 49463 / 049464 | |
| GC/MS 瓶瓶盖 | WICOM | WIC 43948/B | |
| 载玻片 | Menzel | 普通 | |
| PDMS 涂层玻璃纤维 | Polymicro Technologies, Inc. | V (PDMS) = 13.55 ± 0.02 µl m-1 | |
| 小/大培养皿 | Greiner | 633-102 / 628-102 | |
| 40 ml 螺口瓶 | DIONEX | 48783 | 可使用其他玻璃瓶 |
| 60 ml 螺口瓶 | DIONEX | 48784 | 可使用其他玻璃瓶 |
| 苊烯-d08 | Dr. Ehrenstorfer | C 20510100 | |
| 丙酮 | Carl Roth | 9372.2 | |
| 活性炭 | Sigma-Aldrich | 242276-1kg | |
| 琼脂糖 | Carl Roth | 2267.4 | |
| 芴 | Fluka | 46880 | |
| 硫酸卡那霉素 | Carl Roth | T832.2 | 50 mg L-1 |
| 甲醇 | Carl Roth | P7171 | |
| 基础培养基: 100 ml 溶液1 + 25 ml 溶液2 + 5 ml 溶液3 加蒸馏水至 1,000 ml | |||
| 溶液1 | |||
| 硫酸铵 | Carl Roth | 3746.1 | 5 g L-1 |
| 六水合氯化镁 H2O | Carl Roth | 2189.1 | 1 g L-1 |
| 四水合硝酸钙 H2O | Carl Roth | P740.1 | 0.5 g L-1 |
| 溶液2 | |||
| 磷酸氢二钠 | Carl Roth | P030.1 | 55.83 g L-1 |
| 磷酸二氢钾 | Carl Roth | 3904.1 | 20 g L-1 |
| 溶液3(pH 6.0) | |||
| EDTA 二钠盐 | MERCK | 1084180250 | 0.8 g L-1 |
| 四水合氯化亚铁 H2O | MERCK | 1038610250 | 0.3 g L-1 |
| 六水合氯化钴(II) H2O | Carl Roth | T889.3 | 4 mg L-1 |
| 一水合氯化锰(II) H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| 硫酸铜(II) | Carl Roth | P023.1 | 1 mg L-1 |
| 二水合钼酸钠 H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| 氯化锌 | MERCK | 1088160250 | 2 mg L-1 |
| 氯化锂 | Carl Roth | P007.1 | 0.5 mg L-1 |
| 二水合氯化亚锡(II) H2O | Carl Roth | 4473.1 | 0.5 mg L-1 |
| 硼酸 | Riedel-de-Haen | 11606 | 1 mg L-1 |
| 溴化钾 | Carl Roth | A137.1 | 2 mg L-1 |
| 碘化钾 | Carl Roth | 6750.1 | 2 mg L-1 |
| 氯化钡 | Carl Roth | 4453.1 | 0.5 mg L-1 |
| MMA | 基础培养基 + 0.2% 琼脂糖 | ||
| 菲-d10 | Dr. Ehrenstorfer | C 20920100 | |
| 马铃薯葡萄糖琼脂: 24 g L-1 培养基 + 细菌琼脂 1.5%;pH 6.8 | |||
| 马铃薯葡萄糖培养基 | Difco/ Beckton Dickinson | 254920 | |
| 细菌琼脂 | Difco/ Beckton Dickinson | 214040 | |
| 三水合乙酸钠 | Carl Roth | 6779.1 | |
| 硫酸钠 | MERCK | 1066495000 | |
| 甲苯 | MERCK | 1083252500 | |
| mTY 培养基: 3 g L-1 酵母提取物,5 g L-1 胰蛋白胨,以及 50 mM NaCl | |||
| 酵母提取物 | Merck | 1037530500 | |
| 胰蛋白胨 | Serva | 4864702 | |
| 氯化钠 | Carl Roth | 3957.1 | |
| 带 logi 工具插件的 ImageJ | http://rsb.info.nih.gov/ij/download.html 和 http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum 菌株 67-1 | 来自瑞士洛桑大学基础微生物学系 Christoph Keel 博士实验室 | ||
| Burkholderia sartisoli RP037-mChe | 来自瑞士洛桑大学基础微生物学系 Jan Roelof van der Meer 教授实验室 |
参考文献
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
