本方案描述了NAME,一种可快速鉴定能够抑制分子的检测方法 体外 HIV-1 核衣壳蛋白的分子伴侣活性
本文内容
摘要
摘要
具有稳定三维结构的RNA或DNA是抗肿瘤或抗病毒药物研发中的重要靶点。以HIV-1为例,参与调控病毒活性的病毒蛋白可识别多种核酸。其中,核衣壳蛋白NCp7(NC)是调控病毒复制多个过程的关键蛋白。NC实际上是一种分子伴侣,能够破坏RNA和DNA的二级结构,并促进其退火。抑制NC的功能是一种全新的抗HIV治疗策略,具有重要意义。Nucleocapsid Annealing-Mediated Electrophoresis(NAME)(核衣壳介导的退火电泳)检测法被开发用于筛选能够抑制HIV-1核衣壳蛋白对RNA和DNA(如HIV的TAR和cTAR发夹结构)的解链与退火功能的小分子化合物。该新检测方法可使用重组或合成的蛋白,且无需对寡核苷酸进行预先标记。实验结果通过标准聚丙烯酰胺凝胶电泳(PAGE)结合常规核酸染色进行分析。本文所述方案详细介绍了如何使用全长NC蛋白或缺失其碱性N端结构域但仍具备核酸伴侣活性的截短版本进行NAME检测,并展示了如何评估嵌入型嵌插剂对NC伴侣活性的抑制作用。此外,NAME检测可采用两种不同模式进行,有助于推断所发现的NC抑制剂可能的作用机制。
引言
人类免疫缺陷病毒1型(HIV-1)的核衣壳蛋白NCp7(NC)是一种小分子碱性蛋白,在成熟的感染性病毒中紧密结合于基因组RNA,在病毒复制过程中作为逆转录、基因组识别和包装的辅助因子发挥关键作用1-3。NC作为一种核酸分子伴侣,可催化稳定核酸结构的解聚以及互补序列的退火。其核酸聚集活性主要位于N端的11个氨基酸结构域,而双链解旋活性则定位于其锌指结构(12-55肽段)4。该带正电荷的蛋白可降低退火反应的静电屏障,提高两条独立互补序列结合的速率。
具有稳定构象的核酸折叠需要NC伴侣蛋白的辅助才能促进其退火。5 这一过程在逆转录中尤为重要,其中NC在链转移事件中起关键作用:在负链转移过程中,刚刚逆转录生成的负链终止 DNA必须转移并退火至RNA基因组模板3'端R区域中的互补序列。6 尽管该反应在热力学上是有利的,但由于R区域中存在稳定的反式激活应答区域(TAR)RNA结构,若无NC存在,该反应难以有效进行,而该结构必须与其DNA拷贝(cTAR DNA)结合。7 实际上,cTAR和TAR均为具有典型茎环构象的高度结构化区域。NC蛋白可解开这些发夹结构,并通过提高互补核酸链之间的分子间退火速率来促进负链转移。NC介导TAR与cTAR退火的机制已在多项研究论文中被深入研究和描述,相关实验方案在多篇优秀综述中均有图示说明。8-11 总而言之,NC可破坏TAR RNA等稳定RNA的二级结构,同时破坏其互补序列cTAR DNA的二级结构,并促进RNA/DNA之间的退火反应,从而形成TAR/cTAR杂合双链。10,11 因此,HIV复制过程中的链转移步骤得以促进。12
由于小分子对核衣壳蛋白(NC)的潜在干扰会因NC活性受损而导致病毒基因组逆转录效率降低,因此NC是开发新型抗病毒药物的理想靶点2,13。这一策略最终可能推动高效抗HIV药物的研发。在筛选NC抑制剂的过程中14,我们建立了一种基于核衣壳蛋白能够高效解稳定并促进互补寡核苷酸退火这一已知特性的检测方法10,11。我们将该方法命名为Nucleocapsid Annealing-Mediated Electrophoresis(核衣壳介导退火电泳),简称NAME法。NAME法利用NC介导具有稳定结构的互补核酸序列之间的退火反应,在本实验中即为TAR-RNA序列顶端对应的寡核苷酸与其互补DNA序列(cTAR)退火形成TAR/cTAR杂合异源双链。通过非变性聚丙烯酰胺凝胶电泳(PAGE)可分析NC存在条件下的TAR/cTAR退火反应情况。
本实验方案介绍了如何通过NAME实验快速在室温下使形成稳定发夹结构的寡核苷酸退火,如何分析反应结果以及实验中可能遇到的问题与解决方案。该实验无需对核酸进行放射性标记,寡核苷酸条带可通过常规染色方法进行检测。本实验可使用NC蛋白的全长重组蛋白或截短的合成版本,能够鉴定出可抑制NC活性的穿插嵌入剂,该活性与对RNA和DNA的强结合能力相关。14
方案
1. 材料、核酸和蛋白质的制备
- 核酸
- 将1.5 ml离心管进行高压灭菌,并存放于无菌容器中。所有操作步骤均需使用无菌滤芯吸头,以消除污染因子。 即 实验室耗材中的核酸酶。
- 使用DEPC处理水配制10 mM Tris-HCl缓冲液(pH 7.5),并用孔径0.22 µm的滤器过滤溶液。
- 注意:名为“TAR”的寡核苷酸对应于短链(29-mer)RNA序列 5’-GGCAGAUCUGAGCCUGGGAGCUCUCUGCC-3’ 15 而cTAR是其DNA互补序列5’-GGCAGAGAGCTCCCAGGCTCAGATCTGCC-3’。
- 将上述提及的TAR和cTAR分别溶于Tris缓冲液(1.1.2.)中,配制成100 µM的储备液。cTAR储备液可于-20 °C保存(分装后可在该条件下保存数月)。对于RNA的长期保存,将TAR储备液分装为20 µl每份,使用真空浓缩离心机干燥各份样品,并于-80 °C保存。使用前新鲜配制,将每份TAR分装样品重悬于20 µl DEPC处理水中。
注意:工作用TAR分装样品可在-20 °C保存两周。
- 将上述提及的TAR和cTAR分别溶于Tris缓冲液(1.1.2.)中,配制成100 µM的储备液。cTAR储备液可于-20 °C保存(分装后可在该条件下保存数月)。对于RNA的长期保存,将TAR储备液分装为20 µl每份,使用真空浓缩离心机干燥各份样品,并于-80 °C保存。使用前新鲜配制,将每份TAR分装样品重悬于20 µl DEPC处理水中。
- NC蛋白和(12-55)NC肽
- 按照已有报道的方法制备全长重组NC蛋白。16 将储存液分装后于 -20 °C 保存。使用紫外-可见分光光度计,以 280 nm 处的消光系数 6,410 M⁻¹cm⁻¹ 测定蛋白质的精确浓度。-1 cm-1.
- 将合成的(12-55)NC肽重悬于10 mM Tris-HCl缓冲液(pH 7.5)中,并将储备液分装后于-20 °C保存。使用紫外-可见分光光度计在280 nm处测定肽浓度,消光系数为5,700 M⁻¹cm⁻¹。-1 cm-1.
注意:(12-55)NC 肽通过高效液相色谱(HPLC)纯化,并从含有两当量氯化锌的溶液中冻干获得。
- 化合物 1
- 称取约 1 mg 冻干化合物 1 使用分析天平准确称量化合物,并将其溶解于100 µl经适当称重的100% DMSO中,以获得高浓度(≈10 mM)的母液。使用紫外-可见分光光度计,根据其摩尔消光系数(在354 nm处为11,387 M⁻¹cm⁻¹)测定化合物的确切浓度。-1 cm-1将储备液避光保存于 -20 °C,待用。
2. 凝胶装置的设置与凝胶的制备
- 准备凝胶时,用70%乙醇冲洗两块玻璃板(一块长板和一块短板),晾干后,将两个1 mm的间隔条沿长板的长边放置;盖上短板,并确保两块板在底部对齐。
- 浇注凝胶时,请遵循试剂供应商提供的说明(不同供应商使用的设备略有不同;夹具和堆叠装置由各浇注设备提供)。在所有情况下,务必确保夹具、堆叠装置和垫圈清洁,并清除前次使用者留下的丙烯酰胺残留物。
- 将组装好的凝胶夹心结构放入浇注支架中,并按照供应商的具体说明操作。
注意:通常在浇注槽底部使用干净的硅胶垫圈可确保良好的密封性,有助于防止灌胶时发生泄漏。 - 为检查是否泄漏,使用移液器将蒸馏水注入两块玻璃板之间。加水填满夹心结构,静置数分钟以确认无泄漏。若组装正确,倒掉水并在两块玻璃板之间插入滤纸以吸干水分。取出滤纸后,夹心结构即可用于浇注凝胶。
- 在室温(RT,25 °C)下进行凝胶浇注。由于聚丙烯酰胺具有高度神经毒性,操作时需佩戴手套。在非变性(天然)条件下使用连续的12%聚丙烯酰胺凝胶进行NAME实验。
- 配制12%凝胶溶液:混合12 ml 40%丙烯酰胺/双丙烯酰胺(19:1)溶液、4 ml 10× TBE缓冲液(10×:Tris-HCl 890 mM,硼酸盐 890 mM,EDTA 20 mM)和24 ml MilliQ水。使用前立即加入400 µl APS和50 µl TEMED。混匀后迅速用移液器将溶液沿玻璃板之间注入。将梳子插入玻璃板之间,避免产生气泡。继续加入凝胶溶液直至完全填满夹心结构。
- 让凝胶聚合45分钟至1小时。在上样前立即缓慢取出梳子,并用蒸馏水彻底冲洗加样孔。
- 完成聚合和冲洗加样孔步骤后,按照供应商的具体说明,将凝胶夹心结构安装到垂直电泳装置中。若系统配有冷却装置,请确保将凝胶系统正确放置在冷却芯的对应位置。
- 如果系统设计为可同时运行多块凝胶,但仅需运行一块凝胶,则应在冷却芯的另一侧安装一个空的凝胶夹心结构作为缓冲液挡板,以形成完整的上层缓冲液室。
注意:若挡板未正确安装,上层缓冲液可能发生泄漏,导致电泳中断。 - 用去离子水配制2.5 L的TBE电泳缓冲液(1×:Tris-HCl 89 mM,硼酸盐 89 mM,EDTA 2 mM)。预留约500 ml TBE缓冲液用于上层缓冲液室,其余部分倒入下层缓冲液室。随后将预留的500 ml TBE缓冲液倒入上层缓冲液室。
- 将盖子盖在下层缓冲液室上方,确保阳极和阴极处于正确位置。
- 如有冷却芯,使用软管将其连接至自来水龙头。通入自来水填充冷却芯,使其在电泳过程中起到散热作用,并在电泳期间保持自来水在冷却芯中循环流动。
3. 核衣壳退火介导电泳(NAME)实验
- 缓冲液的制备
- 用DEPC处理水配制TNMg缓冲液(1×:Tris-HCl 10 mM,NaCl 20 mM,Mg(ClO4)2 1 mM,pH 7.5),并用孔径为0.22 µm的滤器过滤溶液。
注意:TNMg缓冲液可在4 °C下保存最多7天。为获得最佳的折叠和退火效果,建议使用新鲜配制的缓冲液。 - 用DEPC处理水配制含SDS的上样缓冲液(GLBSDS:Tris-HCl 100 mM,EDTA 4 mM,50% w/v甘油,2% w/v SDS,0.05% w/v溴酚蓝)。
注意:GLB有助于追踪寡核苷酸样品在凝胶系统中的迁移距离,并使样品沉入凝胶中。在GLB中加入SDS是NAME实验成功的关键步骤。若未执行此步骤,则无法在凝胶系统中区分核酸条带(图2)。
- 用DEPC处理水配制TNMg缓冲液(1×:Tris-HCl 10 mM,NaCl 20 mM,Mg(ClO4)2 1 mM,pH 7.5),并用孔径为0.22 µm的滤器过滤溶液。
- 对照样品的制备
- 将寡核苷酸储备液进行系列稀释,使用新鲜配制的10 µM溶液制备10 µl浓度为1 µM的TAR溶液。同样方法单独制备10 µl浓度为1 µM的cTAR溶液于1× TNMg缓冲液中。将每支离心管加热至95 °C持续5分钟,然后在室温下自然冷却,使TAR和cTAR形成茎-凸环-环结构。
- 制备1 µM的TAR/cTAR杂交双链作为对照。将1 µl 10 µM TAR与1 µl 10 µM cTAR混合于1× TNMg缓冲液中,总体积为10 µl。将混合物在95 °C加热5分钟以变性寡核苷酸,随后缓慢冷却至室温,使TAR与其互补序列cTAR退火,形成双链杂交体TAR/cTAR。
- 当溶液冷却至室温后,进行短暂离心。向每管中加入3 µl GLBSDS,用移液器在每管中吹打3次,然后将离心管置于冰上。在上样前始终保持对照样品稳定置于冰上。
- 用于分析NC蛋白和(12-55)NC肽活性的样品制备
- 每个样品使用2.5 µl新鲜配制的4 µM寡核苷酸溶液。每次应多准备少量溶液以避免移液误差。按照上述对照样品制备方法(步骤3.2.1)在1× TNMg缓冲液中分别对32.5 µl 4 µM TAR溶液和cTAR溶液进行折叠处理。
- 用MilliQ水将NC蛋白和(12-55)NC肽的储备液稀释至80 µM。
- 当TAR和cTAR溶液冷却至室温后,对两支离心管进行短暂离心,并开始准备样品管。
- 准备12个空的0.5 ml灭菌离心管,在样品架上排列成3行,每行4管。各行分别用于分析全长NC蛋白、无蛋白对照以及分析(12-55)NC肽活性的样品。
- 每次更换不同试剂时均需更换移液枪头。
- 向每管中加入2.5 µl折叠后的TAR和2.5 µl折叠后的cTAR。向用于分析NC和(12-55)NC的样品中加入4 µl DEPC处理水,其余样品中加入5 µl DEPC处理水。
- 向分别用于分析NC或(12-55)NC的样品中加入1 µl 80 µM NC或1 µl 80 µM (12-55)NC。
- 立即向“0分钟”时间点的样品(在图1中标记为0’)中加入3 µl GLBSDS,在每管中吹打3次,然后将离心管置于冰上。对所有样品和对照重复此步骤。在上样前始终保持样品稳定置于冰上。
- 在室温孵育15分钟、30分钟和1小时后,分别向各对应样品中加入3 µl GLBSDS,在每管中吹打3次,然后将离心管置于冰上。对所有样品和对照重复此步骤,并继续置于冰上直至上样。
- 打开凝胶装置盖子。将每个样品13 µl加入之前通过梳子制备形成的加样孔中。按照图1所示顺序加样。
- 盖上凝胶装置盖子。将凝胶装置的电极线连接至电源。检查电极是否正确插入电源的对应插槽中。
- 开启电源,以恒定电压200 V电泳2小时30分钟,直至染料迁移至凝胶底部上方1.5 cm处。
- 用于分析蒽醌对NC和(12-55)NC活性影响的样品制备
- 稀释化合物1的储备液。用MilliQ水配制10 µl浓度分别为500 µM、250 µM、50 µM和5 µM的化合物1稀释液。
- 按照上述方法(第3.2节)制备对照样品。
- 每个样品使用2.5 µl新鲜配制的4 µM寡核苷酸溶液。每次应多准备少量溶液以避免移液误差。按照前述方法(步骤3.2.1)在1× TNMg缓冲液中分别对27.5 µl 4 µM TAR溶液和cTAR溶液进行折叠处理。
- 将NC蛋白和(12-55)NC肽的储备液用水稀释至80 µM溶液。
- 当TAR和cTAR溶液冷却至室温后,对两支离心管进行短暂离心,并开始准备样品。
- 准备20个空的0.5 ml灭菌离心管,在样品架上排列成2行,每行10管。
- 每次更换不同试剂时均需更换移液枪头。
- 向第一行每管中加入2.5 µl折叠后的TAR,向第二行每管中加入2.5 µl折叠后的cTAR。
- 向TAR和cTAR样品中分别加入2 µl相应浓度的化合物1稀释液(浓度从5 µM至500 µM递增)。在不加化合物的NC和(12-55)NC分析样品中用等体积水替代化合物。室温孵育15分钟。
- 孵育15分钟后,将第二行的cTAR样品与第一行对应的TAR样品混合。
- 分别向用于分析NC或(12-55)NC的样品中加入1 µl 80 µM NC或1 µl 80 µM (12-55)NC。
- 再孵育15分钟后,向每管中加入3 µl GLBSDS,吹打3次,然后将离心管置于冰上。分别对NC和(12-55)NC分析样品重复此步骤。在上样前始终保持样品稳定置于冰上。
- 打开凝胶装置盖子。将每个样品13 µl加入加样孔中。按照图3B所示顺序加样。
- 盖上凝胶装置盖子。将凝胶装置的电极线连接至电源。检查电极是否正确插入电源的对应插槽中。
- 开启电源,以恒定电压200 V电泳2小时30分钟,直至染料迁移至凝胶底部上方1.5 cm处。
- 样品制备:寡核苷酸预孵育模式与NC蛋白预孵育模式比较
- 稀释化合物1的储备液。用MilliQ水配制10 µl浓度分别为500 µM、250 µM、50 µM和5 µM的化合物1稀释液。
- 按照上述方法(第3.2节)制备对照样品。
- 每个样品使用2.5 µl 4 µM寡核苷酸溶液。每次应多准备少量溶液以避免移液误差。按照前述方法(步骤3.2.1)在1× TNMg缓冲液中分别对27.5 µl 4 µM TAR溶液和cTAR溶液进行折叠处理。
- 将NC蛋白和(12-55)NC肽的储备液用水稀释至80 µM溶液。
- 当TAR和cTAR溶液冷却至室温后,对两支离心管进行短暂离心,并开始准备样品。
- 每次更换试剂或接触反应管中任何液体时均需更换移液枪头。
- 从本步骤起,务必明确标记并区分用于两种不同预孵育程序的样品。
- 寡核苷酸预孵育模式
- 准备10个空的0.5 ml灭菌离心管,在样品架上排列成2行,每行5管。
- 向第一行每管中加入2.5 µl折叠后的TAR,向第二行每管中加入2.5 µl折叠后的cTAR。
- 向TAR和cTAR样品中分别加入2 µl相应浓度的化合物1稀释液(浓度从5 µM至500 µM递增)。在不加化合物的NC分析样品中用等体积水替代化合物。室温孵育15分钟。
- 孵育15分钟后,将第二行的cTAR样品与第一行对应的TAR样品混合。
- 向每个样品中加入1 µl 80 µM NC,并在室温下继续孵育15分钟。
- 再孵育15分钟后,向每管中加入3 µl GLBSDS,吹打3次,然后将离心管置于冰上。在上样前始终保持样品稳定置于冰上。
- NC蛋白预孵育模式
- 准备5个空的0.5 ml灭菌离心管,并放置在样品架中。
- 向每管中加入4 µl相应浓度的化合物1稀释液(浓度从5 µM至500 µM递增)。在不加化合物的NC分析样品中用等体积水替代化合物。
- 向每管中加入1 µl 80 µM NC,并在室温下孵育15分钟。
- 将15 µl折叠后的TAR与15 µl折叠后的cTAR在一支离心管中混合,并在下一步使用该TAR + cTAR混合溶液。
- 孵育15分钟后,向每个样品中加入5 µl TAR + cTAR混合液,并在室温下继续孵育15分钟。
- 再孵育15分钟后,向每管中加入3 µl GLBSDS,吹打3次,然后将离心管置于冰上。在上样前始终保持样品稳定置于冰上。
注意:从步骤3.5.8起,可对所有样品进行分析(接续步骤3.5.7)。
- 寡核苷酸预孵育模式
- 打开凝胶装置盖子。将每个样品13 µl加入加样孔中。按照图4所示顺序加样。
- 盖上凝胶装置盖子。将凝胶装置的电极线连接至电源。检查电极是否正确插入电源的对应插槽中。
- 开启电源,以恒定电压200 V电泳2小时30分钟,直至染料迁移至凝胶底部上方1.5 cm处。
4. 移除凝胶并进行凝胶染色
- 电泳结束后,关闭电源,断开电极导线。关闭冷却系统的水龙头,并从冷却芯上断开软管。
- 取下盖子,如果系统使用了冷却装置,则取出冷却芯,并将两个电泳槽中的缓冲液倒掉。
- 小心地将凝胶夹心结构从装置上拆下,并取下玻璃板上的所有夹子。要将凝胶从玻璃板上分离,可将一侧的垫片轻轻推出玻璃板边缘,然后轻轻扭转,使上层玻璃板抬起并脱离。捏住凝胶的两个角,轻轻提起,将其从玻璃板上完整取下。
- 将凝胶放入合适的容器中,加入所需的核酸染色液,在搅拌条件下染色30–45分钟。
- 染色完成后,将凝胶置于凝胶成像系统(如透射式紫外灯)上,检测凝胶中核酸的荧光信号。
结果
图1 展示了进行核衣壳退火介导电泳(Nucleocapsid Annealing Mediated Electrophoresis, NAME)实验的代表性结果 i) 使用全长重组蛋白, ii) 没有该蛋白质的情况下, 即 混合cTAR + TAR,并在室温下孵育长达1小时,以及 iii) 使用缺乏N端结构域11个氨基酸的合成肽(12-55)NC进行相同检测。将预折叠的TAR与cTAR混合,在全长重组NC存在条件下监测退火异源双链TAR/cTAR的形成(左侧泳道) 图1),在无蛋白质的情况下(中间泳道在 图1),以及在截短型(12-55)NC肽存在条件下(右侧泳道) 图1对照样本包括:折叠的cTAR、折叠的TAR,以及通过将TAR与cTAR的稳定折叠结构进行热变性后缓慢退火所得的杂交双链(TAR/cTAR)。14
NC 蛋白使两条稳定的核酸序列变性并形成完全延伸的异源双链螺旋的能力显而易见:全长 NC 蛋白可立即促进 TAR/cTAR 杂交体的形成;“0’”表示在向样品中加入 NC 蛋白与加入上样缓冲液(用于终止反应)之间的最短时间间隔;在 15’ 孵育后,杂交反应已完全完成。退火形成的异源双链条带强度的增加,与折叠态 cTAR 和 TAR 寡核苷酸条带强度的减弱呈平行关系。即使在截短形式的 NC 蛋白存在下,也能实现异源双链的形成, 即 (12-55)NC,证实了合成肽的生物学活性。在缺乏该蛋白或肽的情况下,未观察到杂交双链的形成,且TAR与cTAR寡核苷酸在室温下不会退火形成杂交双链。图1)。在所有实验中,均迅速形成了不稳定的中间产物(“中间复合物”在 图1随着时间的推移观察到信号逐渐减弱,这与所提出的通过cTAR和TAR发夹结构进行链交换直至核酸正确折叠的机制一致。17
该实验可能出现的问题之一是上样缓冲液(Gel Loading Buffer)中缺少SDS。当GLB中不含SDS时,反应结果如图2所示,并与含有SDS的GLB(GLB + SDS)条件下的结果进行比较。将预先折叠的TAR和cTAR混合后,在室温下或37 °C孵育3小时,并加入重组的全长NC蛋白。孵育结束后,将样品分为两部分:其中一半加入不含SDS的上样缓冲液(GLB),另一半则加入含SDS的上样缓冲液(GLBSDS)。将样品上样至凝胶,通过染料染色在电泳结束后观察核酸条带的位置。当存在NC蛋白且样品使用不含SDS的GLB上样时,所有核酸条带均发生上移:此现象符合预期,表明蛋白与核酸之间存在强结合。使用GLBSDS的结果显示在凝胶最右侧:SDS的加入使蛋白变性,从而将核酸从与蛋白形成的稳定复合物中释放出来,便于与对照组进行比较。
NAME实验用于评估穿线型嵌入剂稳定动态核酸结构并抑制NC分子伴侣活性的能力。14 穿线型嵌入剂是一类具有平面芳香环结构的分子,其环系相对两侧连接有体积较大的侧链,例如图3A所示的蒽醌类化合物18。这类嵌入剂能够穿透核酸双螺旋结构,并最终将其侧链分别定位在双螺旋的两个沟槽中19,20。
图3B 显示了在存在已知的嵌入型嵌入剂化合物118的情况下,加入全长NC蛋白或截短肽时NAME实验的结果。在这两种情况下,随着嵌入剂浓度的增加,NC介导的TAR/cTAR杂交体形成减少,同时游离TAR和cTAR的量增加。缺乏N端尾部的蛋白截短形式(12-55NC)对其活性抑制更为敏感:这一差异已在迄今为止测试的所有化合物中得到验证。
NAME实验可以通过两种方式进行:一种是先将待测化合物与NC预孵育,然后加入折叠的寡核苷酸(NC预孵育模式);另一种是先将待测化合物与折叠的核酸底物预孵育15分钟,然后加入NC并继续孵育15分钟(寡核苷酸预孵育模式)。尽管两种模式的总孵育时间相同,但在加入NC之前对折叠寡核苷酸进行预孵育,可使嵌入型化合物有更充分的时间插入到折叠核酸结构中。这会更强地稳定其动态结构,从而更有效地抑制NC的分子伴侣活性。因此,通过这两种模式分析NAME实验,可以增强对NC抑制剂作用机制差异的识别,如图4所示:当化合物1在寡核苷酸预孵育模式下进行NAME分析时(图4,左侧泳道),显示出对NC介导的退火过程有强效抑制作用;而在NC预孵育模式下(图4,右侧泳道),其抑制作用则明显减弱。请注意,在本实验条件下,若需通过该方法筛选一系列相关化合物并测定其抑制浓度,每个实验至少应设置三个重复,并使用浓度梯度较为接近的样品(尤其是在IC50值附近)。14
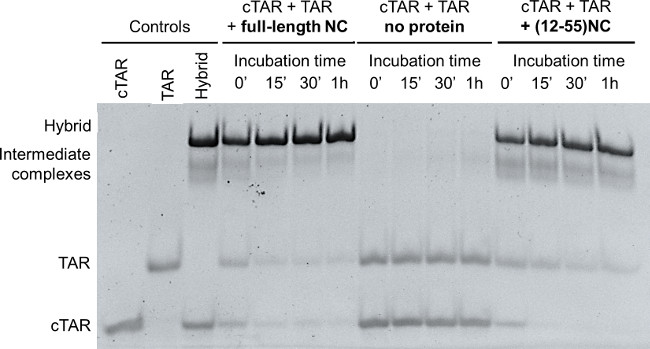
图1:使用全长NC及截短型(12-55)NC进行的NAME实验。 折叠的 TAR 和 cTAR,各自 1 µM,分别与重组NC蛋白或(12-55)NC(寡核苷酸/NC = 1/8)在0分钟、15分钟、30分钟和1小时条件下孵育。在无蛋白存在下孵育的TAR和cTAR(0分钟、15分钟、30分钟和1小时)作为阴性对照。经热变性后复性得到的折叠态TAR、折叠态cTAR以及杂交双链TAR/cTAR 体外 退火作为对照。随后使用GLB终止反应SDS样品在1×TBE缓冲液中的12%聚丙烯酰胺凝胶上电泳分离;电泳后,凝胶中的核酸经染色并在透射成像仪上检测。
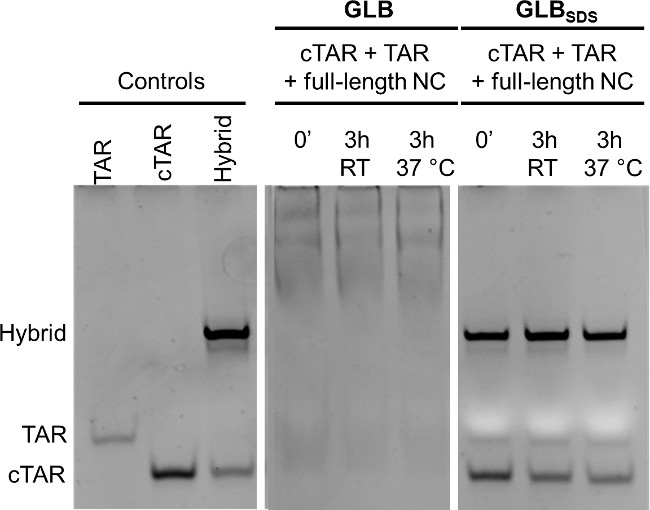
图 2:在利用核衣壳蛋白(NC)分析TAR/cTAR退火时,凝胶加样缓冲液(GLB)中SDS的影响。 将预先折叠的TAR和cTAR(在TNMg 1×中)与全长重组NC蛋白(寡核苷酸/NC = 1/8)在室温或37 °C下孵育3小时。随后向NC孵育的样品中加入GLB或含SDS的GLB(GLBSDS)。对照组:单独的TAR、cTAR以及退火形成的TAR/cTAR杂交体(各1 µM)。电泳使用含1× TBE的12%聚丙烯酰胺凝胶进行;电泳后,通过凝胶成像仪对凝胶上的核酸进行染色并检测。本图修改自Sosic, A. et al. 的《作为HIV-1核衣壳抑制剂的TAR和cTAR结合物的设计、合成与生物评价》一文中的图S4。MedChemComm 4, 1388-1393, doi:10.1039/c3md00212h (2013)。
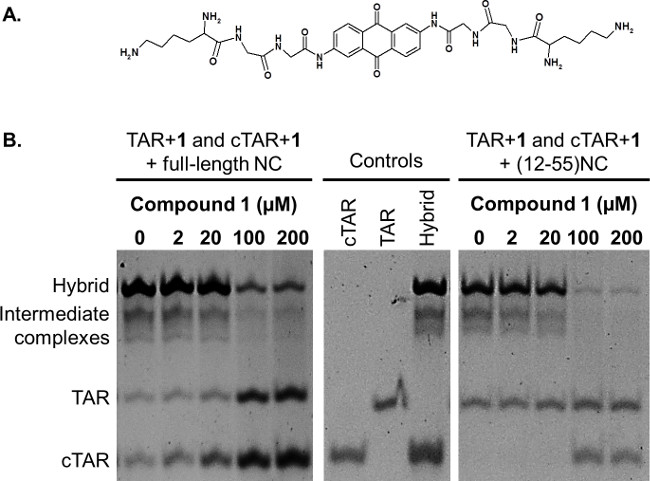
图3: (A) 穿插型嵌入剂1的化学结构。(B) 通过NAME实验评估穿插型嵌入剂1的作用效果。将1 µM折叠态TAR和cTAR分别与不同浓度的化合物1以及全长NC蛋白或(12-55)NC蛋白(各8 µM)共同孵育。以折叠态TAR、折叠态cTAR以及伸展的TAR/cTAR异源双链作为对照。反应通过加入GLBSDS终止。样品在1× TBE缓冲液中的12%聚丙烯酰胺凝胶上进行电泳分离;电泳完成后,利用凝胶成像仪对凝胶上的核酸进行染色并检测。
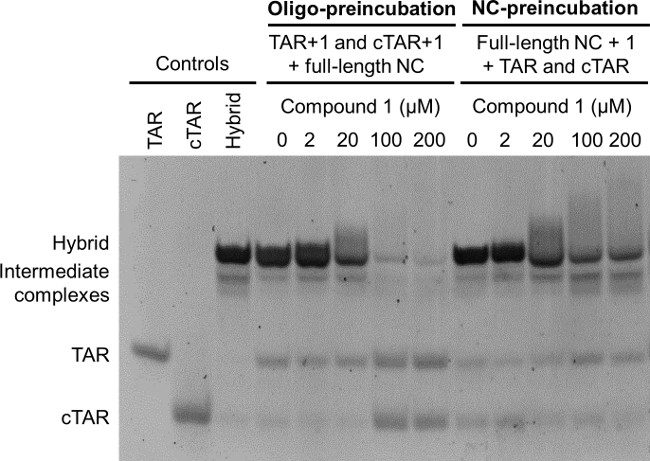
图 4:寡核苷酸预孵育与NC预孵育模式的比较:对NAME实验的影响。寡核苷酸预孵育模式:将各1 µM的折叠TAR和折叠cTAR分别与指定浓度的穿插嵌入剂1在15分钟内预孵育,随后在全长NC(8 µM)存在下继续孵育15分钟。NC预孵育模式:将指定浓度的穿插嵌入剂1与全长NC(8 µM)预孵育15分钟,随后在折叠TAR和折叠cTAR(各1 µM)存在下继续孵育15分钟。以折叠TAR、折叠cTAR以及延伸的杂合双链TAR/cTAR作为对照。所有反应最终均用GLBSDS终止。样品在1× TBE缓冲液中的12%聚丙烯酰胺凝胶上进行分离;电泳后,通过凝胶成像仪对凝胶上的核酸进行染色并检测。
讨论
NAME 是一种可快速评估 HIV-1 核衣壳蛋白(nucleocapsid protein)分子伴侣活性抑制情况的检测方法,该蛋白是研发新型抗 HIV 药物的一个重要靶点。核衣壳蛋白(NC)能够在室温下快速促进核酸退火,而这些核酸若要稳定折叠,通常需要先在高温下进行热变性,再经过精细的退火过程。该检测既可使用全长 NC,也可使用截短形式的 (12-55)NC;在两种情况下,RNA 及其互补 DNA 链均可迅速实现退火。这一结果与文献中关于截短型 NC 肽的观察一致:退火过程始于 cTAR 干区被 NC 高效熔解,随后其互补的顶端环(apical loop)——一个较弱的 NC 结合位点——与 TAR 顶端环的互补序列相互作用,最终经过多个不稳定的中间产物,形成完全延伸的退火杂交体。21
NC 是一种非常稳定的蛋白质,在进行 NAME 时很少出现问题。然而,非常关键的是,必须在用于终止反应的上样缓冲液中加入新配制的 SDS:如果未做到这一点,凝胶中核酸条带将不会出现在正确的位置。事实上,NC 是一种核酸结合蛋白,因此为了通过凝胶电泳正确显示 TAR/cTAR 杂交双链,上样缓冲液中必须含有 SDS,以使蛋白质变性并从其与核酸形成的紧密复合物中解离。这也是实验中可能出现的一个问题,即在凝胶电泳过程中出现条带迁移异常的现象。当使用全长 NC 蛋白时,这一效应尤为明显,如图 2所示,这与 NC 蛋白高度碱性的 N 末端尾部有关,该结构域对核酸具有强烈的聚集作用。
由于末端碱性尾的存在,使得退火反应更难被抑制,这一点在图3中使用化合物1(一种典型的穿插型嵌入剂,即对稳定TAR和cTAR的茎环结构特别有效的嵌入剂)已得到证实。事实上,当凸起和环状结构中断双螺旋的连续性时,此类与核酸的相互作用更易发生,从而有利于大体积取代基穿插进入碱基对之间。此前已通过测定两种寡核苷酸熔解温度的升高,分析了这些核酸结合剂对TAR和cTAR的稳定作用14。此外,熔解温度的升高与HIV-1 NC催化的退火反应抑制程度相关,导致TAR/cTAR异源双链的形成减少,表明穿插型嵌入剂是一类针对TAR元件等RNA动态结构具有潜力的结合剂14。
通过以不同替代形式进行 NAME 检测,可进一步验证这些化合物的作用机制,如图4所示:对于嵌入剂而言,当药物与两条折叠的寡核苷酸共同孵育时,对退火异源双链的抑制作用会增强。而以不同作用机制发挥作用的化合物(例如直接结合 NC 蛋白的化合物)则受不同预孵育方式的影响较小。因此,采用两种方法进行 NAME 检测可用于筛选化合物库,以鉴定 NC 抑制剂,并在寻找靶向 NC 的抗 HIV 药物时评估阳性 hits 的潜在作用机制。显然,在主张所鉴定的 NC 抑制剂具有特定作用机制时,仅使用这些技术是不够的,还需其他适当的生物化学检测来支持工作假说。14
最后必须强调,NAME 使用高度纯化的酶(无论是重组酶还是合成酶),可提供受试化合物对 NC 的“体外”抑制作用的宝贵信息。这既是该检测方法的“优势也是局限”:NAME 可在药物发现项目的初期阶段有效补充虚拟筛选和分子建模方法,有助于快速构建和分析构效关系,进而指导合成路线和药物设计的调整。然而,与其他用于 HIV 药物开发项目的生化检测方法一样,NAME 无法提供潜在抑制剂在病毒感染细胞中作用效果的信息。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作由意大利外交事务部(MAE,DRPG,科学技术合作单位,资助号:PGR Italy-USA)和意大利大学与科研部(MIUR)国家重要研究项目(资助号:2010W2KM5L_006)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| cTAR,29聚体DNA寡核苷酸。脱盐。HPLC纯化。 | Metabion International AG | 储存储备液 -20 的溶液 °C | |
| TAR,29聚体RNA寡核苷酸。脱盐。HPLC纯化。 | Metabion International AG | 将储备液分装后于 -80 ℃ 保存 °C | |
| (12-55)NC 肽 | EspiKem srl | 将储备液于 -20 ℃ 保存 °C | |
| 1.5 ml 离心管 | Eppendorf | 0030 120 086 | 使用前进行高压灭菌 |
| 0.5 ml 离心管 | Eppendorf | 0030 121 023 | 使用前需高压灭菌 |
| 生物圈滤芯吸头 0.1-10 µl | Sarstedt | 701,130,210 | |
| 生物圈滤芯吸头 2-20 µl | Sarstedt | 70,760,213 | |
| Biosphere 滤芯吸头 200 µl | Sarstedt | 70,760,213 | |
| 0.22 微米注射器滤器 µm | Biosigma srl | 51,798 | |
| 乙醇 | Carlo Erba | 414631 | |
| 十二烷基硫酸钠 | Sigma-Aldrich | 71725-50G | |
| 二甲基亚砜 | Sigma-Aldrich | D8418-1L | |
| 氯化钠 | Sigma-Aldrich | 71376-1KG | |
| 硼酸 | Sigma-Aldrich | B0252-2.5KG | |
| 乙二胺四乙酸 | Sigma-Aldrich | E5134-500G | |
| 高氯酸镁 | Sigma-Aldrich | 222283-100G | 储存 1 M 溶液在 -20 °C |
| 甘油 | Sigma-Aldrich | 49770-1L | |
| 溴酚蓝 | GE Healthcare Life Sciences | 17-1329-01 | |
| N,N,N′,N′四甲基乙二胺 | Sigma-Aldrich | T9281-100ML | |
| 过硫酸铵 | Sigma-Aldrich | A7460-500G | 使用前新鲜配制10%溶液 |
| 丙烯酰胺-双丙烯酰胺即用型溶液 40%(19:1) | 默克密理博 | 1006401000 | 聚丙烯酰胺具有高度神经毒性:灌胶过程中需佩戴手套 |
| Tris超纯 | Applichem | A1086,1000 | |
| DEPC处理水 | Ambion | AM9922 | |
| Centrifuge 5415R | Eppendorf | 22,621,408 | |
| NanoDrop 1000 分光光度计 | 赛默飞世尔科技 | ||
| UV-VIS 分光光度计 Lambda 20 | Perkin Elmer | ||
| Protean II xi 细胞电泳槽 | 伯乐(Bio-Rad) | 165-1803 | |
| PowerPac Basic 电源供应器 | Bio-Rad | 164-5050 | |
| SybrGreen II RNA 凝胶染色 | Lonza | 50523 | 在1×TBE中配制1/10,000稀释液,避光保存于4℃ °两周,C |
| Geliance 600 成像系统 | Perkin Elmer |
参考文献
- Druillennec, S., et al. A mimic of HIV-1 nucleocapsid protein impairs reverse transcription and displays antiviral activity. Proc Natl Acad Sci USA. 96, 4886-4891 (1999).
- Darlix, J. L., Garrido, J. L., Morellet, N., Mely, Y., de Rocquigny, H. Properties, functions, and drug targeting of the multifunctional nucleocapsid protein of the human immunodeficiency virus. Adv Pharmacol. 55, 299-346 (2007).
- Thomas, J. A., Gorelick, R. J. Nucleocapsid protein function in early infection processes. Virus Res. 134, 39-63 (2008).
- Mirambeau, G., Lyonnais, S., Gorelick, R. J. Features, processing states, and heterologous protein interactions in the modulation of the retroviral nucleocapsid protein function. RNA Biol. 7, 724-734 (2010).
- Zeng, Y., et al. Probing nucleation, reverse annealing, and chaperone function along the reaction path of HIV-1 single-strand transfer. Proc Natl Acad Sci USA. 104, 12651-12656 (2007).
- Basu, V. P., et al. Strand transfer events during HIV-1 reverse transcription. Virus Res. 134, 19-38 (2008).
- Guo, J., Henderson, L. E., Bess, J., Kane, B., Levin, J. G. Human immunodeficiency virus type 1 nucleocapsid protein promotes efficient strand transfer and specific viral DNA synthesis by inhibiting TAR-dependent self-priming from minus-strand strong-stop DNA. J Virol. 71, 5178-5188 (1997).
- Godet, J., Mely, Y. Biophysical studies of the nucleic acid chaperone properties of the HIV-1 nucleocapsid protein. RNA Biol. 7, 687-699 (2010).
- Darlix, J. L., et al. Flexible nature and specific functions of the HIV-1 nucleocapsid protein. J Mol Biol. 410, 565-581 (2011).
- Lapadat-Tapolsky, M., Pernelle, C., Borie, C., Darlix, J. L. Analysis of the nucleic acid annealing activities of nucleocapsid protein from HIV-1. Nucleic Acids Res. 23, 2434-2441 (1995).
- Vo, M. -N., Barany, G., Rouzina, I., Musier-Forsyth, K. Mechanistic studies of mini-TAR RNA/DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. J Mol Biol. 363, 244-261 (2006).
- Beltz, H., et al. Structural determinants of HIV-1 nucleocapsid protein for cTAR DNA binding and destabilization, and correlation with inhibition of self-primed DNA synthesis. J Mol Biol. 348, 1113-1126 (2005).
- Mori, M., et al. Nucleocapsid Protein: a Desirable Target for Future Therapies against HIV-1. Curr Top Microbiol Immunol. , Forthcoming Forthcoming.
- Sosic, A., et al. Design, synthesis and biological evaluation of TAR and cTAR binders as HIV-1 nucleocapsid inhibitors. MedChemComm. 4, 1388-1393 (2013).
- Tabarrini, O., et al. Studies of Anti-HIV Transcription Inhibitor Quinolones: Identification of Potent N1-Vinyl Derivatives. Chemmedchem. 5, 1880-1892 (2010).
- Hagan, N., Fabris, D. Direct mass spectrometric determination of the stoichiometry and binding affinity of the complexes between nucleocapsid protein and RNA stem-loop hairpins of the HIV-1 Psi-recognition element. Biochemistry. 42, 10736-10745 (2003).
- Ivanyi-Nagy, R., Davidovic, L., Khandjian, E. W., Darlix, J. L. Disordered RNA chaperone proteins: from functions to disease. Cell Mol Life Sciences: CMLS. 62, 1409-1417 (2005).
- Zagotto, G., et al. Tuning G-quadruplex vs double-stranded DNA recognition in regioisomeric lysyl-peptidyl-anthraquinone conjugates. Bioconjug Chem. 22, 2126-2135 (2011).
- Carlson, C. B., Vuyisich, M., Gooch, B. D., Beal, P. A. Preferred RNA binding sites for a threading intercalator revealed by in vitro evolution. Chem Biol. 10, 663-672 (2003).
- Gooch, B. D., Beal, P. A. Recognition of duplex RNA by helix-threading peptides. J Am Chem Soc. 126, 10603-10610 (2004).
- Kanevsky, I., et al. Structural determinants of TAR RNA-DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. Nucleic Acids Res. 39, 8148-8162 (2011).
重印与许可
