悬浮乳腺球实验可用于研究在悬浮条件下存活并在植入小鼠后表现出增强致瘤能力的具有干细胞特性的乳腺癌细胞亚群。本方案提供了一种便捷的方法 体外 球体形成能力的检测,作为替代指标 体内 肿瘤发生,同时有助于分析与干细胞相关的转录图谱。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
与健康组织类似,目前认为许多血液系统和实体恶性肿瘤也具有层级结构,其中存在一类具有干细胞特性的癌细胞亚群,能够自我更新并产生更多分化的子代细胞。在乳腺癌中,这类癌干细胞可能比非干细胞的肿瘤主体具有更强的化疗和放疗抗性,因此对其特性的理解与靶向已成为重要的研究领域。可通过荧光激活细胞分选技术(FACS)检测CD44、CD24及ALDH活性等标志物,前瞻性地分离出在植入免疫缺陷小鼠后具有增强致瘤能力的细胞;此外,乳腺球形成实验(mammosphere assay)也已广泛应用,可用于回溯性鉴定由单个类干细胞克隆发育而来的成球细胞。本文概述了从细胞系或原代患者样本中培养乳腺球的适宜方法、传代操作以及计算成球效率(SFE)的方法。首先,我们将讨论乳腺球实验在合理设计与结果解读中的关键注意事项及常见问题。
引言
由类干细胞的肿瘤干细胞主导的肿瘤细胞谱系的存在,极大地增进了我们对肿瘤异质性的理解。尽管肿瘤中部分表型多样性源于遗传上不同的克隆的克隆性扩增,但相当一部分似乎是由表观遗传差异所致:肿瘤细胞可通过激活或抑制特定的基因表达程序,在干细胞、祖细胞和分化细胞状态之间发生转变(有时可逆)1–3。这种转变可能反映了细胞内在或外在因素的影响,即细胞当前所表达的基因表达程序,及其由此产生的自分泌信号,与邻近肿瘤细胞、间质细胞或免疫细胞通过旁分泌信号传递的调节因子,以及微环境条件(如缺氧程度)共同作用的结果2,4,5。
尽管创新的谱系示踪技术正在提升我们研究假定癌症干细胞在其体内微环境中的能力6–8,球体形成实验仍是一种流行且便捷的方法,用于评估乳腺癌细胞在实验条件下表现出干细胞样行为的潜能。该方法常与基于膜表面标志物CD44和CD24表达水平9以及醛脱氢酶(ALDH)酶活性水平10来富集癌症干细胞的回顾性方法联合使用,这些标志物分别被认为对应于更具间充质样和上皮样特征的癌症干细胞11。球体形成技术最初发展为神经球实验,可在非黏附、无血清条件下添加表皮生长因子(EGF)12,使单克隆来源的假定干细胞得以生长,之后被成功应用于正常及癌变乳腺组织的研究。
成球始祖细胞的身份以及构成球体的混合细胞类型,对于从乳腺球或其他成球实验中得出的推论具有重要意义。长期静息 确凿的 干细胞被认为处于G0期,不会经历有利于其活化的特定因素组合 体内. 乳腺球形成实验则能够促进处于有丝分裂准备阶段或正在进行有丝分裂的细胞生长13这些前体细胞虽然并非真正处于静息状态的细胞,但可能是实验中所使用的表皮生长因子(EGF)和碱性成纤维细胞生长因子(bFGF)有丝分裂原刺激下发生增殖的细胞阶段。然而,它们包含一系列被激活的干细胞相关信号通路。14此外,当通过小鼠异种移植中的有限稀释实验测定其成瘤能力时,这些细胞的形成速率与其来源组织的致瘤性相关。2,15,16.
本文提供了从人乳腺癌细胞系及乳腺肿瘤临床样本中分离单个细胞并生成原代乳腺球的详细实验方案。同时描述了如何对原代乳腺球进行连续传代以评估其自我更新能力,以及如何计算球形成效率,从而实现不同接种密度之间的比较(参见图1中的示意图)。
访问受限。请登录或开始试用以查看此内容。
方案
以下程序已获得伦敦帝国理工学院的伦理批准。
1. 从人乳腺癌细胞系生成原代乳腺球
注意:以下步骤均需在无菌培养罩内进行。
- 配制含DMEM/F12的乳腺球培养基,添加2 mM L-谷氨酰胺、100 U/ml 青霉素和100 U/ml 链霉素。使用前立即加入20 ng/ml 重组人表皮生长因子(EGF;Sigma)和10 ng/ml 重组人碱性成纤维细胞生长因子(bFGF;R&D系统)和1x B27添加剂。
- 吸弃含有贴壁生长的MCF-7或MDA-MB-231细胞(或选用的其他乳腺癌细胞系,70–80%汇合度)的培养瓶中的培养基,用1×PBS洗涤两次,然后用胰蛋白酶消化细胞。
- 在室温下以 200 x g 离心细胞 5 分钟。倾去上清液,并将细胞重悬于 1–5 ml 乳腺球培养基中。用移液器吹打混匀,必要时使用 40 µ使用m细胞筛帽过滤器获得单细胞悬液。使用血细胞计数板确认单细胞悬液是否形成(若未形成,可用25 G针头将细胞悬液吹打至多3次)。
- 必要时,使用抗CD24-藻红蛋白(PE)和抗CD44-异硫氰酸荧光素(FITC)单克隆抗体,通过FACS分选CD44+CD24-细胞亚群9或者,使用磁性激活细胞分选(MACS)系统,按照制造商说明书,采用抗CD44和抗CD24生物素化微珠联合标记来分离该细胞群体。使用LS柱进行阳性分选,使用LD柱进行阴性分选,并通过流式细胞术确认所有分离细胞的表型。17.
- 使用台盼蓝计数每毫升中的活细胞数量。
注意:细胞活力的计算方法为血细胞计数板网格内活细胞数除以总细胞数。能够摄取台盼蓝的细胞被视为非活细胞。以下步骤用于准确测定活细胞比例。- 配制0.4%的台盼蓝PBS溶液。将0.1 ml台盼蓝储备液加入1 ml细胞悬液中。加载血细胞计数板,并立即在显微镜下用低倍镜观察。计数总细胞数和呈蓝色染色的细胞数。
活细胞数 = [1.00 –(蓝色细胞数量 ÷ 总细胞数 × 100. - 为计算每毫升培养液中的活细胞数量,请使用以下公式。注意校正稀释倍数。
活细胞数量 × 104 × 1.1 = 细胞数/毫升培养物
- 配制0.4%的台盼蓝PBS溶液。将0.1 ml台盼蓝储备液加入1 ml细胞悬液中。加载血细胞计数板,并立即在显微镜下用低倍镜观察。计数总细胞数和呈蓝色染色的细胞数。
- 在6孔超低吸附培养板的每孔中,用2 ml完全型乳腺球培养基重悬预定数量的细胞。接种密度通常为500–4,000个细胞/cm²2 每孔细胞数。可选方案:以相同密度将细胞接种于含0.5 ml培养基的低吸附24孔板中。
注意:建议针对每种目标细胞系优化接种密度和培养时间。 - 在37℃下孵育超低吸附6孔板 °C 和 5% CO2 培养5-10天(具体时间取决于细胞系和乳腺球的大小),期间避免扰动培养板,尤其是在前5天的生长期。
2. 从人类乳腺癌临床样本生成原代乳腺球
注意:人类乳腺癌组织可从接受乳腺肿瘤切除手术的患者处获取。将组织置于含有100 U/ml青霉素和100 U/ml链霉素的培养基中,于50 ml无菌试管内冰上保存,时间不超过24小时。以下所有步骤均须在无菌培养罩内进行。
- 将样品转移至含有少量培养基的100 mm组织培养皿中。使用无菌剪刀、手术刀和镊子去除脂肪组织。
- 加入 2–3 ml DMEM/F12,将样品切碎至约 1 mm 大小3 使用无菌手术刀或剃刀片将组织切碎,直至无大块残留。
- 将组织块重悬于预热的含有蛋白水解酶的10 ml DMEM中(3,000 U/ml胶原酶和1,000 U/ml透明质酸酶),于37 °在旋转摇床中孵育,直至所有组织碎片完全消化。通常完全消化需要1-3小时。根据肿瘤的病理特征调整消化时间(例如,乳腺腺癌通常较难消化,而黏液性癌较脆弱,所需消化时间较短)。每隔一定时间评估消化程度 ½ 小时,通过观察20 µ血细胞计数板下的悬浮液
- 让碎片沉降5分钟,然后将上清液转移至15 ml圆锥形聚丙烯管中,在室温下以200 × g离心10分钟。小心倾去上清液,并将细胞重悬于1–5 ml乳腺球培养基中。
- 按照上述1.1–1.4步骤处理细胞系,以获得并接种单细胞悬液。必要时,最多通过25 G注射器吹打细胞2次,以尽量减少对细胞的损伤。
3. 乳腺球形成效率(%)计算
- 培养结束后,在40倍显微镜下计数直径大于40 µm的乳腺球。使用光学显微镜连接的数码相机随机拍摄5个视野的图像,并利用采集软件测定乳腺球的大小。可使用任何图像分析软件。
- 使用以下公式计算乳腺球形成效率(MFE%):
MFE (%) =(每孔乳腺球数量)/(每孔接种细胞数量)× 100
4. 用于评估自我更新能力的乳腺球连续传代
- 将含有乳腺球的培养基从每个孔转移至15 ml离心管中。用PBS洗涤各孔,并将洗涤液加入收集的培养基中。在室温下以115 × g离心10分钟。
- 弃去上清液,将沉淀重悬于500 µl预热的0.5%胰蛋白酶/0.2% EDTA溶液中。孵育2–3分钟。
- 加入500 µl胎牛血清(FCS)以中和胰蛋白酶。在500 × g下离心5分钟。弃去上清液,将沉淀重悬于100 µl乳腺球培养基中,反复吹打以分散成单个细胞悬液。
- 使用血细胞计数板计数细胞,并确认细胞是否呈单细胞悬液状态。若未完全分散,可使用25 G针头注射器吹打最多3次以获得单细胞。将细胞以与初次培养相同的密度接种至新的超低吸附6孔板中。
- 培养5–10天后,计数直径>40 µm的球体,并使用先前报道的公式计算成球效率。
访问受限。请登录或开始试用以查看此内容。
结果
不同样本或接受不同处理的样本在乳腺球数量上可能存在差异 >40 µm 在对初始接种细胞数进行归一化处理后计算成球数。针对每种处理条件,以三复孔为一组计算乳腺球形成效率(MFE),以便比较不同接种密度的实验结果。数据宜以柱状图呈现,理想情况下应包含阳性和阴性对照,并显示三复孔之间的标准差。贴壁细胞应在60–80%汇合度时 consistently 转移至非黏附培养板中。准确的细胞计数对于精确量化处理效应至关重要。可通过从同一处理孔中独立制备多个细胞悬液,评估该关键步骤对实验结果变异性的贡献程度。若测得的细胞浓度在同一孔间存在显著差异,应考虑优化计数方法。图2).
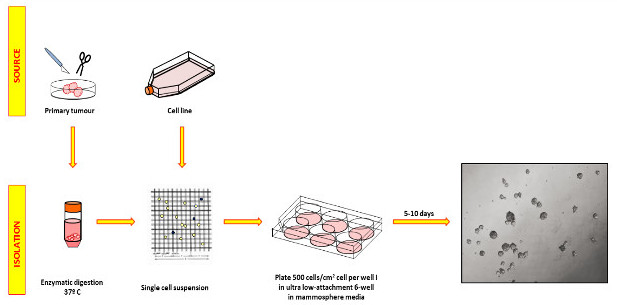
图1:原发性乳...
访问受限。请登录或开始试用以查看此内容。
讨论
成功评估原代和继代乳腺球体依赖于将细胞以足够低的密度接种,从而使乳腺球体由单克隆形成,并尽量减少球体聚集。然而,若密度过低,则可能形成的乳腺球体数量过少,难以在统计学上区分处理因素的影响。接种密度应针对所使用的每种细胞系进行优化,因为不同细胞系在成球效率上可能存在显著差异(例如,低表达E-钙黏蛋白的细胞可能形成稳定性较差且维持时间较短的乳腺球体培养物18)。该优化阶段应确保大多数原代和继代球体的形成为单个细胞的克隆性生长结果。每孔接种一个细胞是完全确保克隆性乳腺球体形成的唯一方法,建议用于量化新分离样本的自我更新/分化速率13。然而,这种方法也存在复杂因素:若成球效率为1%,则每块96孔板仅能形成一个乳腺球体,且由于悬浮细胞间旁分泌生长因子信号缺失,形成的球体数量减少,可能导致效率被低估。最后,传代后继代球体的出现频率可用于估算自我更新水平,若确实富集了具有肿瘤干细胞特性的细胞,则继代球体的形成效率应高于原代球体。在获得继代球体时,再聚集是一个特别需要注意的问题,应针对特定细胞类型优化至适当的极低细胞密度。
乳腺球生长至>40 µ...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何可能被视为影响本文公正性的利益冲突。
致谢
本工作由帝国理工生物医学研究中心(Imperial BRC)、国家健康研究所(National Institute for Health Research)以及抗癌行动组织(Action Against Cancer)资助,特别鸣谢 Hilary Craft 和 Sir Douglas Myers。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM/F12 | Lonza | CC-3151 | |
| 2 mM L-谷氨酰胺 | Sigma Aldrich | G8540 | |
| 100 U/ml 青霉素 &氨苄青霉素和链霉素 | Sigma Aldrich | P4083 | |
| 20 ng/ml 重组人表皮生长因子(EGF) | Sigma Aldrich | E9644 | |
| 20 ng/ml 重组人碱性成纤维细胞生长因子(bFGF) | R&D系统 | 233-FB-025 | |
| 1x B27添加剂 | Invitrogen | 17504-044 | |
| 磷酸盐缓冲液(PBS) | 赛默飞世尔科技 | 12399902 | |
| 0.5% 胰蛋白酶/0.2% EDTA | Sigma Aldrich | 59418C | |
| 胎牛血清 | 英国首个链接 | 02-00-850 | |
| 台盼蓝 | Sigma Aldrich | 93595 | |
| 低吸附6孔板 | 康宁 | CLS3814 | |
| I型胶原酶A | Sigma Aldrich | C9891 | |
| 透明质酸酶 | Sigma Aldrich | H3506 | |
| 无菌剃须刀片 | Fisher Scientific | 12443170 | |
| 无菌手术刀 | Fisher Scientific | 11758353 | |
| 无菌显微解剖剪 | Sigma Aldrich | S3146 |
参考文献
- Iliopoulos, D., Hirsch, H. a, Struhl, K. An epigenetic switch involving NF-kappaB, Lin28, Let-7 MicroRNA, and IL6. Cell. 139 (4), 693-706 (2009).
- Iliopoulos, D., Hirsch, H. a, Wang, G., Struhl, K. Inducible formation of breast cancer stem cells and their dynamic equilibrium with non-stem cancer cells via IL6 secretion. Proc Natl Acad Sci U S A. 108 (4), 1397-1402 (2011).
- Visvader, J. E., Lindeman, G. J. Cancer stem cells: current status and evolving complexities. Cell stem cell. 10 (6), 717-728 (2012).
- Rosen, J. M., Jordan, C. T. The increasing complexity of the cancer stem cell paradigm. Science. 324 (5935), 1670-1673 (2009).
- Rokavec, M., Wu, W., Luo, J. -L. IL6-mediated suppression of miR-200c directs constitutive activation of inflammatory signaling circuit driving transformation and tumorigenesis. Mol Cell. 45 (6), 777-789 (2012).
- Chen, J., Li, Y., et al. A restricted cell population propagates glioblastoma growth after chemotherapy. Nature. 488 (7412), 522-526 (2012).
- Driessens, G., Beck, B., Caauwe, A., Simons, B. D., Blanpain, C. Defining the mode of tumour growth by clonal analysis. Nature. 488 (7412), 527-530 (2012).
- Schepers, A. G., Snippert, H. J., et al. Lineage tracing reveals Lgr5+ stem cell activity in mouse intestinal adenomas. Science. 337 (6095), 730-735 (2012).
- Sheridan, C., Kishimoto, H., et al. CD44+/CD24- breast cancer cells exhibit enhanced invasive properties: an early step necessary for metastasis. Breast cancer research: BCR. 8 (5), R59(2006).
- Ginestier, C., Hur, M. H., et al. ALDH1 is a marker of normal and malignant human mammary stem cells and a predictor of poor clinical outcome. Cell stem cell. 1 (5), 555-567 (2007).
- Liu, S., Cong, Y., et al. Breast Cancer Stem Cells Transition between Epithelial and Mesenchymal States Reflective of their Normal Counterparts. Stem cell reports. 2 (1), 78-91 (2014).
- Reynolds, B. A., Weiss, S. Generation of neurons and astrocytes from isolated cells of the adult mammalian central nervous system. Science. 255 (5052), http://www.ncbi.nlm.nih.gov/pubmed/1553558 1707-1710 (1992).
- Pastrana, E., Silva-Vargas, V., Doetsch, F. Eyes wide open: a critical review of sphere-formation as an assay for stem cells. Cell stem cell. 8 (5), 486-498 (2011).
- Dontu, G., Abdallah, W. M., et al. In vitro propagation and transcriptional profiling of human mammary stem / progenitor cells. Genes Dev. , 1253-1270 (2003).
- Ponti, D., Costa, A., et al. Isolation and in vitro propagation of tumorigenic breast cancer cells with stem/progenitor cell properties. Cancer Res. 65 (13), 5506-5011 (2005).
- Grimshaw, M. J., Cooper, L., et al. Mammosphere culture of metastatic breast cancer cells enriches for tumorigenic breast cancer cells. Breast Cancer Res. 10 (3), R52(2008).
- Pham, P. V., Phan, N. L. C., et al. Differentiation of breast cancer stem cells by knockdown of CD44: promising differentiation therapy. J Transl Med. 9 (1), 209(2011).
- Manuel Iglesias, J., Beloqui, I., et al. Mammosphere formation in breast carcinoma cell lines depends upon expression of E-cadherin. PloS one. 8 (10), e77281(2013).
- Coles-Takabe, B. L. K., Brain, I., et al. Don’t look: growing clonal versus nonclonal neural stem cell colonies. Stem Cells. 26 (11), 2938-2944 (2008).
- Stingl, J. Detection and analysis of mammary gland stem cells. J Pathol. 217 (2), 229-241 (2009).
- Kreso, A., Dick, J. E. Evolution of the cancer stem cell model. Cell stem cell. 14 (3), 275-291 (2014).
- Al-Hajj, M., Clarke, M. F. Self-renewal and solid tumor stem cells. Oncogene. 23 (43), 7274-7282 (2004).
- Yu, F., Yao, H., et al. let-7 regulates self renewal and tumorigenicity of breast cancer cells. Cell. 131 (6), 1109-1123 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
