通过将溶血卵磷脂局部施用于中枢神经系统,可以在动物体内建立脱髓鞘疾病的模型。向小鼠脊髓单次注射溶血卵磷脂可产生一处病灶,该病灶会随时间推移自发修复。本研究的目的是探讨参与脱髓鞘及再髓鞘化过程的相关因素,并测试能够促进修复的干预手段。
本文内容
摘要
摘要
多发性硬化症是一种中枢神经系统的炎性脱髓鞘疾病,其特征是形成包含少突胶质细胞、髓鞘、轴突和神经元丢失的斑块。髓鞘再生是一种内源性修复机制,通过少突胶质前体细胞增殖、募集并分化为形成髓鞘的少突胶质细胞,从而产生新的髓鞘,以保护轴突免受进一步损伤。目前,所有用于治疗多发性硬化症的药物均靶向疾病的异常免疫成分,虽可减少炎症性复发,但无法阻止疾病进展至不可逆的神经功能衰退。因此,迫切需要开发促进髓鞘再生的治疗策略,以延缓疾病进展,甚至逆转神经症状。目前已存在多种脱髓鞘动物模型,包括实验性自身免疫性脑脊髓炎和铜腙模型;然而,这些模型在研究髓鞘再生方面存在一定局限性。一种更为可靠的方法是将毒素局部注射到中枢神经系统,例如将去污剂溶血卵磷脂注射到啮齿类动物脊髓的白质区域。在本实验方案中,我们证明将溶血卵磷脂注射至小鼠腹侧白质的手术操作快速、经济,并且仅需市售常规材料即可完成。该方法不仅对于研究髓鞘再生过程中的正常生物学事件具有重要意义,同时也可作为临床前筛选促进髓鞘再生候选药物的有效工具。
引言
多发性硬化症(MS)是一种中枢神经系统(CNS)的慢性脱髓鞘疾病,其特征是免疫细胞浸润以及病灶区域中髓鞘、少突胶质细胞、轴突和神经元的丧失。大多数患者的病程表现为伴随广泛神经系统症状的炎症性复发,随后进入缓解期。超过半数的患者最终会转变为继发进展型,此阶段无明显复发,但神经系统功能持续恶化。这种进行性神经功能衰退被认为主要由轴突损伤和丢失引起,其中慢性脱髓鞘起到了部分作用。因此,恢复丧失髓鞘的策略被视为一种有前景的治疗方法,有望延缓疾病进展,甚至逆转神经系统症状。
髓鞘再生是中枢神经系统中的一种内源性修复反应,通过募集少突胶质前体细胞(OPCs),使其分化为形成髓鞘的少突胶质细胞,从而生成新的髓鞘。动物模型研究表明,髓鞘再生能力相当强1-3,但其效率随年龄增长而下降4。事实上,人类也存在髓鞘再生现象,但在大多数多发性硬化症(MS)患者中这一过程并不完全5。目前所有可用的MS治疗药物主要针对疾病的异常免疫成分,虽然在减少复发方面有效,但并不能显著延缓疾病的进展。下一代MS治疗策略将结合免疫调节的进展与增强内源性髓鞘再生的能力,以同时预防复发和疾病进展6。
研究中枢神经系统脱髓鞘和再髓鞘化的一种方法是将去污剂溶血磷脂酰胆碱(lysolecithin)直接注射到脊髓白质中1,3,7。该操作可产生特征明确的脱髓鞘损伤,主要表现为巨噬细胞/小胶质细胞浸润与活化8,9、反应性星形胶质增生、轴突稳态紊乱/轴突损伤,以及少突胶质前体细胞(OPC)的增殖与迁移10。该病灶在数周内可按可预测的进程演变,并最终实现完全的再髓鞘化。该方法在研究脱髓鞘与再髓鞘化过程中事件的时序性方面尤为有用,同时也已被用作临床前评估候选治疗手段以加速脱髓鞘损伤后修复的工具。
方案
注意:本实验所使用的动物均按照加拿大动物护理委员会(CCAC)的指南进行饲养和管理。伦理批准由卡尔加里大学动物护理委员会批准。
1. 准备注射器以进行注射
- 将溶血卵磷脂溶于磷酸盐缓冲液(PBS;pH 7.4)中,配制成1%溶液,并以小份(75 μl)分装后于-20 °C保存。使用前将一支分装管恢复至室温。
注意:若溶血卵磷脂未完全溶解,可将管子置于超声波清洗器(40 kHz)中超声约30分钟,以形成均匀溶液。 - 操作预拉制的玻璃毛细管时需格外小心,避免损坏其精细的尖端。取一支10 μl注射器,拧下螺帽,将其套在毛细管的平头端,随后依次装入两个卡套,确保卡套的对接端对齐,并使毛细管紧密嵌入锥形卡套中(图1)。用异丙醇冲洗注射器,并取出推杆。待干燥后,用手将针头组件拧紧至注射器上。
- 将引液用金属接头针连接至引液注射器。用针头刺穿橡胶垫片,并将其沿针滑至底部。向引液注射器中加入溶血卵磷脂溶液。轻压引液注射器活塞,直至针尖处可见液体流出。此步骤可确保不会将气泡引入注射用注射器中。
- 将引液注射器的金属接头针插入注射用注射器中。确保橡胶垫片形成牢固密封,缓慢推动引液注射器活塞,直至溶液充满毛细管尖端。在小心拔出引液注射器的同时继续轻压活塞,使注射器筒内充满液体且不引入气泡。将推杆插入注射用注射器,轻压推杆,确认溶液能从毛细管尖端顺利流出。
注意:若在毛细管或注射用注射器中观察到任何气泡,则必须从头重新制备注射器。注射装置内液体的连续性对于确保精确注射体积至关重要。 - 将组装完成的注射用注射器固定于立体定位仪微操臂上。该完整装置在需要重新加样前可连续用于15–20只动物的注射。
- 弃去引液注射器中剩余的溶血卵磷脂溶液。反复抽吸并推出异丙醇数次,随后拆下金属接头针。等待数小时,待引液注射器中残留的异丙醇完全蒸发后,方可再次加样使用。
2. 手术前准备动物
注意:本实验步骤适用于8至10周龄的雌性C57BL/6小鼠。
- 按照机构动物护理规定,通过腹腔注射氯胺酮(200 mg/kg)和赛拉嗪(10 mg/kg)对动物进行麻醉。若使用注射麻醉,预计动物麻醉时间约为1小时。
- 用力捏压动物足部以检测其是否处于深度麻醉状态。正确麻醉的动物对捏压无反应。
- 使用电推剪在动物背部靠近耳朵的区域剃除约2–3 cm2的毛发。操作时注意避免损伤耳朵。
- 用浸有70%乙醇的纱布擦拭该区域,确保清除所有剪下的毛发,并用碘酒对该区域进行消毒。
- 在动物眼睛上涂抹凡士林,以防止手术过程中角膜干燥。
- 在开始手术前,将动物置于加热的恢复舱中保温。
3. 实施手术操作
注意:确保在操作的每一步骤中都采用充分的无菌技术。这包括正确使用手套、发网、口罩和无菌单。所有器械在接触动物之前均应进行灭菌处理。
- 将动物置于立体定位仪中,背侧朝上,用折叠的纸巾垫高身体中部,以增强脊柱的弯曲程度。用手术胶带固定四肢和尾巴,并用门齿夹固定头部。本操作无需使用耳杆进行稳定。
- 使用手术刀从耳后下方开始,沿中线向尾侧做一条长约3 cm的切口。
- 找到两侧大型脂肪组织之间的分界,双手各持精细镊子将其分开。放置牵开器以充分暴露手术视野。
- 在手术显微镜下,定位T2椎骨明显的突起结构(注:此特征为C57BL/6小鼠品系所特有)。使用闭合的弹簧剪对覆盖其上的肌肉组织进行钝性分离,以更清晰地暴露T2。用镊子触诊T3和T4椎骨的坚硬表面,确认解剖位置正确。
- 使用弹簧剪在T3与T4之间的结缔组织上做浅层侧向切口(深度约2–3 mm)。由于小鼠脊柱上胸段椎骨之间存在自然间隙,无需进行椎板切除即可暴露脊髓。注意切口不宜过深,以免刺破并损伤脊髓。
注:此步骤中少量出血较为常见。若发生出血,将海绵探针轻压于出血区域直至出血停止(30–60秒)。 - 观察脊髓。若在暴露脊髓过程中未剪开脑膜层,则脊髓表面将覆盖一层明显的厚实硬脑膜。一条显著的血管沿脊髓背侧中线附近走行,方向为尾侧/头侧。
注:不应将该血管作为中线定位标志。应通过充足照明观察脊髓背柱两侧的灰质-白质分界线,并以此估算中线位置。 - 若硬脑膜仍完整,使用32 G金属针轻轻向侧方刮除,直至清除。目标是在不损伤下方较薄且不易观察的其他脑膜层的前提下去除硬脑膜。
注:若出现脑脊液流出,提示蛛网膜已破裂;尽管组织未受机械性损伤也可能发生此情况,但仍需使用海绵探针吸除积聚的脑脊液,以便更清晰地观察脊髓表面。 - 将注射针管就位,缓慢下放,直至毛细管尖端刚好接触脊髓中线两侧附近的表面。锁定机械臂位置。
- 利用Z轴立体定位臂的刻度读取基准位置数值,从此数值中减去1.3 mm。以快速而浅表的向下动作刺入组织,随后小心降低毛细管,直至达到新的目标深度。可选:如需在背柱产生损伤,可在中线处以相同穿刺动作,深度控制在0.3 mm(详见讨论部分)。
注:上述数值适用于T3与T4之间区域的注射。若选择在脊髓其他部位进行注射,需根据可用的小鼠脑图谱重新确定相应参数。 - 使用显微操作器将溶血卵磷脂注入脊髓腹侧白质。每5秒旋转显微操作器一次,持续2分钟,最终注射体积为0.5 μl。注射完成后保持毛细管原位2分钟,防止液体回流,随后小心拔出毛细管。
- 在覆盖脊柱的肌肉/脂肪组织上打一个结扎缝合线。采用连续缝合法关闭皮肤切口。在切口处再次涂抹碘伏。
- 将动物放入加热的恢复舱中直至苏醒,然后放回笼中。根据机构动物护理规范给予术后镇痛处理。通常无需额外术后护理,因为动物在麻醉恢复后即可完全自主活动,并能自行进食和饮水。
- 对剩余动物重复上述操作。
注:熟练操作后,每只动物的手术时间可缩短至10–15分钟,尤其在有助手协助缝合的情况下。同一根玻璃毛细管可重复使用约15–20次,直至尖端变钝后需更换。对照组手术可完全按照上述步骤进行,仅将溶血卵磷脂替换为PBS注入脊髓。我们不建议清洗毛细管以供后续使用。
4. 组织处理与分析
- 在预定时间点,通过腹腔注射过量的氯胺酮(500 mg/kg)和赛拉嗪(25 mg/kg)处死动物。病灶通常按以下方式演变:1–3 天,活动性脱髓鞘;3–7 天,少突胶质前体细胞(OPC)募集;7–10 天,少突胶质细胞分化;10–21 天,活动性再髓鞘化2,10,11。
- 为进行组织学制备,首先用 20 ml 室温磷酸盐缓冲液(PBS)进行经心灌注12,随后用 20 ml 冰冷的含 4% 多聚甲醛的 PBS 灌注。如需制备用于半薄或超薄切片的树脂包埋组织,请参见步骤 4.9。
- 使用弯头骨剪从脊柱颈段开始向下至下胸段,逐个剪开椎骨以取出脊髓。将脊髓在含 4% 多聚甲醛的 PBS 中于 4 °C 固定过夜。随后将脊髓转移至含 30% 蔗糖的 PBS 中,于 4 °C 至少保存 72 小时。
- 在脊髓背侧表面识别注射部位的异常区域。切取一段 3 mm 的组织(注射部位位于中央),并将组织块整齐排列于含有最佳切割温度(OCT)包埋剂的冷冻模具中。将冷冻模具底部浸入由 2-甲基丁烷与干冰组成的冷浴中,直至 OCT 完全冻结。保存于 -80 °C,待切片时取出。
- 在恒冷箱切片机上将脊髓组织切成 20 μm 厚的切片,并贴附于载玻片上,室温下晾干过夜 ,然后将载玻片存于 -20 °C。
- 使用嗜星青(eriochrome cyanine)组织化学染色法检测髓鞘以确定病灶位置和大小13。所有步骤均在室温下进行。将载玻片晾干 30 分钟。将载玻片置于透明剂中 1 分钟,随后依次在梯度乙醇溶液(100%、95%、90%、70%、50%、水)中各浸润 1 分钟进行再水化。
- 将载玻片置于嗜星青染液中染色 15 分钟,然后用蒸馏水冲洗 1 分钟。用 0.5% 氨水分化 10 秒,再用蒸馏水冲洗 1 分钟。随后按梯度乙醇(顺序与上述相反)脱水,每步 1 分钟,用封片介质封片,并在明场显微镜下观察成像。
- 使用免疫组织化学方法对轴突和髓鞘进行可视化。将载玻片晾干 30 分钟。在室温下依次用梯度乙醇(水、50%、70%、90%、95%、100%)脱水,每步 2 分钟,然后按相反顺序再水化至水。此步骤可提高单个髓鞘环的分辨效果14。
- 在室温下用含 10% 山羊血清和 0.25% Triton X-100 的 PBS 封闭非特异性抗体结合位点,孵育 60 分钟。将一抗(小鼠抗 SMI312 1:2,000,兔抗 MBP 1:1,000)用 PBS 稀释后,于 4 °C 在载玻片上孵育过夜。
- 在室温下用 PBS 洗涤 5 次,每次 5 分钟。将二抗(Alexa 488 标记抗兔抗体 1:500,Alexa 546 标记抗小鼠抗体 1:500)用 PBS 稀释后,在室温下孵育 60 分钟。再次用 PBS 洗涤 5 次,每次 5 分钟。用 Gelvatol 封片介质封片,并在荧光显微镜下观察成像。
- 使用免疫组织化学方法对少突胶质细胞谱系的细胞进行可视化。按照步骤 4.7 的流程操作,但省略脱水/再水化步骤,并使用 10% 马血清代替山羊血清。使用以下一抗稀释比例:山羊抗 PDGFRα 1:100,小鼠抗 CC1 1:200,兔抗 Olig2 1:200。使用以下二抗稀释比例:Alexa 488 标记抗山羊抗体 1:500,Alexa 594 标记抗小鼠抗体 1:500,Alexa 647 标记抗兔抗体 1:500。
- 为制备用于半薄或超薄切片的组织,首先用 20 ml 室温 PBS 进行经心灌注12,随后用 20 ml 冰冷的含 4% 多聚甲醛和 1% 戊二醛的 PBS 灌注。按照步骤 4.3 所述方法取出脊髓。在含 4% 多聚甲醛和 1% 戊二醛的 PBS 中于 4 °C 固定过夜。
- 按照步骤 4.4 所述方法确定注射部位。切取包含注射部位的 1 mm 组织块。如有需要,也可在病灶两侧各制备额外的 1 mm 组织块。
- 在通风橱中,向每个置于冰上的组织块加入 10 倍体积的含 1% 四氧化锇和 1.5% 亚铁氰化钾的溶液,孵育 60 分钟。
注意:四氧化锇为高毒性物质,操作时应极度谨慎。所有接触过四氧化锇的材料均应放入玉米油中(油体积为四氧化锇溶液体积的两倍)以中和毒性。 - 在室温下用 0.2 M 卡可基酸盐缓冲液洗涤组织块 3 次,每次 10 分钟,废液倒入玉米油中处理。在室温下依次用梯度乙醇溶液(水、50%、70%、90%、95% 两次、100% 两次、丙酮氧化物两次)脱水,每次 10 分钟。
- 按照制造商说明书将组织块包埋于树脂中。
- 在超薄切片机上切片,并将切片转移至载玻片上的水滴中。将载玻片置于加热板上(约 50 °C)直至干燥。
- 在 50 °C 下向载玻片滴加数滴 1% 甲苯胺蓝/2% 硼砂溶液,染色 10–15 秒以显示髓鞘。用蒸馏水冲洗,干燥后用封片介质封片,并在明场显微镜下观察成像。
结果
将溶血卵磷脂定点注射至腹侧白质,可产生一个局限性脱髓鞘病灶,其范围在约3 mm的距离内可被检测到(图2)。对病灶中心进行髓鞘(MBP)和轴突(SMI312)的免疫组织化学染色显示,在注射后7天,轴突已失去髓鞘包裹(图3)。至14天时,许多轴突周围出现MBP阳性环状结构,提示已发生再髓鞘化。对少突胶质细胞谱系细胞(PDGFRα、Olig2、CC1)的染色显示,与7天相比,14天时细胞总数显著增加,且成熟少突胶质细胞相对于少突胶质前体细胞(OPCs)的分布比例也更高(图4)。与此结果一致,甲苯胺蓝染色的半薄切片显示,14天时可见大量薄层髓鞘结构,而在7天时极少观察到(图5),表明这些为再髓鞘化的结间段。
该操作在不同动物之间具有高度可重复性。当呼吸过重影响毛细血管的静止位置时,会出现变异——但在充分镇静的情况下通常不会成为问题。除损伤中心区域外,轴突的损伤似乎极小,这一点自该模型最早使用以来已有描述1。我们认为这是玻璃毛细管造成的机械性损伤,因为在PBS注射对照组中也可观察到类似现象。尽管如此,实验变异通常较小,我们以及采用类似操作的其他研究者均发现,每组仅使用4只动物即可检测出不同实验条件之间的差异15。
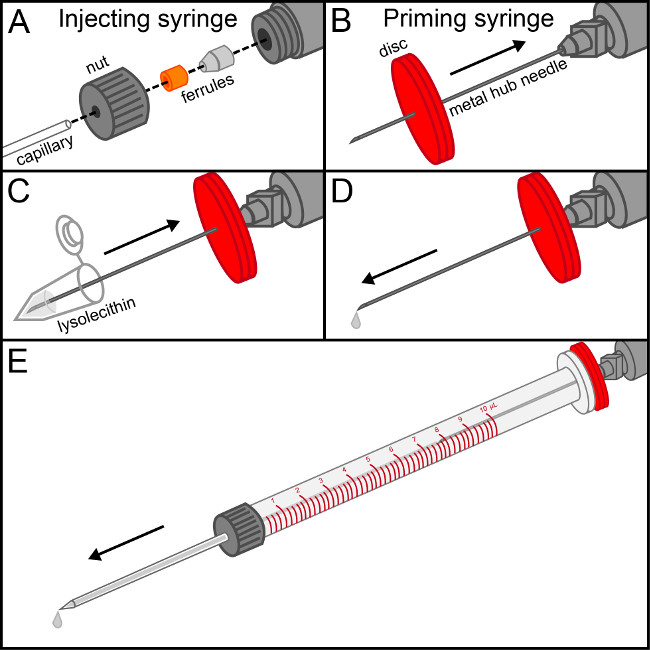
图1. 注射用注射器的组装。 (A) 将注射器的螺母旋入玻璃毛细管的平端,随后装入两个卡套,使其配合端相互锁紧。当毛细管牢固地嵌入锥形卡套后,将整个组件用手拧紧至注射器末端。 (B) 用连接在预充注射器上的金属针头刺穿橡胶垫片中心,并将其滑至底部。 (C) 将溶血磷脂酰胆碱溶液吸入预充注射器中。 (D) 轻轻推动预充注射器推杆,直至针尖处可见第一滴溶血磷脂酰胆碱液滴。 (E) 将预充注射器插入注射器筒体内,使橡胶垫片形成严密密封。轻轻推动溶液,使其流至毛细管末端。在保持推杆压力的同时,小心拔出预充注射器,以移除金属针头且不向注射器内引入气泡。请点击此处查看该图的放大版本。
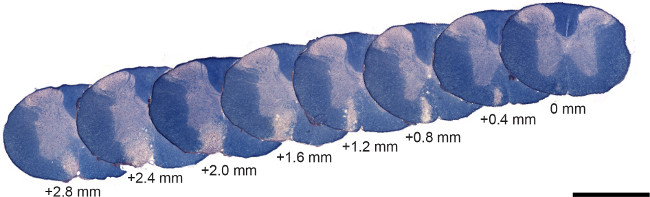
图 2. 使用茜素蓝染色的溶血卵磷脂损伤代表性图像。 典型溶血卵磷脂损伤在术后14天取材,连续切片(间隔400 μm),使用茜素蓝染色以显示髓鞘(蓝色)。请注意,脱髓鞘病变局限于腹侧白质,病损在头尾方向上跨度约为3 mm。比例尺 = 1 mm。 请点击此处查看该图的放大版本。
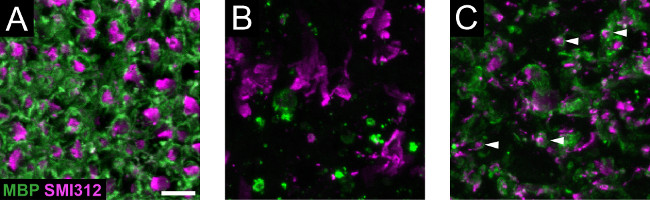
图3. 溶血卵磷脂模型中的轴突与髓鞘。(A) 注射磷酸盐缓冲液(PBS)的假手术对照组脊髓在第7天显示健康的轴突,周围被完整的髓鞘环包围。(B) 溶血卵磷脂损伤部位在第7天显示出裸露的轴突以及降解的髓鞘。(C) 到第14天时,部分轴突(示例以白色箭头标示)重新出现髓鞘环。比例尺 = 10 μm。请点击此处查看该图的放大版本。
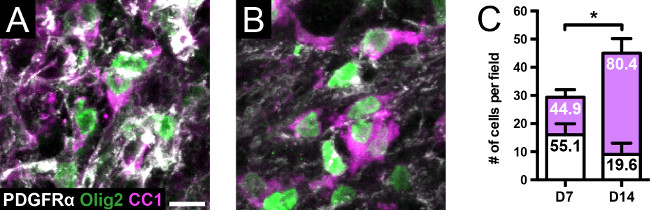
图4. 溶血卵磷脂模型中的少突胶质细胞谱系细胞。(A, C) 在损伤后7天,PDGFRα+少突胶质前体细胞(白色柱)的比例高于CC1+少突胶质细胞(品红色柱);柱内数字表示百分比。使用Olig2标记以确认少突胶质细胞谱系细胞的染色特异性。(B, C) 在14天时,与7天相比,少突胶质细胞谱系细胞总数显著增加(p <0.05,双尾t检验,每组n = 4)。此外,与7天相比,14天时少突胶质细胞与前体细胞的比例分布也显著升高(p <0.0001,Fisher精确检验)。比例尺 = 10 μm。每个视野的原始放大倍数为60倍。数据以均值 ± 标准差表示。* 表示 p <0.05。请点击此处查看该图的放大版本。
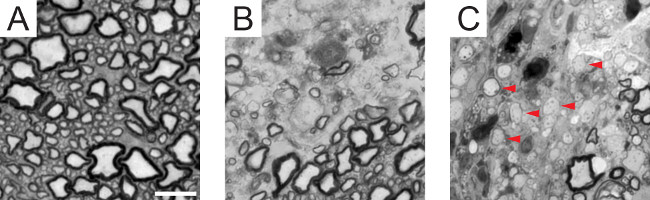
图 5. 溶血卵磷脂模型中的髓鞘再生。(A) 健康小鼠腹侧白质的横截面半薄切片经甲苯胺蓝染色,显示不同直径的轴突及其相应的髓鞘厚度。(B) 7 天时,在未受影响区域(右下角)附近可见髓鞘缺失。(C) 14 天时,病灶区域内出现薄层髓鞘(示例以红色箭头标示),提示存在再髓鞘化节段。比例尺 = 10 μm。请点击此处查看该图的放大版本。
讨论
已开发出多种动物模型用于研究多发性硬化症(MS),其中最广为人知的是实验性自身免疫性脑脊髓炎(EAE)模型。在EAE模型中,啮齿类动物被免疫一种髓鞘肽片段,随后出现炎性病灶,并表现为进行性瘫痪。尽管该模型在免疫调节类MS药物的临床前测试中具有重要价值,但在研究髓鞘再生方面存在三个主要局限性:首先,炎性病灶的位置具有一定的随机性,在对组织进行半薄或超薄切片处理时,定位病灶较为困难。其次,髓鞘再生具有特定的时间进程,而单个EAE病灶的确切形成时间若无持续的非侵入性磁共振成像监测则无法确定。第三,髓鞘再生在啮齿类动物中是一种自然发生的现象,因此在EAE模型中观察到药物治疗后出现的髓鞘再生证据,可能并非药物的直接作用结果,而是由减轻炎症所引发的继发现象。
另一种常见的诱导脱髓鞘方法是通过饮食引入铜螯合剂环己酮(cuprizone)。这种方法会导致广泛的脱髓鞘,尤其在胼胝体中表现显著。然而,将胼胝体作为再髓鞘化研究位点存在以下局限性:首先,该区域的轴突直径(因而髓鞘厚度)小于中枢神经系统的其他区域,因此新形成的薄髓鞘可能与从未发生过脱髓鞘的正常髓鞘难以区分。其次,由于小鼠胼胝体中含有>70%的无髓鞘轴突16,因此尚不明确所观察到的再髓鞘化片段究竟是对受损髓鞘的真实修复,还是成年期正常存在的全新髓鞘形成(de novo myelin synthesis)17。
我们认为,研究髓鞘再生的最佳模型是将溶血卵磷脂、溴化乙锭或其他毒素直接注射到尾侧大脑脚18或脊髓白质中。前者只能通过精确的三维立体定位注射实现,且由于小脑脚体积较小,该方法仅适用于体型较大的啮齿类动物(如大鼠),从而限制了在脱髓鞘与再髓鞘研究中广泛应用转基因小鼠这一丰富资源。相比之下,脊髓含有许多较大且易于通过手术暴露的白质通路。在胸段前部,椎骨之间的间隙允许暴露脊髓,而无需进行腰椎板切除术——这是胸段后部手术所必需的步骤。特别靶向腹侧白质的一个优势在于,其轴突尺寸比背侧白质更为均一且更大,使得髓鞘再生的定量分析更为明确,这一点与胼胝体研究中面临的挑战类似。此外,腹侧白质提供了更大的注射靶区:在背侧区域横向偏移数百微米可能导致毛细管超出白质柱范围,而相同程度的腹侧偏移仍可形成显著的脱髓鞘病灶。一些实验方案会在同一只动物的背侧和腹侧白质柱中均注射溶血卵磷脂19,这既能提高毛细管定位准确的概率,也能在更少的动物中获得更多的可定量病灶。尽管目前所提供的数据来自手术时8至10周龄的动物,但我们同样在8至10月龄的小鼠中成功应用了相同的操作流程,而在此类年长小鼠中,髓鞘再生过程被描述为显著减缓4。
髓鞘再生的定量并非易事。一个核心观点认为,与健康的髓鞘相比,再生髓鞘节段通常更短且更薄,因此通过横截面半薄或超薄切片计算g比值(轴突直径除以轴突加髓鞘的总直径)已成为标准方法。然而,已知再生髓鞘会随着时间推移逐渐增厚2,而最近一项利用少突胶质细胞再生报告基因的研究表明,许多髓鞘节段最终会变得与对照组无法区分20。对病灶内成熟少突胶质细胞数量的定量是一种间接评估修复程度的方法,因为单个少突胶质细胞能够形成多个髓鞘节段,且在不同模型中,相当一部分髓鞘再生可能来源于施万细胞3。当然,由于髓鞘再生已被证实与跳跃式传导功能的恢复相关21,因此神经功能缺损的恢复才是修复的最终衡量指标。尽管在某些物种中已观察到髓鞘再生与功能恢复之间的关联22,23,但在小鼠溶血卵磷脂模型研究中,功能评估尚未成为常规操作。这可能是因为与更显著的脱髓鞘模型(如实验性自身免疫性脑脊髓炎EAE和环己酮模型)相比,背侧或腹侧病灶通常不表现出明显可观察的功能缺陷。我们认为,溶血卵磷脂注射所导致的功能缺陷及其随髓鞘再生而发生的恢复,只有通过精细感觉运动功能的敏感检测才能被观察到。
在PubMed中搜索“remyelination”(髓鞘再生)并结合上述任一动物模型,尽管这种方法较为粗略,但结果显示溶血卵磷脂(lysolecithin)的相关文献数量(109篇)少于实验性自身免疫性脑脊髓炎(EAE)(188篇)和环己酮(cuprizone)(197篇)。如果我们所主张的溶血卵磷脂诱导脱髓鞘是研究髓鞘再生更优越的方法成立,那为何它却讨论最少?这种冷遇或许源于人们认为该方法在手术操作上技术难度较高。实际上,该操作快速、经济实惠,其难度不高于常规的组织解剖,且所需材料均可通过商业途径获得。我们希望本实验方案能为有意将这一强大模型纳入其研究体系的研究人员提供帮助,以推动充满前景且不断发展的髓鞘修复领域研究。
披露
作者无任何利益冲突需要披露。
致谢
本项目由加拿大多发性硬化症协会和阿尔伯塔创新—健康解决方案CRIO团队计划资助。MBK获得阿尔伯塔创新—健康解决方案和加拿大多发性硬化症协会提供的研究生奖学金。SKJ获得加拿大多发性硬化症协会阿尔伯塔endMS区域研究中心提供的研究生学生支持资助。作者谨此感谢Jan van Minnen博士以及神经生物学再生单元核心设施在培训和设备使用方面提供的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 弹簧剪 | Fine Science Tools | 15004-08 | |
| 镊子 | Fine Science Tools | 11254-20 | |
| 牵开器 | Fine Science Tools | 17003-03 | |
| 毛发修剪器 | Philips | QG3330 | |
| 加热恢复室 | Peco Services | V1200 | |
| 手术胶带 | 3M | 1527-1 | |
| 手术刀柄 | Fine Science Tools | 10003-12 | |
| 手术刀片 | Feather | No. 15 | |
| 海绵探针 | Beaver Visitec | 581089 | |
| 5-0 Vicryl 缝合线 | Ethicon | J511G | |
| 弯曲 ToughCut 弹簧剪 | Fine Science Tools | 15123-12 | |
| 32 G 金属针头 | BD | 305106 | |
| 持针器 | Fine Science Tools | 12002-14 | |
| 弯头镊子 | Fine Science Tools | 11251-35 | |
| 棉签 | Puritan | 806-WC | |
| 纱布垫 | Safe Cross First Aid | 3763 | |
| 10 μl 注射器 | Hamilton | 7635-01 | 请确保购买的是微升级注射器,而非气密型注射器 |
| 压接接头 | Hamilton | 55750-01 | 包含两个卡环和可拆卸螺母,但随 10 μl 注射器附带的螺母更贴合 |
| 引液套件 | Hamilton | PRMKIT | 包含引液注射器、可拆卸针头和橡胶垫片 |
| 预拉制玻璃毛细管 | WPI | TIP10TW1(每包10根) | 内径为 10 μm 的毛细管。内径 30 μm 的也可使用(TIP30TW1) |
| 立体定位仪 | David Kopf instruments | Model 900 | |
| 超声波清洗机 | Fisher Scientific | FS-20 | |
| Tissue-Tek 最佳切割温度(OCT)包埋剂 | VWR | 25608-930 | |
| Tissue-Tek 中号冷冻模具 | VWR | 25608-924 | |
| 冷冻切片机 | Leica | CM1900 | |
| 显微镜载玻片 | VWR | 48311-703 | |
| 明场显微镜 | Olympus | BX51 | |
| 超薄切片机 | Leica EM UC7 | EM UC7 | |
| 溶血磷脂酰胆碱 | Sigma | L1381 | |
| 2-甲基丁烷 | Sigma | M32631 | |
| 吐温-100 | Sigma | X-100 | |
| 山羊血清 | Sigma | G9023 | |
| 小鼠抗 SMI312 抗体 | Covance | SMI-312R | 1:2,000 稀释 |
| 兔抗 MBP 抗体 | Abcam | AB40390 | 1:1000 稀释 |
| 山羊抗 PDGFRα 抗体 | R&D Systems | AF1062 | 1:100 稀释 |
| 兔抗 Olig2 抗体 | Millipore | AB9610 | 1:200 稀释 |
| 小鼠抗 CC1 抗体 | Calbiochem | OP80 | 1:200 稀释 |
| Alexa Fluor 488 山羊抗兔 IgG | Life technologies | A-11008 | 1:500 稀释 |
| Alexa Fluor 546 山羊抗小鼠 IgG | Life technologies | A-11003 | 1:500 稀释 |
| Alexa Fluor 488 驴抗山羊 IgG | Jackson Immuno | 705-546-147 | 1:500 稀释 |
| Alexa Fluor 594 驴抗小鼠 IgG | Jackson Immuno | 715-586-151 | 1:500 稀释 |
| Alexa Fluor 647 驴抗兔 IgG | Jackson Immuno | 711-606-152 | 1:500 稀释 |
| PBS | Oxoid | BR0014 | |
| 异丙醇 | Sigma | 109827 | |
| 氯胺酮 | CDMV | ||
| 赛拉嗪 | CDMV | ||
| 碘 | West Penetone | 2021 | |
| 凡士林软膏 | VWR | CA05971 | |
| 多聚甲醛 | Sigma | P6148 | |
| 蔗糖 | Sigma | S5016 | |
| 铬蓝R | Sigma | 32752 | |
| 硫酸 | Sigma | 320501 | |
| 三氯化铁 | Sigma | 157740 | |
| 氢氧化铵 | Sigma | 320145 | |
| Acrytol | Leica Biosystems | 3801700 | |
| Citrisolv | Fisher Scientific | 22-143-975 | |
| 马血清 | Sigma | H0146 | |
| 戊二醛 | Electron Micrscopy Sciences | 16220 | |
| 四氧化锇 | Electron Micrscopy Sciences | 19150 | 剧毒 |
| 六氰合铁(II)酸钾三水合物 | Sigma | P3289 | |
| 玉米油 | Sigma | C8267 | |
| 聚乙烯醇 | Sigma | P8136 | |
| 甘油 | Sigma | G9012 | |
| 二甲胂酸 | Electron Micrscopy Sciences | 12300 | |
| 环氧丙烷 | Electron Micrscopy Sciences | 20401 | |
| EMBED 试剂盒 | Electron Micrscopy Sciences | 14120 | |
| 甲苯胺蓝O | Sigma | T3260 | |
| 十水合四硼酸钠 | Sigma | S9640 | |
| 配方 | |||
| 铬蓝氰溶液 | |||
| 成分 | 添加量 | ||
| 铬蓝氰R | 0.8 g | ||
| 硫酸 | 400 ml 0.5% | ||
| 三氯化铁 | 20 ml 10% | ||
| 水 | 80 ml | ||
| *先将铬蓝氰加入硫酸中,再加入三氯化铁和水。使用后溶液可保存,每年配制一次新鲜溶液。 | |||
| Gelvatol | |||
| 成分 | 添加量 | ||
| PBS | 140 mL | ||
| 聚乙烯醇 | 20 g | ||
| 甘油 | 40 g | ||
| *充分混合,置于 37 °C 过夜,1,960 × g 离心 30 分钟,分装至 40 支管中 |
参考文献
- Blakemore, W. F., Eames, R. A., Smith, K. J., McDonald, W. I. Remyelination in the spinal cord of the cat following intraspinal injections of lysolecithin. J. Neurol. Sci. 33 (1-3), 31-43 (1977).
- Jeffery, N. D., Blakemore, W. F. Remyelination of mouse spinal cord axons demyelinated by local injection of lysolecithin. J. Neurocytol. 24 (10), 775-781 (1995).
- Blakemore, W. F. Invasion of Schwann-cells into the spinal-cord of rat following local injections of lysolecithin. Neuropathol. Appl. Neurobiol. 2 (1), 21-39 (1976).
- Shields, S. A., Gilson, J. M., Blakemore, W. F., Franklin, R. J. Remyelination occurs as extensively but more slowly in old rats compared to young rats following gliotoxin-induced CNS demyelination. Glia. 28 (1), 77-83 (1999).
- Patrikios, P., et al. Remyelination is extensive in a subset of multiple sclerosis patients. Brain. 129 (Pt 12), 3165-3172 (2006).
- Keough, M. B., Yong, V. W. Remyelination therapy for multiple sclerosis). Neurotherapeutics. 10 (1), 44-54 (2013).
- Hall, S. M. The effect of injections of lysophosphatidyl choline into white matter of the adult mouse spinal cord. J. Cell Sci. 10 (2), 535-546 (1972).
- Miron, V. E., et al. M2 microglia and macrophages drive oligodendrocyte differentiation during CNS remyelination. Nat. Neurosci. 16 (9), 1211-1218 (2013).
- Kotter, M. R., Setzu, A., Sim, F. J., Van Rooijen, N., Franklin, R. J. Macrophage depletion impairs oligodendrocyte remyelination following lysolecithin-induced demyelination. Glia. 35 (3), 202-212 (2001).
- Lau, L. W., et al. Chondroitin sulfate proteoglycans in demyelinated lesions impair remyelination. Ann. Neurol. 72 (3), 419-432 (2012).
- Fancy, S. P., et al. Dysregulation of the Wnt pathway inhibits timely myelination and remyelination in the mammalian CNS. Genes Dev. 23 (13), 1571-1585 (2009).
- Gage, G. J., Kipke, D. R., Shain, W. Whole animal perfusion fixation for rodents. J. Vis. Exp. (65), (2012).
- Skihar, V., et al. Promoting oligodendrogenesis and myelin repair using the multiple sclerosis medication glatiramer acetate. Proc. Natl. Acad. Sci. U.S.A. 106 (42), 17992-17997 (2009).
- Plemel, J. R., et al. Platelet-derived growth factor-responsive neural precursors give rise to myelinating oligodendrocytes after transplantation into the spinal cords of contused rats and dysmyelinated mice. Glia. 59 (12), 1891-1910 (2011).
- Chong, S. Y., et al. Neurite outgrowth inhibitor Nogo-A establishes spatial segregation and extent of oligodendrocyte myelination. Proc. Natl. Acad. Sci. U.S.A. 109 (4), 1299-1304 (2012).
- Sturrock, R. R. Myelination of the mouse corpus callosum. Neuropathol. Appl. Neurobiol. 6 (6), 415-420 (1980).
- Young, K. M., et al. Oligodendrocyte dynamics in the healthy adult CNS: evidence for myelin remodeling. Neuron. 77 (5), 873-885 (2013).
- Woodruff, R. H., Franklin, R. J. Demyelination and remyelination of the caudal cerebellar peduncle of adult rats following stereotaxic injections of lysolecithin, ethidium bromide, and complement/anti-galactocerebroside: a comparative study. Glia. 25 (3), 216-228 (1999).
- Mei, F., et al. Micropillar assays as a high-throughput screening platform for therapeutics in multiple sclerosis. Nat. Med. 20 (8), 954-960 (2014).
- Powers, B. E., et al. Remyelination reporter reveals prolonged refinement of spontaneously regenerated myelin. Proc. Natl. Acad. Sci. U.S.A. 110 (10), 4075-4080 (2013).
- Smith, K. J., Blakemore, W. F., McDonald, W. I. Central remyelination restores secure conduction. Nature. 280 (5721), 395-396 (1979).
- Jeffery, N. D., Blakemore, W. F. Locomotor deficits induced by experimental spinal cord demyelination are abolished by spontaneous remyelination. Brain. 120 (Pt 1), 27-37 (1997).
- Duncan, I. D., Brower, A., Kondo, Y., Curlee, J. F. Jr, Schultz, R. D. Extensive remyelination of the CNS leads to functional recovery. Proc. Natl. Acad. Sci. U.S.A. 106 (16), 6832-6836 (2009).
重印与许可
