造血干细胞和祖细胞(HSPC)在发育过程中来源于特化的(生血性)内皮细胞,但关于部分内皮细胞如何特化为造血细胞的过程仍知之甚少。我们展示了一种基于流式细胞术的方法,可从鼠胚组织中同时分离生血性内皮细胞和HSPC。
本文内容
摘要
摘要
造血性内皮细胞从胚胎血管内皮中的特化发生在特定组织内短暂的发育阶段,这对于 definitive HSPC 从小鼠胚外卵黄囊、胎盘、脐带血管以及胚胎主动脉-性腺-中肾(AGM)区域的出现至关重要。由于这类细胞群体具有短暂性和数量稀少的特点,使其可重复地分离并进行精确量化和实验应用在技术上具有挑战性。我们建立了一种基于荧光激活细胞分选(FACS)的方法,可在卵黄囊和 AGM 中造血性内皮细胞与 HSPC 生成高峰期时同时分离这两种细胞。本文展示了从小鼠胚胎中分离卵黄囊和 AGM 组织的操作方法,并提供了优化的组织消化和抗体偶联条件,以在通过 FACS 进行鉴定和分选前最大限度地提高细胞存活率。文中展示了典型的 FACS 分析图,用于识别造血性内皮细胞和 HSPC 的表型特征,并介绍了一种基于甲基纤维素的克隆水平检测方法,用于评估其血液形成潜能。
引言
一个功能性的循环系统需要血管和血细胞的平行发育。在血液发育的最早阶段(原始造血),成红血细胞的起源仍存在激烈争论1相比之下,在血细胞发育的后期阶段(确定性造血),越来越多的研究表明,多谱系造血干细胞/祖细胞(HSPC)起源于具有成血潜能的特化血管内皮细胞(生血性内皮细胞),这些细胞位于卵黄囊、胎盘以及主动脉-性腺-中肾区(AGM)2-5以及卵黄血管和脐血管中的胚胎心内膜6以及头部血管系统7在这些不同组织中,生血性内皮细胞的特化发生在发育的特定阶段;例如,卵黄囊中约为E8.25,主动脉-性腺-中肾区(AGM)中约为E108-12然而,即使在这些特定的发育窗口期,生血内皮细胞群体也仅占所有内皮细胞的一小部分(卵黄囊和主动脉-性腺-中肾区(AGM)内皮细胞的1%–3%)11,12. 造血性内皮细胞的生成过程 "规格" 对小鼠和人类的造血过程均至关重要。研究表明,在人类胚胎中,造血细胞可从卵黄囊血管和主动脉的内皮出芽形成。13,并且多个实验室已证明,人类多能干细胞产生血细胞需要经过内皮细胞中间阶段14-16因此,明确小鼠造血性内皮细胞的表型特征,并理解该动物模型中驱动其发育的分子事件,将有助于推进相关研究 体外 从人类多能干细胞生成生血性内皮细胞的技术。进而,若能最终开发出一种可大规模生成多谱系造血干细胞(HSPC)所分化出的各类血细胞的方法——而这些造血干细胞本身是通过生理相关的生血性内皮细胞中间阶段由人类多能干细胞衍生而来——将在血液病学、肿瘤学和再生医学领域展现出巨大的治疗潜力。为实现这一目标,我们已在克隆水平上明确了小鼠卵黄囊中生血性内皮细胞的表型11 和 AGM12,胚胎发育过程中确定性HSPC产生的两个主要部位。类似于成体骨髓中的HSPC17,胚胎造血内皮细胞和造血干细胞/祖细胞表现出 Hoechst 染料外排特性,因此出现在 "侧群" 细胞在流式细胞术图(FACS图)中的(SP)位置5,11,12 (如图所示) 图3此外,我们还发现生血内皮细胞表达内皮细胞和干细胞的标志物(分别为 Flk1 和 cKit),但不表达造血细胞系标志物 CD45。5,11,12因此,可以通过流式细胞术将生血性内皮细胞鉴定并分离为Flk1+/cKit+/CD45-的SP细胞,我们已证明这些细胞可产生定位于卵黄囊和AGM细胞中Flk1-/cKit+/CD45+ SP组分的造血干细胞和祖细胞5,11,12. 可从新鲜处死的胚胎或在体外培养长达48小时的胚胎中获取卵黄囊或主动脉-性腺-中肾(AGM)组织,进而鉴定并分离出造血内皮细胞和造血干细胞/祖细胞(HSPC) 离体 胚胎培养(如图所示) 图1). 离体 培养允许对单个胚胎进行选择性药物预处理,同时也可实现目标转基因的瞬时表达(即, 通过慢病毒转导)。根据本文所述方法,利用流式细胞术鉴定生血内皮细胞和造血干细胞/祖细胞,可作为评估基因操作小鼠模型中确定性造血发育的定量指标;这些细胞还可被回收用于后续实验应用,包括造血功能检测、表达分析及移植实验。
动物实验对象:使用与伦理考量
越来越多的文献证实,生血内皮细胞在胚胎发育的确定性造血阶段对造血干细胞和祖细胞(HSPC)的形成具有重要作用。然而,促进部分内皮细胞向生血命运特化的生理条件和信号仍不明确,因此目前尚无法在体外有效模拟这一过程 体外 确实,本文所述技术目前正被我们的实验室及其他研究团队所采用,以增进对造血血管发育领域的理解,从而提出一种方法 离体 造血内皮细胞的特化及造血干细胞和祖细胞(HSPC)的生成或许有朝一日能够实现。然而在实现之前,该领域仍依赖于野生型(及基因修饰型)小鼠胚胎的原代组织来获取特化的造血内皮细胞和HSPC以供进一步研究。造血内皮细胞和HSPC可从E8.5(10–12个体节对)卵黄囊或E10.5(35–40个体节对)主动脉-性腺-中肾(AGM)区域可靠地鉴定并分离获得。11,12. 由于造血性内皮细胞相对稀少(通常占内皮细胞总数的1 - 3%)11,12 为了获得足够数量的细胞用于后续实验,强烈建议将多个(约8-10个)同窝幼鼠的组织合并为一个样本。可通过在诱导造血分化的培养条件下对分离获得的细胞进行培养,以验证造血内皮细胞和造血干细胞/祖细胞(HSPC)是否已成功鉴定与分离。在此培养条件下,造血内皮细胞和HSPC将表现出多谱系造血分化能力,形成包含红系祖细胞(BFU-E)、粒细胞与巨噬细胞祖细胞(CFU-GM)以及粒细胞、红细胞、巨噬细胞、巨核细胞祖细胞集落(CFU-GEMM)的细胞集落。
方案
伦理声明: 下述方案已通过耶鲁大学机构动物护理和使用委员会的审查,并符合其相关指南。
1. 整胚 Ex Vivo 卵黄囊研究培养(可选)
- 在E7.0至E7.5时处死妊娠母鼠,并在无菌条件下取出子宫角,具体步骤如下所述(步骤2.4–2.7)。
- 分离完整胚胎(保留卵黄囊)12从周围蜕膜中分离,并悬浮于50 ml聚苯乙烯管中的50 ml全鼠血清中。
- 用含5% CO的气体对胚胎瓶处理3分钟2 立即按照先前所述方法进行12,18若培养胚胎时间为24–48小时,则在24小时时重复此步骤。
- 37 °C 滚动培养孵育最长 48 小时。
注意:胚胎可以进行处理 离体 使用药理学试剂(即,Notch抑制剂DAPT12)或可溶性蛋白质(即, 纤连蛋白19通过在含有这些因子的培养基中将胚胎预孵育长达2小时,或在整个滚动培养过程中将这些因子添加至培养基中 离体 培养周期。通过将胚胎与经优化滴度的慢病毒共同孵育2小时,可实现对胚胎基因表达的操控。12利用转基因报告小鼠和光学成像技术,可实时监测卵黄囊血管和造血系统的发育过程。
2. 小鼠胚胎卵黄囊(YS)或主动脉-性腺-中肾(AGM)的分离
- 使用70%乙醇喷洒并擦拭实验台面所有区域以进行消毒,减少后续细胞培养中的污染风险。在实验台面上放置一张吸水垫。
- 使用70%乙醇对手术器械进行消毒。推荐使用的手术器械包括两把#5直头镊子和一把8.5 cm直剪。
- 若处理来自体外(ex vivo)培养的胚胎,请小心地从50 ml Falcon管中取出完整胚胎,并立即进入步骤2.8;否则跳过此步骤,直接进入步骤2.4。
- 在适当的胚胎发育阶段(若采集卵黄囊(YS)则为E8.5;若采集主动脉-性腺-中肾区(AGM)则为E10.5)对怀孕母鼠实施安乐死。
注意:本方法采用双重安乐死技术——先给予致死剂量的挥发性麻醉剂,随后进行机械性颈椎脱位——以最大程度减轻动物疼痛与痛苦,并确保以最小侵入性且人道的方式终止实验动物生命。当由经过培训且熟练的研究人员操作时,美国兽医协会(AVMA)推荐将该联合技术用于小型啮齿类动物的安乐死(《动物安乐死指南:2013年版》)。- 使用致死剂量的异氟烷(>5% O2中)对小鼠麻醉3–5分钟。(注意:异氟烷为有毒吸入性麻醉剂,应在化学通风橱内操作,并佩戴适当的呼吸防护装备。)
- 在小鼠暴露于异氟烷后,至少检查三项麻醉深度指标——翻正反射消失、脚趾夹捏反射消失以及呼吸频率降低——以确认动物已达到深度麻醉状态,方可进行机械性安乐死操作。
- 对母鼠实施颈椎脱位,迅速致其死亡。
- 将已安乐死的母鼠仰卧置于吸水垫上,并大量喷洒下腹部区域70%乙醇进行消毒。
- 沿下腹壁正中线做一纵向切口,再从纵切口的中点向左右两侧各做约1英寸的横向切口,剥离腹壁组织,充分暴露左右两侧子宫角,每个子宫角内含多个妊娠胚胎。
- 用镊子夹住其中一个子宫角,用剪刀将其从子宫系膜上分离下来。将分离出的子宫组织置于冰上盛有无菌Hank's平衡盐溶液(HBSS)的60 mm聚苯乙烯组织培养皿中。对另一侧子宫角重复相同操作。
- 在标准光学解剖显微镜下,用镊子轻轻剥离子宫囊的肌层,暴露出下方的妊娠囊和蜕膜组织。通过轻柔地将卵黄囊从包裹的胚胎上分离,以获取卵黄囊(YS)(图2A)。在卵黄血管的胚胎起源处,将YS组织与胚胎本体分离。
- 为分离AGM区域,先去除卵黄囊,然后在心脏和前肢水平以下横切胚胎,弃去胸腔和头部区域;接着在后肢水平稍下方再次横切胚胎,移除并弃去尾部组织;最后从剩余组织段(包含AGM区域)上移除后肢及多余的腹侧组织(图2B)。
- 收集多个胚胎的YS或AGM组织,置于冰上,储存在含HBSS+的洁净1.5 ml离心管中(HBSS+指HBSS中添加10% (v/v) 胎牛血清、100 U/ml青霉素、100 μg/ml链霉素和0.3 mg/ml L-谷氨酰胺)。
3. 将原代组织消化为单细胞悬液
- 将收集的卵黄囊(YS)或主动脉-性腺-中肾区(AGM)组织置于离心管中,在 4 °C 条件下以 2,000 × g 离心 5 分钟。
- 弃去上清液,将组织重悬于 1 ml 含 HBSS+ 的 0.05%(适用于 YS)或 0.2%(适用于 AGM)II 型胶原酶溶液中。于 37 °C 水浴中孵育 30 分钟,每隔 5 分钟轻轻颠倒离心管以混匀。
- 通过 P1000 移液器将样本反复吹打 10 次,进行轻柔的机械解离。若部分消化的组织难以吸起,可用剪刀剪去移液器吸头末端约 5 mm 以扩大孔径。
- 在 4 °C 条件下以 2,000 × g 离心 5 分钟。弃去上清液,加入 1 ml 冰冷的 HBSS+ 重悬细胞。
- 将样本通过 70 μm 细胞滤网过滤。
- 使用手动或自动细胞计数仪对细胞进行计数。
- 在 4 °C 条件下以 2,000 × g 离心 5 分钟。将细胞重悬于预热至 37 °C 的 DMEM+ 培养基中(含 4.5 g/L 葡萄糖的 Dulbecco 改良 Eagle 培养基,添加 10% (v/v) 胎牛血清、100 U/ml 青霉素、100 μg/ml 链霉素和 0.3 mg/ml L-谷氨酰胺),使细胞终浓度为 1 × 10⁶ 个细胞/ml。
4. 使用核酸染料处理细胞并用荧光标记抗体进行标记
- 将至少 100 μl 样本(1 × 10⁵ 个细胞)分装至新的 1.5 ml 离心管中,用于抗体孵育。
- 设置以下样本管和必要的对照管:未染色对照;仅 cKit-APC;仅 CD45-FITC;仅 CD31-PE;仅 Flk1-PECy7;仅 Hoechst 33342;仅 Hoechst 33342 + 维拉帕米(Verapamil);样本管(加入所有荧光染料,不加维拉帕米)。每个对照管中使用不少于 1 × 10⁵ 个细胞,体积为 100 μl。
注意:可向样本管中以相同浓度加入更多体积的细胞,以最大化分选得到的生血内皮细胞(Hemogenic EC)和造血干细胞/祖细胞(HSPC)的产量。 - 向“仅 Hoechst 33342 + 维拉帕米”对照管中加入用 95% 乙醇稀释的维拉帕米(理由见讨论部分),使其终浓度为 50 μM。将所有管在 37 °C 孵育 5 分钟。(注意:维拉帕米是一种强效钙通道阻滞剂,具有极高毒性,操作时需佩戴手套)。
- 向“仅 Hoechst 33342”对照管、“仅 Hoechst 33342 + 维拉帕米”对照管以及“样本”管中加入 Hoechst 33342,使其终浓度为 5 μg/ml。将所有管在 37 °C 避光孵育 1 小时,每 15 分钟轻轻颠倒混匀一次。(注意:Hoechst 33342 是一种有毒的细胞核染料,操作时需佩戴手套)。
- 将所有样本在 4 °C 下以 2,000 × g 离心 5 分钟。弃去上清液,将细胞沉淀用预冷的 HBSS+ 重悬至浓度为 1 × 10⁵ 个细胞/ml。
- 向相应的单色抗体对照管及“样本”管中加入荧光标记的抗体,使其终浓度为 2 μg/ml。冰上避光孵育 30 分钟。
- 将所有管在 4 °C 下以 2,000 × g 离心 5 分钟。弃去上清液,将细胞沉淀重悬于 500 μl 冰冷的 HBSS 中。通过 5 ml 圆底聚苯乙烯 FACS 管的网状滤帽过滤样本,并置于冰上避光保存,立即进行流式细胞分选(FACS)。
5. 通过FACS鉴定和分离生血内皮细胞及造血干细胞和祖细胞
注意:本实验方案采用配备以下激光器的 BD FACSAria 五激光系统进行优化:100 mW 355 nm 紫外激光器、200 mW 405 nm 紫色激光器、200 mW 488 nm 蓝色激光器、200 mW 532 nm 绿色激光器和 150 mW 637 nm 红色激光器。细胞分选过程中使用无菌 PBS 作为鞘液,在无菌条件下操作,通过 100 μm 喷嘴进行分选,流速设置为样品压力 1,使每秒获取的事件数最多为 1,500 - 2,000,以尽量减少细胞应激。
- 根据上述设置,使用“未染色”样本及单色对照管优化FACS细胞分选仪的激光强度,并按照制造商说明书进行多色光谱补偿对照。利用前向散射光和侧向散射光从总事件中区分活细胞与双联体细胞(详见制造商说明书)。
注意:本方案通常可获得约70–80%的活细胞。若遇到细胞活力偏低的问题,请确保组织最初在冰上冷的培养基中迅速解离,并且除特别说明外,所有步骤均在冰上操作,轻柔移液以尽量减少剪切力和细胞死亡(详见讨论部分关于维持细胞活力的更多细节)。 - 使用Hoechst Red与Hoechst Blue荧光的差分线性图来识别侧群(SP)细胞事件(图3A)。以“仅Hoechst 33342 + 维拉帕米”对照作为阴性对照,验证样本设门是否正确。SP细胞表现为非SP细胞群左侧的一个肩峰,在维拉帕米处理的对照中该群体会减少。非SP细胞群将用于鉴定非生血性内皮细胞(图3B)。
- 建立额外的差分荧光图(对数坐标轴),并对SP细胞设子门以鉴定生血性内皮细胞(图3C–E)。
注意:生血性内皮细胞的表型为Flk1+/cKit+/CD45− SP细胞(图3D),而HSPC为Flk1−/cKit+/CD45+ SP细胞(图3E)。生血性内皮细胞可与非生血性内皮细胞平行分析,后者在此方法中被定义为CD31+/CD45−非SP细胞(图3B)。 - 将分选出的生血性内皮细胞或HSPC组分收集至含甲基纤维素的培养板中进行造血培养(见下文),或收集至其他缓冲液中用于后续处理与分析。
6. 培养中的造血分化
- 加入0.5 ml(135 μl/cm²)的2将基于甲基纤维素的造血培养基在室温下加入24孔组织培养板中所需数量的孔内。在未使用的孔中加入0.5 ml无菌水,以减少蒸发。现配现用,并于室温保存至使用。
- 分选1-10个细胞用于克隆分析,或分选多达1,000个生血内皮细胞(Flk1+/cKit+/CD45- SP细胞)或造血干细胞/祖细胞(HSPC,Flk1-/cKit+/CD45+ SP细胞),直接接种至含甲基纤维素的培养板各孔中,进行群体扩增与分化。约10%-20%的细胞可形成集落。
- 在无菌细胞培养操作台中,使用剪裁过尖端以扩大孔径的P1000吸头,轻柔地重悬接种了甲基纤维素培养基的每个孔,重复2-3次,注意避免产生气泡。此步骤可确保分选后的细胞均匀悬浮于半固体甲基纤维素中,以促进最佳生长。
- 37 °C、5% CO₂ 条件下孵育培养板2 长达2周。
- 随时间监测单细胞培养物中分化造血细胞集落的形成图4). 在第1、3、7和14天,按照下文步骤6.7中所述方法,对造血分化集落的数量和类型进行评分。
- 第1天对培养板进行评分,以确认分选细胞的融合度及持续存活能力。
- 第3天,观察是否有早期贴壁的生血内皮细胞集落形成,其形态呈“鹅卵石”状(参见Goldie 等11 和 Marcelo 等12 用于第3天形态的展示。
- 在第5至7天,检查已分选的生血性内皮细胞孔中是否形成圆形的造血干细胞/祖细胞(HSPC)簇。应观察到HSPC位于呈“鹅卵石”状内皮细胞形态的扁平生血性内皮细胞旁。
注意:造血内皮细胞应形成造血集落(通过造血集落数量确定),并应表现出多谱系分化能力(通过观察单个细胞产生多种集落类型确定)。 我们先前观察到,通过FACS回收的约20%的生血内皮细胞或造血干细胞/祖细胞能够在甲基纤维素中存活并形成分化和增殖的造血集落11.
- 通过相差显微镜评估集落形成:
- 在相差显微镜下以低倍镜观察并计数集落,根据集落形态学特征识别BFU-E、CFU-GM和CFU-GEMM集落,方法如Goldie所述。 等11.
- 通过细胞形态评估集落形成:
- 从甲基纤维素表面吸取单个菌落至末端经修剪以扩大孔径的P1000枪头中。此操作有助于吸取黏稠的甲基纤维素培养基,并确保成功回收菌落。
- 将挑取的菌落重悬于200 ml HBSS中,使用细胞离心涂片机以28 × g离心5分钟,沉降到玻片上。
- 用100%甲醇固定载玻片5分钟(警告: 甲醇具有毒性,只能在通风良好的化学通风橱中使用,并需佩戴适当的个人防护装备。
- 将载玻片浸入0.04%吉姆萨染液中染色20分钟(警告: 吉姆萨染色液含有甲醇。请在通风良好的化学通风橱中使用,并佩戴适当的个人防护装备。
- 用去离子水冲洗载玻片。
- 用盖玻片封片,然后在标准光学显微镜下高倍镜观察,将细胞形态与在甲基纤维素培养基中培养的成人骨髓造血细胞的经典形态进行比较。示例请参见试剂盒制造商的使用说明。
- 通过FACS评估表达造血系标志物的细胞的集落形成能力:
- 向含有在0.5 ml甲基纤维素上培养的集落的24孔板的每孔中加入2 ml HBSS即, 将市售的甲基纤维素储备液按1:4比例稀释。用移液器吹打混匀,转移至新的离心管中。
- 使用标准台式微量离心机,在 4 °C 条件下以 2,000 x g 离心样品 5 分钟。
- 移去上清液,用 1 ml HBSS+ 重悬细胞沉淀,如有需要可合并样品。
- 在 4 °C 条件下,以 2,000 x g 离心 5 分钟。
- 移去上清液,并将细胞沉淀重悬于400 μl HBSS+中。
- 将样品分装至四个1.5 ml离心管中,分组如下:未染色;仅B220-FITC;仅GR-1-FITC;仅Ter119-FITC。
- 向适当的试管中加入荧光标记抗体,终浓度为 2 μg/ml。37 °C 孵育 15 分钟。
- 在 4 °C 条件下,以 2,000 x g 离心 5 分钟。弃上清液,将细胞沉淀重悬于 0.5 ml 冰冷的 HBSS 中。
- 通过流式细胞术分析每个样本中各造血谱系标志物的表达:B220 标记 B 细胞 20;GR-1 标记髓系细胞 21Ter119 标记红系细胞 22.
注意:如有需要,可将针对其他造血谱系标志物的抗体加入本方法中。
结果
成功标记胚胎卵黄囊或主动脉-性腺-中肾区的生血内皮细胞和造血干细胞/祖细胞后,将获得与文中所示代表性图像相似的流式细胞术散点图 图3通过前向散射和侧向散射进行标准的活细胞与双细胞团簇区分(未展示)后,在无维拉帕米存在的情况下,侧群(SP)细胞事件在Hoechst Red与Hoechst Blue的线性差异图中表现为从主细胞群(非SP细胞)向左偏移的“肩状”分布图 3A)。当SP门设置正确时,SP细胞约占总存活卵黄囊细胞的1 - 3%,以及总存活AGM事件的3 - 5%。维拉帕米处理应导致 >无论组织来源,SP事件的抑制率达到50%图3A, 上方图示)。我们先前已确定,那些出现在SP肩部以外但同样可被维拉帕米阻断的细胞群体为Ter119阳性的成红细胞,因此被排除在SP细胞群体之外。5.
与SP相比,非SP细胞被识别为紧邻SP“肩部”的致密细胞簇(图3A)。该群体包含非造血性内皮细胞(EC),可通过CD31-PE与CD45-FITC的子图(图3B)进行区分,表现为CD31+/CD45-事件。非造血性EC通常占AGM(图3B)或卵黄囊(未显示)来源的非SP细胞的2–5%,且这些细胞可相对容易地进行高数量分选回收。
用于鉴定HSPC和生血性内皮细胞(Hemogenic EC),从SP组分中设门分选出CD45+和CD45-细胞,其中CD45+细胞通常为 <20% 的总事件数在 AGM 中图3C)或 YS(未显示)。随后在CD45-细胞中,通过cKit-APC与Flk1-PECy7子代图的差异分析,将双阳性事件鉴定为生血性内皮细胞,当从AGM区域分离时,其通常占CD45-细胞的1 - 3%图 3D)或 YS(未显示)。HSPC 从 CD45+ 细胞群中进一步通过 cKit-APC 与 Flk1-PECy7 的子代图确定为 Flk1-/cKit+ 细胞,且通常在来源于卵黄囊(YS)时,约占 CD45+ 细胞这一小群细胞的 25–30%。未显示)或 AGM(图3E)。因此,造血内皮细胞(Hemogenic EC)和造血干细胞/祖细胞(HSPC)均极为稀有(约占总细胞事件的0.01%),即使 pooling 多个胚胎的组织,本方案通常也只能获得每种细胞类型数百个。子图中的设门应以阴性对照组为参照。为区分特异性与非特异性抗体染色,设门应首先根据未染色对照(Unstained controls)进行绘制图3C),以及用荧光标记的同型匹配对照抗体(IgG2A 或 IgG2B)处理的样本(未显示)。后者对照已证明本方案中的非特异性染色极少,因此尽管我们建议使用同型匹配的对照抗体(例如., IgG2A-PE 或 IgG2B-FITC)最初用于优化FACS分选仪设置并确定设门边界,但我们发现,在常规FACS分选过程中,未染色对照已足以验证设门边界和实验质量。如果设门正确,在记录未染色或同型对照样本时,单阳性或双阳性门内应观察到极少的非特异性散射信号。
来自AGM的生血内皮细胞和HSPC在甲基纤维素中培养14天后经历造血分化(图4A)。这些培养物中通常观察到的集落类型比例取决于组织来源。在E8.5-E9.5时期从卵黄囊组织中分离的生血内皮细胞可形成BFU-E、CFU-GM以及少量CFU-GEMM5,而从E10.5 AGM中分离的生血内皮细胞则主要形成CFU-GEMM12,尽管仍可观察到其他谱系,如图4B(左上图)所示。从E10.5 AGM中分离的HSPC在甲基纤维素中培养后也主要形成CFU-GEMM(图4B,中上图),但这些细胞也可分化为其他类型的造血集落。非生血内皮细胞(CD31+/CD45- 非SP)也进行了铺板(图4B,右上图)。这些细胞在造血培养14天后无任何生长。
已对E10.5时期AGM组织SP组分中表达不同表面标志物的单个细胞类型(包括表达或不表达造血和内皮标志物CD31、Flk1、c-Kit、VE-cad、CD41和CD45的细胞)的造血潜能进行了检测,结果表明,E10.5 AGM中的多谱系集落形成活性仅限于CD31+、VE-cadherin+、c-Kit+、CD41+和CD45+的SP细胞12。有趣的是,在Flk-1+和Flk-1-的SP细胞中均观察到集落形成活性,但只有Flk1+c-Kit+CD45- SP细胞能够通过一种具有“铺路石”样内皮细胞形态(图4B,左下图)和Dil-AcLDL摄取能力的内皮单层中间阶段,产生多谱系集落12。此外,c-Kit的表达对于AGM SP细胞的造血活性是必需的12。
尽管已有研究表明,某些髓系祖细胞在形态学特征上与造血性内皮细胞相似,但髓系祖细胞表达 CD45,且无法形成多谱系集落。 体外HSPC 也能生成多谱系集落,但尽管这些细胞表达 CD45,却不表达 Flk-1。12,23 并形成无底层内皮单层的圆形细胞簇(图4B,右下面板)。因此,我们将具有造血潜能且表现出强烈造血内皮基因表达(包括 GATA-1/2、Lmo2、SCL/Tal-1、Runx-1、c-Kit、CD34、CD41 和 CD45)的细胞群体定义为造血内皮细胞(即 Flk-1+/c-Kit+/CD45-SP 细胞)11 与造血干细胞和祖细胞及其非造血性内皮细胞对应物不同。
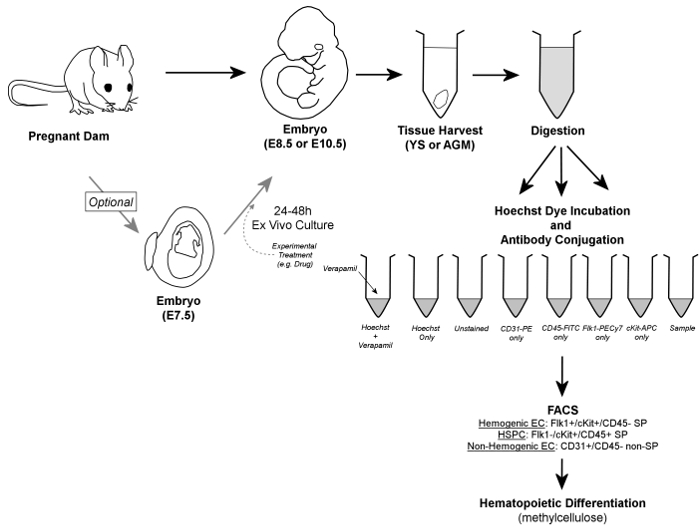
图1. 整体工作流程。 简而言之,从怀孕母鼠中取出胚胎,分离卵黄囊(YS)或主动脉-性腺-中肾(AGM)组织。胚胎可选择性地培养24–48小时。 离体 在组织收获前进行处理。收获的卵黄囊(YS)或主动脉-性腺-中肾(AGM)组织被消化为单细胞悬液,分装至对照管和样本管中,并在Hoechst染料和/或荧光标记抗体存在下孵育。同时使用钙通道抑制剂维拉帕米(Verapamil)建立阴性对照,以验证侧群(SP)细胞分群的准确性。造血内皮细胞通过流式细胞术(FACS)鉴定为Flk1+/cKit+/CD45−的SP细胞,而造血干细胞/祖细胞(HSPC)则位于Flk1−/cKit+/CD45+的SP细胞亚群中;上述两类细胞均被分选至甲基纤维素培养基中,以验证其造血潜能。此外,非造血内皮细胞可被识别(并根据需要回收)为CD31+/CD45−的非SP细胞。 请点击此处以查看此图的放大版本。
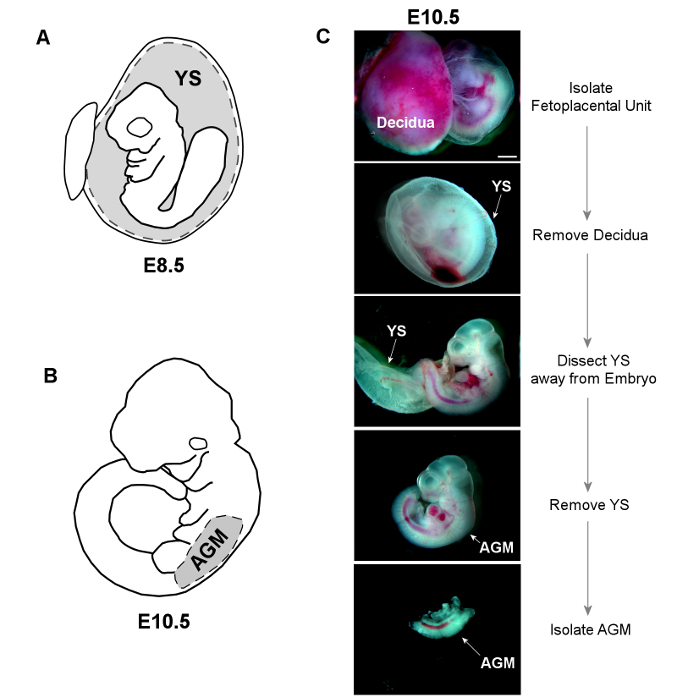
图 2. 卵黄囊与 AGM 组织的解剖。A) 从 E8.5 胚胎上解剖分离卵黄囊,并整体置于无菌 HBSS+ 中,用于后续消化。B) 通过在 E10.5 胚胎前肢和后肢芽下方进行水平切割,分离躯干部分;随后用镊子将 AGM 从肢芽和腹侧组织中分离。C) 明场图像显示从 E10.5 胚胎中分离卵黄囊和 AGM 的过程(比例尺 = 1 mm)。请点击此处查看该图的放大版本。
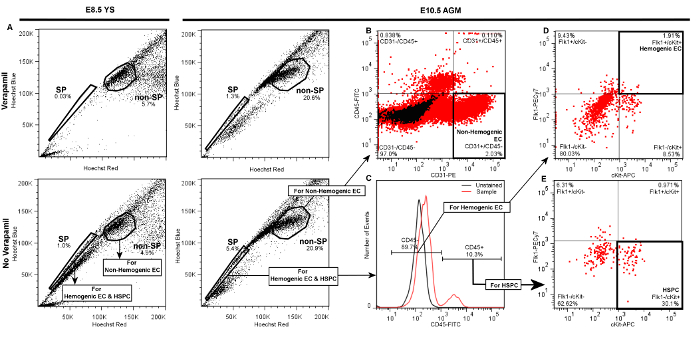
图3. 代表性散点图展示通过E8.5卵黄囊(YS)或E10.5主动脉-性腺-中肾区(AGM)的FACS分析进行血源性内皮细胞(Flk1+/cKit+/CD45- SP细胞)、造血干细胞/祖细胞(HSPC)(Flk1-/cKit+/CD45+ SP细胞)及非血源性内皮细胞(CD31+/CD45- 非SP细胞)区分的门控层级。 对来自卵黄囊(左图)或AGM(右图)的细胞进行活细胞与双联体排除(通过前向与侧向散射,未显示)后,A) 设定侧群(SP)门控,并通过维拉帕米处理的阴性对照中SP比例显著降低予以验证。非SP群体被识别为紧邻SP的密集细胞簇。每张图中均显示20,000个事件。B) 非血源性内皮细胞被识别为非SP群体中的CD31+/CD45-细胞,无论来自AGM(图示)或卵黄囊(未显示),其通常占非SP细胞的2–5%。为区分血源性内皮细胞或HSPC,C) 从SP群体中引出子门控以识别CD45+与CD45-细胞。D) 为从AGM(图示)或卵黄囊(未显示)中识别血源性内皮细胞,进一步从CD45-群体中引出子门控,以区分cKit+(对比cKit-)与Flk1+(对比Flk1-)细胞。无论来自卵黄囊或AGM,血源性内皮细胞通常约占CD45-事件的1–3%。E) HSPC从CD45+群体中被识别为cKit+且Flk1-细胞,无论从AGM(图示)或卵黄囊(未显示)分选,其通常占CD45+细胞的20–30%。请点击此处查看该图的放大版本。

图 4. 造血内皮细胞及造血干细胞/祖细胞在甲基纤维素培养后造血分化的可视化。A) 分选后的单个细胞在接种至甲基纤维素培养基后7天内形成集落。通过观察不同形态的造血集落类型,可确认其多谱系造血潜能11。B) 来自主动脉-性腺-中肾区(AGM)或卵黄囊(YS,未显示)的分选造血内皮细胞和造血干细胞/祖细胞(HSPC)在甲基纤维素培养基中培养7天后,相位差显微镜图像显示其形成多谱系造血集落。非造血内皮细胞(来自AGM或YS,未显示)在此条件下无生长现象。高倍镜下可见,在造血内皮细胞培养物中,具有典型“鹅卵石”样内皮细胞形态的贴壁细胞(白色箭头)产生造血细胞簇;而在分选的HSPC培养物中未观察到此类内皮细胞(比例尺 = 100 μm)。请点击此处查看该图的放大版本。
讨论
在造血血管发育领域,仍有许多问题尚未解答——由于该领域研究的对象是在特定发育时期短暂出现且数量稀少的细胞群体,技术上存在固有困难,因此该领域仍处于起步阶段。上述技术通过使用大多数实验室通常具备的试剂和设备,能够在关键发育时间点从胚胎组织中的生血内皮细胞和造血干细胞/祖细胞(HSPC)群体中分离出单个细胞,从而显著缓解了许多技术难题。我们的方案还允许同时从卵黄囊(YS)和主动脉-性腺-中肾区(AGM)中平行分离非生血内皮细胞组分,这些组分可用于独立分析,或在后续实验中作为生血内皮细胞组分的对照。
采用这种基于多色流式细胞术的方法分离生血内皮细胞时,一个关键点是适当的光谱补偿和准确绘制单色门。因此,强烈建议在所有实验中包含未染色和单色对照,并利用这些对照以及使用同型匹配对照抗体处理的样品,初步建立正确的光谱补偿和设门。然而,本方案中的非特异性染色极少,因此在流式细胞分选仪参数优化后,未染色和单色对照已足以用于日常的设门验证。
不准确绘制侧群(SP)门控是本报告所述方法中的一个特别值得关注的问题。先前的研究表明,多能干细胞能够优先外排 Hoechst 红17,这一生理特性构成了其在流式细胞术(FACS)分析中表现为侧群细胞的基础。我们已证实,生血内皮细胞和造血干/祖细胞(HSPC)同样存在于侧群细胞组分中5,11。维拉帕米等药物作为钙通道抑制剂,可通过阻断多种跨膜多药耐药转运蛋白来抑制 SP 细胞中的 Hoechst 染料外排行为。在造血干细胞和祖细胞中,这一过程主要由 ABCG2/BCRP1 转运蛋白介导24。通常情况下,维拉帕米可诱导 >50% 的侧群细胞被阻断,然而,已有研究表明,Hoechst 外排的整体程度及其被维拉帕米抑制的效果会受到发育时期的影响,这可能是由于多种具有不同 Hoechst 外排能力及对维拉帕米敏感性的多药耐药转运蛋白的表达水平发生变化所致5。因此,强烈建议将经维拉帕米处理的 Hoechst 染色阴性对照作为标准对照纳入实验,以确保侧群门控的准确性:若侧群门控设置正确,则在同时加入 Hoechst 和维拉帕米染色的样本中,应能明显观察到侧群细胞数量的减少。
我们先前已证明,与相同数量的E9.5未分选、未经Hoechst染色的全卵黄囊组织细胞相比,从E9.5小鼠卵黄囊中分选出的SP细胞在基于甲基纤维素的造血培养中生成HSPC的能力高出约80至90倍。5进一步对SP细胞的表征显示,在E8.0时期小鼠卵黄囊的早期造血和血管发育过程中,VE-钙黏蛋白和Flk-1表达显著,而干细胞标志物(c-Kit)和造血标志物(CD45)表达水平较低。因此,在该发育阶段,原始(非造血性)内皮细胞(EC)占主导地位,其定义为Flk-1+/CD31+/CD45-的非SP细胞。随着内皮标志物表达下降,CD45和c-Kit表达上升,生成造血干细胞和祖细胞(HSPC)的能力也随之增强,其表达谱随之发生转变。 体外 在E9.5至E11.5之间5这表明卵黄囊组织的造血活性存在于侧板(SP)中,在胚胎发育9.5至11.5天(E9.5–E11.5)之间最为显著,其过程表现为内皮特征的时序性丧失以及造血潜能的逐步获得。因此,产生SP表型的多药耐药转运蛋白的表达是生血性内皮的重要表型标志5;事实上,来自AGM的非SP细胞不具有造血潜能12因此,通过Hoechst染色成功分离卵黄囊(YS)和主动脉-性腺-中肾区(AGM)中的侧群细胞(SP),可确保从特定组织的造血干细胞区室中分选细胞,随后对该细胞群体进行抗体染色,可区分生血内皮细胞群(Flk-1+/c-Kit+/CD45-)与造血干细胞/祖细胞群(HSPC,Flk1-/c-Kit+/CD45+)。5,11,12此外,先前已有研究指出,卵黄囊和AGM组织SP中的CD41+细胞能够在基于甲基纤维素的培养体系中形成多谱系集落。11,12我们将生血内皮细胞定义为Flk1+ c-Kit+ CD45- SP细胞,采用CD45作为造血谱系的特异性标志物,而非CD41,因为我们的研究发现Flk1与CD45的表达几乎互斥。5,11这使得能够纯化分离出SP中同时具有内皮细胞(Flk-1)和干细胞特性(c-Kit)、但尚未发生内皮向造血转化的细胞,其未转化状态由这些细胞缺乏CD45表达所确定。近期Gomez及其同事的研究表明,将定义为Flk-1-/c-Kit+/CD45+/SP的HSPC群体进一步细分为Csf1r+(组织巨噬细胞)和Csf1r-(HSC)亚群,可能具有研究价值。25,因为这将更清晰地区分真正的造血干细胞/祖细胞与组织巨噬细胞祖细胞群体,但不会影响我们所描述的造血内皮细胞组分的分离完整性,因为Csf1r是巨噬细胞祖细胞的标志物26.
生血内皮细胞在卵黄囊(YS)和主动脉-性腺-中肾区(AGM)中均为稀有细胞亚群(占内皮细胞的1–3%),因此研究中的主要挑战是细胞产量不足,难以满足后续应用需求。本实验方案通常在分选时可保持70–80%的细胞活力,即使在最佳条件下,从多个胚胎收集的组织合并样本中进行典型的生血内皮细胞分选,也仅能获得数百个细胞,且仅有10–20%的回收细胞可在甲基纤维素中形成集落。为最大化分选细胞数量,强烈建议研究者在操作的每一步均采取措施确保组织和细胞的活力:组织应迅速解剖并合并,样本应尽可能保持在冰上。样本应在荧光激活细胞分选(FACS)前立即新鲜制备,并分选至含有高血清浓度的收集管中,或如上所述直接分选至甲基纤维素培养基中。若细胞活力问题持续存在,可预先用血清包被收集管,以进一步提高分选细胞的存活率。若生血内皮细胞产量仍然较低,可使用成年骨髓或商业化的荧光染料偶联微珠进行光谱补偿,以替代本文所述的来源于胚胎组织的单色对照。若分选细胞拟用于培养,应将生血内皮细胞和造血干细胞/祖细胞(HSPC)直接分选至组织培养孔中。若分选细胞拟用于DNA或RNA相关的基因表达分析,可将生血与非生血内皮细胞以及HSPC直接分选至含有样本裂解缓冲液的收集管中,以最大限度减少细胞损失。
该方法能够成功(且同时)从相同的胚胎组织中分离出造血性与非造血性内皮细胞,以及造血干细胞与祖细胞(HSPC)和成熟血细胞组分。这一策略有助于进一步研究内皮细胞生成血液过程中关键转变的分子机制。通过这些发育过程研究获得的见解,可用于优化从多能性、甚至可能是自体来源的干细胞中生成人源造血性内皮细胞及其HSPC后代,从而为常见造血系统疾病的治疗提供支持。
披露
本研究由NIH资助项目HL128064、HL096360、EB017103以及CT Innovations资助项目15-RMB-YALE-04(资助对象:KKH)和NICHD/NIH T32HD007094支持。
致谢
作者声明不存在任何竞争性经济利益。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DAPT(N-[N-(3,5-二氟苯乙酰基)-L-丙氨酰]-S-苯基甘氨酸叔丁酯) | Sigma | D5942 | 有毒,具刺激性:操作时需佩戴护目镜、口罩和手套。 |
| 吸水性实验台垫 | Covidien | 7134 | |
| #5 直头镊子 | Fine Science Tools | 11251-20 | |
| 8.5 cm 直剪刀 | Fine Science Tools | 14090-09 | |
| 异氟烷(Isothesia) | Henry Schein | 50033 | 有毒吸入剂:应在通风橱中使用。 |
| 100倍青霉素-链霉素-谷氨酰胺混合液(10,000 U/ml 青霉素,10,000 mg/ml 链霉素,29.2 mg/ml L-谷氨酰胺) | Invitrogen | 10378016 | |
| II型胶原酶 | Worthington | LS004174 | |
| Falcon 70 μM 尼龙细胞筛 | Corning | CLS431751 | |
| 抗小鼠 CD45-FITC 抗体 | eBioscience | 11-0451-81 | |
| 抗小鼠 CD31-PE 抗体 | eBioscience | 12-0311-81 | |
| 抗小鼠 Flk-1 PE-Cy7 抗体 | BD Pharmingen | 561259 | |
| Hoechst 33342(双苯并咪唑 H 33342 三盐酸盐) | Sigma | 14533 | 有毒:具刺激性。操作时需佩戴护目镜和手套。用蒸馏 H2O 配制 25 mg/ml 储存液,分装后于 -20 °C 保存,待用。 |
| 盐酸维拉帕米 | Sigma | 1711202 | 有毒:具刺激性。操作时需佩戴护目镜、口罩和手套。 用 95% 乙醇配制 5 mM(100倍)储存液。 分装后于 -20 °C 保存,待用 |
| Falcon 5 ml 圆底聚苯乙烯试管,带细胞筛 snap cap 盖 | Corning | 352235 | |
| MethoCult GF M3434 | Stem Cell Technologies | 3434 | 按生产商说明书进行解冻和分装 |
| 改良 Giemsa 染色液 | Sigma | GS500 | 有毒:含甲醇,应在通风橱中使用,并佩戴手套操作。用蒸馏水稀释至 0.02% 溶液。 |
| Cytospin 离心机 | Thermo Scientific | A78300003 | |
| Clipped Funnel 起始套装 | Thermo Scientific | 3120110 | 包含用于 Cytospin 离心机的细胞沉降漏斗(cytofunnels)、滤纸、载片(cytoslides)和夹具(cytoclips) |
| 抗小鼠 B-220-FITC 抗体 | BD Pharmingen | 553088 | |
| 抗小鼠 Gr-1-FITC 抗体 | eBioscience | 11-5931-85 | |
| 抗小鼠 Ter-119-FITC 抗体 | eBioscience | 11-5921-85 | |
| Gibco 胎牛血清 | Thermo Scientific | 10437-077 | |
| DMEM 培养基(Dulbecco 改良 Eagle 培养基,4.5 g/L) | Life Technologies | 11965-092 | |
| Hank's 平衡盐溶液 | Life Technologies | 14175-095 | |
| 纤维连接蛋白包被的 24 孔组织培养板 | EMD Millipore | PIFB24P05 | |
| IgG2A-PE 同型对照抗体 | BD Pharmingen | 553930 | |
| IgG2B-FITC 同型对照抗体 | BD Pharmingen | 556923 |
参考文献
- Hirschi, K. K. Hemogenic endothelium during development and beyond. Blood. 119 (21), 4823-4827 (2012).
- Boisset, J. C., et al. et al. In vivo imaging of haematopoietic cells emerging from the mouse aortic endothelium. Nature. 464 (7285), 116-120 (2010).
- Bertrand, J. Y., et al. Haematopoietic stem cells derive directly from aortic endothelium during development. Nature. 464 (7285), 108-111 (2010).
- Kissa, K., Herbomel, P. Blood stem cells emerge from aortic endothelium by a novel type of cell transition. Nature. 464 (7285), 112-115 (2010).
- Nadin, B. M., Goodell, M. A., Hirschi, K. K. Phenotype and hematopoietic potential of side population cells throughout embryonic development. Blood. 102 (7), 2436-2443 (2003).
- Nakano, H., et al. Haemogenic endocardium contributes to transient definitive haematopoiesis. Nat Commun. 4, 1564(2013).
- Li, Z., et al. Mouse embryonic head as a site for hematopoietic stem cell development. Cell Stem Cell. 11 (5), 663-675 (2012).
- Medvinsky, A., Dzierzak, E. Definitive hematopoiesis is autonomously initiated by the AGM region. Cell. 86 (6), 897-906 (1996).
- Palis, J., Robertson, S., Kennedy, M., Wall, C., Keller, G. Development of erythroid and myeloid progenitors in the yolk sac and embryo proper of the mouse. Development. 126 (22), 5073-5084 (1999).
- de Bruijn, M. F., Speck, N. A., Peeters, M. C., Dzierzak, E. Definitive hematopoietic stem cells first develop within the major arterial regions of the mouse embryo. Embo J. 19 (11), 2465-2474 (2000).
- Goldie, L. C., Lucitti, J. L., Dickinson, M. E., Hirschi, K. K. Cell signaling directing the formation and function of hemogenic endothelium during murine embryogenesis. Blood. 112 (8), 3194-3204 (2008).
- Marcelo, K. L., et al. Hemogenic endothelial cell specification requires c-Kit, Notch signaling, and p27-mediated cell-cycle control. Dev Cell. 27 (5), 504-515 (2013).
- Tavian, M., et al. Aorta-associated CD34+ hematopoietic cells in the early human embryo. Blood. 87 (1), 67-72 (1996).
- Wang, L., et al. Endothelial and hematopoietic cell fate of human embryonic stem cells originates from primitive endothelium with hemangioblastic properties. Immunity. 21 (1), 31-41 (2004).
- Kelly, M. A., Hirschi, K. K. Signaling Hierarchy Regulating Human Endothelial Cell Development. Arterioscler Thromb Vasc Biol. 29 (5), 718-724 (2009).
- Kennedy, M., et al. T lymphocyte potential marks the emergence of definitive hematopoietic progenitors in human pluripotent stem cell differentiation cultures. Cell Rep. 2 (6), 1722-1735 (2012).
- Goodell, M. A., Brose, K., Paradis, G., Conner, A. S., Mulligan, R. C. Isolation and functional properties of murine hematopoietic stem cells that are replicating in vivo. J Exp Med. 183 (4), 1797-1806 (1996).
- Takahashi, M., Osumi, N. The method of rodent whole embryo culture using the rotator-type bottle culture system. J Vis Exp. (42), (2010).
- Bohnsack, B. L., Lai, L., Dolle, P., Hirschi, K. K. Signaling hierarchy downstream of retinoic acid that independently regulates vascular remodeling and endothelial cell proliferation. Genes Dev. 18 (11), 1345-1358 (2004).
- Coffman, R. L., Weissman, I. L. B220: a B cell-specific member of the T200 glycoprotein family. Nature. 289 (5799), 681-683 (1981).
- Fleming, T. J., Fleming, M. L., Malek, T. R. Selective expression of Ly-6G on myeloid lineage cells in mouse bone marrow. RB6-8C5 mAb to granulocyte-differentiation antigen (Gr-1) detects members of the Ly-6 family. J Immunol. 151 (5), 2399-2408 (1993).
- Kina, T., et al. The monoclonal antibody TER-119 recognizes a molecule associated with glycophorin A and specifically marks the late stages of murine erythroid lineage. British Journal of Haematology. 109 (2), 280-287 (2000).
- Jackson, K. A., et al. Regeneration of ischemic cardiac muscle and vascular endothelium by adult stem cells. J Clin Invest. 107 (11), 1395-1402 (2001).
- Scharenberg, C. W., Harkey, M. A., Torok-Storb, B. The ABCG2 transporter is an efficient Hoechst 33342 efflux pump and is preferentially expressed by immature human hematopoietic progenitors. Blood. 99 (2), 507-512 (2002).
- Gomez Perdiguero,, E,, et al. Tissue-resident macrophages originate from yolk-sac-derived erythro-myeloid progenitors. Nature. 518 (7540), 547-551 (2015).
- Murray, P. J., Wynn, T. A. Protective and pathogenic functions of macrophage subsets. Nat Rev Immunol. 11 (11), 723-737 (2011).
重印与许可
