在体内生长阶段,人源肿瘤异种移植模型具有血管化特征,并被来源于小鼠的细胞浸润。in vivo 为保留的拉丁学术用语,按规范保留原文。为避免这些污染性细胞在后续分析中引入偏差,我们开发了一种通过磁性细胞分选实现全面清除所有小鼠来源细胞的方法。
本文内容
摘要
摘要
使用 体外 用于癌症研究的细胞系模型一直是一种有用的工具。然而,研究表明,这些模型在不同的检测中无法可靠地模拟患者的肿瘤。1人源肿瘤异种移植模型在肿瘤生物学、药物发现及转移研究中被视为金标准 2-4肿瘤异种移植模型可来源于不同类型的材料,如肿瘤细胞系、原发性患者肿瘤的肿瘤组织4 或连续移植的肿瘤。当扩增培养时 体内移植组织中会浸润并被来源于小鼠的细胞所血管化。多种因素,如肿瘤类型、移植材料来源、生长速率及移植部位,均会影响肿瘤异种移植模型中鼠源细胞的组成和数量。然而,即使在这些因素保持恒定的情况下,鼠源细胞污染的程度仍具有高度变异性。
污染的小鼠细胞会显著影响人源肿瘤异种移植样本的下游分析。由于小鼠成纤维细胞具有较高的贴壁效率和增殖速率,它们往往会在培养过程中过度生长,从而抑制人源肿瘤细胞(尤其是增殖缓慢的亚群)的生长。来源于小鼠细胞的DNA、mRNA和蛋白质成分可能对下游的基因表达分析、高通量测序以及蛋白质组学分析造成偏差5。为克服这些局限性,我们开发了一种快速简便的方法,用于从异种移植的肿瘤组织中分离出未受干扰的人源肿瘤细胞。该方法基于通过自动化组织解离仪进行组织解离,并结合磁珠细胞分选技术,全面去除来源于小鼠的细胞。本文中,我们证明了该方法可在20分钟内获得纯度超过96%的人源目标细胞,且不受肿瘤类型的影响。
引言
实体人类肿瘤由多种生理细胞以及肿瘤细胞类型组成,形成具有复杂生物学结构的异质性组织。目前,对于肿瘤形成、进展以及对治疗反应等生物学过程尚未完全阐明。体外细胞培养模型是研究和理解肿瘤生物学的有用工具,但其只能部分模拟肿瘤组织中的结构和过程。可靠且稳定的临床前人类肿瘤模型是开发抗肿瘤药物和疗法4,6的前提,同时也对理解肿瘤生物学及肿瘤细胞与其微环境之间的相互作用至关重要。
源自患者原发肿瘤的人源肿瘤异种移植模型在组织学结构、与微环境结构的相互作用、转移潜能以及药物反应方面,均与来源组织具有高度相似性7即使肿瘤异种移植模型来源于培养的细胞或细胞系,它们也更接近患者体内的肿瘤,因此在大多数检测中表现出更高的有效性。 体外 细胞培养模型。这些特点使其成为临床前模型的金标准4除了在癌症研究中的应用外,将人类细胞异种移植到小鼠体内也常用于干细胞研究,以评估目标细胞群体的干性及分化潜能8.
已证明,人源微血管系统和人源免疫细胞可在移植后被替代 体内 人类肿瘤的传代培养2,9肿瘤亚型、生长速率和移植区域等因素对浸润的整体水平以及所发现的小鼠细胞类型的组成具有重要影响。然而,即使在这些因素保持恒定的情况下,小鼠细胞的数量和组成仍表现出高度变异性。
异种移植组织的下游分析常受到小鼠来源细胞的干扰。来自异种移植瘤的人类肿瘤细胞原代培养物常被成纤维细胞过度生长所污染。这不仅阻碍了肿瘤细胞系的建立 体外,由于下游实验(如药物细胞毒性检测或药代动力学)存在偏差,因此 计算机模拟 大多数情况下,无法校正由污染的小鼠细胞所引起的影响。此外,小鼠成纤维细胞与人类肿瘤细胞之间仅部分阐明的相互作用会直接影响研究的实验结果10此外,浸润性小鼠细胞的最广泛且不可预测的变异会加剧下游分子分析的准确性问题。在下一代测序(NGS)或蛋白质组分析中,每检测到一个来源于小鼠的信号而非人类肿瘤信号,都会直接降低测序的灵敏度。基于微阵列的表达分析也面临挑战,因为小鼠核酸可能与人类探针发生交叉杂交。
为了克服在人源异种移植模型中进行人肿瘤细胞下游分析时小鼠细胞污染所带来的障碍,已提出多种不同方法。在许多研究中,通过利用仅在人肿瘤细胞上表达的标记物或标记物组合来分离下游分析所需的靶细胞。然而,缺乏可用于可靠鉴定人肿瘤细胞的标记物常常构成一大难题。即使是广泛表达的标记物,如人上皮癌中的EpCAM,也常表现出肿瘤固有的表达差异11这增加了低表达亚群 例如, 经历上皮-间质转化的肿瘤细胞在分离过程中会丢失。此外,选择试剂与靶细胞的直接结合可能影响后续分析结果。研究人员也尝试使用针对小鼠 CD45 和 MHC I 类表位的特异性抗体组合来耗尽小鼠细胞。12然而,这种标志物组合仅能检测到一部分小鼠细胞。另一种方法是通过软件增强分析过程。但所有这些方法要么不适用于任何类型的实验设置,要么不适用于任何肿瘤实体和移植方法。
本研究中,我们提出了一种新颖且快速的方法,可全面清除异种移植组织中的小鼠细胞,且不受小鼠品系和组织来源的限制。通过对多种用于异种移植的靶器官和组织(包括皮肤、肺、脑、肾和骨骼肌)进行筛选,我们鉴定出一组抗体组合,能够全面检测小鼠细胞。这些抗体与超顺磁性微粒偶联,并通过磁性细胞分选技术进行滴定和优化,以实现高效的细胞清除。由于仅使用特异性识别小鼠细胞的抗体,人类目标细胞保持"未受干扰"状态,且该方法不仅限于异种移植的肿瘤组织。我们证明,从异种移植肿瘤样本中全面去除小鼠细胞可标准化并简化人类肿瘤细胞的培养。此外,我们还显示,通过下一代测序对人类肿瘤异种移植样本进行分析的效率显著提高。尽管在外显子富集过程中已进行了针对人类序列的特异性筛选,仍观察到该方法的显著影响,因此其对全基因组测序和全转录组测序的影响预计更为显著。综上所述,利用这一新方法去除小鼠细胞,不仅有助于人类肿瘤细胞的培养,还显著改善了人类肿瘤异种移植样本的下游分析效果。
方案
所有动物实验均依照当地的伦理与法律准则进行 弗莱堡政府地区管理局 第35处
1. 试剂准备
注意:在开始实验之前,使用解离试剂盒配制以下试剂:
- 为制备酶H,将每瓶冻干粉溶解于3 ml RPMI 1640(Roswell Park Memorial Institute 1640)或DMEM(Dulbecco改良Eagle培养基)中。为避免反复冻融,请分装成适当体积的 aliquot例如,200 µl)并于 -20 °C 保存,最长可保存 6 个月。
- 将冻干粉小瓶中的酶R溶于2.7 ml RPMI或DMEM培养基中以进行配制。为避免反复冻融,请分装成适当的等份量。例如, 100 µl,于 -20 °C 保存,可保存长达6个月。
- 为制备酶A,将冻干粉试剂瓶中的粉末溶解于1 ml试剂盒中提供的缓冲液A中,不可涡旋。为避免反复冻融,请分装成适当体积的 aliquot(分装液)例如,25 µl)并于 -20 °C 保存,可保存长达6个月。在取用所需反应体积前,务必充分混匀该悬浮液。
- 配制 250 ml 缓冲液(1x) 含0.5% BSA的PBS,用于细胞分离步骤和抗体染色。
注意:在去除小鼠细胞后培养细胞时,需将所有缓冲液和酶溶液通过0.22 µm滤器过滤。
2. 肿瘤解离方案
注意:本研究使用了非小细胞肺癌(NSCLC)、肾癌和膀胱癌的患者来源异种移植瘤。肿瘤通过将非小细胞肺癌(NSCLC)、肾癌和膀胱癌的异种移植组织植入4至6周龄的雌性NMRI nu/nu小鼠体内而建立,具体方法如前所述13。
注意:由于本方案完全独立于肿瘤类型,因此无需修改即可适用于任何类型的患者来源或细胞系来源的肿瘤,以及其他类型的人源异种移植组织。
- 每份组织样本(不超过1 g)新鲜配制5 ml消化液,向细胞解离管(C Tube)中加入4.7 ml RPMI 1640或DMEM、200 µl酶H、100 µl酶R和25 µl酶A。吸取酶R前需充分混匀其悬液。
- 在麻醉下通过颈椎脱位处死动物。用少量80% v/v乙醇喷洒小鼠进行消毒。
- 在生物安全柜中,使用镊子和剪刀从小鼠 flank 部采集皮下肿瘤。用剪刀在肿瘤位置切开皮肤,然后使用镊子和剪刀将肿瘤与周围健康组织分离。
注意:根据实验目的,需在无菌条件下进行本步骤及后续操作。本研究中,所有步骤均在细胞培养超净台内的无菌条件下进行,以便能够培养细胞。 - 使用镊子和手术刀切除肿瘤样本中的脂肪组织(脂肪会导致样本漂浮)和坏死区域(坏死组织会降低细胞活性),以备消化。用手术刀和镊子将组织剪切成 2 - 4 mm 的小块。
- 将组织块转移至含有消化液的C管中。
- 关闭C管并确保其完全密封。将其倒置并固定在台式组织解离仪的套筒上,确保组织块位于转子/定子区域。
- 选择模式 "h_tumor_01" 通过按压 "向上" 或 "向下" 按钮,直到模式显示在屏幕上,然后按下 "开始" 按钮
- 如果使用台式组织解离仪的加热功能,请确保同时连接加热器。然后点击触摸屏上的文件夹图标,运行模式 37C_h_TDK_1(适用于软肿瘤)、37C_h_TDK_2(适用于中等硬度肿瘤)或 37C_h_TDK_3(适用于硬肿瘤),直至进入文件夹 "Miltenyi" 出现。
- 选择模式时,点击向上或向下箭头,直至高亮显示解离模式 37C_h_TDK_2。台式组织解离仪的套管在设备显示屏上以位置形式呈现。通过触摸屏点击选择样品运行的位置。按下 "开始" 运行该模式并继续执行步骤 2.16。
注意:根据肿瘤类型的不同,可能需要选择其他解离程序(参见步骤 2.7.1)。
- 观察一个显示窗口 "程序终止" 在屏幕上。程序结束后,将C管从台式组织解离仪上取下。
- 37 °C 下持续旋转孵育样品 30 分钟, 例如,使用试管旋转仪。
- 孵育后,将C管倒置并连接到台式组织解离仪的套筒上。再次确保样品位于转子/定子区域。
- 运行解离程序 h_tumor_02(适用于软质和中等硬度肿瘤)或 h_tumor_01(适用于硬质肿瘤),具体操作如步骤 2.7.1 所述。
- 程序结束后,将C管从台式组织解离仪上取下。
- 37 °C下持续旋转孵育样品30分钟。
- 将C管倒置并固定在台式组织解离仪的套筒上,完成孵育后再次确保样品位于转子/定子区域。
- 运行解离程序 h_tumor_03(适用于软质肿瘤)、h_tumor_02(适用于中等硬度肿瘤)或 h_tumor_01(适用于硬质肿瘤),具体操作如步骤 2.7 所述。
- 为将样本材料收集至管底,进行短暂离心(100 × g,10 秒)。
- 重悬细胞,并通过置于50 ml离心管上的70 µm细胞筛网过滤。用20 ml RPMI 1640或DMEM洗涤细胞筛网。
- 300 × g 离心细胞悬液 7 分钟。完全吸除上清液。
- 将细胞重悬于5 ml缓冲液中进行计数。随后按照磁性细胞分离法进行小鼠细胞耗竭(第3节)。
3. 利用磁性细胞分离技术进行小鼠细胞耗竭
注意:以下磁性标记的体积适用于最多 2 × 10⁶ 个肿瘤细胞或包含红细胞在内的总计 107 个细胞。根据肿瘤大小,所获得的细胞数量可能较少或较多。若细胞数量较少,仍使用上述指定的相同体积;若细胞数量较多,则相应地按比例增加所有试剂体积和总体积(例如,对于 4 × 10⁶ 个肿瘤细胞或 2 × 10⁷ 个总细胞,所有指定试剂体积和总体积均使用两倍量)。
- 使用显微镜和合适的计数室,测定步骤 2.21 中细胞悬液等分试样的细胞数量。
注意:此时细胞悬液包含人类肿瘤细胞以及小鼠间质细胞和血细胞(包括红细胞)的异质性混合物。细胞组成在很大程度上取决于肿瘤类型和移植区域。 - 在去除小鼠细胞后进行流式细胞术分析时,取 100 µl 等分试样至合适的试管中,用于未染色对照和两个单色对照染色的流式细胞术分析。将样品储存在 2 - 8 °C 的冰箱中,直至进行后续染色步骤(第 4 节)。
- 将细胞悬液以 300 × g 离心 10 分钟。弃去上清液。
- 每 2 × 10⁶ 个肿瘤细胞或每 107 个总细胞,用 80 µl 缓冲液重悬细胞沉淀。加入 20 µl 针对小鼠细胞的磁性标记试剂。
- 充分混匀,在冰箱(2 - 8 °C)中孵育 15 分钟。在磁性标记期间,按照制造商说明书,将大规模分离柱(LS 柱)置于合适磁铁的磁场中,以准备用于磁性分离。用 3 ml 缓冲液冲洗柱子。
- 根据细胞数量,用缓冲液将样品体积调整至 500 µl,适用于最多 2 × 10⁶ 个肿瘤细胞或最多 107 个总细胞。(一个 LS 柱最多可处理 1 × 10⁷ 个肿瘤细胞或最多 5 × 10⁷ 个总细胞。当细胞数量更多时,应将样品分至多个 LS 柱上处理)。
- 若需进行流式细胞术分析、分子分析或在培养中比较不同组分,请保留 50 µl 等分试样作为未分选样品。将样品储存在 2 - 8 °C 的冰箱中,直至进一步处理。
- 将 500 µl 细胞悬液加至先前准备好的柱子上。收集流穿液,其中含有未标记的目标细胞,即富集的人类肿瘤细胞。
注意:当处理更高细胞数量时,最多可将 2.5 ml 按照步骤 3.5 制备的细胞悬液加至一个柱子上。 - 用 2 × 1 ml 缓冲液洗涤柱子。收集穿过的细胞,并与步骤 3.6 中的流穿液合并。每次在柱子储液室排空后立即加入 1 ml 缓冲液进行洗涤。
注意:流穿液中含有纯化的人类肿瘤细胞。 - 如需同时收集滞留在柱子中的小鼠细胞,需将柱子从分离装置上取下,并置于合适的试管上。向柱子中加入 3 ml 缓冲液,并立即使用推杆用力将其推入柱子,以冲洗出小鼠细胞。
- 将各组分及对照样品以 300 × g 离心 10 分钟。彻底吸除上清液,根据后续实验需求,用缓冲液、培养基重悬细胞,或将细胞沉淀在液氮中冷冻保存。
4. 下游分析
- 用于流式细胞术分析的染色
注意:在进行后续下游分析之前,可对从小鼠细胞耗竭步骤中获得的部分细胞进行分析(例如,通过流式细胞术评估纯度和得率。- 进行流式细胞术分析时,将磁性细胞分选步骤(第3节)获得的阴性组分和阳性组分至少各取10%,以及步骤3.2和3.5中的对照样品,于300 × g离心10分钟。
- 弃去上清液。将步骤3.2中染色对照样品的细胞沉淀用90 µl缓冲液重悬。将磁性细胞分选步骤获得的组分用80 µl缓冲液重悬。
- 向所有样品中加入10 µl小鼠FcR封闭试剂,充分混匀,在2 - 8 °C冰箱中孵育5分钟。
- 向第3步的样品中加入10 µl抗人EpCAM-PE(抗体稀释比例为1:10)和25 µl抗小鼠-APC混合抗体(抗体稀释比例为1:4)。向其中一个单色对照样品中加入10 µl抗人EpCAM-PE(抗体稀释比例为1:10),向另一个单色对照样品中加入10 µl抗人EpCAM-APC(抗体稀释比例为1:10)。混匀所有样品,并在2 - 8 °C冰箱中避光孵育10分钟。
注意:EpCAM 不适用于作为任何肿瘤类型的肿瘤细胞标志物。本研究中所用肿瘤的 EpCAM 表达情况已知。 - 洗涤样本时,每份加入1 ml缓冲液,以300 × g离心5分钟。
- 弃去上清液,将细胞沉淀重悬至适合流式细胞术分析的浓度。为排除死细胞,加入碘化丙啶(1 µg/ml)。
- 使用合适的流式细胞仪,按照制造商的方案进行流式细胞术分析。
- 人肿瘤细胞的培养
注意:除了流式细胞术外,分离步骤获得的细胞还可进行培养并用于进一步的检测 体外.- 将第3部分中分选得到的细胞组分用培养基重悬,调整浓度至5 x 10⁵ 细胞/毫升
注意:根据肿瘤类型的不同,包被条件、适宜的接种密度和培养条件可能有所差异。 - 将500 µl细胞悬液加入已包被0.1%明胶的24孔板的孔中。
- 在37 °C、5% CO₂的细胞培养孵育箱中孵育细胞。
注意:最佳培养条件取决于所使用的肿瘤类型。因此,应采用适合该肿瘤类型的培养条件。
- 将第3部分中分选得到的细胞组分用培养基重悬,调整浓度至5 x 10⁵ 细胞/毫升
- 培养细胞的免疫荧光染色
- 将10% FCS和0.1% Triton X-100加入1x PBS中,配制封闭液。
- 弃去培养基。每孔加入500 µl 1×PBS洗涤细胞。室温(RT)孵育2 min,然后完全弃去1×PBS。
- 加入300 µl 4% PFA溶液固定细胞,在室温下孵育15分钟。
- 弃去PFA溶液。按照步骤4.3.2中的说明对固定后的细胞洗涤3次。
- 加入300 µl封闭液至每孔,进行透化和封闭,室温孵育30分钟。
- 弃去封闭液,按步骤 4.3.2 所示洗涤细胞。
- 加入300 µl用封闭液稀释的一抗至细胞中。抗人EpCAM抗体按1:40稀释,Vimentin抗体按1:200稀释。于2 - 8 °C孵育过夜。
注意:所使用的抗体可能不适用于所有肿瘤类型,因为EpCAM可能在肿瘤细胞中不表达,和/或波形蛋白(vimentin)也可能在肿瘤细胞中表达。请确保所使用的抗体适用于异种移植模型。 - 弃去一抗溶液。按照步骤4.3.2中的说明洗涤细胞3次。
- 向细胞中加入300 µl用封闭液稀释的二抗。两种抗体anti-rabbit IgG-Alexa594和anti-mouse IgG-Alexa488均按1:400比例稀释。室温避光孵育1小时。
- 弃去二抗溶液。按照步骤4.3.2中的说明洗涤细胞2次。
- 每孔加入 300 µl DAPI 溶液(0.1 µg/ml),室温避光孵育 10 分钟。
- 弃去 DAPI 溶液。按照步骤 4.3.2 的说明洗涤细胞 3 次。
- 每孔加入 500 µl 1x PBS。使用合适的显微镜进行荧光显微观察。
- 全外显子组测序
- 全外显子组测序(WES)需将第3.9步所得沉淀物在液氮中速冻,随后于-80 °C保存并收集样本。
- 收集细胞后,根据相应试剂盒的说明书进行外显子捕获和全外显子测序(参见材料与设备表)。
结果
已有多种方法被提出用于鉴定或清除异种移植人肿瘤中的小鼠细胞,例如使用针对CD45和MHC I类分子的小鼠特异性抗体组合。然而,这些抗体组合仅能检测到部分小鼠细胞亚群,而本研究所提出的抗体组合不仅可检测表达CD45和MHC I类分子的小鼠细胞,还能检测移植靶组织中其他所有小鼠细胞(图1)。利用该新型抗体组合进行磁珠分选,可实现不依赖肿瘤类型的人肿瘤细胞分离(图2)。
通过基于磁性细胞分离法去除小鼠细胞后获得的细胞可进行培养,从而得到纯的人类肿瘤细胞培养物(图4)。此外,同一样本中也可获得并培养存活的小鼠细胞。除去除小鼠细胞外,在去除小鼠细胞(MCD)的过程中也清除了碎片(图3)。
小鼠细胞的全面去除以及碎片的清除有助于提升后续分子分析的质量。这一点通过比较三种不同患者来源的异种移植肿瘤模型中,对整块肿瘤组织和去除了小鼠细胞的样本进行全外显子组测序(WES)所获得的结果得以证实。图5 - 9我们的数据表明,在对异种移植肿瘤样本进行全外显子组测序(WES)之前去除小鼠细胞,不仅显著增加了总读段数量 (图5) 而且显著减少了比对到人类参考基因组的宿主来源读段数量 (图6B). 由于这些错误比对的小鼠reads经常干扰SNP的检测,我们在使用MCD后观察到错误预测的SNP数量显著减少 (图 7 - 8)最后,我们证明了通过生物信息学方法在计算机中去除小鼠来源的序列读段无法完全替代实验步骤,因为并非所有读段都能基于序列明确地分配到其来源物种。此外,在计算机中去除小鼠读段的步骤也无法校正小鼠序列因质量更高而伴随产生的读段覆盖度偏高的问题 体外 耗竭样本 (图9).
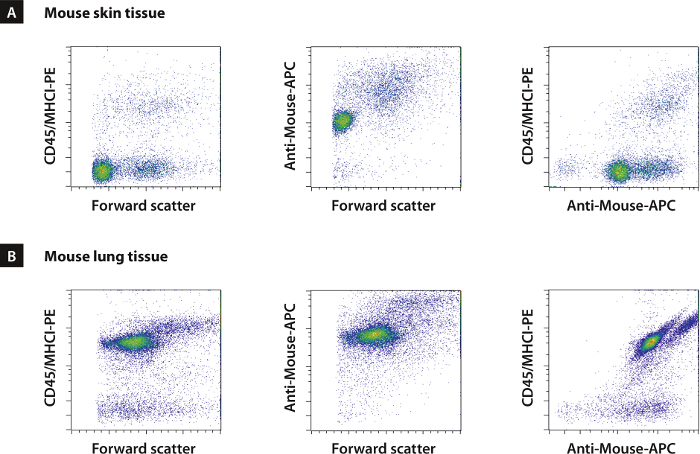
图 1. 建立一种可识别多种器官中所有小鼠细胞的抗体混合物14。 已在包括皮肤、肺、脑、肾和骨骼肌在内的多个器官中进行了筛选。这些器官代表了异种移植的主要靶组织。已有研究使用识别小鼠 CD45 和 MHC I 类分子表位的组合,以实现异种移植后小鼠细胞的清除。然而,这些标记物组合仅能识别所有分析组织中的一部分小鼠细胞。在先前的筛选中,已鉴定出由五种抗体组成的组合,可全面检测所有来源于小鼠的细胞。该抗体组合可识别红细胞,且不受来源组织的影响(A、B,以及未显示的数据)。改编自14。 请点击此处查看此图的放大版本。
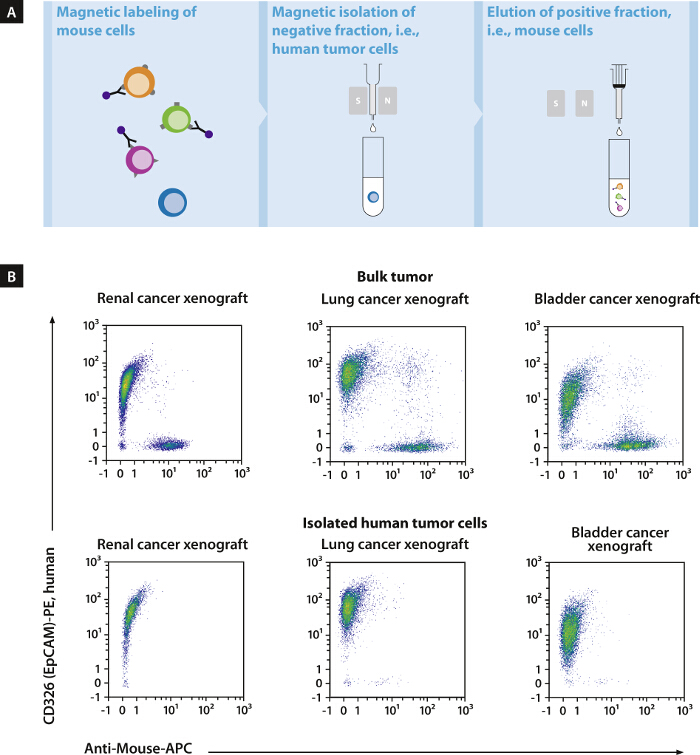
图 2. 小鼠细胞的高效且快速去除15。 利用抗体组合与超顺磁性纳米颗粒的偶联物,建立了一种通过磁性细胞分选(磁性细胞分离)从人源肿瘤异种移植样本中去除小鼠细胞的优化方案(A)。该新方案可在不到 20 分钟内清除 > 99% 的污染性小鼠细胞,且不受肿瘤类型的影响。经磁性细胞分离程序获得的细胞组分使用广谱小鼠抗体混合物以及针对 CD326(EpCAM)的人源特异性抗体进行标记(B)。改编自15。 请点击此处查看本图的高清版本。
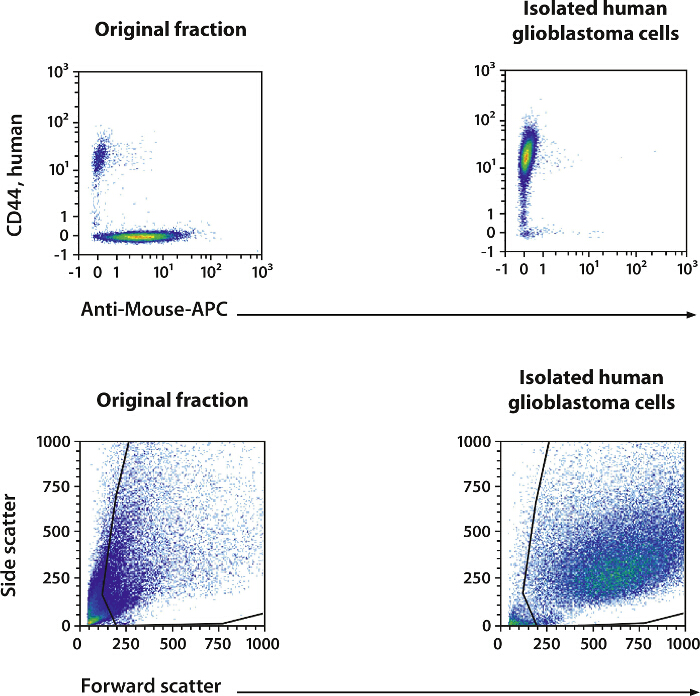
图3. 人脑胶质母细胞瘤细胞的分离 小鼠细胞去除试剂盒用于从成年小鼠脑中分离人胶质母细胞瘤细胞。在神经组织解离过程中,通常会产生大量碎片。MCDK 能有效去除死细胞和碎片,这一点可通过细胞大小与细胞颗粒度关系图得到验证。使用该偶联物混合物,可实现 > 99%的污染小鼠细胞及 > 60% 的碎片。 请点击此处以查看此图的放大版本。
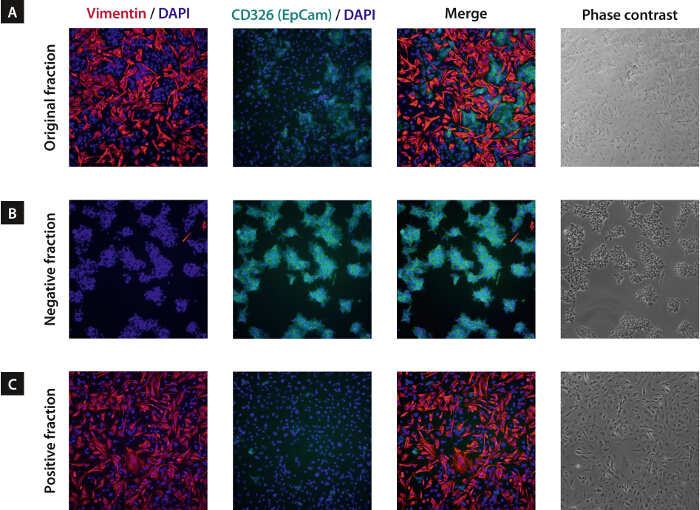
图4. 小鼠细胞的去除有助于人肿瘤细胞的后续培养14. 小鼠成纤维细胞在移植组织解离后常常会干扰人肿瘤细胞的培养,或导致培养物不均一。由于成纤维细胞贴壁和增殖效率更高,因而会过度生长并覆盖目标细胞。这会干扰 体外 细胞培养实验(例如, 药物细胞毒性检测),因为在大多数情况下无法通过数学方法校正由污染的小鼠细胞所引起的影响。阴性(B)以及阳性组分(C) 在去除小鼠细胞后培养三天,随后固定并用小鼠特异性成纤维细胞标志物(Vimentin)和人特异性肿瘤标志物CD326(EpCAM)进行染色。作为对照,原始含有未分离细胞的组分(A) 也进行了培养和染色。即使在培养三天后,阴性组分中仍观察到近乎纯的人类肿瘤细胞群。B),而未分选组分(A) 几乎被成纤维细胞过度生长。仅有少量目标细胞损失于阳性组分中。C)。改编自14. 请点击此处以查看此图的放大版本。
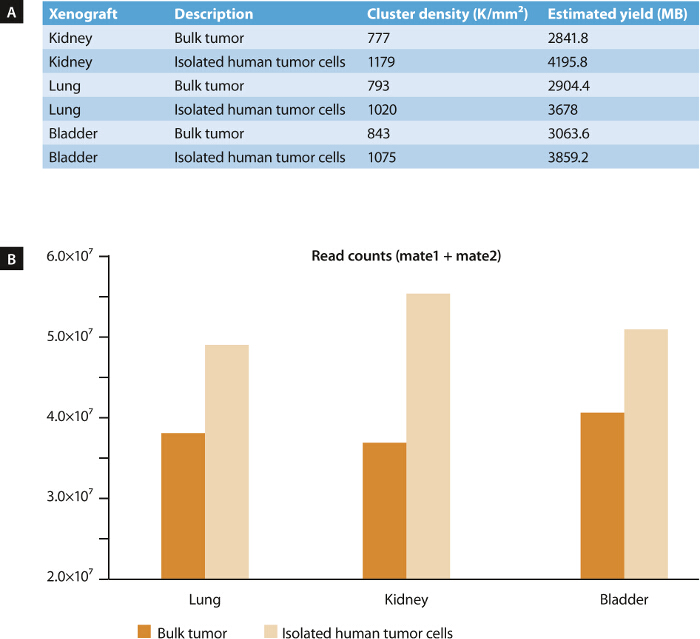
图 5. 肿瘤样本在小鼠细胞清除(MCD)前后的全外显子组测序(WES)15。为了评估MCD对下一代测序数据质量的影响,我们对来源于人肾癌、肺癌和膀胱癌的三种不同异种移植模型进行了WES分析。使用肿瘤组织总DNA以及经小鼠细胞清除后分离获得的肿瘤细胞DNA,通过外显子捕获试剂盒构建外显子富集的测序文库。为在台式测序仪上进行测序,采用150个循环的台式测序仪试剂盒,生成75 bp的双端测序读段。在清除小鼠细胞的样本中,簇密度 (A)显著增加(p < 0.05),同时测序读段数平均增加33% (B),表明样本质量得到改善。与此一致,流式细胞术分析也显示MCD后碎片和死细胞明显减少(见图 3)。改编自15。请点击此处查看该图的放大版本。
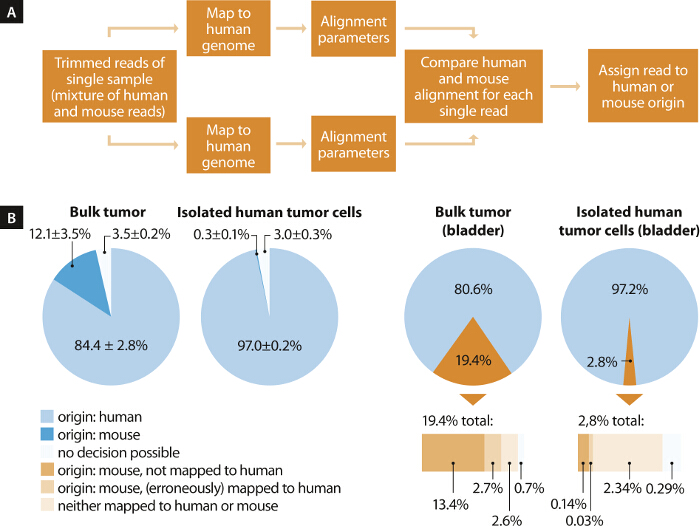
图 6. 小鼠细胞耗竭(MCD)可显著减少全外显子组测序(WES)后错误比对的小鼠读段数量15。 由于用于靶向富集蛋白编码序列的捕获寡核苷酸是基于人类基因组设计的,因此预期在小鼠和人类细胞混合物中,最初可富集来源于人类的DNA片段。为了评估可能与小鼠基因组DNA发生交叉杂交的捕获寡核苷酸数量,我们对每一条快速捕获外显子探针单独进行了针对小鼠基因组的BLAST搜索。利用所得的比对参数来确定可能的交叉杂交情况。根据不同的筛选阈值(比对长度、错配数、缺口数),我们预测约有5–10%的捕获探针会与小鼠转录本发生交叉反应(数据未显示)。在接头剪切(Trimmomatic v0.3216)后,我们将所有样本的读段比对至人类和小鼠基因组(BWA v0.7.1217),并基于相应的比对参数确定其可能来源(LINUX shell,命令行Perl)(A)。来自原发肿瘤样本的读段中平均有12%来源于小鼠细胞。通过预先耗竭小鼠细胞,该比例可降低至0.3%(B)。由于平均约15%来源于小鼠的读段被错误地比对到人类基因组上,这相当于原发肿瘤样本总读段的1.9%,以及分离出的肿瘤细胞中总读段的0.04%,因此可预期小鼠细胞耗竭将对后续分析产生显著的正面影响。图 6B 展示了来自膀胱癌异种移植模型的原发肿瘤和分离的人类肿瘤细胞的读段分配详情。改编自15。请点击此处查看该图的放大版本。
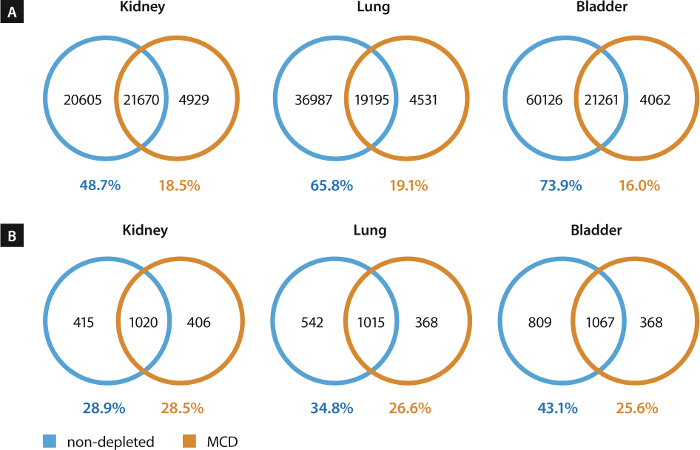
图7. MCD显著减少错误预测SNP的数量15。 为评估小鼠序列比对到人类基因组的影响,我们分析了异种移植样本在MCD处理前后的预测SNP数量。由于缺乏可用于比较的健康组织,本研究将SNP定义为测序样本与参考基因组(hg19)之间的差异。在去除重复序列后,进行SNP和INDEL的检测18,并限定在全外显子捕获试剂盒所靶向的区域。在全部肿瘤组织样本中,63 ± 10%的预测SNP在去除小鼠细胞后不再被检测到,而18 ± 1%的SNP特异性地存在于分离的人类肿瘤细胞中(A)。前者主要由错误比对的小鼠序列引起,而后者则可能是由于人类肿瘤细胞样本中测序读长数量更高,从而导致覆盖度增加而被检测到。该效应在预测的INDEL中同样可见(B)。改编自15。 请点击此处查看该图的放大版本。
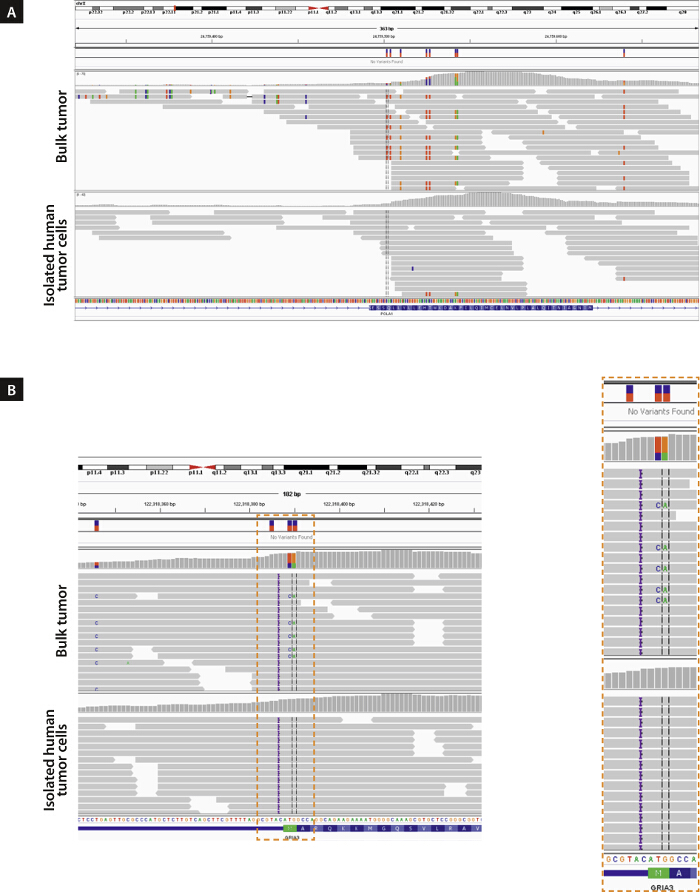
图8. MCD 提高了高影响 SNP 的预测准确性15. (A) MCD 对 POLA1 基因蛋白编码外显子内 SNP 预测的影响19 以GRIA3基因起始密码子的错误预测破坏为例。在批量肾癌异种移植样本中,由于小鼠reads错误比对,导致多个单核苷酸多态性(SNPs)被错误预测,但在经MCD处理后,这些错误预测的SNPs消失。此外,MCD还改善了对高影响SNPs的预测。例如,在批量肿瘤样本中,比对到人类参考基因组的小鼠reads导致了GRIA3基因起始密码子被错误预测为遭到破坏B)。改编自15. 请点击此处以查看此图的放大版本。
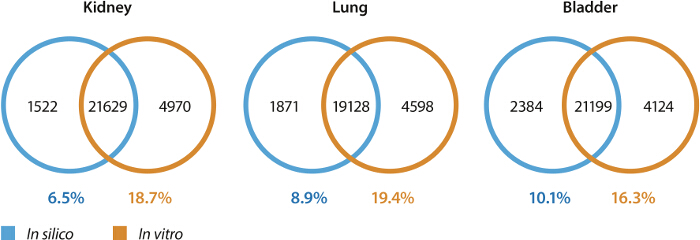
图9. 计算机模拟 小鼠来源序列的去除无法完全替代 I体外 MCD15. 预测为小鼠来源的测序读段从测序数据中通过计算方法去除后,重新进行了SNP calling。通过该方法,批量肿瘤样本中预测的SNP数量从占SNP总数的63%显著降低至8.5%(与 图8)。然而,这 in silico 该方法无法完全替代 体外 MCD,尤其是考虑到样本质量的提升以及随之而来的读段数量和覆盖度的增加时。改编自15. 请点击此处以查看该图的放大版本。
讨论
我们开发了一种快速简便的方法,用于从异种移植的肿瘤组织中分离出未经干扰的人类肿瘤细胞。该方法结合自动化组织解离与磁性细胞分选技术,全面去除来源于小鼠的细胞。除了清除所有小鼠来源的细胞外,目标细胞组分中的死细胞和碎片含量也显著降低。综上所述,该方法显著提高了人类肿瘤细胞的分子下游分析及培养效果。
与替代方法不同,本方法无需了解肿瘤细胞特异性标志物,无需针对小鼠细胞的不同组成进行调整,也无需建立算法。该方法不受小鼠品系和肿瘤类型的限制。因此,可避免因基于单一人类特异性标志物(如EpCAM11所示,其表达可能存在变异)分离人类肿瘤亚群而带来的偏差。此外,该方法不仅限于肿瘤组织,还可用于任何类型的异种移植组织,因为其靶向的是小鼠细胞,而非特定的人类肿瘤亚群(数据未显示)。
通过靶向仅在小鼠来源细胞表面表达的表位,可实现小鼠细胞的全面去除。除本研究中所述的肿瘤解离成熟方法外,目前还存在多种使用不同酶类的解离方案。细胞表面表位的保存是本新方法的前提,同时也是准确分析人源肿瘤细胞群体的必要条件。因此,必须使用温和的酶进行肿瘤组织的消化。因此,小鼠细胞去除方法只能与那些明确不影响小鼠细胞去除过程中靶向表位的酶消化程序联合使用。如有疑问,仅能通过相应生产商予以确认。
该方法也适用于人外周血循环肿瘤细胞(CTCs)的分离。然而,由于靶细胞的频率通常<0.1%,去除小鼠细胞时还需额外进行红细胞裂解步骤,且无法期望获得超过50%的纯度。在此情况下,可先采用去除小鼠细胞的方法对CTCs进行预富集,再使用阳性标记物进一步富集(数据未显示)。
去除小鼠细胞可显著改善人源肿瘤细胞的培养,避免小鼠成纤维细胞在培养过程中过度生长。此外,采用下一代测序技术对人源肿瘤异种移植样本进行分析的效果也得到显著提升和标准化。尽管在进行外显子富集时已实施了针对人源序列的特异性富集,仍观察到上述效应,因此预计该方法对全基因组测序和全转录组测序的影响将更为显著。
此外,该方法有助于对异种移植的人类肿瘤内肿瘤亚群进行精确的分子研究。首先去除相应样本中的小鼠细胞,随后将人类肿瘤细胞分选为两个不同的亚群,从而能够将目标肿瘤亚群与人类整体肿瘤细胞进行直接的分子比较20。由于不受小鼠来源分子交叉杂交的干扰,不同肿瘤细胞亚型间的差异基因表达可得到更可靠的评估。
披露
David Agorku、Stefan Tomiuk、Stefan Wild、Silvia Rüberg、Lisa Zatrieb、Andreas Bosio 和 Olaf Hardt 是或曾是德国 Miltenyi Biotec GmbH 的员工。Kerstin Klingner 和 Julia Schüler 是德国 Oncotest GmbH 的员工。
致谢
感谢 Janina Kuhl、Nadine Chelius、Petra Kussmann、Lena Willnow 和 Dorothee Lenhard 提供出色的技术支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 人肿瘤解离试剂盒 | Miltenyi Biotec | 130-095-929 | 包含酶 H、R 和 A;重悬说明详见产品说明书 |
| RPMI 1640 | Biowest | L0501-500 | |
| gentleMACS C 管 | Miltenyi Biotec | 130-096-334 | |
| 带加热模块的 gentleMACS Octo 解离仪 | Miltenyi Biotec | 130-096-427 | |
| MACS SmartStrainer(70 µm) | Miltenyi Biotec | 130-098-462 | |
| 100 mm 培养皿 | Various | ||
| 手术刀 | Various | ||
| 小鼠细胞去除试剂盒 | Miltenyi Biotec | 130-104-694 | |
| PBS | Various | PEB 缓冲液中使用 1× PBS | |
| EDTA | Sigma-Aldrich | 3610 | PEB 缓冲液中终浓度为 2 mM |
| BSA | Miltenyi Biotec | 130-091-376 | 或在 PEB 缓冲液中使用 5 mg/L BSA |
| MACS LS 分离柱 | Miltenyi Biotec | 130-042-401 | |
| QuadroMACS 分离器 | Miltenyi Biotec | 130-090-976 | |
| MACS MultiStand 支架 | Miltenyi Biotec | 130-042-303 | |
| PreSep 过滤器(70 µm) | Miltenyi Biotec | 130-095-823 | |
| MACSmix 管旋转混合仪 | Miltenyi Biotec | 130-090-753 | |
| CD326-FITC,人源 | Miltenyi Biotec | 130-080-301 | 免疫荧光染色时按 1:40 使用 |
| 抗波形蛋白抗体 | abcam | ab92547 | |
| 山羊抗小鼠 IgG-Alexa488 | Life Technologies | A11029 | |
| 山羊抗兔 IgG-Alexa594 | Life Technologies | A11012 | |
| DAPI | Sigma-Aldrich | D9542 | 用 0.1 M 碳酸氢钠溶液稀释至终浓度 0.1 µg/ml |
| Inside Stain 试剂盒 | Miltenyi Biotec | 130-090-477 | 该试剂盒中的 InsideFix 可用于免疫荧光染色过程中的固定步骤 |
| FBS | Various | ||
| Triton X-100 | Sigma-Aldrich | 93418 | |
| FcR 封闭试剂,小鼠源 | Miltenyi Biotec | 130-092-575 | |
| 明胶 | Sigma-Aldrich | G2500-100g | |
| Nextera Rapid Capture 富集试剂盒 | Illumina | FC-140-1000 | |
| MiSeq 试剂盒 v3 | Illumina | MS-102-3001 |
参考文献
- Daniel, V. C., et al. A primary xenograft model of small-cell lung cancer reveals irreversible changes in gene expression imposed by culture in vitro. Cancer Res. 69 (8), 3364-3373 (2009).
- Tentler, J. J., et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 9 (6), 338-350 (2012).
- DeRose, Y. S., et al. Tumor grafts derived from women with breast cancer authentically reflect tumor pathology, growth, metastasis and disease outcomes. Nat Med. 17 (11), 1514-1520 (2011).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Wong, S. Q., et al. Targeted-capture massively-parallel sequencing enables robust detection of clinically informative mutations from formalin-fixed tumours. Sci Rep. 3, 3494(2013).
- Sausville, E. A., Burger, A. M. Contributions of human tumor xenografts to anticancer drug development. Cancer Res. 66 (7), 3351-3354 (2006).
- Rubio-Viqueira, B., Hidalgo, M. Direct in vivo xenograft tumor model for predicting chemotherapeutic drug response in cancer patients. Clin Pharmacol Ther. 85 (2), 217-221 (2009).
- Reubinoff, B. E., Pera, M. F., Fong, C. Y., Trounson, A., Bongso, A. Embryonic stem cell lines from human blastocysts: somatic differentiation in vitro. Nat Biotechnol. 18 (4), 399-404 (2000).
- Merk, J., Rolff, J., Becker, M., Leschber, G., Fichtner, I. Patient-derived xenografts of non-small-cell lung cancer: a pre-clinical model to evaluate adjuvant chemotherapy. Eur J Cardiothorac Surg. 36 (3), 454-459 (2009).
- Baiocchi, M., Biffoni, M., Ricci-Vitiani, L., Pilozzi, E., De Maria, R. New models for cancer research: human cancer stem cell xenografts. Curr Opin Pharmacol. 10 (4), 380-384 (2010).
- Gires, O., Stoecklein, N. H. Dynamic EpCAM expression on circulating and disseminating tumor cells: causes and consequences. Cell Mol Life Sci. 71 (22), 4393-4402 (2014).
- Zhang, C. C., et al. Synergistic effect of the gamma-secretase inhibitor PF-03084014 and docetaxel in breast cancer models. Stem Cells Transl Med. 2 (3), 233-242 (2013).
- Boven, E., et al. Phase II preclinical drug screening in human tumor xenografts: a first European multicenter collaborative study. Cancer Res. 52 (21), 5940-5947 (1992).
- Agorku, D., Hardt, O., Bosio, A. Depletion of mouse cells from human tumor xenografts significantly reduces bias in molecular analysis and improves culture of target cells. Abstract 95. , AACR. (2014).
- Agorku, D., et al. Next-generation sequencing of human tumor xenografts is significantly improved by prior depletion of mouse cells. Abstract 1455. , AACR. (2015).
- Bolger, A. M., Lohse, M., Usadel, B. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics. 30 (15), 2114-2120 (2014).
- Li, H., Durbin, R. Fast and accurate short read alignment with Burrows-Wheeler transform. Bioinformatics. 25 (14), 1754-1760 (2009).
- Koboldt, D. C., Larson, D. E., Wilson, R. K. Using VarScan 2 for Germline Variant Calling and Somatic Mutation Detection. Curr Protoc Bioinformatics. 44, (2013).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Aloia, A., et al. The sialyl-glycolipid stage-specific embryonic antigen 4 marks a subpopulation of chemotherapy-resistant breast cancer cells with mesenchymal features. Breast Cancer Res. 17 (1), 146(2015).
重印与许可
