确定能够从临床前测试顺利过渡到人体试验的新药物靶点是当前科学研究的重点。为此,本文介绍了一种功能基因组学方法,用于研究基因耗竭对癌细胞系球状体的影响,该模型能更真实地模拟人类癌症 体内.
本文内容
摘要
摘要
癌症中功能性驱动事件的鉴定对于深入理解癌症生物学至关重要,并且是发现下一代新型药物靶点不可或缺的环节。显然,需要构建更为复杂的癌症模型,以全面认识驱动肿瘤发生发展的各种影响因素。 体内 并提高从临床前模型过渡到临床试验的新型疗法的疗效。
本文介绍了一种用于生成均一且可重复的肿瘤球体的方法,该球体可用于siRNA功能筛选。这些肿瘤球体表现出许多在传统二维培养中不存在的、类似于实体瘤的特征。我们证明了多种常用的乳腺癌细胞系均适用于本实验方案。此外,我们利用乳腺癌细胞系BT474提供了原理验证数据,证实当以肿瘤球体形式生长时,这些细胞依赖于表皮生长因子受体HER2的扩增以及磷脂酰肌醇-4,5-二磷酸3-激酶(PIK3CA)的突变。最后,我们能够通过免疫组织化学进一步研究并确认这些依赖性在空间分布上的影响。
引言
实体瘤表现出显著的组织学、遗传学及肿瘤微环境内的异质性,这给临床医生成功治疗患者带来了重大挑战。目前用于发现新型靶向治疗策略的大多数模型并未纳入这些特征中的许多方面。事实上,近十年来临床所采用的靶向治疗药物,主要是通过依赖二维(2D)培养条件下生长的肿瘤细胞系的筛选方法开发而来。尽管这种方法已取得若干成功,例如受体酪氨酸激酶抑制剂的开发,但日益明显的是,需要更为复杂的癌症模型,才能全面理解驱动肿瘤发生的关键影响因素 体内 并增加从临床前模型过渡到临床试验的新疗法数量。此外,目前普遍认识到,二维培养系统无法真实反映 体内 行为 1,2例如,在血管化程度较差的肿瘤中,由于微环境对氧气和营养物质的需求超过供应能力,会形成供氧供营养不均的区域。通过免疫组织化学染色检测肿瘤组织中公认的缺氧标志物(如碳酸酐酶IX(CAIX))可发现肿瘤内低氧(缺氧)的存在,这与乳腺癌患者较差的临床预后相关。 3,4 因此,将缺氧等特征纳入筛选模型,可能有助于提高我们发现更有效新药物靶点的能力 体内事实上,成功靶向含有缺氧区域的侵袭性肿瘤是临床治疗的当务之急 5.
对传统二维siRNA筛选方法的改进,旨在更准确地模拟肿瘤微环境中癌细胞所面临的条件,已促使多个对肿瘤生长至关重要的基因被识别出来 体内这些包括在低血清条件下进行的功能基因组筛选 6缺氧条件 7 以及联合使用 8例如,在低血清条件下培养时,沉默6-磷酸果糖-2-激酶/果糖-2,6-二磷酸酶4(PFKFB4)——一种调控碳源进入糖酵解途径的蛋白——仅在源自转移性前列腺癌的细胞系中诱导凋亡。在相同条件下,沉默正常前列腺细胞系中的PFKFB4无此效应,而耗竭PFKFB4可完全抑制前列腺癌细胞系异种移植瘤的生长。 6.
在一组扩展的乳腺癌细胞系中,单羧酸转运蛋白4(MCT4)的沉默在低氧条件下优先导致细胞系生长受到抑制。该脆弱性已得到验证 体内 在乳腺癌细胞系原位异种移植模型中。或许最引人注目的是,沉默乙酰辅酶A合成酶2(ACSS2)——一种负责将乙酸转化为乙酰辅酶A的酶——在营养胁迫条件(低氧和低血清)下可减少癌细胞数量,但在正常培养条件下几乎无影响或无显著影响 8乙酰辅酶A合成酶2(ACSS2)的敲除影响了乳腺癌和前列腺癌异种移植瘤的生长,表明肿瘤微环境中的营养梯度并非孤立存在,位于这些区域的细胞对肿瘤进展至关重要 8此外,ACSS2 也被发现对胶质母细胞瘤和肝细胞癌具有重要意义 9,10,表明肿瘤中ACSS2活性的增加可能是一种支持其在不利条件下生长的基本机制。
综上所述,这些研究证明了重现所遇到的条件能够 体内 进行siRNA筛选可鉴定对癌症存活至关重要的基因。这些研究中靶基因的耗竭不仅影响营养胁迫条件下二维癌细胞的生长,还抑制了癌细胞系球体的生长,这与在肿瘤异种移植模型中观察到的现象一致。 6,8因此,癌细胞系球体包含了肿瘤微环境中存在的多种条件,这些条件使得细胞对ACSS2沉默表现出敏感性。实际上,球体中存在营养梯度(血清和氧气)、pH变化、三维(3D)细胞间接触,同时还伴有增殖速度的改变,表现为细胞周期阻滞和凋亡。这一点在癌细胞球体中坏死区域的存在上得到印证,而这一特征在传统的二维(2D)培养中并不存在。
肿瘤细胞球体已被用作更具生物学相关性的模型来筛选小分子抑制剂,但这仅允许验证化合物的有效性,或重新利用原本为其他疾病设计的化合物11。目前的球体筛选方法尚无法以高通量、高内涵的方式分析特定基因的缺失效应。在此,我们首次描述了一种功能基因组学分析流程,利用小干扰RNA(siRNA)技术在肿瘤细胞系球体中揭示特定基因依赖性。我们设计了一个定制文库,其中包含靶向人类乳腺癌中最常突变的200个基因的siRNA,并评估了基因缺失对BT474乳腺癌球体大小和代谢活性的影响。我们能够在三维培养体系中稳定且可重复地检测到ERBB2和PIK3CA沉默所产生的影响。此外,我们还可通过免疫组织化学方法评估基因缺失对BT474球体空间结构的影响。
方案
1. 96孔siRNA板的制备
注意:96孔板的外周孔比其他孔更容易发生蒸发,因此每个96孔板的siRNA数量应限制在60个以内。建议在外周孔中加入普通培养基或PBS以减少蒸发。此外,建议对筛选出的阳性结果进行验证实验,以减轻孔板偏差的影响。
- 按照制造商的建议,将siRNA用低血清培养基稀释至250 - 500 ng/μL,并将10 μL分装至超低吸附培养板的相应孔中。所有筛选实验均需设置三个重复。
注意:在实验设计中应包含适当的非靶向(阴性)对照和致死性(阳性)对照(如UBB和PLK1 siRNA),以评估转染效率。使用低吸附培养板对siRNA实验至关重要,因为细胞将直接加入转染混合物中。我们不能排除某些厂家的超低吸附培养板可能对球状体生长产生细微影响,因此建议最终用户对所用培养板进行测试验证。 - 用粘性密封膜封板,并于-20 °C保存。
2. 细胞系的反向转染
- 在筛选当天,将培养板于室温下解冻,并使用台式离心机以 1,000 × g 离心 5 分钟。使用多通道移液器向每孔加入 10 μL 含优化转染试剂的低血清培养基。静置培养板 15 分钟,使含 siRNA 的转染复合物形成。
注意:本研究采用乳腺癌细胞系 BT474 进行功能基因组筛选(该细胞系培养于含 10% 胎牛血清(FBS)和抗生素的高糖 DMEM(Dulbecco 改良 Eagle 培养基)中)。 - 用胰蛋白酶(0.05% 胰蛋白酶和 0.53 mM EDTA)消化待筛选细胞,直至细胞从培养瓶脱落,随后加入适量对应细胞系的完全培养基中和反应,并使用台式离心机以 1,000 × g 离心 5 分钟以去除胰蛋白酶。用适量培养基重悬细胞,并使用细胞计数仪准确测定细胞数量。
注意:通常每孔接种 5,000 个细胞即可满足大多数测试细胞系的球体形成需求。准确计数单细胞悬液对于实现球体大小的精确比较至关重要。 - 将细胞用冷培养基(4 °C)稀释至每 180 μL 含 5,000 个细胞。
注意:添加重建的基底膜基质成分会降低转染效率,因此不建议使用。在正式筛选前,应针对细胞系进行优化,以确认其成球能力和基因敲低效率。 - 将细胞悬液转移至储液槽中,吹打混匀后,向每孔已预先加入 siRNA 的 96 孔超低吸附培养板(步骤 2.1)中加入 180 µL 细胞悬液。
- 将培养板置于预冷至 4 °C 的离心机中,以 1,000 × g 离心 10 分钟,随后转移至 37 °C 细胞培养箱中继续培养。
- 注意:细胞将呈马赛克状分布于孔底。在接下来的 12 至 24 小时内,细胞将逐渐聚集并形成单个球体。
- 24 小时后,观察细胞是否在孔中央形成单一球体,并向每孔加入 100 µL 完全培养基以促进生长。
- 三天后更换培养基。轻柔地从每孔中吸除 100 µL 原培养基,再向每孔加入 100 µL 新鲜培养基。
- 第 7 天时,使用可定量监测球体随时间生长情况的酶标仪对球体大小进行自动化定量分析(见第 3 节)。
- 随后,使用化学发光细胞活力染料测定细胞活力(见第 4 节)。
3. 自动化图像采集
- 在第7天使用台式微孔板成像细胞仪对培养板进行扫描。
- 打开软件,选择“96孔板”,选择合适的板类型,并输入实验名称。注:可在软件中添加其他相关信息。
- 选择“Tumorsphere”应用。调整焦距,使类球体清晰且对比度最佳。
注:由于类球体大小可能存在显著差异,建议使用“基于图像的对焦”。 - 选择需要扫描的孔位,然后点击“开始扫描”。
- 使用板扫描软件,确保目标掩膜(object mask)准确反映类球体的大小。根据所测试的每种细胞系,调整集落直径、边界扩张、最小厚度和精度设置11,12。
注:软件算法将据此计算类球体面积。例如,为准确计算培养七天的BT474类球体面积,应将精度设为“高”,并将最小集落直径设为200 µM,以生成能够代表类球体实际面积的合适掩膜。
注:随后可通过导出功能将这些数据以带注释的数据文件形式从仪器导出。数据经平板中位数归一化处理后合并,并采用z分数或严格标准化均值差(SSMD)进行分析,以鉴定对类球体面积具有统计学显著影响的siRNA。
4. 确定细胞活力
- 在计算完类球体面积后,使用化学发光细胞活力染料测定其活力。按照制造商说明书配制试剂。
- 小心从每个孔中移除 100 µL 培养基,并加入 100 µL 活力染料。将培养板在 37°C 下孵育 15 分钟,然后使用化学发光酶标仪进行检测。
注意:这些数据可通过仪器的导出功能,以带注释的数据文件形式导出。数据经过平板中位数归一化处理后合并,并采用 z 分数或严格标准化均值差(SSMD)进行分析,以鉴定对类球体活力具有统计学显著影响的 siRNA。
结果
在超低吸附96孔板中进行的球体实验可对潜在致癌性进行高通量表型评估,其培养环境更接近体内肿瘤的生理条件。in vivo。事实上,癌细胞系MCF10DCIS.com和BT474能够形成紧密的球体结构(图1A),对球体切片进行免疫组织化学分析显示细胞形态和细胞核形态存在明显的空间变化。随着时间推移,部分球体(如BT474球体)会形成坏死区域,这是侵袭性实体瘤的常见特征(图1B)。某些球体(如MDA-MB-231细胞系)虽不形成坏死核心,但其增殖标志物Ki67的表达呈现显著差异,且与凋亡标志物cleaved caspase-3的表达呈负相关(图1C)。为验证多个细胞系是否均适用于siRNA介导的基因沉默,对BT474、MCF10DCIS.com、MDA-MB-231和JIMT1细胞进行了为期七天的反向转染实验。结果显示,转染试剂(模拟转染)或对照siRNA的转染对球体活力无影响,而沉默必需基因泛素B(UBB)则显著降低了所有测试细胞系的球体活力(图1D)。
我们设计了一个涵盖未筛选的ER+、HER2+及三阴性乳腺癌中最常突变基因的人源siRNA文库。该文库包括功能已知的基因,如MYC、PIK3CA和TP53,以及在致癌过程中作用尚未明确的基因。筛选文库中还包含多个非靶向对照siRNA(对照#1、对照#2)以及靶向必需基因的siRNA,如PLK1和UBB,后者作为杀伤对照(表1)。我们选择使用乳腺癌细胞系BT474,因为它们无需添加重建基底膜即可容易地形成球状体,是已被广泛使用的标准细胞系,且具有明确的基因组结构。例如,BT474细胞表达雌激素受体(ER+),过表达人表皮生长因子受体2(HER2+),并携带TP53(E285K)和PIK3CA(K111N)的突变13。
采用上述方案,我们在siRNA反向转染七天后,监测了基因敲低对球状体大小和活力的影响(图1E)。有趣的是,大多数基因对球状体面积或活力均未产生显著影响(图2A)。FOXO3、PIK3CA、ERBB2和SF3B1的沉默导致球状体尺寸出现最显著且可重复的减小。在ERBB2和SF3B1沉默后,球状体活力也观察到类似的下降。令人鼓舞的是,我们通过明场显微镜确认了PIK3CA、ERBB2和SF3B1沉默对球状体大小的影响(图2B)。我们此前已鉴定SF3B1为多种细胞系模型中的必需基因,因此siSF3B1除UBB14外,可作为良好的杀伤对照。值得注意的是,在全部200个基因中,仅有E-Cadherin的沉默导致球状体活力显著增加(图2A)。对球状体形态的进一步分析显示,E-Cadherin沉默导致球状体结构完全崩解,活细胞沉积于低吸附孔板底部(图2B)。手动重新检查球状体体积筛选数据发现,该现象此前已被观察到,但由于其超出设定的尺寸限制,因而在面积定量分析中被排除。如前所述,BT474细胞过表达受体酪氨酸激酶HER2,并携带PIK3CA(K111N)的致癌突变。我们证实,ERBB2和PIK3CA的沉默导致球状体活力降低,而转染非靶向对照则无此效应(图2C)。
接下来,我们研究了siRNA敲低对球状体组织学的影响。BT474球状体通过反向转染方式分别转染非靶向对照siRNA以及靶向PIK3CA、ERBB2和UBB的siRNA。与对照siRNA相比,ERBB2和UBB的沉默导致促增殖标志物Ki67减少(图2D)。仅在UBB沉默后观察到促凋亡标志物cleaved caspase-3的激活,表明HER2和PIK3CA的耗竭并未引发凋亡,其效应为细胞静止性而非细胞毒性。事实上,与对照转染的球状体相比,HER2和PIK3CA的沉默确实导致细胞周期阻滞蛋白p27的蛋白表达水平升高。
综上所述,这些结果表明,当 BT474 细胞以三维球状体形式培养时,其生长受到致癌性 HER2 和 PIK3CA 信号通路的驱动。更重要的是,这些结果证明,可以在癌细胞系的球状体模型中稳健且可重复地设计和实施包含数百个基因的定制 siRNA 筛选文库。
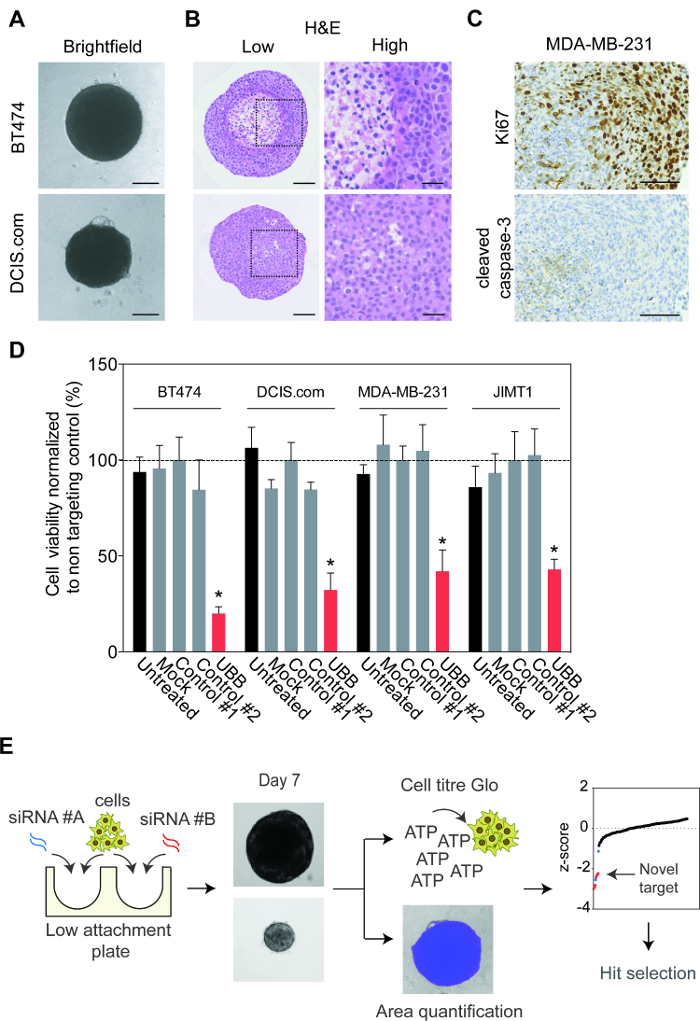
图1: 适用于三维生长的细胞系优化。 A. 将乳腺癌细胞系MCF10DCIS.com和BT474在低吸附培养板中培养7天,使用倒置显微镜拍摄代表性明场图像。比例尺 = 100 µm。 B. 将MCF10DCIS.com和BT474细胞球培养28天,每3至4天补充100 μL新鲜培养基。细胞球用3.8%甲醛固定,包埋、切片并进行苏木精-伊红(H&E)染色。图中显示了低倍和高倍镜下的代表性图像。比例尺分别为100 µm和33 µm。 C. MDA-MB-231细胞球培养21天,每3至4天补充100 μL新鲜培养基。细胞球用3.8%甲醛固定,包埋、切片,并用Ki67和cleaved caspase-3进行染色。图中显示代表性图像。比例尺 = 100 µm。 D. 将BT474、MCF10DCIS.com、MDA-MB-231和JIMT1细胞系用空载(仅转染试剂)和对照siRNA以及UBB进行反向转染,随后在超低吸附培养板中离心形成细胞球。在第1天和第4天各添加100 µl新鲜培养基。培养7天后定量检测细胞存活率。数据表示两组独立生物学重复实验(每组设三个技术重复)的均值±标准差,并以对照组#1为基准进行归一化处理。统计学显著性采用非配对Student t检验计算(p< 0.05)。 E. 总结用于在癌细胞系细胞球中功能探究基因依赖性的反向转染实验流程图。 请点击此处查看该图的放大版本。
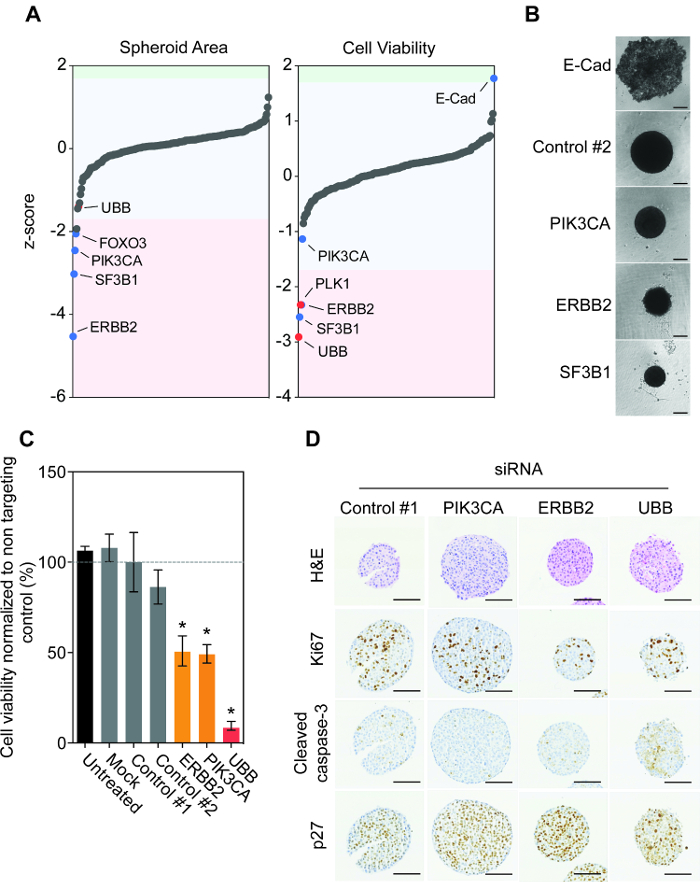
图2: BT474类球体的功能基因组学研究揭示致癌依赖性。A. BT474细胞使用200基因人源siGENOME siRNA文库进行反向转染,每组实验设三个重复。观察类球体大小和活力。原始数据经平板中位数归一化后计算z分数,以识别显著偏离的异常值(大于平板中位数标准差的1.7倍)15。注意异常基因ERBB2、SF3B1、PLK1、UBB和E-cad。显著增加或减少类球体面积和活力的siRNA分别以蓝色和红色阴影标出,其中红色表示对照siRNA。 B. 细胞经非靶向对照、E-钙黏蛋白(E-Cad)、PIK3CA、ERBB2或UBB siRNA反向转染后,在超低吸附培养板中离心形成类球体。7天后,使用倒置显微镜拍摄明场下代表性类球体图像。比例尺 = 100 µm。 C. 细胞经非靶向对照、PIK3CA、ERBB2或UBB siRNA反向转染后,在超低吸附培养板中离心形成类球体。7天后定量检测细胞活力。数据表示两次独立生物学重复实验(每组三个技术重复)的均值 ± 标准差,并归一化至对照#1。统计学显著性采用非配对Student t检验分析(p < 0.05)。 D. 培养7天后,类球体经固定、包埋、切片,并进行H&E、Ki67、Cleaved Caspase-3和p27染色。展示代表性图像。比例尺 = 100 µm。注意siControl类球体的H&E染色图像看起来较小,这是由于制备过程中的处理假象以及所选用于染色的单个完整类球体所致。然而,这并不影响通过扫描图像和细胞活力结果所观察到的变化。 请点击此处查看该图的放大版本。
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| 非靶向 1 | TP53 | DST | KMT2C | 未处理 1 | FCGBP | ARID1B | FBXM7 | TTC40 | 非靶向 2 | ||
| GATA3 | TTN | MUC12 | MUC4 | AHNAK | HUWEI1 | DNAH11 | ITPR2 | ABCA13 | CREBBP | ||
| MAP2K4 | PIK3CA | F5 | APOB | ANKRD30A | MUC17 | DNAH17 | LAMA2 | ACE | CSMD2 | ||
| STARD9 | USH2A | FAT3 | LPR2 | CSMD3 | MYO18B | DNAH5 | MDN1 | ARHGAP5 | DNAH9 | ||
| CXCR3 | MUC16 | RB1 | PKHD1L1 | DNAH2 | SYNE2 | DYNC1H1 | PCLO | CACNA1B | ERBB2 | ||
| PLK1 | SYNE1 | LYST | PTEN | SPTA1 | 未处理 2 | VHL | RYR1 | COL6A3 | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| 非靶向 1 | ENAM | RYR2 | BRCA2 | 未处理 1 | FMN2 | HECW1 | LAMB4 | SI | 非靶向 2 | ||
| FHOD3 | MACF1 | RYR3 | C2ORF16 | DMD | FRG1 | HERC2 | MYH11 | STAB1 | ZDBF2 | ||
| GOLGA6L2 | NEB | SMG1 | CACNA1E | DNA14 | GCC2 | HIVEP2 | NIPBL | TANC1 | ZNF536 | ||
| HMCN1 | NF1 | UBR5 | CACNA1F | DYNC2H1 | GON4L | HYDIN | PKD1L1 | TF | ANK3 | ||
| HRNR | OBSCN | USP34 | CYMA5 | FAM208B | GPR112 | ITSN2 | RNF213 | TPR | ASPM | ||
| PLK1 | PCDH15 | XIRP2 | COL7A1 | FLG2 | 未处理 2 | VHL | SAGE1 | UNC80 | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| 非靶向 1 | DCHS2 | MUC5B | ZFHX4 | 未处理 1 | MYO9A | SPHKAP | CXORF22 | NCOR1 | VPS13D | ||
| ATR | DMXL2 | MXRA5 | ANK2 | KIAA1210 | PRUNE2 | TCHH | DANH6 | NOTCH2 | ANKRD12 | ||
| BIRC6 | DNAH10 | TENM1 | ATM | LRP1 | SCN10A | VPS13C | DNAH7 | SPEN | C5ORF42 | ||
| CDH1 | DNAH3 | PEG3 | DIDO1 | MAP1A | SCN2A | IPTR3 | ERBB3 | SRRM2 | CCDC88A | ||
| CUBN | NOCK11 | RELN | DNAH8 | MED12 | SHROOM2 | CEP350 | FAT4 | SZT2 | CHD4 | ||
| PLK1 | EYS | SACS | KIAA1109 | MED13 | 未处理 2 | VHL | KMT2A | VPS13A | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| 非靶向 | QSER1 | ARID1A | WDFY3 | 未处理 1 | SDK1 | TEX15 | LAMA1 | 非靶向 2 | |||
| COL14A1 | SHROOM3 | ATRX | EFCAB5 | SF3B1 | CBFB | AHNAK2 | |||||
| CSMD1 | TBX3 | KIAA0947 | FOXA1 | ITPR1 | DDX3X | KIF4A | |||||
| MEFV | UBR4 | MYCBP2 | INPPL1 | FLG | HECTD4 | FAT2 | |||||
| MGAM | VCAN | NBEAL1 | MAP3K1 | AKAP9 | GPR98 | FOXO3 | |||||
| PLK1 | ZNF462 | SETX | NRP1 | HERC1 | 未处理 2 | VHL | UBB | ||||
表1:孔板布局和人源siRNA文库去卷积。 该表格包含筛选实验中所用低吸附培养板的siRNA池内容及布局信息。
讨论
用于评估旨在选择性杀伤癌细胞的已知及新型化合物疗效时,三维癌症模型的应用日益广泛。癌细胞球状体是一种在结构和微环境条件上更接近实体肿瘤的模型体系 体内 因此,在3D模型中效力增强的化合物更有可能产生作用 体内 然而,这些方法无法识别那些尚未成为药物设计对象但可能在癌症治疗中具有显著疗效的潜在新靶点。
我们开发了一种siRNA功能基因组学方法,可在癌细胞系球状体中实现长达七天的稳定基因沉默。在进行siRNA筛选之前,该实验方案中有多个关键步骤需要优化。大规模生成可重复且具有活性的球状体至关重要。此外,必须严格优化合适的转染条件。我们建议在正式开展筛选前,尝试多种不同的转染试剂,并设置适当的非靶向对照和致死性对照。我们证实,几种常用的乳腺癌细胞系,即BT474、MCF10DCIS.com、MDA-MB-231和JIMT1,均适用于siRNA转染。此外,我们提供了原理验证数据,对BT474球状体中乳腺癌最常发生突变的200个基因进行了筛选,结果确认了这些细胞对HER2基因扩增以及PIK3CA癌基因突变的依赖性。有趣的是,沉默转录因子FOXO3可导致球状体体积减小,但对细胞活力无显著影响。已知FOXO3可调控细胞对缺氧的应答,改变癌细胞的代谢能力,使其更易适应环境16。这一功能可能干扰基于ATP丰度检测的细胞活力读数,因为ATP是细胞代谢的主要产物之一。
支持类球体尺寸减小的观察结果,已有研究表明,在 HeLa 异种移植瘤中沉默 FOXO3 会抑制肿瘤生长并诱导细胞凋亡17。需要注意的是,某些基因可能影响癌细胞维持其三维结构的能力,从而导致假阳性结果。例如,E-Cadherin 的敲低导致 BT474 类球体结构解体,此前已有研究使用靶向 E-Cadherin 的抗体报道过这一现象18。与任何筛选平台一样,潜在靶点应重新进行筛选,以评估所观察效应的可重复性。该技术存在一定的局限性,主要是 siRNA 介导的基因敲低具有瞬时性,使用 siRNA 无法实现超过七天的持续沉默。
这种方法的优势在于,它可以与多种其他生物染料联用,而不仅限于评估类球体活性的染料,例如,可提供类球体缺氧的空间信息,或监测发生凋亡的细胞。此外,由于酶标仪扫描速度相对较快且具有非侵入性,因此可以对siRNA对类球体大小的影响进行时间序列监测,而不仅限于实验终点的单次检测。事实上,我们目前正通过筛选流程探索其中多个方向。另一种利用三维培养体系识别新依赖关系的替代方法是使用化学文库,以抑制广泛靶点或特定蛋白家族。例如,Bitler et al. 采用这种靶向策略,发现了ARID1A状态与EZH2抑制剂在卵巢透明细胞癌中的合成致死相互作用19。CRISPR-Cas9基因编辑技术的发现也推动了类器官培养体系及体内遗传筛选的发展。然而,该方法依赖于具备适当的动物实验设施,且可能因成本过高而受限20。
总之,我们认为已阐述了一种能够更准确模拟肿瘤微环境中氧和营养物质梯度特征的实验方案 体内,从而实现对新型癌症靶点的鉴定或对已有靶点的可靠验证。此外,本方案可适用于任何能够形成球状体的细胞系,因此可在癌症研究领域中常规用于高通量siRNA筛选。
披露
开放获取费用由 Nexcelom Bioscience, LLC 支持。
致谢
作者感谢弗雷德里克·瓦尔伯格(弗雷德里克·瓦尔伯格,ICR 流式细胞术与成像中心)在显微镜技术方面的协助。本工作由“乳腺癌现在”基金会资助。RN 获得了“乳腺癌现在”职业发展奖学金(2011MaySF01)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 催眠曲 | Oz Biosciences | LL70500 | 基于脂质的转染试剂 |
| Viromer | Lipocalyx | VB-01LB-01 | 类病毒聚合物转染试剂 |
| 超低吸附培养板 | Corning | CLS7007 | 96孔板 |
| 铝箔板封膜 | ThermoFisher | AB-0626 | |
| 发光细胞活力染料 | Promega | G7570 | CellTitre-Glo |
| 移液器吸头(200 μL) | Starlab | S1111-0806 | |
| 移液器吸头(10 μL) | Starlab | S1111-3800 | |
| 移液器吸头(1,000 μL) | Starlab | S1122-1830 | |
| 刻度移液管(5 mL) | Sarstedt | 86.1253.025 | |
| 刻度移液管(10 mL) | Sarstedt | 86.1254.025 | |
| 刻度移液管(25 mL) | Sarstedt | 86.1685.020 | |
| RPMI 培养基 | GIBCO | 11875-093 | |
| DMEM 培养基 | GIBCO | 11965-084 | |
| Opti-MEM | GIBCO | 31985070 | |
| 胎牛血清 | GIBCO | 16140063 | |
| siRNA | Dharmacon | Cherry picked library | |
| Countess 细胞计数仪 | ThermoFisher Scientific | AMQAX1000 | |
| 细胞计数专用载玻片 | ThermoFisher Scientific | C10312 | |
| Celigo S | Nexcelom | contact company | |
| Victor X5 | Perkin Elmer | contact company | |
| 台式离心机 | Various | ||
| Axiovert 倒置明场显微镜 | Zeiss | contact company | |
| 组织培养用 CO2 培养箱 | Various | ||
| 多通道移液器 | Various |
参考文献
- Seton-Rogers, S. E., et al. Cooperation of the ErbB2 receptor and transforming growth factor beta in induction of migration and invasion in mammary epithelial cells. Proc Natl Acad Sci U S A. 101 (5), 1257-1262 (2004).
- Debnath, J., Muthuswamy, S. K., Brugge, J. S. Morphogenesis and oncogenesis of MCF-10A mammary epithelial acini grown in three-dimensional basement membrane cultures. Methods. 30 (3), 256-268 (2003).
- Chia, S. K., et al. Prognostic significance of a novel hypoxia-regulated marker, carbonic anhydrase IX, in invasive breast carcinoma. J Clin Oncol. 19 (16), 3660-3668 (2001).
- Trastour, C., et al. HIF-1alpha and CA IX staining in invasive breast carcinomas: prognosis and treatment outcome. Int J Cancer. 120 (7), 1451-1458 (2007).
- Wilson, W. R., Hay, M. P. Targeting hypoxia in cancer therapy. Nat Rev Cancer. 11 (6), 393-410 (2011).
- Ros, S., et al. Functional metabolic screen identifies 6-phosphofructo-2-kinase/fructose-2,6-biphosphatase 4 as an important regulator of prostate cancer cell survival. Cancer Discov. 2 (4), 328-343 (2012).
- Baenke, F., et al. Functional screening identifies MCT4 as a key regulator of breast cancer cell metabolism and survival. J Pathol. 237 (2), 152-165 (2015).
- Schug, Z. T., et al. Acetyl-CoA synthetase 2 promotes acetate utilization and maintains cancer cell growth under metabolic stress. Cancer Cell. 27 (1), 57-71 (2015).
- Mashimo, T., et al. Acetate is a bioenergetic substrate for human glioblastoma and brain metastases. Cell. 159 (7), 1603-1614 (2014).
- Comerford, S. A., et al. Acetate dependence of tumors. Cell. 159 (7), 1591-1602 (2014).
- Vinci, M., Box, C., Eccles, S. A. Three-dimensional (3D) tumor spheroid invasion assay. J Vis Exp. (99), e52686(2015).
- Vinci, M., Box, C., Zimmermann, M., Eccles, S. A. Tumor spheroid-based migration assays for evaluation of therapeutic agents. Methods Mol Biol. 986, 253-266 (2013).
- Barretina, J., et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 483 (7391), 603-607 (2012).
- Maguire, S. L., et al. SF3B1 mutations constitute a novel therapeutic target in breast cancer. J Pathol. 235 (4), 571-580 (2015).
- Brough, R., et al. Functional viability profiles of breast cancer. Cancer Discov. 1 (3), 260-273 (2011).
- Ferber, E. C., et al. FOXO3a regulates reactive oxygen metabolism by inhibiting mitochondrial gene expression. Cell Death Differ. 19 (6), 968-979 (2012).
- Jensen, K. S., et al. FoxO3A promotes metabolic adaptation to hypoxia by antagonizing Myc function. EMBO J. 30 (22), 4554-4570 (2011).
- Ivascu, A., Kubbies, M. Diversity of cell-mediated adhesions in breast cancer spheroids. Int J Oncol. 31 (6), 1403-1413 (2007).
- Bitler, B. G., et al. Synthetic lethality by targeting EZH2 methyltransferase activity in ARID1A-mutated cancers. Nat Med. 21 (3), 231-238 (2015).
- Dow, L. E., et al. Inducible in vivo genome editing with CRISPR-Cas9. Nat Biotechnol. 33 (4), 390-394 (2015).
重印与许可
