我们介绍一种分离和培养小鼠胚胎第15天(E15)跖骨的实验方案。该方法具有高度的生理相关性 离体 软骨内成骨模型提供了更接近的条件 体内 比单层或三维培养中的细胞更接近真实生理环境,是研究骨骼生长与发育的关键工具。
本文内容
摘要
摘要
在健康个体中,软骨内成骨这一基本过程受到严密调控,以防止发育异常和/或纵向骨生长障碍。因此,深入理解这些疾病背后所涉及的分子机制至关重要,这将有助于推动人类和动物患者的诊疗进展。小鼠跖骨器官外植体培养是一种高度生理性的ex vivo模型,可用于研究软骨内成骨和骨生长,因为培养中骨骼的生长速率与in vivo观察到的情况相似。独特之处在于,跖骨器官培养能够观察软骨细胞在软骨生成不同阶段的表现,同时维持细胞间以及细胞与基质间的相互作用,因此相较于单层细胞或三维培养,其提供的条件更接近in vivo环境。本实验方案详细描述了从小鼠E15胚胎后肢中精细分离跖骨的过程,以及后续可用于研究软骨内成骨和纵向骨生长的各项分析方法。
引言
骨骼是一种高度复杂、动态且多功能的器官,其功能涵盖运动、离子稳态等多个方面。骨骼由骨和软骨组成,包含功能上 distinct 的细胞群体,这些细胞共同维持骨骼的结构、生化及机械完整性1。骨骼的主要功能之一是在发育和生长过程中发挥关键作用。这些过程需要多种细胞群体的协调配合,并通过严格的内分泌和遗传调控来实现。
除扁骨外 例如 肩胛骨、颅骨和胸骨,哺乳动物的骨骼通过一种称为软骨内成骨的过程形成。这一过程在分子和空间上均受到调控,起始于主要来源于中胚层的间充质细胞的凝聚 2在转录因子SOX9的作用下,聚集区内部的细胞分化为软骨细胞,表达并分泌软骨特异性的细胞外基质(ECM)成分,如II型胶原和聚集蛋白聚糖。位于聚集区边缘的细胞则表达I型胶原,形成软骨膜,界定出未来骨骼的轮廓 3随后,软骨膜的骨祖细胞在转录因子 Runx2 和 osterix 表达的调控下分化为成骨细胞。 4这导致成骨细胞占主导地位,该层由此改称为骨膜,进而在骨干中段形成矿化的骨性 collar。骨膜的血管侵入及软骨支架的被侵袭,带来了由造血系统衍生的破骨细胞,这些破骨细胞吸收软骨细胞残余物以及大部分软骨基质。 5形成的空腔由骨祖细胞填充,这些细胞发育成初级骨化中心,逐渐占据骨干的核心部分,并与骨膜融合。其他细胞则分化形成骨髓。在出生前后,血管和骨祖细胞侵入正在发育的骨干两端(骨骺)富含软骨的基质,形成次级骨化中心。位于长骨两端骨骺与骨干之间的是一层软骨——骺生长板——负责调控所有长骨的线性生长。 6.
生长板内的软骨细胞最初进行增殖,随后依次经过形态上不同的区域,这一过程由转录因子和生长因子的有序表达所协调。这一系列事件的最终结果是软骨细胞退出细胞周期,并在软骨前体的中心区域发生肥大。肥大的软骨细胞强烈表达X型胶原和基质金属蛋白酶-13(MMP13),其在纵向生长方向上的显著体积增大对哺乳动物骨骼的生长贡献最大7,8。此外,肥大的软骨细胞通过释放基质小泡来矿化其周围的细胞外基质(ECM),基质小泡是一类膜包被的结构,因其含有磷酸酶(组织非特异性碱性磷酸酶(TNAP)和PHOSPHO1)和钙转运蛋白(annexins),专用于生成无定形磷酸钙9-11。这种钙化的软骨随后被来自下方骨髓的血管侵入,导致破骨细胞的募集和基质的吸收。随后成骨细胞迁移并排列在钙化软骨残余物的表面,在其上沉积一层类骨质,该类骨质迅速矿化。初级骨小梁中的编织骨随后被重塑为次级骨小梁中的板层骨12。骨骺闭合导致软骨内成骨过程终止13。
软骨内成骨受到多种内分泌和旁分泌激素及生长因子的严格调控,以防止发育异常和/或长骨纵向生长紊乱14。因此,为了推动临床进步并造福人类,深入理解这些过程背后的分子与细胞机制至关重要。以往关于不同年龄、部位和物种生长板之间异同的研究,极大地增进了我们对生长板动态生理机制的认识15,16。然而,孤立软骨细胞的研究较为困难,因为将软骨细胞从其原有环境中分离可能导致其去分化,并伴随关键标志物(如Col2a1)表达的丧失17。
由荷兰的Elisabeth Burger教授及其同事首创的小鼠跖骨器官外植体培养,是一种高度生理性的ex vivo模型,可用于研究软骨内成骨和骨生长,因为培养中骨骼的生长速率与in vivo观察到的情况相似18。该模型的独特之处在于,跖骨器官培养能够观察软骨细胞在软骨形成不同阶段的表现,并维持细胞间以及细胞与基质间的相互作用,因此相较于单层细胞培养,其提供的条件更接近in vivo状态19-21。此外,该模型允许直接检测线性骨生长,而这是原代软骨细胞培养无法实现的。同时,该模型还可区分系统性因素与局部因素,从而能够特异性地分析局部因素对生长板的影响。
跖骨培养可用于研究多种参数。利用标准的相差显微镜和图像分析软件,可每日测量雏形软骨的总长度及矿化区域的长度。组织学分析, 原位 杂交与免疫组织化学染色可便捷地在跖骨切片上进行,从而实现对细胞和分子实体的空间定位,这是相较于传统细胞培养方法的主要优势。免疫组织化学方法包括对增殖软骨细胞摄取5-溴-2'-脱氧尿苷(BrdU)的检测与定量 22此外,可对跖骨组织进行进一步处理,以用于后续分析,包括mRNA表达(RT-qPCR)、蛋白质及细胞内信号通路分析(Western blotting)或脂质组成(质谱分析)。迄今为止,大多数研究采用培养的胚胎期跖骨,而非出生后动物的跖骨。尽管这两种模型均具有研究价值,但胚胎骨研究具有多项优势:其生长速度更快,且可用于研究矿化过程的启动与进展 23-25.
本方案详细描述了从胚胎第15天(E15)小鼠胚胎后肢中精细分离跖骨的过程。此外,还展示了解剖结构不同的跖骨的生长与矿化情况。
方案
涉及动物受试者的实验程序均依照英国《1986年动物(科学程序)法案》进行,并按照英国内政部发布的《用于科学目的的繁育、供应或使用动物的饲养与护理实践守则》对动物进行维护。
注意:使用野生型 C57Bl/6J 小鼠进行的实验已建立完善,如下所述。也可类似地培养来自不同小鼠品系的胚胎跖骨 体外尽管它们的生长和矿化速率可能与本文所述的不同。
1. 解剖条件与器械准备
- 所有培养基制备、组织解剖和培养操作均应在超净工作台内进行,以确保培养基和胚胎原基的无菌性。
- 使用前,将培养和解剖用培养基置于37 °C、5% CO2 培养箱中平衡至少1小时。
- 通过高压灭菌法对解剖剪、Dumont #5 和 Dumont #4 镊子,以及一对超细Vannas显微剪刀(8 cm直型,3 mm刀片)进行灭菌。灭菌后,使用前将解剖器械浸入70%乙醇中。
2. 解剖和培养基质的制备
- 配制解剖培养基
- 将α-最低必需培养基(不含核苷酸,αMEM)用磷酸盐缓冲液(PBS)稀释(1:13),并以2 mg/mL重悬牛血清白蛋白(BSA)l 在通过0.22 µm、33 mm直径的注射器滤器过滤除菌前。
注意:解剖液可配制后经滤膜除菌,分装保存于 -20 °C,可长期保存。
- 将α-最低必需培养基(不含核苷酸,αMEM)用磷酸盐缓冲液(PBS)稀释(1:13),并以2 mg/mL重悬牛血清白蛋白(BSA)l 在通过0.22 µm、33 mm直径的注射器滤器过滤除菌前。
- 准备培养基
- 在24孔培养板的每孔中加入300 µl培养基培养胚胎跖骨。培养基的配制方法为:向αMEM中添加0.2% w/v BSA、5 µg/ml L-抗坏血酸磷酸盐、1 mM β-甘油磷酸钠(βGP;可选,见结果部分)、0.05 mg/ml庆大霉素和1.25 µg两性霉素B,混匀后经0.22 µm、直径33 mm的一次性注射器滤器过滤除菌。
3. 小鼠胚胎跖骨解剖与培养
- 根据英国政府内政部指南,通过颈椎脱位法处死怀有15天胎龄胚胎的小鼠。
- 将动物仰卧放置,并用70%乙醇喷洒皮肤进行消毒。使用解剖剪在中线处做一个大切口,穿透皮肤和腹膜,以暴露腹腔。
- 在体腔背侧定位动物的两个子宫角。首先用解剖剪小心地沿子宫与子宫系膜连接处进行切割,将每个子宫角从子宫系膜中游离出来,然后在基部切断,将子宫角完全取下。将取出的子宫角放入解剖液中。
- 沿子宫角在各个着床部位之间进行切割,分离每个胚胎,并用镊子将胚胎从各自的胎膜中取出。根据英国政府内政部指南,通过断头法处死胚胎。
- 用70%乙醇喷洒皮肤进行消毒后,使用Vannas显微剪在近端股骨周围进行环切,切除胚胎的后肢,以确保尽可能完整地移除后肢。在进行跖骨解剖前,将后肢置于盛有解剖液的培养皿中。
- 在解剖显微镜下,用#5镊子夹住并拉脱胚胎足部周围的皮肤,同时用#4镊子固定后肢以保持稳定。操作时最好在胫骨水平附近夹住皮肤,并向趾骨方向拉扯。此步骤中无需使用剪刀切割极薄的皮肤。
- 用#4镊子小心夹住胚胎足部的跗骨,用#5镊子在靠近跗骨处夹除第一和第五跖骨,并弃去。
- 保持足部位置不变,使用#5镊子破坏剩余三个趾骨与跖骨之间的结缔组织。将#5镊子尖端插入趾骨与跖骨之间的关节处,将趾骨从跖骨上分离。
- 最后,使用#5镊子破坏跗骨与跖骨之间的结缔组织。再次将#5镊子尖端插入跗骨与跖骨之间的关节间隙,轻柔地将跖骨从跗骨上分离。
- 用#4镊子轻轻夹起已分离的跖骨,放入新鲜的解剖液中。
注意:仔细解剖应可从每个胚胎获得6根跖骨。 - 当所有所需跖骨解剖完成后,将跖骨逐一小心放入预热的24孔板中,每孔加入300 µl培养基。将跖骨置于37 °C、5 % CO2培养箱中培养,最长可达14天。
注意:E15阶段的培养物在培养至少第5天前不得更换培养基,因为这会影响其矿化能力26。其具体原因尚不明确,但线性生长和基质矿化可能依赖于跖骨释放的生长因子的刺激作用。
4. 跖骨培养物的分析与操作
- 在解剖当天(第0天),使用配备数码相机和图像分析软件的显微镜进行初始纵向测量。在培养数天后中央矿化区出现时,测量其长度。
- 根据需要定期进行进一步测量(通常每2次)nd 天),直至培养的最后一天,此时根据所需实验结果对跖骨进行相应处理(详见引言部分)。
- 为跖骨器官培养的培养基添加各种外源性因子 例如 生长因子、激素和药理学试剂,自培养第0天起 22,24所有此类研究中均需设置未经处理的对照跖骨。
注意:尽管建议对照骨骼采用同一样本对侧肢体的相应雏形骨骼,但在培养的 E15 2nd, 3rd 和 4th 跖骨(见下文, 图2).
结果
本方法旨在分离胚胎跖骨并进行培养,以观察骨骼的纵向生长及细胞外基质(ECM)的矿化。根据本文所述方案,已成功解剖获得胚胎跖骨,并通过光学显微镜观察确认。如图1所示方法对跖骨进行测量,结果显示其具有纵向长度增长及ECM矿化的能力(图2和图3)。基质矿化最初出现在骨雏形的骨干中段,光学显微镜下易于观察。无需染色即可识别,尽管钙黄绿素的摄取可增强对新生矿化物的可视化效果。
利用胚胎跖骨开展的研究至今 22,27,28 已汇集解剖得到的2nd, 3rd 和 4th (中间三个)跖骨,假设 体外 生长和矿化具有可比性。 体内 小鼠跖骨的发育研究表明,3rd 和 4th 在所有其他跖骨和趾骨之前,已有证据表明趾骨发生了矿化 29. 个体分离并培养的E15 2矿化潜能与生长评估nd, 3rd 和 4th 跖骨在培养7天后,其矿化程度或范围均未显示出显著差异图2)。在培养期间,各组相对于基线的百分比增加无差异。由于未观察到矿化潜能存在差异,故采用合并样本的标准方案nd 3rd 和 4th 跖骨适用于未来的研究。
传统上,研究人员在培养胚胎跗骨时会在培养基中添加βGP,以促进细胞外基质(ECM)的矿化。然而,在细胞培养研究中发现,如果将TNAP酶加入含有βGP的成骨培养基中,即使没有细胞存在,仍会发生异位羟基磷灰石矿物沉积30。为了考察不同矿化底物和激动剂对跗骨矿化能力的影响,我们将E15期跗骨置于含有多种补充物的培养基中进行培养,并每日记录图像和长度测量结果。结果表明,E15期跗骨在无βGP的条件下仍能生长并对其细胞外基质进行矿化。仅在抗坏血酸培养基中培养的E15期跗骨,其长度增长和矿化程度与在βGP存在下培养的跗骨相当(图3)。
我们还证明了慢病毒可用于将外源DNA转染到培养的跖骨中。在此,我们在培养第0天成功地将跖骨进行了转染(即 解剖当天)用 2 x 10⁶ 每跖骨的绿色荧光蛋白(GFP)病毒颗粒数。为促进病毒转导,同时以1:500比例加入多聚素(polybrene)。培养物培养7天,期间不更换培养基,以满足E15跖骨矿化所需条件,随后与4',6-二脒基-2-苯基吲哚(DAPI)染液孵育5分钟,再直接使用共聚焦显微镜观察图4)。我们的概念验证实验已明确显示出有效的转导。然而,为评估转染效率及基因操作的有效性,有必要对跖骨全长各个切面进行系统性观察。
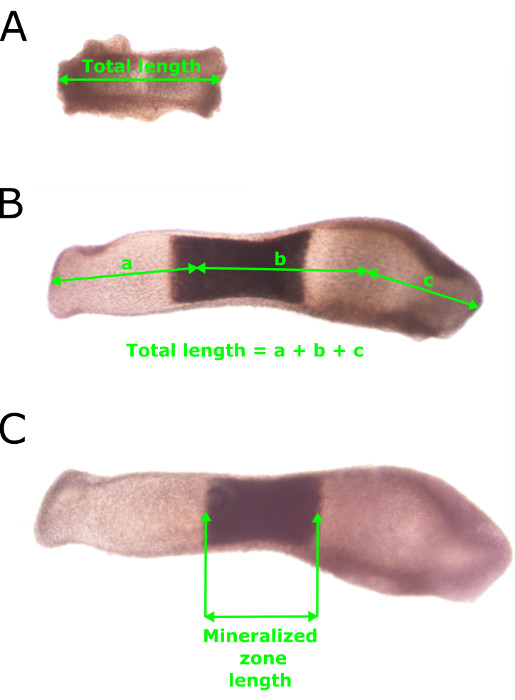
图1: 用于测量胚胎跖骨长度和矿化区的标准方法。 (A)在培养第0天(解剖当天)通过跖骨中心测量E15跖骨的总长度。(B)培养7天后跖骨的总纵向长度测量。注意跖骨的轻微弯曲。(C)培养7天后矿化区长度的测量。 请点击此处查看该图的放大版本。
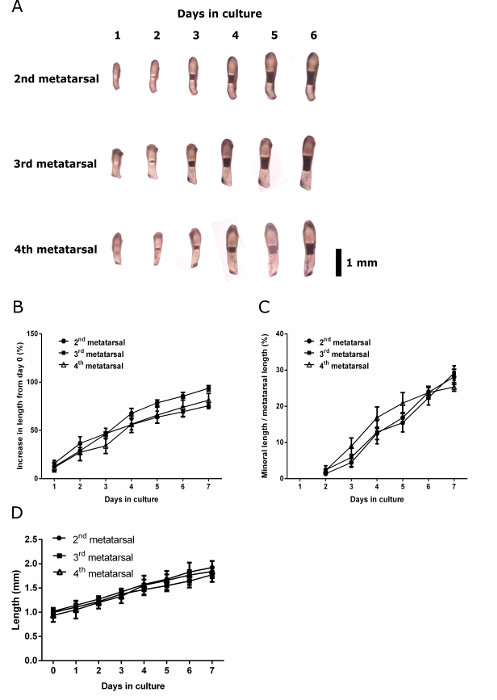
图2: E15期解剖位置不同的跖骨生长与矿化能力。 对E15小鼠后肢的第2、3和4跖骨进行了成像与测量。(A) 培养期间第2、3和4跖骨的连续图像。(B) 培养各时间点相对于第0天的长度增长百分比。(C) 培养期间第2、3和4跖骨的矿化长度,以总跖骨长度的百分比表示。数据以均值 ± 均值标准误(S.E.M)表示,(n = 6)。(D) C57Bl/6J小鼠跖骨在培养各时间点的长度。数据以均值 ± 标准差表示(n = 6)。黑色标尺 = 1 mm。请点击此处查看此图的放大版本。
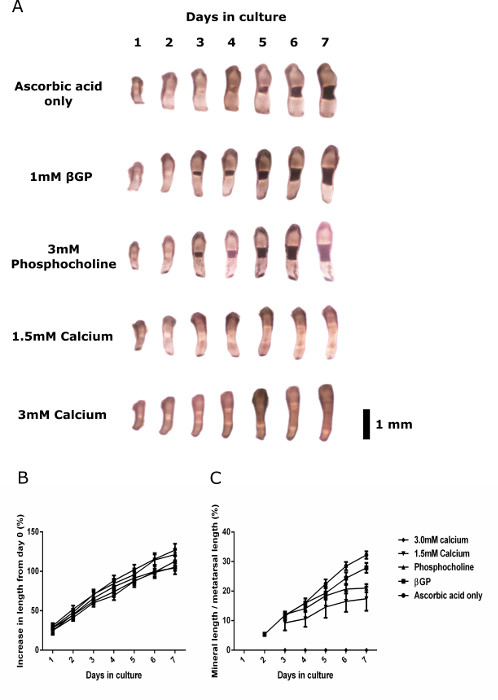
图 3: 在不同成骨培养基中培养的野生型 E15 跖骨的生长与矿化能力。 (A)仅含抗坏血酸、1 mM βGP、3 mM 磷酰胆碱、1.5 mM 氯化钙或 3 mM 氯化钙的培养基中培养的跖骨连续图像。(B)在含有不同添加剂的培养基中培养的跖骨从第 0 天起长度增加的百分比。(C)在不同培养基中培养的跖骨的矿化长度,以总跖骨长度的百分比表示。数据以均值 ± 均值标准误(S.E.M)表示,(n = 6)。黑色标尺 = 1 mm。请点击此处查看该图的放大版本。
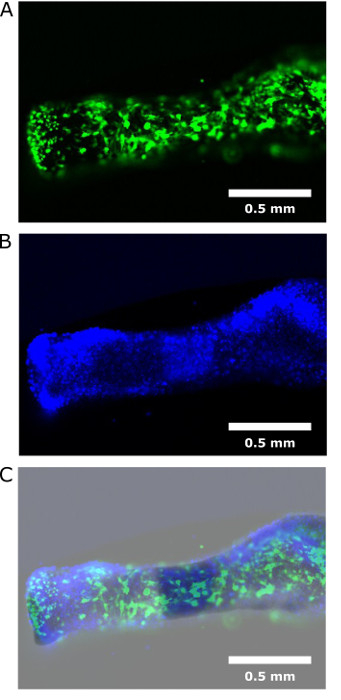
图4: 使用GFP病毒颗粒转染E15跖骨。 (A)为验证概念,对E15跖骨进行GFP病毒颗粒转染。(B)使用DAPI对骨骼染色以显示DNA。(C)双重图像表明GFP病毒已成功转染至整个跖骨组织。白色标尺 = 0.5 mm。 请点击此处查看该图的放大版本。
讨论
小鼠胚胎跖骨的培养为软骨内成骨生长与矿化过程提供了高度生理性的模型。早期研究已证实,E15小鼠跖骨可经历正常的骨骼生长与分化过程。其中的软骨组织(软骨细胞)和骨组织(成骨细胞与破骨细胞)及其相应的胶原基质,与体内所观察到的结构无明显差异。 体内然而,该模型存在一些公认的局限性。破骨细胞分化速度受损,骨生长速度也受到影响(但软骨分化不受影响)。骨生长速度较观察到的正常情况约慢50% 体内 可能与影响局部因子产生的全身性因素缺乏有关(例如,IGF-1,BMPs, 等等。) 31此外,众所周知,骨组织对其力学环境具有敏感性,培养的跖骨也同样如此,能够响应力学负荷的变化。 32,33因此,在如本方案所述的无负荷情况下,矿化和矿物质吸收可能会受到影响。然而,跖骨模型能够直接测量线性骨生长,这是二维和三维方法无法实现的 体外 培养系统。
我们已全面描述了E15小鼠跖骨分离与培养的实验方案,并首次证实了将2个nd, 3rd 和 4th 用于实验的跖骨。
E17/E18 胚胎的跖骨常被用于研究骨骼生长机制,因其具有极强的生长潜力 离体 长时间即 培养超过14天)。它们是研究生长因子在胚胎期长骨生长中作用的成熟模型。此外,出生后跖骨的分离与培养也常用于阐明出生后骨生长的机制,因为已知出生后骨生长与胎儿期骨生长受不同机制调控。 21然而,在培养的出生后跖骨中观察到的骨生长明显少于在胚胎原基中观察到的骨生长。 25,34,限制了它们在长期研究中的应用,同时也突显了在此出生后阶段,系统性因素对骨骼生长更具主导性的影响。事实上,小鼠出生后3天的跖骨通常是可用于获得可测量生长的最晚阶段 34.
本文描述了我们在胚胎发育第15天(E15)分离胚胎跖骨的实验方案。由于E15阶段的跖骨尚未形成羟基磷灰石矿化,因此为研究长骨纵向生长的机制以及骨骼矿化的起始过程提供了无可比拟的模型。终末肥大软骨细胞区的矿化基质为成骨细胞的侵入提供了支架,使其能够沉积骨特异性基质(类骨质),随后该基质发生矿化;因此,这一初始矿化过程对成功且功能正常的骨形成至关重要35。事实上,近年来多项研究已利用E15跖骨证实了其在矿化过程研究中的独特优势28,36,37。此外,研究人员还报道了E15跖骨作为血管生成模型的应用38,进一步凸显了胚胎跖骨在骨生长/矿化以外研究领域中的潜在价值。
我们所描述的方案仅需常规实验室设备,包括超净工作台、用于解剖操作的体视显微镜以及用于培养分离组织原基的CO2培养箱。此外,使用一种成分明确的基础培养基,包含αMEM、BSA、抗生素、抗真菌剂以及L-抗坏血酸(羟脯氨酸和羟赖氨酸合成过程中的辅因子,这两种氨基酸是胶原蛋白生成所必需的39),避免了使用如动物血清等成分未明的添加剂。传统上,研究人员会在培养胚胎跖骨的培养基中添加β-甘油磷酸盐(βGP),但根据我们的实验结果,该培养体系中无需额外添加磷酸盐来源即可实现成功的矿化。这一发现对于我们深入理解细胞外基质(ECM)矿化机制具有重要意义。
既往研究中,曾使用含有Smad2显性负性突变形式的腺病毒对跖骨进行感染,以探讨转化生长因子β在长骨发育调控中的作用40。本文中,我们还展示了将野生型E15跖骨成功转染GFP病毒颗粒的结果,表明慢病毒技术可轻松应用于跖骨培养体系中以调控基因表达。类似地,跖骨器官培养系统是用于比较基因修饰小鼠骨骼生长的优良模型,有助于深入理解特定基因在骨生长过程中的作用。我们之前的研究已利用跖骨器官培养系统,探究了细胞因子信号转导抑制因子-2(SOCS2)在软骨内成骨生长中的功能。通过使用SOCS2基因缺陷小鼠的跖骨,我们发现生长激素能够独立于类胰岛素生长因子(IGF-1)刺激其纵向生长,而野生型跖骨则对生长激素处理无反应34,41。这凸显了跖骨培养体系在研究不同基因和/或外源性因素对软骨内成骨生长影响方面的可操作性与应用价值。
综上所述,我们详细介绍了一种成功分离和培养胚胎跖骨的方法,该方法可通过多种分析手段进行操作和观察。这种ex vivo模型保留了细胞间及细胞与基质间的相互作用,同时包含处于软骨形成不同阶段的软骨细胞,因此相较于单层培养或三维培养的细胞,提供了更为生理性的研究模型。跖骨器官培养因此成为研究软骨内成骨分子机制的独特模型,对于进一步理解骨生理学及病理生理学具有重要意义。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢生物技术和生物科学研究理事会(BBSRC)对DH(项目编号BB/J01446X/1)、CF和VEM(研究所战略项目资助BB/J004316/1)的资助。同时感谢关节炎研究英国基金会对KAS(项目编号20413)的资助。我们感谢Elaine Seawright女士在所详述实验中的协助,Neil Mackenzie博士在慢病毒技术方面的帮助,以及Darren Smith先生和Alex Robertson先生(罗斯林研究所BRF)在动物实验研究中的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 解剖剪 | World Precision Instruments | 14393 | 使用前高压灭菌 |
| Dumont #5 镊子 | World Precision Instruments | 500342 | 使用前高压灭菌 |
| Dumont #4 镊子 | World Precision Instruments | 500339 | 使用前高压灭菌 |
| SuperFine Vannas 剪刀 | World Precision Instruments | 501778 | |
| 无水乙醇 | Fisher Scientific | E/0650DF/17 | 用 dH2O 稀释至 70% v/v |
| α-MEM(不含核苷) | Thermo Fischer Scientific | 22561021 | |
| 牛血清白蛋白 | Sigma Aldrich | A3059 | |
| 注射器滤器(0.22 μm,33 mm 直径) | Merck Millipore | SLGP033RS | |
| 磷酸胆碱氯化钙盐四水合物 | Sigma Aldrich | P0378 | 实验前直接加入培养基中 |
| L-抗坏血酸-2-磷酸 | Sigma Aldrich | A8960 | 配制成 5 mg/mL 储存液,分装后于 -20 °C 保存 |
| 氯化钙二水合物 | Sigma Aldrich | C5080 | 配制成 150 mM 储存液,分装后于 -20 °C 保存 |
| β-甘油磷酸二钠盐水合物 | Sigma Aldrich | G9422 | 配制成 1 mM 储存液,分装后于 -20 °C 保存 |
| 庆大霉素 | Thermo Fischer Scientific | 15710049 | |
| 两性霉素 B | Thermo Fischer Scientific | 15290018 | |
| Nunc 细胞培养处理 24 孔板 | Thermo Fischer Scientific | 142475 | |
| 聚凝胺 | Sigma Aldrich | H9268 | |
| DAPI | Thermo Fischer Scientific | D3571 |
参考文献
- Farquharson, C., Staines, K. The skeleton: no bones about it. J. Endocrinol. 211, 107-108 (2011).
- Berendsen, A. D., Olsen, B. R. Bone development. Bone. 80, 14-18 (2015).
- Kronenberg, H. M. Developmental regulation of the growth plate. Nature. 423, 332-336 (2003).
- Komori, T. Regulation of bone development and extracellular matrix protein genes by RUNX2. Cell Tissue Res. 339, 189-195 (2010).
- de Crombrugghe, B., Lefebvre, W. Regulatory mechanisms in the pathways of cartilage and bone formation. Curr. Opin. Cell Biol. 13, 721-727 (2001).
- Hall, B. K. Bones and Cartilage: Developmental and Evolutionary Skeletal Biology. , Elsevier Academic Press. (2005).
- Farquharson, C., Jefferies, D. Chondrocytes and longitudinal bone growth: The development of tibial dyschondroplasia. Poult. Sci. 79, 994-1004 (2000).
- Cooper, K. L., et al. Multiple phases of chondrocyte enlargement underlie differences in skeletal proportions. Nature. 495, 375-378 (2013).
- Wuthier, R. E., Lipscomb, G. F. Matrix vesicles: structure, composition, formation and function in calcification. Front. Biosci. 16, 2812(2011).
- Roberts, S., Narisawa, S., Harmey, D., Millan, J. L., Farquharson, C. Functional involvement of PHOSPHO1 in matrix vesicle-mediated skeletal. J. Bone Miner. Res. 22, 617-627 (2007).
- Cui, L., Houston, D. A., Farquharson, C., MacRae, V. E. Characterisation of matrix vesicles in skeletal and soft tissue mineralisation. Bone. 87, 147-158 (2016).
- Brighton, C. T. Structure and Function of Growth Plate. Clin. Orthop. , 22-32 (1978).
- Shim, K. S. Pubertal growth and epiphyseal fusion. Annals of pediatric endocrinology & metabolism. 20, 8-12 (2015).
- Staines, K. A., Pollard, A. S., McGonnell, I. M., Farquharson, C., Pitsillides, A. A. Cartilage to bone transitions in health and disease. J. Endocrinol. 219, R1-R12 (2013).
- Hunziker, E. B., Schenk, R. K., Cruzorive, L. M. Quantitation of Chondrocyte Performance in Growth-Plate Cartilage During Longitudinal Bone-Growth. Journal of Bone and Joint Surgery-American. 69A, 162-173 (1987).
- Breur, G. J., Vanenkevort, B. A., Farnum, C. E., Wilsman, N. J. Linear Relationship Between The Volume Of Hypertrophic Chondrocytes And The Rate Of Longitudinal Bone-Growth In Growth Plates. J. Orthop. Res. 9, 348-359 (1991).
- Ma, B., et al. Gene expression profiling of dedifferentiated human articular chondrocytes in monolayer culture. Osteoarthritis Cartilage. 21, 599-603 (2013).
- Thesingh, C. W., Burger, E. H. The role of mesenchyme in embryonic long bones as early deposition site for osteoclast progenitor cells. Dev. Biol. 95, 429-438 (1983).
- Scheven, B. A., Hamilton, N. J. Longitudinal bone growth in vitro: effects of insulin-like growth factor I and growth hormone. Acta endocrinologica. 124, 602-607 (1991).
- Coxam, V., Miller, M. A., Bowman, M. B., Miller, S. C. Ontogenesis of IGF regulation of longitudinal bone growth in rat metatarsal rudiments cultured in serum-free medium. Archives of physiology and biochemistry. 104, 173-179 (1996).
- Andrade, A. C., Chrysis, D., Audi, L., Nilsson, O. Methods to study cartilage and bone development. Endocr Dev. 21, 52-66 (2011).
- Mushtaq, T., Bijman, P., Ahmed, S. F., Farquharson, C. Insulin-like growth factor-I augments chondrocyte hypertrophy and reverses glucocorticoid-mediated growth retardation in fetal mice metatarsal cultures. Endocrinology. 145, 2478-2486 (2004).
- Owen, H. C., Miner, J. N., Ahmed, S. F., Farquharson, C. The growth plate sparing effects of the selective glucocorticoid receptor modulator, AL-438. Mol. Cell. Endocrinol. 264, 164-170 (2007).
- MacRae, V. E., Farquharson, C., Ahmed, S. F. The restricted potential for recovery of growth plate chondrogenesis and longitudinal bone growth following exposure to pro-inflammatory cytokines. J. Endocrinol. 189, 319-328 (2006).
- Chagin, A. S., Karimian, E., Sundstrom, K., Eriksson, E., Savendahl, L. Catch-up growth after dexamethasone withdrawal occurs in cultured postnatal rat metatarsal bones. J. Endocrinol. 204, 21-29 (2010).
- Haaijman, A., et al. Inhibition of terminal chondrocyte differentiation by bone morphogenetic protein 7 (OP-1) in vitro depends on the periarticular region but is independent of parathyroid hormone-related peptide. Bone. 25, 397-404 (1999).
- Haaijman, A., Dsouza, R. N., Bronckers, A., Goei, S. W., Burger, E. H. OP-1 (BMP-7) affects mRNA expression of type 1, II, X collagen, and matrix Gla protein in ossifying long bones in vitro. J. Bone Miner. Res. 12, 1815-1823 (1997).
- Staines, K. A., et al. MEPE is a novel regulator of growth plate cartilage mineralization. Bone. 51, 418-430 (2012).
- Kaufman, M. The atlas of mouse development. , 3, Academic Press. (1992).
- Boskey, A. L., Roy, R. Cell Culture Systems for Studies of Bone and Tooth Mineralization. Chem. Rev. 108, 4716-4733 (2008).
- Minkin, C., et al. Skeletal development and formation of osteoclast-like cells from in situ progenitors in fetal mouse metatarsals cultured in chemically defined. Bone Miner. 12, 141-155 (1991).
- Kleinnulend, J., Veldhuijzen, J. P., Burger, E. H. Increased calcification of growth plate cartilage as a result of compressive force in vitro. Arthritis Rheum. 29, 1002-1009 (1986).
- Kleinnulend, J., Veldhuijzen, J. P., Vanstrien, M. E., Dejong, M., Burger, E. H. Inhibition of osteoclastic bone-resorption by mechanical stimulation in vitro. Arthritis Rheum. 33, 66-72 (1990).
- Dobie, R., et al. Increased linear bone growth by GH in the absence of SOCS2 is independent of IGF-1. J. Cell. Physiol. 230, 2796-2806 (2015).
- Heilig, J., Paulsson, M., Zaucke, F. Insulin-like growth factor 1 receptor (IGF1R) signaling regulates osterix expression and cartilage matrix mineralization during endochondral ossification. Bone. 83, 48-57 (2016).
- Huesa, C., et al. The functional co-operativity of tissue-nonspecific alkaline phosphatase (TNAP) and PHOSPHO1 during initiation of skeletal mineralization. Biochemistry and Biophysics Reports. 4, 196-201 (2015).
- Staines, K. A., et al. Endochondral Growth Defect and Deployment of Transient Chondrocyte Behaviors Underlie Osteoarthritis Onset in a Natural Murine Model. Arthritis & Rheumatology. 68, 880-891 (2016).
- Song, W., et al. The fetal mouse metatarsal bone explant as a model of angiogenesis. Nature Protocols. 10, 1459-1473 (2015).
- Libby, P., Aikawa, M. Vitamin C, collagen, and cracks in the plaque. Circulation. 105, 1396-1398 (2002).
- Alvarez, J., Serra, R. Unique and redundant roles of Smad3 in TGF-beta-mediated regulation of long bone development in organ culture. Dev. Dyn. 230, 685-699 (2004).
- Pass, C., MacRae, V. E., Huesa, C., Ahmed, S. F., Farquharson, C. SOCS2 is the critical regulator of GH action in murine growth plate chondrogenesis. J. Bone Miner. Res. 27, 1055-1066 (2012).
重印与许可
