本文介绍了一种利用稳定同位素示踪、细胞分选以分离特定细胞类型以及质谱分析相结合的方法,用于研究多种细胞类型的复杂群落中的细胞代谢。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
哺乳动物的细胞类型表现出特化的代谢特征,且有充分证据表明,多种共存的细胞类型之间会进行代谢协作。此外,即使是单一细胞类型的培养物,也可能包含处于不同代谢状态的细胞,例如静息细胞或增殖细胞。针对这些亚群代谢活性的检测方法,是研究细胞代谢的重要工具。通常使用细胞分选仪来分离复杂的细胞群体,通过该方法分离出的亚群可进一步采用代谢组学方法进行分析。然而,这种方法存在的问题是,细胞分选过程会使细胞暴露于应激条件下,从而可能扭曲其原有代谢状态。
为解决这些问题,我们认为,使用稳定同位素标记营养物培养的细胞中代谢物的质量同位素异构体分布(MIDs)相较于代谢物的绝对浓度可能更为稳定,因为MIDs是在较长的时间尺度上形成的,受细胞分选条件短期暴露的影响较小。本文基于这一原理,介绍了一种结合细胞分选与液相色谱-高分辨质谱(LC-HRMS)的分析方法。该方法包括分析三类样本:(1)直接从复杂细胞群体中获得的代谢物提取物;(2)“模拟分选”细胞的提取物,即细胞经过流式分选仪处理但未设门筛选任何特定细胞群体;(3)实际分选所得细胞群体的提取物。在分析实际分选细胞群体之前,通过将模拟分选细胞与直接提取样本进行比较,以验证细胞分选过程本身确实未改变MIDs。我们展示了根据细胞周期时相分选HeLa细胞的示例结果,揭示了核苷酸代谢的变化。
引言
高等生物体内包含多种不同类型细胞组成的复杂群落,这些细胞协同作用以实现更复杂的功能。例如,肿瘤组织不仅含有癌细胞,还包含成纤维细胞、构成血管的细胞,以及常常存在的免疫细胞浸润1;血液中含有数十种免疫细胞亚型的复杂混合物2;甚至培养的细胞系也可能由多个亚群组成,例如乳腺癌细胞中的管腔型和基底型亚型3。此外,共存的不同类型细胞可能表现出代谢上的"协作"。例如,在大脑中,星形胶质细胞被认为可将葡萄糖转化为乳酸,随后该物质被神经元"摄取"并作为底物进行氧化4;在某些情况下,T淋巴细胞依赖邻近的树突状细胞提供半胱氨酸5;癌细胞在肿瘤中也可能与相关的成纤维细胞协同作用6。为了理解此类系统的代谢行为,必须分离并分别测量其中各种细胞类型的代谢活性。
迄今为止,分离细胞类型最广泛使用的方法是荧光激活细胞分选。只要目标细胞类型或状态能够通过荧光抗体标记、工程荧光蛋白的表达或其他染料进行"标记",该方法就具有广泛的适用性。一种选择是首先通过细胞分选仪分离不同类型的细胞,重新培养所获得的各类细胞,然后对这些培养物进行代谢研究7。然而,这种方法仅在目标细胞类型或表型在培养条件下保持稳定时才可行,且无法捕捉细胞周期状态等瞬时行为,也无法反映共培养体系中的代谢协作。对于此类情况,必须直接在分选后的细胞上测量代谢活动。这具有挑战性,因为细胞分选过程会使细胞经历可能干扰其代谢状态的应激条件8,据我们所知,仅有少数研究采用了这种方法9,10。特别是我们发现,保存在细胞分选缓冲液中的细胞可能会泄漏氨基酸等主要代谢物,导致绝对代谢物丰度的测量结果不再可靠11(尽管分选组分之间的相对比较仍可能具有价值)。
为避免这些问题,我们在细胞分选前使用稳定同位素对细胞进行标记,并关注细胞代谢物中的质谱同位素分布(MIDs),而非代谢物丰度。由于MIDs是在较长时间尺度上形成的,因此受分选条件短期暴露的影响较小。我们采用全扫描高分辨率质谱法对MIDs进行定量,该方法灵敏度足够高,仅需约50万个分选细胞即可获得数百种代谢物的数据,细胞分选时间约为30–60分钟。一项对比研究显示 "模拟分选" 对照组(细胞经流式细胞分选仪处理但未设门筛选任何特定细胞群)以及直接从培养皿中提取代谢物,以确保所观察到的质谱同位素分布(MIDs)能够代表原始培养体系中的真实情况。根据所选用的稳定同位素示踪剂的不同,该方法可用于研究多种代谢通路。
访问受限。请登录或开始试用以查看此内容。
方案
1. 代谢物提取
- 培养皿中细胞的提取
- 将细胞以三份平行样接种于6孔板中,在稳定同位素标记的培养基加透析处理的补充物(血清或其他生长补充剂)中培养,直至细胞融合度达到75%。
注:此处将HeLa细胞在含40% U-13C-葡萄糖、70% U-13C, 15N2-谷氨酰胺和5%透析胎牛血清(FBS)的RPMI培养基中培养48小时。使用透析FBS是为了去除可能污染标记培养基的小分子代谢物。建议在正式实验前先用透析补充剂培养细胞,以确保细胞在该培养基中正常生长。补充剂需用蛇皮透析管在0.15 M NaCl溶液中透析过夜。 - 提取当天,弃去培养基,用500 µL预冷的HBSS清洗孔板两次,随后弃去HBSS。
注:此处使用含40% U-13C-葡萄糖的HBSS,因其也存在于培养基中。 - 加入600 µL预冷于干冰上的100%甲醇。
- 将培养皿置于干冰上,用细胞刮刀刮下细胞材料。
- 小心地将细胞提取液转移至微量离心管中,并于-80 °C保存,直至进行质谱分析。
- 将细胞以三份平行样接种于6孔板中,在稳定同位素标记的培养基加透析处理的补充物(血清或其他生长补充剂)中培养,直至细胞融合度达到75%。
- 模拟分选细胞的提取
- 将细胞以三份平行样接种于100 mm培养皿中,在稳定同位素标记的培养基加透析补充剂中培养。
注:此处将HeLa细胞在100 mm培养皿中培养48小时,因为需要大量细胞(约4 × 10⁶)才能获得50万个分选细胞。此数量的HeLa细胞提取物可确保代谢物检测结果良好。所用培养基为含40% U-13C-葡萄糖、70% U-13C, 15N2-谷氨酰胺和5%透析FBS的RPMI培养基。 - 提取当天,弃去培养基,用1.5 mL温热的HBSS清洗培养皿,随后弃去HBSS。
- 加入1.5 mL胰蛋白酶/EDTA,在37 °C孵育4分钟以解离细胞。后续操作均在4 °C或冰上进行。
- 加入3 mL预冷的HBSS(Hank's平衡盐溶液)加透析补充剂以终止胰蛋白酶活性。
- 将细胞收集至15 mL离心管中,在750 × g下离心3分钟。
- 将细胞沉淀重悬于HBSS加透析补充剂加1 mM EDTA中,调整浓度至1–2 × 10⁶ 个细胞/mL,经40 µm细胞滤网过滤以获得单细胞悬液,转移至5 mL离心管中。
- 通过流式细胞分选仪进行分选,仅保留单细胞群体,分选后在4 °C、750 × g下离心3分钟。
注:此处HeLa细胞分选速率为1,000 events/s,仪器压力为27 psi,使用100 µm喷嘴。由于HeLa细胞体积较大,应采用较慢的分选速率和较大的喷嘴,以获得尽可能完整的细胞沉淀。整个分选过程中应将细胞置于低温环境中,以降低代谢速率。详细的分选流程已有先前文献报道12。 - 弃去上清液,将沉淀重悬于50 µL预冷的dH2O中,以在加入甲醇前获得均匀的细胞沉淀。若直接将冷甲醇加入沉淀,会形成坚硬的团块,难以重悬。
- 加入540 µL保存在干冰上的甲醇以提取代谢物,提取物于-80 °C保存,直至进行液相色谱–高分辨质谱(LC-HRMS)分析。
- 将细胞以三份平行样接种于100 mm培养皿中,在稳定同位素标记的培养基加透析补充剂中培养。
- 细胞周期分选细胞的提取
- 将细胞以三份平行样接种于100 mm培养皿中,在培养基加透析补充剂中培养。
注:此处培养表达Geminin Fucci Green(mAG1-hGem)探针的HeLa细胞13,该探针可用于分选G1期(阴性)和SG2M期(阳性)细胞。细胞可在稳定同位素示踪培养基中培养任意所需时间。本实验中,细胞先在未标记培养基中培养46小时,随后在开始分选前2小时更换为含40% U-13C-葡萄糖和70% U-13C, 15N2-谷氨酰胺的RPMI培养基。此短脉冲标记策略旨在研究不同细胞周期阶段的代谢特征。 - 提取当天,弃去培养基,用1.5 mL温热的HBSS清洗培养皿,随后弃去HBSS。
- 加入1.5 mL胰蛋白酶/EDTA,在37 °C孵育4分钟以解离细胞。后续操作均在4 °C或冰上进行。
- 加入3 mL预冷的HBSS加透析补充剂以终止胰蛋白酶活性。
- 将细胞收集至15 mL离心管中,在750 × g下离心3分钟。
- 将细胞沉淀重悬于HBSS加透析补充剂加1 mM EDTA中,调整浓度至1–2 × 10⁶ 个细胞/mL,经40 µm细胞滤网过滤以获得单细胞悬液,转移至5 mL离心管中。
- 通过流式细胞分选仪进行分选,首先设门排除碎片和双联体,再根据目标细胞标记物设门分选,分选后在4 °C、750 × g下离心3分钟。
注:此处HeLa细胞分选速率为1,000 events/s,仪器压力为27 psi,使用100 µm喷嘴。整个分选过程中应将细胞置于低温环境中,以降低代谢速率。 - 弃去上清液,将沉淀重悬于50 µL预冷的dH2O中,以在加入甲醇前获得均匀的细胞沉淀。若直接将冷甲醇加入沉淀,会形成坚硬的团块,难以重悬。
- 加入540 µL保存在干冰上的甲醇以提取代谢物,提取物于-80 °C保存,直至进行LC-HRMS分析。
- 将细胞以三份平行样接种于100 mm培养皿中,在培养基加透析补充剂中培养。
2. 质谱分析
注意:本文描述了在液相色谱-高分辨质谱(LC-HRMS)系统上分析细胞提取物的实验方案。任何适用于细胞提取物分析的代谢组学方法均可使用。全扫描分析可能有助于检测多种代谢物。
- 使用质谱参考校准混合物校准仪器。
- 将细胞提取物在冰上解冻30分钟,然后涡旋振荡15秒。
- 转移 100 µL 将细胞提取物加入离心滤管中,于13,000 x g离心10分钟 4 °C.
- 注射 12.5 µL 将滤液上样至液相色谱-高分辨质谱(LC-HRMS)系统。
- 使用两性离子亲水相互作用液相色谱柱(ZIC-HILIC 柱,150 mm × 4.6 mm, 5 µm 粒径)配备ZIC-HILIC保护柱(20 mm × 2.1 mm),采用含0.1%甲酸的水溶液(溶剂A)和乙腈(溶剂B)进行梯度洗脱。梯度洗脱起始时溶剂A为20%,在17分钟内升至80%。保持该比例4分钟,流速为 400 µL 分钟-1 柱温与样品盘温度 23 °C 和 4 °C分别。
- 使用与色谱分离联用的仪器检测代谢物,采用加热电喷雾电离源(H-ESI II),在正离子和负离子模式下进行电离,以70,000(m/z 200处的半峰全宽,FWHM)的质量分辨率进行全扫描模式采集。
- 使用氮气(纯度 >99.995%)作为鞘气和辅助气,流速分别为45和10 a.u.(任意单位),并设定汽化器温度为 350 °C 正离子模式下电喷雾电压为4 kV,负离子模式下为-3.5 kV。
3. 数据分析
- 选择若干种已有标准品且在样品中呈现良好质谱峰的代谢物。高质量的峰具有较高的信噪比。必须验证峰的质量,并确保不包含假同位素峰。在峰形和/或保留时间上存在差异的同位素峰很可能是假峰。
- 对于同位素标记的样品,通过将每个质量同位素体(MI)的峰面积除以所有MI峰面积的总和,计算质量同位素体分数。
- 分别计算标记的碳/氮分数,即13C和15N的富集度,公式如下:
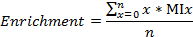
其中n为代谢物中碳原子(或氮原子)的总数,MIx为x的质量同位素体分数。
注意:所有计算均可通过编程语言完成。
访问受限。请登录或开始试用以查看此内容。
结果
作为示例,本文描述了一项根据细胞周期时相分选HeLa细胞后研究其代谢的实验。为了在碳和氮原子上标记广泛的中心代谢物,我们使用U-13C-葡萄糖和U-13C, 15N-谷氨酰胺作为示踪剂,将细胞培养48小时。为了在验证实验中获得丰富的质谱同位素分布(MID)数据,我们选择使用40% U-13C-葡萄糖和70% U-13C,15N2-谷氨酰胺的混合物,因为中等水平的同位素标记通常会产生更多样化的同位素丰度模式14。
在验证实验中,我们对85种代谢物进行了靶向分析。在经过质量控制步骤以去除低质量的液相色谱-质谱(LC-MS)峰后,我们能够在直接细胞提取物中检测到69个峰,其中66个在模拟分选细胞中存在(占96%)。这些峰中有60个显示出标记(同位素富集度高于天然丰度),且在大多数情...
访问受限。请登录或开始试用以查看此内容。
讨论
我们的方法基于以下原理:细胞代谢物中的同位素分布模式(MIDs)反映了细胞代谢活动的"历史"。这使得我们能够在细胞分选之前,针对复杂细胞群中不同亚群所经历的代谢活动进行研究。相比之下,分选后细胞提取物中代谢物的峰面积与直接从培养皿中提取的样本相比存在显著差异11。部分原因在于不同的化学组成会改变质谱中的信号响应,即所谓的"基质效应";此外,我们还发现,在分选过程中细胞被置于缓冲液中时会丢失氨基酸11。这可能改变细胞在分选期间的代谢状态和活性,但这一点对我们的方法本身并无影响:只要分选后测得的MIDs与直接提取所获得的结果大致接近,数据仍能有效反映原始复杂培养体系中各细胞亚群的代谢状态。
我们最初测试了一种将细胞直接分选到提取液(甲醇)中的方法,以快速淬灭代谢活动。然而,所得提取物难以分析,因为其中含有大量来自流式细胞分选仪鞘液的盐分及其他可能污染物,导致质谱系统出现严重的离子抑制现象。因此,我们最终采用本文所述的方案,在提取前先洗去流式细胞分选仪所残留的过...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢Anas Kamleh博士在优化质谱方法方面提供的宝贵帮助,以及Annika von Vollenhoven在细胞分选方面的协助。本研究得到了瑞典战略研究基金会(资助号:FFL12-0220)和癌症研究战略计划(IR, RN);瑞典心肺基金会(CEW, HG);以及玛丽凯基金会(JW, MJ)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| HBSS | Sigma | H6648 | |
| INFLUX(inFlux v7 分选仪) | BD Biosciences | ||
| U-13C-葡萄糖 | Cambridge Isotopes | 40762-22-9 / GLC-018 | |
| U-13C,15N2-谷氨酰胺 | Cambridge Isotopes | CNLM-1275-H-0.1 | |
| 甲醇(JT Baker),HPLC 级 | VWR | BAKR8402.2500 | |
| Ultrafree - MC - VV 离心滤器,Durapore PVDF 0.1 µm | Millipore | UFC30VV00 | |
| Ultimate 3000 UHPLC | Thermo Fisher Scientific | ||
| Q-Exactive Orbitrap 质谱仪 | Thermo Fisher Scientific | ||
| Merk-Sequant ZIC HILIC 色谱柱(150 mm × 4.6 mm,5 µm) | Merck KGaA | 1.50444.0001 | |
| Merk-Sequant ZIC HILIC 保护柱(20 mm × 2.1 mm) | Merck KGaA | ||
| 乙腈 Optima LC-MS,琥珀色玻璃瓶装 | Fisher Scientific | A955-212 | |
| Milli-Q 水 | Millipore | 使用 Milli-Q Gradient 系统制备 | |
| Myrsyra 99.5% Optima(甲酸) | Fisher Scientific | 11423423 | |
| X100 螺口小瓶 1.5 ml,8-425 32×11.6 mm,琥珀色,100 个 | Thermo Fisher Scientific | 10560053 | |
| X100 螺口盖,白色 PTFE 垫片,8-425(螺帽) | Thermo Fisher Scientific | 12458636 | |
| ProteoMass LTQ/FT-Hybrid ESI 正离子模式校准混合物 | Sigma-Aldrich | MSCAL5 | 校准试剂盒 |
| SNAKESKIN 10K MWCO | Thermo Fisher Scientific | 88245 | |
| Mathematica v.10 | Wolfram Research |
参考文献
- Gregersen, P. K. Cell type-specific eQTLs in the human immune system. Nat. Genet. 44 (5), 478-480 (2012).
- Heppner, G. H. Tumor heterogeneity. Cancer Res. 44 (6), 2259-2265 (1984).
- Prat, A., et al. Characterization of cell lines derived from breast cancers and normal mammary tissues for the study of the intrinsic molecular subtypes. Breast Cancer Res. Treat. 142 (2), 237-255 (2013).
- Magistretti, P. J., Allaman, I. A Cellular Perspective on Brain Energy Metabolism and Functional Imaging. Neuron. 86 (4), 883-901 (2015).
- Angelini, G., et al. Antigen-presenting dendritic cells provide the reducing extracellular microenvironment required for T lymphocyte activation. Proc. Natl. Acad. Sci. U. S. A. 99, 1491-1496 (2002).
- Koukourakis, M. I., Giatromanolaki, A., Harris, A. L., Sivridis, E. Comparison of metabolic pathways between cancer cells and stromal cells in colorectal carcinomas: A metabolic survival role for tumor-associated stroma. Cancer Res. 66 (2), 632-637 (2006).
- Hollenbaugh, J. A., Munger, J., Kim, B. Metabolite profiles of human immunodeficiency virus infected CD4+ T cells and macrophages using LC-MS/MS analysis. Virology. 415 (2), 153-159 (2011).
- Richardson, G. M., Lannigan, J., Macara, I. G. Does FACS perturb gene expression. Cytom. Part A. 87 (2), 166-175 (2015).
- Moussaieff, A., et al. High-resolution metabolic mapping of cell types in plant roots. Proc. Natl. Acad. Sci. U. S. A. 110 (13), E1232-E1241 (2013).
- Johnson, C., et al. A metabolic signature of colon cancer initiating cells. Cancer Metab. 2, 32(2014).
- Roci, I., et al. Metabolite Profiling and Stable Isotope Tracing in Sorted Subpopulations of Mammalian Cells. Anal. Chem. 88 (5), 2707-2713 (2016).
- Shapiro, H. Practical flow cytometry. , Wiley-Liss. New York. (2003).
- Sakaue-Sawano, A., et al. Visualizing spatiotemporal dynamics of multicellular cell-cycle progression. Cell. 132 (3), 487-498 (2008).
- Noack, S., Wiechert, W. Quantitative metabolomics: A phantom. Trends Biotechnol. 32 (5), 238-244 (2014).
访问受限。请登录或开始试用以查看此内容。
重印与许可
