本文介绍了从液体培养物中纯化嗜肺军团菌(Legionella pneumophila,L. pneumophila)外膜囊泡(OMVs)的方法。纯化后的囊泡可用于处理巨噬细胞,以分析其促炎潜力。
本文内容
摘要
摘要
细菌能够通过多种分泌系统分泌多种分子。除了将分子分泌到胞外空间或直接注入另一个细胞外,革兰氏阴性细菌还能形成外膜囊泡(OMVs)。这些膜囊泡可将它们的 cargo 长距离递送,且 cargo 可免受蛋白酶和核酸酶的降解。
Legionella pneumophila(L. pneumophila)是一种胞内寄生的革兰氏阴性病原体,可引起严重肺炎。在人体内,它感染肺泡巨噬细胞,并阻断溶酶体降解过程,形成一种特化的复制空泡。此外,L. pneumophila在不同生长条件下均可产生外膜囊泡(OMVs)。为了研究OMVs在人巨噬细胞感染过程中的作用,我们建立了一种从液体培养物中纯化细菌膜囊泡的实验方案。该方法基于差速超速离心法。随后对富集得到的OMVs进行了蛋白质和脂多糖(LPS)含量分析,并将其用于处理人单核细胞系或小鼠骨髓来源的巨噬细胞。通过酶联免疫吸附试验检测这些细胞的促炎反应。此外,还分析了预处理后对后续感染的影响。为此,采用菌落形成单位测定法研究了L. pneumophila在巨噬细胞内的细菌复制情况。
本文详细描述了一种通过超速离心法从液体培养物中纯化嗜肺军团菌(L. pneumophila)外膜囊泡(OMVs),并进一步分析其对巨噬细胞促炎潜能的下游检测方案。
引言
细菌可通过不同机制分泌毒力因子1除了众所周知的分泌系统外,革兰氏阴性菌还可通过外膜囊泡(OMVs)进行信息交换并递送毒力因子。OMVs 是直径为 10–300 nm 的小型球形囊泡,具有双层膜结构。它们可在多种生长环境(液体培养、固体培养和生物膜)以及所有生长阶段中分泌。2,3。OMVs 是一种重要的运输方式(例如, 用于蛋白质、黏附素、毒素和酶,以及位于OMV表面的LPS4腔内货物受到保护,免受蛋白水解降解,因此能够在远距离发挥作用,且这些囊泡可在体液和远端器官中发现5,6,7,8它们不仅可被真核细胞识别并摄取9,10,而且还能促进细菌与宿主细胞的结合及其侵入宿主细胞4. 嗜肺军团菌 (L. pneumophila是一种革兰氏阴性菌,能够释放外膜囊泡(OMVs)。在人体肺部,它主要感染肺泡巨噬细胞,尽管其天然宿主为淡水阿米巴原虫。11。一个 L. pneumophila 感染可导致军团菌病,这是一种严重的肺炎形式12它可阻断宿主细胞内吞噬体与溶酶体的融合,同时招募宿主细胞器,从而形成一个供其复制的生态位—— 军团菌含有液泡(LCV)的形成13,14溶酶体降解不仅受到通过IV型分泌系统转运的效应蛋白的抑制,还受到外膜囊泡(OMVs)释放的抑制15.
为了分析细菌外膜囊泡(OMVs)对受体细胞的作用,需要从细菌培养物中纯化OMVs。早期研究主要关注L. pneumophila OMVs的蛋白质组成及其对肺泡上皮细胞的影响16,但后续利用人肺组织移植模型的研究表明,L. pneumophila OMVs可被肺泡巨噬细胞摄取17。
由于外膜囊泡(OMVs)含有病原体相关分子模式(PAMPs)及其他细菌抗原,它们可能影响真核细胞的感染过程,并调节宿主的免疫应答18。L. pneumophila 的 OMVs 可迅速与宿主细胞膜融合,此外还能激活膜结合型 TLR219。已知 L. pneumophila 的 OMVs 以促炎方式刺激巨噬细胞和上皮细胞16,17,因此我们分析了 OMVs 对人和小鼠巨噬细胞感染过程的影响。
本文介绍一种在液体培养基中培养L. pneumophila以分泌外膜囊泡(OMVs),并通过差速超速离心法分离这些囊泡,进而评估囊泡对真核宿主细胞的影响,可直接检测或在感染后进行分析的实验方案。
方案
1. 准备培养基和平板培养基
- 制备1 L肉汤培养基(YEB)。将10 g ACES和10 g酵母提取物溶解于900 mL蒸馏水中,用KOH(5 N)调节pH至6.9。加入10 mL L-半胱氨酸(0.4 g溶于10 mL蒸馏水)和10 mL Fe(NO3)3x9H2O(0.25 g溶于10 mL蒸馏水)。用蒸馏水定容至1 L,经滤膜(孔径:0.22 µm)过滤除菌,4 °C保存。
- 制备缓冲活性炭酵母提取物(BCYE)琼脂平板。将10 g ACES和10 g酵母提取物溶解于900 mL蒸馏水中,用KOH(5 N)调节pH至6.9。加入15 g琼脂和2.5 g活性炭,用蒸馏水定容至1 L,高压灭菌。
- 向已冷却的BCYE培养基(约50 °C)中加入10 mL L-半胱氨酸(0.4 g溶于10 mL蒸馏水)和10 mL Fe(NO3)3x9H2O(0.25 g溶于10 mL蒸馏水),两者均通过0.22 µm滤膜过滤除菌。混匀后倒平板,4 °C保存。
2. 培养L. pneumophila
- 铺展 L. pneumophila 菌株 Corby(野生型,WT)接种于 BCYE 琼脂平板,于 37 °C 3天。接种10 mL YEB,OD值为600 0.3 L. pneumophila 从预培养平板中;将细菌在指定条件下培养 37 °C 在旋转摇床(150 rpm)中振荡6小时。
- 通过涂布验证液体培养物的纯度 100 µL 在血琼脂平板上划线接种该悬液。37℃过夜培养。 37 °C.
- 将剩余的液体培养物加入90 mL新鲜YEB培养基中,在旋转摇床中培养37 °C 以及 150 rpm)以达到 OD600 pH 3.0-3.5,大约需要 16-20 小时。
3. 准备并定量 L. pneumophila 的外膜囊泡(OMVs)
注意:所有以下离心步骤均须在无菌条件下且 4 °C 下进行。
- 将液体培养物在 4,000 x g 条件下离心 20 分钟,以沉淀细菌。将上清液转移至新的离心管中,弃去细菌沉淀,并重复离心一次(4,000 x g,20 分钟)。此步骤重复进行一次。
- 将剩余的上清液用孔径 0.22 µm 的滤器无菌过滤两次。将去除了细菌的上清液转移至超速离心管中,在 100,000 x g 条件下超速离心 3 小时。
- 倒去上清液并弃去。将 OMV 沉淀重悬于无菌磷酸盐缓冲液(PBS)中,并在 100,000 x g 条件下超速离心 3 小时,以去除污染性蛋白质和脂多糖(LPS)。
- 弃去上清液,将 OMV 沉淀重悬于 500 µL 无菌 PBS 中。取 20 µL 分别划线接种于血琼脂平板和 BCYE 琼脂平板,以排除所制备囊泡是否存在细菌污染。将血琼脂平板在 37 °C 培养过夜,BCYE 琼脂平板在 37 °C 培养 3 天。
- 根据试剂盒说明书,使用二喹啉甲酸法(bicinchoninic acid assay)测定 OMV 制备物中的蛋白含量。
注意:100 mL L. pneumophila 培养物通常可获得约 1 µg/µL 的蛋白浓度。将制备并定量后的 OMV 储存于 -20 °C。
4. 预处理巨噬细胞
- 准备 THP-1 细胞。
注:THP-1 是一种源自白血病患者的单核细胞系。- 每 24 孔加入 2×10⁵ 个 THP-1 细胞,并通过加入 20 nM 佛波酯 12-十四烷酰-13-乙酸酯(PMA)诱导其分化为类巨噬细胞。在 37 °C 下孵育 24 小时。
- 更换为 500 µL 新鲜培养基,再孵育 24 小时;THP-1 细胞的最佳培养基为含 10% 胎牛血清的 RPMI 1640 高糖培养基。
- 按照参考文献 20 中所述方法分离小鼠骨髓来源巨噬细胞(mBMDM)。
- 用 OMVs 处理 THP-1 来源巨噬细胞或 mBMDM。
- 解冻步骤 3 中制备的 OMVs,并根据其蛋白含量(0.1、1 和 10 µg/mL)加入人或小鼠巨噬细胞中。在 37 °C 下与巨噬细胞共孵育至少 20 小时。收集上清液用于 ELISA 检测,或继续进行步骤 5。
5. 感染巨噬细胞并通过菌落形成单位(CFU)实验评估细菌复制
- 使用第2.1步的 L. pneumophila、第4.3步预处理的THP-1细胞或mBMDM,以及未经预处理的巨噬细胞作为对照(2×10⁵/24孔)。不更换培养基。
- 用 L. pneumophila Corby野生型感染THP-1细胞,用缺乏鞭毛蛋白的 L. pneumophila Corby突变株感染mBMDM(两者感染复数(MOI)均为0.5;每24孔含1×10⁵ L. pneumophila),分别孵育24小时和48小时。按照第2.1步所述方法制备 L. pneumophila Corby(野生型或缺乏鞭毛蛋白的突变株)。
- 通过加入皂苷(终浓度:0.1%)在培养基中裂解细胞,并在37 °C孵育5分钟。
- 用移液器重悬细菌,将悬液转移至反应容器中。用无菌PBS对含 L. pneumophila 的培养基进行系列稀释。
- 取50 µL所需稀释液涂布于BCYE琼脂平板,37 °C孵育3天。
- 肉眼计数形成的菌落。计算CFU
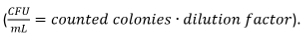 。将CFU计数结果归一化至未经预处理但被感染的巨噬细胞,后者设为100%。
结果
制备 L. pneumophila 外膜囊泡(OMVs)并分析其在感染后对巨噬细胞促炎反应影响的实验装置如图1所示。所制备OMVs的促炎潜力可在PMA诱导分化的THP-1细胞上进行分析,结果如图2所示。THP-1细胞表现出IL-8和IL-6分泌的时间依赖性和剂量依赖性增加。此外,通过使用不同遗传背景的小鼠骨髓来源树突状细胞(mBMDM),可分析不同Toll样受体(TLRs)在识别L. pneumophila OMVs中的作用,如图3中CXCL1 ELISA结果所示。来自野生型(WT)小鼠的mBMDM在OMV刺激后分泌CXCL1,而TLR2/4-/- mBMDM分泌量显著减少。为研究L. pneumophila OMVs对THP-1巨噬细胞内细菌复制的影响,先将细胞与OMVs共孵育,随后再感染L. pneumophila(图4 A)。THP-1来源巨噬细胞经OMVs预刺激后,在感染24小时时细菌复制减少,但在后期时间点(感染后48小时)菌落形成单位(CFU)数量则翻倍。通过mBMDM可评估Toll样受体(TLR)信号通路在巨噬细胞感染后对OMVs识别的影响,结果如图4 B所示。在野生型动物来源的mBMDM中,经OMVs预孵育后细菌复制增加十倍,而TLR2-/- 和 TRIF/MyD88-/- 细胞则未表现出L. pneumophila复制的增加。
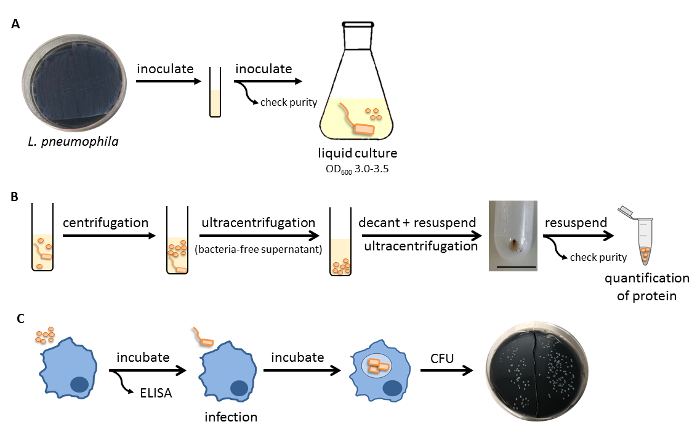
图1:实验流程。(A)从10 cm BCYE琼脂平板上挑取L. pneumophila Corby野生型菌株接种小量液体培养物(10 mL),培养6小时后转接至90 mL新鲜YEB培养基中。同时取少量菌液涂布于血琼脂平板以检测纯度。细菌在37 °C下培养至早期静止期(OD600 = 3.0–3.5)。(B)将液体培养物离心并经无菌滤膜过滤以去除细菌。将不含Legionella的上清液进行超速离心,获得外膜囊泡(OMV)沉淀,将其重悬于PBS中后再次超速离心。分离得到的囊泡重新悬浮,检测纯度并测定蛋白含量。比例尺为2.5 cm。(C)用定量后的OMVs刺激人或小鼠巨噬细胞。细胞培养上清可用于ELISA检测,或进一步用L. pneumophila感染巨噬细胞,通过在10 cm BCYE琼脂平板上进行CFU实验测定细菌复制情况。请点击此处查看该图的放大版本。
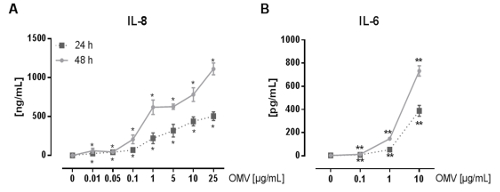
图2:THP-1细胞的促炎性激活 L. pneumophila OMVs。(A) 此处采用单核细胞系 THP-1 作为肺泡巨噬细胞的模型。经 PMA 分化后的 THP-1 细胞用递增剂量的 L. pneumophila OMVs(0.01-25 µg/mL) 分别作用24和48小时。收集无细胞上清液用于IL-8 ELISA检测。结果显示为三次独立实验的平均值±标准误(SEM)。THP-1细胞对低至 0.01 µg/mL L. pneumophila 具有显著的IL-8分泌,呈时间和剂量依赖性。 (B) L. pneumophila OMVs(0.1-10 µg/mL) 用于刺激PMA分化的THP-1细胞。分别在孵育24小时和48小时后收集上清液,通过ELISA检测上清液中释放的IL-6。结果显示为三次独立实验的均值 ± 标准误(SEM)。THP-1细胞即使在最低剂量OMVs处理下,仍分泌了显著量的IL-60.1 µg/mL)。IL-6 的分泌随 OMV 剂量增加和孵育时间延长而升高。统计学分析:Mann-Whitney 检验;*p < 0.05 和 **p < 0.01 与相应的 0 µg/mL OMV。经参考文献20许可重印。 请点击此处以查看此图的放大版本。
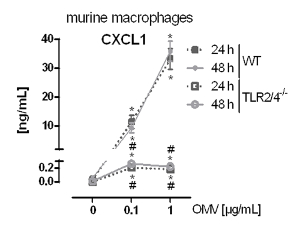
图3:巨噬细胞的促炎性活化依赖于TLR2/4。 分别将来自野生型(WT)和TLR2/4-/-小鼠的骨髓来源巨噬细胞(mBMDM)与L. pneumophila的外膜囊泡(OMVs)(0.1 或 1 µg/mL)共孵育。在孵育24小时和48小时后,通过ELISA检测CXCL1的分泌水平。结果显示为三次独立实验的平均值±标准误(SEM)。来自野生型小鼠的mBMDM在与L. pneumophila OMVs共孵育后,表现出剂量依赖性的CXCL1分泌反应。而TLR2/4-/- mBMDM分泌的CXCL1显著低于野生型mBMDM,且该分泌不呈现剂量依赖性增加。统计学分析采用Mann-Whitney检验;*p < 0.05,与相应0 µg/mL OMV组比较;#p < 0.05,与相同处理的野生型样本比较。经参考文献20许可重印。请点击此处查看该图的放大版本。
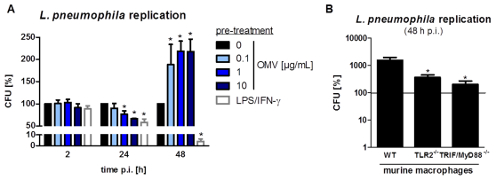
图4:L. pneumophila OMV预孵育促进巨噬细胞内细菌复制。(A) 分化的THP-1细胞经OMVs(0.1、1或10 µg/mL)或LPS/IFN-γ(各200 ng/mL)预孵育,或不作处理作为对照。预孵育20小时后,用野生型L. pneumophila Corby(感染复数MOI为0.5)分别感染THP-1细胞2、24和48小时。通过加入皂苷裂解THP-1细胞,并将细菌接种于BCYE琼脂平板上。每个时间点的菌落形成单位(CFU)均相对于0 µg/mL OMV处理组进行计算。柱状图表示三次独立实验的平均值±标准误(SEM),每次实验均设技术重复。在感染后2小时(p.i.)时,各组间细菌摄取量无显著差异。细菌复制水平的变化在感染后24小时和48小时分别测定。经LPS/IFN-γ预处理的THP-1细胞在感染后24小时表现出细菌载量下降,该效应在L. pneumophila OMV预处理组中也呈剂量依赖性出现。在较晚时间点(感染后48小时),经OMV预处理的THP-1细胞中L. pneumophila复制量增加一倍,而LPS/IFN-γ预处理的巨噬细胞则进一步减少细菌载量。统计学分析采用Mann-Whitney检验;*p < 0.05,**p < 0.01,与相应0 µg/mL OMV组比较。(B) 来自不同遗传背景小鼠的骨髓来源巨噬细胞(mBMDM)(野生型WT、TLR2-/-和TRIF/MyD88-/-)经0.1 µg/mL L. pneumophila OMVs预孵育20小时后,用旗状蛋白缺陷型L. pneumophila Corby菌株(MOI 0.5)感染48小时。通过加入皂苷裂解mBMDM,并将Legionella接种于BCYE琼脂平板。CFU值相对于0 µg/mL OMV组计算,实线表示该参照值。柱状图表示三次独立实验的平均值±SEM,每次实验均设重复。来自野生型小鼠的mBMDM在OMV预处理后表现出L. pneumophila复制增加。TLR2-/-巨噬细胞中Legionella复制显著降低,其水平与TRIF/MyD88-/- mBMDM相当。统计学分析采用Mann-Whitney检验;p < 0.05,与野生型样本比较。转载自参考文献20,已获许可。请点击此处查看该图的放大版本。
讨论
目前,细菌病原体的外膜囊泡(OMV)及其对靶细胞的影响正在被深入研究。例如,Clostridium perfringens 来源的 OMV 可诱导巨噬细胞分泌细胞因子,B 淋巴细胞可被 Borrelia burgdorferi 来源的 OMV 激活,而 Helicobacter pylori 释放的膜囊泡可作用于胃上皮细胞21,22,23。L. pneumophila 是一种可引发严重非典型肺炎的胞内病原体,同样会释放能够激活肺上皮细胞和巨噬细胞的 OMV16,19。本文提供了一种从小规模液体培养物中分离 L. pneumophila OMV 的详细方案,以研究 OMV 在肺炎中的潜在作用。为获得纯的 L. pneumophila 来源 OMV 制剂,必须在无菌条件下操作,并排除其他细菌的污染。OMV 的分离过程包括通过 0.22 µm 孔径滤膜的过滤步骤,以防止 L. pneumophila 污染最终的 OMV 沉淀物,尽管该步骤会导致 OMV 得率降低,因为最大的 OMV 会在过滤过程中丢失。
此外,我们检测了人和小鼠巨噬细胞对分离的囊泡以及感染细胞的反应 L. pneumophila 更接近地模拟实际情况 军团菌 肺炎中,细胞外细菌在液泡内释放外膜囊泡(OMVs)15所采用的OMV剂量是根据游离OMV的含量估算的 体外 孵育24小时后人巨噬细胞的感染情况(参见参考文献20)。用于刺激其他受体细胞或 体内 实验,可能需要其他OMV剂量,且必须予以确定。对OMV作用效果的分析 L. pneumophila OMVs 代表了对 Jager 和 Steinert 所描述方案的改进24.
由于原代人源材料的获取受限,此处使用PMA分化的THP-1细胞作为肺泡巨噬细胞的模型。PMA的处理可将单核细胞样的THP-1细胞诱导分化为类似巨噬细胞的细胞25。此外,THP-1细胞是研究L. pneumophila的公认模型细胞系26。除该人源单核细胞系外,还使用小鼠骨髓来源巨噬细胞(mBMDM)。mBMDM被广泛用于研究L. pneumophila的作用27,28,29。由于可利用不同TLR或其他蛋白的基因敲除小鼠制备mBMDM,使其成为研究OMV效应的有力工具。为减少每项实验所需的小鼠数量,常以mBMDM替代肺泡巨噬细胞,这是由于肺泡巨噬细胞来源受限。关键实验可能仍需使用肺泡巨噬细胞进行验证。
除了本文所述的超速离心法纯化OMV外,还可以采用密度梯度离心法,该方法包含在Chutkan et al.30 的实验方案中。该方法可提高所获得OMV制备物的纯度,并减少共纯化的蛋白聚集体、鞭毛蛋白和脂多糖(LPS)的含量。所获得OMV制备物的纯度可通过透射电子显微镜或纳米颗粒追踪分析进行检测,作为质量控制的补充步骤。这可以提供除本文所述蛋白质定量方法之外的另一种定量手段。可选地,可通过鲎试剂(limulus amebocyte lysate)检测分析LPS浓度。如果OMV产量较低,可额外使用离心过滤装置进行浓缩,但本研究未进行此步骤。若产量低于预期,则弃用这些OMV样品。
为了进一步阐明外膜囊泡(OMVs)背后的生物学机制和功能,可以检测不同应激条件对OMV产生的影响。营养缺乏、培养温度变化或暴露于有害物质可能会影响OMV的分泌31。Klimentova和Stulik的实验方案中讨论了可能的应激条件32。此外,还可构建高产或低产OMV的L. pneumophila突变株。随后可在巨噬细胞感染实验、人肺组织外植体(见参考文献17)或甚至在in vivo模型中分析不同的OMV制备物。除了研究OMVs在天然免疫信号传导中的作用外,还可通过实验探讨其在细菌间通讯中的影响。此外,可通过使用小鼠基因敲除细胞或在人源细胞系中构建CRISPR/Cas9基因敲除模型,来分析不同天然免疫信号通路的影响。此类关于OMVs的基础研究将有助于开发新的疫苗策略,目前针对由Neisseria meningitides引起的B型脑膜炎已有此类疫苗33。
从OMV的分离与表征方案出发,可将其应用于其他革兰氏阴性菌以及其他宿主细胞;仅需根据细菌在液体培养基中的生长特性进行相应调整即可。Chutkan et al. 发表的方案详细描述了从Escherichia coli和Pseudomonas aeruginosa30中制备OMV的方法。培养过程不应进入后期稳定期,以避免细菌裂解增加以及蛋白质和膜成分的污染。此外,用于刺激宿主细胞的OMV剂量应参照in vivo感染期间OMV的实际存在水平来确定,同时确保细胞毒性处于较低水平。通过这种方式,可研究OMV的病理作用、其在种间通讯中的影响以及宿主与病原体之间的相互作用。
为进一步研究……的作用 L. pneumophila 肺炎研究中的OMVs需要标准化的OMV制备方法以及足够产量和可比性的感染实验。本方案将有助于标准化OMV的分离流程,并推动OMV研究扩展至其他革兰氏阴性菌及其他宿主细胞。此外,详细的方法描述将使研究受益 体外 知识,可用于拓展实验 体内 设置。未来,该方案可拓展应用于从血清或支气管肺泡灌洗液等原始生物材料中分离OMVs,以深入了解生理条件下释放的OMVs的组成。这将有助于确定OMVs组成的关键参数,并阐明其特性 体外-生成的OMVs。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Markus Schnare教授为我们提供TLR2-/-和TLR2/4-/-小鼠,感谢Carsten Kirschning教授提供TRIF/MyD88-/-小鼠。本研究部分工作由德国联邦教育与研究部(e:bio miRSys - FKZ 0316175B,e:Med CAPSYS - FKZ 01X1304E;http://www.bmbf.de/)、德国研究基金会(SFB/TR-84;http://www.sfb-tr84.de/)以及黑森州科学与艺术部(LOEWE医学RN组学 - FKZ 519/03/00.001-(0003);http://www.proloewe.de/medicalrnomics)资助,上述资助均授予BS。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 cm 培养皿 | Sarstedt AG & Co KG (Nuembrecht, Germany) | 82.1473 | |
| 70 Ti 转子 | Beckman Coulter Incorporation (California, USA) | 337922 | |
| ACES | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 9138.2 | |
| 活性炭 | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | X865.2 | |
| 琼脂-琼脂,Kobe I | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 5210.2 | |
| 含 5% 羊血的哥伦比亚琼脂 | Becton Dickinson GmbH (Heidelberg, Germany) | 254005 | |
| 比色皿 | Sarstedt AG & Co KG (Nuembrecht, Germany) | 67.742 | |
| ELISA(人源) | BD OptEIA™; Becton Dickinson GmbH (Heidelberg, Germany) | IL-8: 555244 IL-6: 550799 | |
| ELISA(小鼠源) | DuoSet, R&D (Minneapolis, USA) | CXCL1: DY453-05 | |
| Fe(NO3)3·9H2O | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 5632.1 | |
| 胎牛血清(FCS) | Life Technologies GmbH (Darmstadt, Germany) | 10270-106 | |
| Heracell 240i CO2 培养箱 | Thermo Fisher Scientific Germany BV & Co KG (Braunschweig, Germany) | 40830469 | |
| Heraeus Multifuge X3R | Thermo Fisher Scientific Germany BV & Co KG (Braunschweig, Germany) | 75004515 | |
| 接种环 | Sarstedt AG & Co KG (Nuembrecht, Germany) | 86.1567.010 | |
| KOH | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 6751.1 | |
| L. pneumophila Corby | --- | --- | 由 Prof Dr Antje Flieger(RKI, Berlin, Germany)惠赠 |
| L. pneumophila Corby ΔflaA | --- | --- | 由 Prof Dr Klaus Heuner(RKI, Berlin, Germany)惠赠 |
| L-半胱氨酸 | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | ||
| 原代骨髓来源巨噬细胞(mBMDM) | --- | --- | 由 Prof Dr Markus Schnare(Philipps University Marburg, Marburg, Germany)和 Prof Dr Carsten Kirschning(University Duisburg Essen, Essen, Germany)惠赠 |
| PBS | Biochrom GmbH (Berlin, Germany) | L 1825 | |
| 佛波醇-12-十四烷酰-13-乙酸酯(phorbol 12-myristate 13-acetate) | Sigma-Aldrich Chemie GmbH (Taufkirchen, Germany) | P8139-1MG | |
| 旋转摇床(MaxQ 6000) | Thermo Fisher Scientific Germany BV & Co KG (Braunschweig, Germany) | SHKE6000 | |
| RPMI 1640 高糖培养基 | Life Technologies GmbH (Darmstadt, Germany) | 11875-093 | |
| 皂苷 | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 9622.1 | |
| Ultrospec 10 | Biochrom Ltd (Cambridge, England) | 80-2116-30 | |
| 无菌滤器(孔径:0.22 µm) | Corning Incorporated (New York, USA) | 431096 | |
| THP-1 细胞系 | Sigma-Aldrich Chemie GmbH (Taufkirchen, Germany) | 88081201-1VL | |
| Sorvall Discovery 100 SE | Thermo Fisher Scientific Germany BV & Co KG (Braunschweig, Germany) | ||
| 酵母提取物 | Carl Roth GmbH & Co KG (Karlsruhe, Germany) | 2363.2 | |
| Pierce BCA 蛋白定量试剂盒 | Thermo Fisher Scientific Germany BV & Co KG (Braunschweig, Germany) | 23225 |
参考文献
- Cambronne, E. D., Roy, C. R. Recognition and delivery of effector proteins into eukaryotic cells by bacterial secretion systems. Traffic. 7 (8), 929-939 (2006).
- Ellis, T. N., Kuehn, M. J. Virulence and immunomodulatory roles of bacterial outer membrane vesicles. Microbiol Mol Biol Rev. 74 (1), 81-94 (2010).
- Beveridge, T. J. Structures of gram-negative cell walls and their derived membrane vesicles. J Bacteriol. 181 (16), 4725-4733 (1999).
- Kuehn, M. J., Kesty, N. C. Bacterial outer membrane vesicles and the host-pathogen interaction. Genes Dev. 19 (22), 2645-2655 (2005).
- Chi, B., Qi, M., Kuramitsu, H. K. Role of dentilisin in Treponema denticola epithelial cell layer penetration. Res Microbiol. 154 (9), 637-643 (2003).
- Kolling, G. L., Matthews, K. R. Export of virulence genes and Shiga toxin by membrane vesicles of Escherichia coli O157:H7. Appl Environ Microbiol. 65 (5), 1843-1848 (1999).
- Horstman, A. L., Kuehn, M. J. Enterotoxigenic Escherichia coli secretes active heat-labile enterotoxin via outer membrane vesicles. J Biol Chem. 275 (17), 12489-12496 (2000).
- Dorward, D. W., Schwan, T. G., Garon, C. F. Immune capture and detection of Borrelia burgdorferi antigens in urine, blood, or tissues from infected ticks, mice, dogs, and humans. J Clin Microbiol. 29 (6), 1162-1170 (1991).
- Mashburn, L. M., Whiteley, M. Membrane vesicles traffic signals and facilitate group activities in a prokaryote. Nature. 437 (7057), 422-425 (2005).
- Kesty, N. C., Mason, K. M., Reedy, M., Miller, S. E., Kuehn, M. J. Enterotoxigenic Escherichia coli vesicles target toxin delivery into mammalian cells. EMBO J. 23 (23), 4538-4549 (2004).
- Abu Kwaik, Y., Gao, L. Y., Stone, B. J., Venkataraman, C., Harb, O. S. Invasion of protozoa by Legionella pneumophila and its role in bacterial ecology and pathogenesis. Appl Environ Microbiol. 64, 3127-3133 (1998).
- Winn, W. C., Myerowitz, R. L. The pathology of the Legionella pneumonias. A review of 74 cases and the literature. Hum Pathol. 12 (5), 401-422 (1981).
- Ge, J., Shao, F. Manipulation of host vesicular trafficking and innate immune defence by Legionella Dot/Icm effectors. Cell Microbiol. 13 (12), 1870-1880 (2011).
- Hubber, A., Roy, C. R. Modulation of host cell function by Legionella pneumophila type IV effectors. Annu Rev Cell Dev Biol. 26, 261-283 (2010).
- Fernandez-Moreira, E., Helbig, J. H., Swanson, M. S. Membrane vesicles shed by Legionella pneumophila inhibit fusion of phagosomes with lysosomes. Infect Immun. 74 (6), 3285-3295 (2006).
- Galka, F., et al. Proteomic characterization of the whole secretome of Legionella pneumophila and functional analysis of outer membrane vesicles. Infect Immun. 76 (5), 1825-1836 (2008).
- Jager, J., et al. Human lung tissue explants reveal novel interactions during Legionella pneumophila infections. Infect Immun. 82 (1), 275-285 (2014).
- Ellis, T. N., Leiman, S. A., Kuehn, M. J. Naturally produced outer membrane vesicles from Pseudomonas aeruginosa elicit a potent innate immune response via combined sensing of both lipopolysaccharide and protein components. Infect Immun. 78 (9), 3822-3831 (2010).
- Jager, J., Keese, S., Roessle, M., Steinert, M., Schromm, A. B. Fusion of Legionella pneumophila outer membrane vesicles with eukaryotic membrane systems is a mechanism to deliver pathogen factors to host cell membranes. Cell Microbiol. , (2014).
- Jung, A. L., et al. Legionella pneumophila-Derived Outer Membrane Vesicles Promote Bacterial Replication in Macrophages. PLoS Pathog. 12 (4), (2016).
- Jiang, Y., Kong, Q., Roland, K. L., Curtiss, R. Membrane vesicles of Clostridium perfringens type A strains induce innate and adaptive immunity. Int J Med Microbiol. 304 (3-4), 431-443 (2014).
- Whitmire, W. M., Garon, C. F. Specific and nonspecific responses of murine B cells to membrane blebs of Borrelia burgdorferi. Infect Immun. 61 (4), 1460-1467 (1993).
- Ismail, S., Hampton, M. B., Keenan, J. I. Helicobacter pylori outer membrane vesicles modulate proliferation and interleukin-8 production by gastric epithelial cells. Infect Immun. 71 (10), 5670-5675 (2003).
- Jager, J., Steinert, M. Enrichment of outer membrane vesicles shed by Legionella pneumophila. Methods Mol Biol. 954, 225-230 (2013).
- Park, E. K., et al. Optimized THP-1 differentiation is required for the detection of responses to weak stimuli. Inflamm Res. 56 (1), 45-50 (2007).
- Casson, C. N., et al. Human caspase-4 mediates noncanonical inflammasome activation against gram-negative bacterial pathogens. Proc Natl Acad Sci U S A. 112 (21), 6688-6693 (2015).
- Molofsky, A. B., Shetron-Rama, L. M., Swanson, M. S. Components of the Legionella pneumophila flagellar regulon contribute to multiple virulence traits, including lysosome avoidance and macrophage death. Infect Immun. 73 (9), 5720-5734 (2005).
- Isaac, D. T., Laguna, R. K., Valtz, N., Isberg, R. R. MavN is a Legionella pneumophila vacuole-associated protein required for efficient iron acquisition during intracellular growth. Proc Natl Acad Sci U S A. 112 (37), 5208-5217 (2015).
- Zhu, W., et al. Sensing cytosolic RpsL by macrophages induces lysosomal cell death and termination of bacterial infection. PLoS Pathog. 11 (3), 1004704(2015).
- Chutkan, H., Macdonald, I., Manning, A., Kuehn, M. J. Quantitative and qualitative preparations of bacterial outer membrane vesicles. Methods Mol Biol. 966, 259-272 (2013).
- Macdonald, I. A., Kuehn, M. J. Stress-induced outer membrane vesicle production by Pseudomonas aeruginosa. J Bacteriol. 195 (13), 2971-2981 (2013).
- Klimentova, J., Stulik, J. Methods of isolation and purification of outer membrane vesicles from gram-negative bacteria. Microbiol Res. 170, 1-9 (2015).
- Novartis.com. , Available from: https://www.novartis.com/news/media-releases/novartis-bexsero%C2%AE-vaccine-approved-fda-prevention-meningitis-b-leading-cause (2016).
重印与许可
