在多电极阵列上培养的小鼠神经元细胞在接受电刺激后表现出反应增强。本方案演示了如何培养神经元、如何记录其活动,以及如何建立一种训练网络以响应特定刺激模式的实验方案。
本文内容
摘要
摘要
微电极阵列(MEAs)可用于研究药物毒性、设计下一代个性化医疗方案,以及探究神经元培养物中的网络动态。与传统的膜片钳等仅能记录单个细胞活动的方法相比,MEA能够同时记录网络中多个位点的电活动,且无需繁琐地逐个放置电极。此外,在同一实验装置中可轻松实现多种控制与刺激配置,从而能够探索广泛的网络动态行为。其中,研究人员重点关注的关键动态之一是这些 体外 研究的一个关键问题是培养的神经网络在多大程度上表现出可指示学习能力的特性。在微电极阵列(MEAs)上培养的小鼠神经元细胞在接受电刺激诱导的训练后,其反应性会增强。本实验方案展示了如何在微电极阵列上培养神经元细胞;成功对超过95%的培养皿进行记录;建立训练神经网络以响应特定刺激模式的方案;并对实验结果进行数据分选、绘图与解读。文中演示了使用专有系统对神经元培养物进行刺激和记录的过程,同时采用软件包对神经元放电单元进行分类。通过自行设计的图形用户界面,可可视化呈现刺激后时间直方图、簇间间隔、簇发放持续时间,并比较训练前后细胞对刺激的反应。最后,讨论了该研究的代表性结果及未来发展方向。
引言
微电极阵列(MEAs)可用于研究药物毒性、设计下一代个性化医疗方案,以及探究神经元培养物中的网络动态1。与传统方法相比,MEA具有显著优势:例如膜片钳技术仅能记录单个细胞的活动,或玻璃微电极场电位记录仅能在单一位置记录电极周围神经元的胞外反应,而MEA则能够在细胞培养物中同时从多个位点进行记录,且无需繁琐地逐个放置电极。这使得研究人员能够研究培养物中形成网络的细胞群体之间的动态相互作用。此外,电刺激对神经元网络放电模式2,3,4,5以及网络调控6的影响已有充分报道,在同一实验体系中可轻松施加多种电刺激模式和控制条件,从而能够广泛探索各种时空动态特性。
这些研究中一个关键的关注动力学 体外 研究的重点一直是培养的神经网络在多大程度上表现出可指示学习能力的特性7,8,9,10,11,12,13Peixoto 实验室此前已研究过高频训练信号的影响,如 Ruaro 所述 等14,基于接种在微电极阵列上的小鼠神经元网络15在这些实验中,通过电刺激诱导训练后,神经网络表现出反应增强。这种增强的反应被视为一种通过刺激识别形成的学习形式,即在施加特定刺激后,神经网络对刺激变化产生一致性的反应。即, 训练)方案。
本方案演示了如何在微电极阵列(MEA)上培养神经元细胞,成功对超过95%的接种培养皿进行记录,建立训练神经网络以响应特定刺激模式的方案,对单个神经元活动进行分类,绘制直方图,并解读此类实验的结果。文中展示了使用专有系统(见材料表)对神经元培养物进行刺激和记录的方法,以及应用软件包(见材料表)对神经元单元进行分类的技术。通过定制设计的图形用户界面(见材料表),可可视化刺激后时间直方图、簇间间隔和簇发放持续时间,并比较训练方案前后细胞对刺激的响应情况。
方案
所有动物实验均遵循美国国立卫生研究院(NIH)指南和/或公共卫生服务政策中关于实验动物人道护理与使用的相关规定,并在乔治梅森大学经机构动物护理与使用委员会(IACUC)批准的方案下进行。
1. 材料准备
- 将以下材料进行高压灭菌:垂直放置在(2)个500 mL烧杯中的5.75英寸长玻璃移液管、约24张滤纸(直径150 mm,每张剪成8个楔形;孔径大小无要求)、1000 µL带滤芯移液器吸头、200 µL带滤芯移液器吸头、10 µL带滤芯移液器吸头,以及用于洗涤的去离子水(DI水,至少200 mL)。
- 准备试剂和培养基。
- 在生物安全柜中使用无菌技术配制所有试剂和培养基。
- 根据表1配制多聚-L-赖氨酸(PDL)溶液。
- 将PDL与无菌去离子水混合,配制成终浓度为50 µg/mL的溶液。具体操作如下:使用无菌刻度移液管将96 mL无菌去离子水转移至已灭菌的玻璃试剂瓶中。
- 使用无菌刻度移液管向含有PDL的厂家原装小瓶中加入4 mL无菌去离子水,通过吹打溶解PDL。使用同一支移液管将PDL溶液转移至含有96 mL无菌去离子水的玻璃试剂瓶中。
- 盖紧瓶盖后将其移出生物安全柜,并涡旋混匀溶液。在生物安全柜内将溶液分装为每份5 mL;未使用部分于-20 °C冷冻保存。解冻后的PDL溶液可再冷冻一次,若在解冻后再次冷冻前已解冻则应丢弃。
- 根据表2配制层粘连蛋白(laminin)溶液。
- 将层粘连蛋白与PBS混合,配制成终浓度为20 µg/mL的溶液。具体操作如下:使用无菌刻度移液管将49 mL PBS转移至50 mL离心管中。
- 使用无菌刻度移液管向含有适量层粘连蛋白的厂家原装小瓶中加入1 mL PBS,通过吹打溶解层粘连蛋白。使用同一支移液管将层粘连蛋白溶液转移至含有49 mL PBS的50 mL离心管中。
- 盖紧管盖后将其移出生物安全柜,并涡旋混匀溶液。在生物安全柜内将溶液分装为每份5 mL;未使用部分于-20 °C冷冻保存。解冻后的层粘连蛋白溶液不可再次冷冻,任何未使用且已解冻的溶液均应丢弃。
- 根据表3配制保存培养基。
注:保存培养基用于在常氧CO2水平下保存组织长达一个月。该培养基可直接购买(参见材料表),也可按以下通用配方自行配制:常氧CO2细胞保存培养基 + 2%神经细胞培养专用无血清添加剂 + 0.5 mM含稳定型L-谷氨酰胺的细胞培养基(参见材料表)。- 配制10 mL保存培养基时,将10 mL不含CaCl2的胚胎组织保存培养基转移至15 mL离心管中。加入210 µL神经细胞培养专用无血清添加剂和55 µL稳定型L-谷氨酰胺。轻轻颠倒混匀。
- 由于保存培养基对光敏感,需用铝箔包裹15 mL离心管以避光。每管分装2 mL,共分装5管。置于冰箱中可保存最多两周或直至使用,但不得冷冻。
- 根据表4配制DMEM 5/5培养基。
- 解冻神经细胞培养专用无血清添加剂、马血清(HS)、胎牛血清(FBS)和抗坏血酸的分装液。如需控制细菌污染,可解冻青霉素-链霉素(pen-strep)分装液。将各成分依次加入50 mL离心管中。注意移液器吸头不得接触任何表面或物体。
- 在生物安全柜内,将滤器连接至真空管,此时真空泵保持关闭状态。将混合液倒入滤器上部并盖好。开启生物安全柜内的真空泵,使培养基过滤至容器底部。在关闭真空泵前,先断开滤器与真空管的连接。
- 拧紧无菌培养基容器的盖子,做好标记,未使用部分于4 °C保存最多一个月。使用时应在生物安全柜内打开容器,以保持培养基无菌。
- 根据表5配制DMEM+培养基。
- 解冻神经细胞培养专用无血清添加剂和抗坏血酸的分装液(如需要,也解冻青霉素-链霉素)。将各成分依次加入50 mL离心管中。后续步骤重复1.2.5.2–1.2.5.3的操作。
2. 阵列/培养皿准备
注意:本实验所用的微电极阵列(MEA)为60通道阵列,呈8 × 8方阵排列。电极间距为200 µm,每个电极直径为10 µm。导电通路材料为钛,电极本身由氮化钛(TiN)制成。电极周围的玻璃环高度为6 mm,外径为24 mm。使用聚甲醛(POM)制成的盖帽覆盖MEA,并采用一层透气不透液的氟化乙烯丙烯共聚物(FEP)薄膜,以防止记录和刺激过程中发生污染。
- 铺板前一天。
- 通过等离子体处理使未使用的微电极阵列(MEA)具有亲水性;首次使用后通常无需再次处理。确保用于对照培养的玻璃盖玻片也经过等离子体处理。
注意:塑料培养皿(35 mm)也可用作对照组,无需任何预处理。- 使用等离子刻蚀仪在半功率(50 W)下处理40–60秒,腔体压力设定为100–150 mT。
- 立即用去离子水(DI水)充满MEA。将盖玻片浸入盛满去离子水的培养皿中。让去离子水与处理过的表面接触约15分钟。
- 在生物安全柜内,用抽吸法除去去离子水。将MEA加满70%乙醇至边缘。从盛有盖玻片的培养皿中移除去离子水,并加入乙醇直至完全浸没盖玻片。静置10–15分钟。
- 用MEA编号、手术日期、细胞类型和操作者姓名缩写标记所有培养皿和对照皿。然后将每个MEA放入对应的标记培养皿中。
- 将MEA分别放入独立的培养皿中,用真空抽吸法去除乙醇。用无菌去离子水填充MEA以去除残留乙醇。再用真空抽吸法除去去离子水。让MEA在生物安全柜内自然干燥。
- 使用无菌移液枪头,向每个MEA中心加入40–70 µL的50 µg/mL多聚-D-赖氨酸(PDL;高分子量,至少50 kDa),对照组则加入0.2 mL。
注意:切勿让移液枪头接触MEA中心,以免损坏电极。PDL的实际用量取决于表面的亲水程度。 - 在每个培养皿中放入一小块实验室纸巾,并用无菌水润湿,以防PDL过夜蒸发。盖上所有培养皿后移出生物安全柜。将培养皿置于37 °C培养箱中过夜。
- 通过等离子体处理使未使用的微电极阵列(MEA)具有亲水性;首次使用后通常无需再次处理。确保用于对照培养的玻璃盖玻片也经过等离子体处理。
- 铺板当天。
- 铺板当天,解冻一份层粘连蛋白(20 µg/mL);每个MEA需要40–50 µL层粘连蛋白,每个对照皿需要0.2 mL。根据所用MEA和对照组的数量计算所需层粘连蛋白的总体积。
- 将所有培养皿从培养箱转移至生物安全柜内。
- 使用无菌移液管向所有MEA中加入无菌去离子水,静置10–15分钟。用无菌巴斯德吸管吸去去离子水,并重复该过程两次。
- 使用无菌移液枪头,向每个MEA中心加入40–50 µL解冻后的层粘连蛋白,向对照培养皿中加入0.2 mL层粘连蛋白。在生物安全柜中盖好所有MEA和对照培养皿,转移至37 °C培养箱中孵育1小时。
- 使用无菌巴斯德吸管小心抽吸去除MEA中心多余的层粘连蛋白,并在铺细胞前让表面自然干燥。
- 将培养皿留在生物安全柜内,或放回培养箱中,待准备铺细胞时取出。
注意:培养皿可在培养箱中保存至次日。但如果间隔时间更长,建议重新清洗培养皿并从多聚-D-赖氨酸(PDL)步骤(步骤2.1.6)重新开始。
3. 胚胎取出与脑组织提取
- 将 L-15(Leibovitz)培养基倒入 4 个 100 mm 培养皿中。盖好后置于 -20 ℃ °C 冷冻至培养基呈泥状但未完全冻结(约 40-60 分钟)。
- 在解剖前约40分钟至1小时进行此操作。
注意:这将快速冷却胚胎和大脑,使其具有较坚实的质地,从而在取出时不会解体。 - 准备用于取出胚胎的解剖区域。
- 将装有冰的托盘放在水槽附近,并摆放好用于胚胎取出的手术器械和材料。这些材料包括4个含有冷L-15的培养皿 "冰沙" 纸巾、装有70%乙醇的喷雾瓶、钝头镊子 镊子、精细镊子、小型手术剪和大型剪刀(图1).
- 准备用于脑组织提取的解剖区域。
- 将玻璃培养皿倒扣在盛满冰的托盘中。
- 准备好用于脑组织提取的手术器械和材料,包括纸巾、小型手术剪、细双头刮勺、装有70%乙醇的喷雾瓶,以及用于丢弃动物尸体的塑料袋(图2).
- 穿上实验服、佩戴口罩和手套。使用70%乙醇喷洒所有工作表面,包括手套。
注意:尽管此操作无需无菌进行,但最好尽可能降低污染风险。 - 根据美国国立卫生研究院(NIH)指南,对一只E17天的孕鼠实施安乐死16 和/或遵循《公共卫生服务实验室动物人道护理与使用政策》(Public Health Services Policy on the Humane Care and Use of Laboratory Animals),并在机构动物护理与使用委员会批准的动物实验方案(IACUC)下进行,适用于CO2 窒息。务必释放 CO2 在3到5分钟内缓慢向舱内通入气体,以避免引发小鼠的恐慌或不适。
- 将小鼠断头后置于纸巾上,腹面朝上。用70%乙醇喷洒其下腹部。使用小型手术剪,在下腹部皮肤和皮下脂肪处剪出V形切口,切口延伸至胸腔远端,暴露子宫。
- 用镊子小心地在胚胎之间提起子宫。用解剖剪剪除结缔组织,直至整个子宫完全游离。用70%乙醇短暂冲洗子宫以去除血液,然后将其放入盛有冷L-15的4个培养皿之一中。
- 使用精细尖头镊子将每个胚胎从子宫和内部胚囊中分离。确保脐带已被切断,并移除胎盘囊。将分离出的胚胎放入盛有冷L-15的第二个培养皿中。用镊子和剪刀将胚胎去头。用镊子将头部转移至第三个盛有冷L-15的培养皿中,躯体转移至第四个盛有冷L-15的培养皿中。
4. 前额叶皮层切除
- 在生物安全柜中,将一片经高压灭菌的滤纸置于冷藏的玻璃培养皿台上。将单个胚胎头部放在滤纸上。用非惯用手持镊子通过眼眶插入并夹住颅骨。使用虹膜剪去除皮肤及下方的肌肉组织。
- 将虹膜剪的下刃边缘插入颅底。保持下刃紧贴颅骨内表面,远离脑组织,剪开枕骨板,然后沿顶骨板之间的中线继续向前剪。继续沿软骨性额骨板之间的中线向前剪至吻侧。
- 从枕骨板的中心开始,在中心切口的左侧和右侧各做一个垂直切口。
- 用小刮匙小心地从脑腹面与颅底骨板之间滑入,直至完全位于脑下方。将刮匙向上抬起,整个脑组织将完整取出。
- 在滤纸上滴加数滴L-15培养基,防止脑组织粘附于滤纸,然后将脑组织腹面朝下轻轻从解剖刀片滑至滤纸上。使用解剖刀片尖端小心切除嗅球。
- 使用洁净的刮铲,以梯形模式解剖额叶。将组织转移至含有保存液的15 mL离心管中。对剩余胚胎重复上述步骤。每次务必使用新的滤纸楔形片即, 每头使用一片滤纸楔
5. 细胞解离
- 在生物安全柜中,准备 表6 中列出的物品。
- 使用无菌刻度移液管向木瓜蛋白酶小瓶中加入 5 mL DMEM+;可使用预热的 DMEM+ 以更好地溶解木瓜蛋白酶。轻轻吹打混匀溶液。
- 使用无菌微量移液器向 DNase 小瓶中加入 0.5 mL DMEM+。配制 DNase 溶液时避免剧烈吹打,因为 DNase 对剪切力引起的变性敏感。
- 将 2.5 mL 木瓜蛋白酶溶液转移至无菌离心管中,并向同一管中加入 125 µL DNase。通过轻轻倒置盖紧的离心管约 8 次来混匀溶液。
- 使用无菌宽口移液管将组织从含有保存液的管中取出,并放入无菌 35 mm 培养皿中。尽量减少带入的液体量。使用无菌移液管尽可能吸除多余的保存液,但不要移走组织。组织不应漂浮在液体中,但应保持湿润。
- 使用两把无菌手术刀片将组织切碎。使用无菌刻度移液管向培养皿中的碎组织加入 2.5 mL DNase/木瓜蛋白酶混合液。轻轻旋转培养皿,确保所有组织均悬浮于溶液中,未贴附于皿底。将培养皿置于 37 °C 培养箱中孵育 15 分钟。
- 在生物安全柜中,使用无菌宽口转移移液管将全部液体和组织转移至无菌 5 mL 冻存管中。将同一根宽口移液管的管尖靠近管底,缓慢上下吹打 10–15 次进行轻柔吹打解离。
- 吹打过程中避免产生气泡。使用细口移液管重复此操作,直至获得均一悬液。若组织未充分解离,可使用 1,000 µL 移液器继续吹打。
- 向解离后的细胞悬液中加入 2 mL 预热的 DMEM 5/5。在生物安全柜内盖紧离心管盖,轻轻倒置混匀。在室温(20–25 °C)下以约 573 × g 离心 5 分钟。
- 在生物安全柜中,使用无菌刻度移液管小心吸除并弃去所有上清液,避免扰动沉淀。使用无菌移液管向管中沉淀加入 1 mL 预热的 DMEM 5/5 以重悬细胞。使用无菌细口转移移液管轻柔吹打上下数次,直至悬液均匀。
注意:吹打过程中避免产生气泡。若收集的组织量极少,仅加入 0.5 mL DMEM 5/5。 - 在生物安全柜内,使用无菌移液管将 10 µL 细胞悬液转移至微量离心管中。在生物安全柜外,向该微量离心管中的 10 µL 细胞悬液加入 10 µL 台盼蓝。
注意:此步骤无需无菌操作。 - 取 10 µL 台盼蓝染色后的细胞悬液,加入一次性血细胞计数板芯片中,用于细胞计数。
6. 铺板细胞
- 在生物安全柜中,使用无菌移液器将50 µL细胞悬液转移至每个阵列及每个对照培养皿的中心。每个培养皿使用一个移液器吸头。确保将细胞准确置于阵列的正中心。用无菌水重新润湿培养皿中的实验用纸巾,或向每个培养皿中放入新的纸巾。盖上培养皿盖。
- 将盖好的培养皿放入设定为37 °C和10% CO2的培养箱中,孵育3-4小时。
- 在生物安全柜中,轻轻向每个MEA中加入1 mL预热的DMEM 5/5培养基。
注意:添加培养基时避免将细胞从阵列中心冲走(非常重要!)。使用无菌移液器,极其小心地沿培养皿内壁边缘逐滴加入。 - 在每个MEA上安装带有透气性FEP膜的盖子。将其放回培养箱中培养两天。
注意:盖子可防止污染和蒸发。操作时应遵循无菌技术,在将盖子装到MEA上前,先在生物安全柜中用100%乙醇将盖子干燥。培养物必须在生物安全柜内加盖,且在整个实验过程中始终保持加盖状态。
7. 培养物的维持
- 两天后,用预热的 DMEM+ 完全更换培养基。
- 每次仅从培养箱中取出少量培养皿至生物安全柜中,以避免培养物暴露时间过长而受到应激。
- 使用无菌的 1 mL 微量移液器,将吸头轻轻贴附在培养皿内壁,避免触碰中央的细胞,吸出全部培养基。每个培养皿使用单独的吸头,以防止交叉污染。
- 使用无菌微量移液器加入 1 mL 预热的 DMEM+,将吸头轻轻贴附在培养皿内壁进行加样。
- 每周 2–3 次使用预热的 DMEM+ 进行 50% 培养基更换,每次换液间隔不超过 4 天。
- 使用无菌 1 mL 微量移液器从培养皿中吸出 500 µL 培养基,再使用无菌微量移液器加入 500 µL 预热的 DMEM+。
8. 目视检查与记录
- 每隔一天在显微镜下检查培养皿样品,观察微电极阵列上的细胞覆盖情况(使用 4X 和 10X 放大倍数)以及是否存在细菌或真菌污染(使用 20X 放大倍数)。
注意:图3a 展示了细胞覆盖良好的示例,而 图3b 展示了细胞密度较差的培养情况。 - 铺板两周后,测试部分 MEA 培养皿的自发活动。按照以下方法记录 MEA 信号,持续 3–5 分钟。若存在电活动,则可检测到尖峰信号(图4)。
注意:何时开始测试由实验者根据实验类型和所研究的假设自行决定。- 为记录 MEA 中的电活动,请使用以下设备:电源、放大器、探头/前置放大器、温度控制器和刺激发生器(参见材料表及 图5)。
- 在将培养物从培养箱中取出前,连接温度控制器,并按照制造商说明打开电源,使前置放大器的加热底板升温至 35 °C。
- 将带盖的培养皿放入前置放大器中,使 MEA 孔中的黑线与参考地对齐。确保前置放大器的插针正确对接,顶部已固定,并且培养皿盖仍处于盖紧状态。
- 将培养物放入系统后,在数据采集软件中取消勾选“Change MEA”选项(软件名称和用户指南参见材料表)。此外,在进行任何记录前,请取消勾选标有“Blanking”的复选框。
- 培养物放入系统后,在“MEA_Select”中选择“Download”。继续操作前,请确认程序显示“Download OK”。
- 在软件环境中点击“Start”以开始信号可视化。在主窗口中选择:“Spikes” → “Detection” → “Automatic”,将“Std Dev”值更改为“5”,然后点击“refresh”以重置阈值。
注意:“Spikes”窗口显示的是超过阈值的尖峰信号。 - 在主窗口中选择“Recorder” → “Recorder” → “Browse”,更改路径和文件名以标识日期、时间、培养皿编号和实验名称。设置时间限制(例如,5 分钟)。点击“Stop”、“Record”和“Play”。注意记录将在设定时间后自动停止。
- 打开刺激软件。选择“Recorder” → “Recorder” → “Browse”以创建文件并设置时间限制。点击“Stop”、“Record”和“Play”再次开始记录。点击刺激软件上的“Download and Start”按钮,以向培养皿施加刺激。
- 在软件控制界面中选择“Change MEA”按钮以更换培养皿。
注意:若无维持培养物周围 CO2 环境的装置,每次将培养物置于培养箱外的时间不得超过 30 分钟。如需更长时间的记录,请使用市售的 CO2 供应适配器。
9. 训练神经网络
注意:图6展示了下文所述步骤9.1-9.3的概览。
- 从细胞培养物中记录5分钟的基础自发活动(如步骤8所述)。在建立基础活动后,通过选定的刺激电极施加持续5分钟的训练前探测刺激,刺激参数为0.5 Hz的双相脉冲,脉冲持续时间为200 µs,脉冲幅度为900 mV(图7a),如图8所示(有关如何选择刺激电极的详细信息,请参见材料表中的软件手册)。
- 完成训练前刺激后,使用与探测刺激相同的电极对网络施加“训练”方案。按照Hamilton et al.15所述,每2秒递送一次高频脉冲序列(图7b和图7c)。
注意:训练信号由40组脉冲序列组成。每组脉冲序列包含100个双相脉冲,脉冲间隔为4 ms,脉冲持续时间为200 µs,脉冲幅度为900 mV。 - 完成训练阶段后,对细胞施加5分钟的训练后刺激,刺激参数与训练前刺激相同。训练后刺激结束后,记录网络5分钟的刺激后自发活动(如步骤8所述)。
- 使用一组独立的MEA作为对照组,以排除网络响应因自然波动或系统非平稳性引起的变化。对这些对照组实施上述相同的实验方案,唯一区别是对照组接受假训练阶段,即不施加实际的训练信号。
10. 数据分析
注意:数据文件将被保存,随后使用专有的排序软件(参见材料表)将其分类为神经元单元。使用自定义的图形用户界面(GUI)加载神经元单元,并分析培养物中的活动模式、簇间间隔、簇持续时间以及刺激后时间直方图(PSTH)(参见材料表)。PSTH 是最重要的分析图,因其以可变长度的时间窗显示网络活动,从而直观呈现网络对所施加刺激的响应情况。
- 使用专有排序软件将 .mcd 数据文件转换为 .plx 格式(参见材料表中的软件名称和用户指南)。在同一程序中将 .plx 文件导出为新的 .plx 文件。将通道分类为神经元单元(图9)。完成分类后,将数据导出为 .nex 文件。
- 在相应软件中打开 .nex 文件(参见 材料表),并将其保存为 .mat 文件,以便使用定制的图形用户界面(GUI)进行分析,该界面可免费获取(参见 材料表)。
注:图形用户界面(参见材料表)根据用户输入(即群体PSTH、偏差平均PSTH或单通道PSTH)绘制刺激后时间直方图(PSTH),从而概览刺激实验,并实现刺激前后文件的即时比较。它还绘制初始与最终的PSTH,用于比较网络对前6次和后6次刺激的响应。该GUI还具备其他多种功能,可分析刺激文件及自发活动文件中的放电率、峰间间隔、每簇峰数量、簇间间隔和簇持续时间。 - 首先,选择一个包含峰电位序列的 .mat 文件,以及一个包含刺激伪迹的变量;脚本将分析数据,主GUI界面将弹出,右侧显示平均PSTH图(图10)。
- 点击活动电极按钮,查看单个PSTH(蓝色)与平均PSTH(红色)的对比情况。
注:活动电极将以热图形式着色,颜色越红表示PSTH峰值越高,说明对刺激的响应越强。 - 使用弹出菜单选择分析选项。选择“偏差平均”按钮以选定电极子集,并绘制该子集的平均图;这有助于比较培养物中子网络的行为。
注:通过弹出菜单可选择多种不同的分析选项,所有选项均在软件的“帮助”按钮中有详细说明。 - 选择“保存图像”按钮,将当前显示的图像以高分辨率JPEG格式保存。选择“数据表”按钮,将数据导出至电子表格。
- 点击活动电极按钮,查看单个PSTH(蓝色)与平均PSTH(红色)的对比情况。
结果
采用此处所述方法(图11),将E17小鼠神经元细胞接种于60通道MEA上,并培养至细胞在阵列表面形成健康、致密的单层细胞层(图12和图3a)。在10% CO2、37 °C条件下培养3周后,使用商用记录系统(见材料表)检测培养物是否出现自发性电活动。记录过程中使用温控装置将温度维持在37 °C,因为温度会影响神经元的电活动和放电频率。
检测活性
自发性活跃的神经网络通常表现出不同的信号模式。一个平均活跃的培养物可在约40%的电极上记录到活动。在这些活跃的电极位点中,近一半可记录到自发信号,放电频率范围为5 - 10 Hz。图4a展示了一个典型的自发活动的点阵图。刻度线表示在20秒时间窗口内,从9个活跃电极记录的动作电位时间戳,数据采集速率为25 kHz,带通滤波范围为300 Hz至3 kHz。图4b显示了在分选过程之前8次活动爆发期间的基线噪声以及滤波后的原始细胞外信号。为了将动作电位与噪声分离,各通道的阈值设定为基线噪声标准差的5倍,并在500 ms时间窗口内进行计算15。
在分析之前,使用k-means算法和主成分分析对每个电极记录的脉冲信号进行离线分类,以区分生理活动与刺激伪迹。被识别为生理反应的信号被归为一组,以在每个电极上形成群体反应图13 和 图9)15.
通过电刺激训练神经网络
使用刺激发生器通过MEA电极直接对培养物施加电刺激来训练网络(参见材料表)。在本组代表性结果中,采用由13个电极组成的“L”形配置(图8),尽管也可应用许多其他配置。探测和训练刺激的参数基于Ruaro et al.14中定义的参数。
首先记录刺激前5分钟的自发活动以建立基线。基线确立后,进行5分钟训练前探针刺激,该刺激由0.5 Hz的双相脉冲组成 200 µs 脉冲持续时间和 900 mV 脉冲幅度(图7a) 通过选定的刺激位点给予即, “L”形)。随后,使用同一组电极每2秒向网络施加一次训练程序。训练信号由40组脉冲序列组成,每组包含100个双相脉冲,脉冲间期为4 ms, 200 µs 脉冲持续时间,以及 900 mV 的脉冲幅度(图7b 和 图7c随后进行5分钟的训练后阶段,类似于训练前刺激阶段。最后,该方案以5分钟的刺激后自发活动记录结束。
为了排除网络响应的自然波动,相同的实验方案也应用于对照组培养物。然而,对照组实验方案的唯一区别在于实施了假训练阶段,在此期间未施加任何实际的训练信号。
对数据集(即训练组与对照组)进行单因素方差分析(one-way ANOVA),以“训练”作为组间因素,以潜伏期作为组内因素。若发现显著交互作用,则进行Tukey事后检验。结果显示,在刺激后20 ms内存在训练前反应,但首次反应后的活动范围不一致。然而,训练后的活动不仅在刺激后前20 ms内出现反应(与训练前观察到的现象一致),还在刺激后30–50 ms内表现出显著的活动增强(图14 和 图15)15。此外,“放电频率”与“刺激后时间”之间,以及“放电可靠性”与“刺激后时间”之间均存在统计学上显著的相关性。“放电可靠性”可定义为神经网络对刺激产生反应的概率,其中每次刺激引发的反应最大值为1。图16 显示,在刺激后20–50 ms时间范围内,训练组网络的放电频率比对照组增加近50%,放电可靠性则提高30–50%。这些结果表明,训练从根本上改变了神经网络的动力学特性。
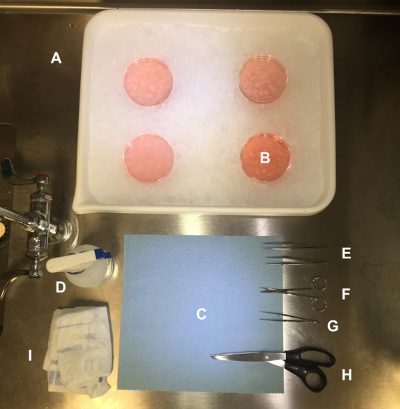
图 1:用于胚胎取出的工具和材料。 (A)装满冰的托盘。(B)盛有低温L-15“冰泥”的培养皿。(C)纸巾。(D)装有70%乙醇的喷雾瓶。(E)精细镊子(×2)。(F)小型手术剪刀。(G)钝头持针钳。(H)大型剪刀。(I)尸体袋。请点击此处查看该图的放大版本。

图2:用于脑组织提取的工具与材料。(A)装有冰的托盘。(B)含有胚胎头部的培养皿。(C)用铝箔包裹并装有保存液的离心管。(D)倒置的玻璃培养皿。(E)经高压灭菌的滤纸。(F)装有70%乙醇的烧杯。(G)塑料移液管。(H)虹膜剪刀。(I)精细镊子。(J)细双头刮勺。(K)纸巾。请点击此处查看该图的放大版本。

图3:最佳 与 非最佳培养条件 (A) 显示细胞在阵列上形成健康的单层,与 (B),其中细胞增殖较差。 请点击此处以查看此图的放大版本。

图 4:自发性活动的代表性结果。 (A)自发性活动的代表性点阵图。刻度线表示在20秒时间窗口内,以25 kHz的采样率和300 Hz至3 kHz的带通滤波范围,从9个活跃电极记录到的动作电位。(B)来自一个活跃位点的代表性滤波后细胞外动作电位。该图改编自参考文献15。请点击此处查看此图的放大版本。

图 5:记录装置示意图。(A)刺激信号发生器。(B)温度控制器。(C)电源。(D)放大器。(E)前置放大器/头级放大器。(F)带盖的多电极阵列(MEA)。请点击此处查看该图的放大版本。

图6:电刺激训练方案的示意图。 首先记录5分钟的初始基线,随后进行3分钟的探针刺激记录。接着施加90秒的强直刺激(此阶段不记录)。之后进行第二次3分钟的探针刺激并予以记录,最后再记录5分钟的最终基线。请点击此处查看该图的放大版本。

图7:探测刺激与训练信号参数。(A)探测刺激由±900 mV的双相脉冲组成,以0.5 Hz的频率施加。(B)脉冲串由100个±900 mV的双相脉冲组成,频率为250 Hz。(C)训练信号由每2秒施加一次的40个脉冲串组成。本图修改自参考文献15。请点击此处查看此图的放大版本。

图8:“L”形构型的示意图。 方格代表多电极阵列(MEA)中的各个电极。蓝色方格表示用于刺激的电极,其余所有电极则用于记录。该图改编自参考文献15。 请点击此处查看此图的放大版本。

图 9:区分神经信号单元与噪声及刺激伪迹。 本图中上方多个图(A-C)展示了噪声示例,以阐明什么是“单元信号”。(D)此处仅检测到黄色波形为有效单元信号。(E)仅绿色波形为有效单元信号。(F)该通道记录所用的电极同时用于刺激,由于放大器饱和,无法合理检测到任何单元信号。请点击此处查看该图的放大版本。

图10: 刺激后时间直方图(PSTH)。 图形用户界面(参见 材料表根据用户输入绘制PSTH图即, 群体PSTH、有偏平均PSTH或单通道PSTH),以便概览刺激实验,并实现刺激后与刺激前文件的即时比较。它还可绘制初始与最终PSTH的对比图,用于比较网络对前6次和后6次刺激的响应。该图形用户界面还具备其他多种功能,可分析刺激文件及自发活动文件的放电率、峰间间隔、每簇放电次数、簇间间隔和簇放电持续时间。 请点击此处以查看此图的放大版本。

图11:细胞制备与接种流程概览。(A)使用CO2处死妊娠E17天的小鼠。(B)小鼠被断头后取出子宫。(C)将胚胎取出并进行断头处理。(D)从每个胚胎中取出脑组织,并切除额叶。(E)将细胞解离。(F)将解离后的细胞悬浮于培养基中。(G)将悬浮的细胞接种至60通道多电极阵列(MEAs)上。请点击此处查看该图的高清版本。

图12:接种在微电极阵列上的神经元培养物。 将小鼠胚胎神经元接种在60通道的微电极阵列(MEA)上,可同时通过每个电极记录神经网络中的神经元活动。(图修改自参考文献15)。请点击此处查看该图的放大版本。

图13:用于对各通道波形进行分选的分选程序。 分选程序(见材料表)加载数据文件,并显示每个通道最初获取的所有单元。用户可选择多种方法之一将信号分配给特定单元。在本示例中,选择了k-means聚类算法,并识别出黄色单元(在底部窗口中标记为“unit a”)。随后使用另一个程序(见材料表)将.nex文件导出为.mat文件,该文件作为定制的图形用户界面(GUI)的输入文件(见材料表和图10)。请点击此处查看此图的放大版本。

图14:训练一段时间后,网络活动在刺激下的改变。 来自八个电极的代表性点阵图。垂直的红线表示刺激发生的时间,黑色刻度线表示动作电位。在训练前(A)阶段,各通道对刺激脉冲产生即时反应。在训练后(B)阶段,网络不仅表现出对刺激的即时反应,还呈现出更持久的活动响应15。 请点击此处查看该图的放大版本。

图15:训练后的神经网络具有显著改变的放电频率。 对照组神经网络的放电频率通过计算每次刺激后50 ms时间窗内的总放电次数并除以该时间段得到。图中显示了12个训练组和10个对照组神经网络的平均值(误差条表示均值的标准误)。星号(*)表示两组数据之间存在统计学差异(p值 <0.05)。本图修改自参考文献15。 请点击此处查看此图的放大版本。

图16:训练后神经网络中的突触介导反应发生显著改变。(A)以10 ms为时间窗测量并相对于对照组神经网络归一化的放电可靠性,在电极附近神经元的直接激活阶段(0–20 ms)未见变化,因此该时间段内对照组与训练组之间无统计学差异。另一方面,较长潜伏期的反应(30–50 ms)由突触介导,表明该方法相较于上方的图15能更详细地分析可靠性。(B)群体放电频率的变化趋势与可靠性一致:在直接激活阶段(0–20 ms)未见显著改变,而在长期反应阶段(30–50 ms)则存在统计学显著差异。该结果与前一图的平均结果一致15。误差条表示均值的标准误,基于10个对照神经网络和12个训练神经网络计算得出。(*)p值 <0.05;(**)p值 <0.001。本图改编自参考文献15。请点击此处查看本图的放大版本。
| 数量 | 物品 |
| 1 | 已灭菌玻璃试剂瓶(至少 100 mL 规格) |
| 20 | 15 mL 无菌离心管 |
| 1 | 10 mL 无菌刻度移液管 |
| 4 | 25 mL 无菌刻度移液管 |
| 2 | 50 mL 无菌刻度移液管 |
| 1 | 离心管架 |
| 150 mL | 无菌去离子水 |
| 5 mg | 聚-D-赖氨酸小瓶 |
表1: PDL制备——材料与试剂清单。
| 数量 | 物品 |
| 1 | 50 mL 无菌离心管 |
| 10 | 15 mL 无菌离心管 |
| 2 | 1 mL 无菌刻度移液管 |
| 2 | 50 mL 无菌刻度移液管 |
| 1 | 离心管架 |
| 1 mL | 磷酸盐缓冲液(PBS) |
| 1 mg | Laminin |
表2: 层粘连蛋白制备——材料与试剂清单。
| 数量 | 物品 |
| 1 | 已灭菌玻璃试剂瓶(至少 100 mL 规格) |
| 20 | 15 mL 无菌离心管 |
| 1 | 10 mL 无菌血清移液管 |
| 4 | 25 mL 无菌血清移液管 |
| 2 | 50 mL 无菌血清移液管 |
| 1 | 离心管架 |
| 150 mL | 无菌去离子水 |
| 5 mg | 聚-D-赖氨酸小瓶 |
表3:储存液制备——材料与试剂列表。
| 数量 | 物品 |
| 44 mL | 含稳定型 L-谷氨酰胺的 DMEM 培养基(见材料表) |
| 1 mL | 神经细胞培养用无血清添加剂(见材料表) |
| 2.5 mL | 马血清 |
| 100 µL | 抗坏血酸 [4 mg/mL] |
| 2.5 mL | 胎牛血清 (FBS) |
| 0.5 mL | 青霉素-链霉素(可选) |
| 1 | 50 mL 无菌离心管 |
| 2 | 25 mL 无菌血清移液管 |
| 2 | 10 mL 无菌血清移液管 |
| 2 | 1 mL 无菌血清移液管 |
| 1 | 250 mL 滤器 |
表4:DMEM 5/5 培养基制备——材料与试剂清单。
| 数量 | 物品 |
| 49 mL | 含稳定型 L-谷氨酰胺的 DMEM 培养基(参见材料表) |
| 1 mL | 神经细胞培养用无血清添加剂(参见材料表) |
| 100 µL | 抗坏血酸 [4 mg/mL] |
| 0.5 mL | 青霉素-链霉素(可选) |
| 1 | 50 mL 无菌离心管 |
| 2 | 25 mL 无菌血清移液管 |
| 2 | 1 mL 无菌血清移液管 |
| 1 | 250 mL 滤器 |
表5:DMEM+ 培养基配制——材料与试剂列表。
| 数量 | 物品 |
| 1 | Papain 140 U/瓶 |
| 1 | Dnase 1,260 U/瓶 |
| 7 mL | DMEM+(预冷) |
| 5 mL | DMEM 5/5(预热) |
| 10 µL | 台盼蓝 |
| 2 | 手术刀片 |
| 1 | 35 mm 无菌培养皿 |
| 4 | 15 mL 无菌离心管 |
| 2 | 5 mL 无菌冻存管 |
| 2 | 2 mL 无菌冻存管 |
| 1 | 50 mL 无菌离心管 |
| 1 | 微量离心管 |
| 2 | 大口径移液管 |
| 3 | 小口径移液管 |
| 5 | 2 mL 无菌刻度移液管 |
| 5 | 1 mL 无菌刻度移液管 |
| 2 | 10 µL 无菌微量移液器吸头 |
| 1 | 1000 µL 无菌微量移液器吸头 |
| 1 | 血细胞计数板芯片 |
表6:细胞解离——材料与试剂列表。
讨论
本方案中概述的步骤为初学者提供了足够的细节,以在其自身的MEA上接种神经元培养物并记录网络活动。本方案将有助于确保培养物正确贴壁,在电极阵列上形成一层连续的细胞覆盖层,并在数月内保持健康且无污染。
尽管最好遵循方案的全部步骤,但整个过程中有一些步骤对成功的结果至关重要。在整个操作过程中必须使用无菌技术,以防止培养物受到污染。新的多电极阵列(MEA)必须按照方案所述处理为亲水性,否则将导致细胞贴壁不良。在细胞解离过程中避免剧烈吹打和气泡产生,可减少接种时受损细胞的数量,从而获得更高且更健康的细胞产量。在首次换液后,需从DMEM 5/5培养基更换为DMEM+培养基,这一点也很重要。DMEM 5/5含有马血清,若持续使用会导致胶质细胞在培养物中占主导地位,从而引起神经元活性低下,尽管此时培养物外观可能仍显正常17。按时换液并保持适宜的培养条件同样至关重要。
在MEA上接种细胞培养物涉及诸多变量,可能导致结果不理想。尽管目标是获得完美的 "地毯" 细胞,若未妥善处理上述关键步骤,将导致细胞成熟度差或发生污染。细胞贴壁不良(不同于细胞成熟度差)也是一个需要关注的问题。其可能由多种因素引起,包括铺板前微电极阵列(MEA)制备不当或使用了陈旧的培养基。若使用含有稳定型L-谷氨酰胺和神经细胞培养用无血清添加剂的陈旧培养基(参见 材料 表格使用该培养基时,细胞最初会贴壁,但约两周后会漂浮脱落。如果细菌污染问题持续存在,可在培养基中添加抗生素,如氨苄青霉素或青霉素-链霉素(pen-strep)。此外,也有可用的杀菌剂用于处理真菌污染。这些是影响培养结果的一些常见变量,还有许多其他因素需在长期实践和经验积累后才会遇到。
与玻璃微电极技术相比,该方法在研究神经网络动态和药理学反应方面具有显著优势。它能够实现多种不同的时空刺激模式,并允许同时记录来自多个区域的神经元反应。先前的研究团队已采用类似本文中所述的实验方案,取得了有趣的研究成果18。由于培养物可维持数周甚至数月,且可对同一培养物进行重复利用,因此该技术还支持在相同神经网络上进行多次时间序列实验。
然而,该技术也存在局限性。多电极阵列(MEAs)属于非侵入性技术,因此只能记录细胞外活动,而无法实现膜片钳或微管电极细胞内记录。此外,由于阵列中的每个电极均被多个细胞覆盖,因而无法分辨单个神经元的活动。相反,由于这些是 体外 培养物无法完全再现大脑网络的结构特性。此外,若无某种提供 CO₂ 的机制,每次记录活动的时间通常无法超过 30 分钟。2 为细胞提供维持其pH平衡的环境。
一旦掌握该技术,便可探索结合或不结合电刺激的药理学干预手段。同时可设计并测试用于研究神经网络中学习与记忆形成的新型方案,以及针对海马体或脊髓网络的实验方案。已有文献报道过神经网络刺激与训练的相关方案,其中部分方案已被进一步优化和发展为 体内 方案,例如 "选择性适应" 由 Eytan 提出 等19测试了多种方案,但此处仅展示对 Ruaro 于 2005 年提出的破伤风程序进行修改后的结果。14,20.
披露
作者无任何利益冲突需要披露。
致谢
本工作由美国国家科学基金会资助项目 CMMI-1300007 支持。我们谨向乔治梅森大学实验室的前任成员致以感谢,他们在过去五年中协助设计了这些实验方案,并负责细胞培养的维护工作:Joseph J. Pancrazio 博士、Hamid Charkhkar 博士、Gretchen Knaack 博士、Franz Hamilton 博士、Michael Maquera 和 Robert Graham。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 抗坏血酸 | Sigma Aldrich | A4403 | 配制成 4 mg/mL 的分装液 |
| B-27 | Invitrogen | 17504-044 | 神经细胞培养用无血清添加剂。配制成 1 mL 分装液后冷冻保存 |
| 烧杯 - 玻璃 - 100 mL | VWR | 13912-160 | |
| 烧杯 - 玻璃 - 500 mL | VWR | 10754-956 | |
| 钝头镊子 | World Precision Instruments | 500365-G | |
| 冻存管 - 无菌,2 mL | Fisher Scientific | 10-500-26 | |
| 冻存管 - 无菌,5 mL | Fisher Scientific | 10-500-27 | |
| 含 Glutamax 的 DMEM 培养基 | Gibco Life Technology | 10569-010 | 含有稳定型 L-谷氨酰胺的细胞培养基 |
| DNase | Worthington Biochemical | LK003172 | |
| 乙醇 | Fisher Scientific | 04-355-451 | |
| 胎牛血清(FBS) | ATCC | 30-2030 | |
| 细头镊子 | World Precision Instruments | 501324-G | |
| 玻璃移液管 | VWR | 14673-010 | |
| GlutaMAX -- I (100X) | Gibco Life Technology | 35050-061 | 用作补充剂的稳定型 L-谷氨酰胺 |
| 血细胞计数板芯片 | Fisher Scientific | 22-600-101 | |
| Hibernate EB 完全培养基 | BrainBits | D00118 | 常温 CO2 细胞保存培养基 |
| 马血清 | Atlanta Biologicals | S12195H | |
| 层粘连蛋白 | Sigma Aldrich | L2020-1MG | |
| MCS 滤波放大器 | MultiChannel System | FA60SBC | |
| MCS 头级放大器/前置放大器 | MultiChannel System | MEA1060-INV | |
| MCS 微电极阵列 | MultiChannel System | 60MEA200/10iR-ITO | |
| MCS 电源 | MultiChannel System | PS20W | |
| MCS 信号分配器 | MultiChannel System | SDMEA | |
| MCS 刺激发生器 | MultiChannel System | STG4002 | |
| MCS 温度控制器 | MultiChannel System | TC02 | |
| 培养基储存瓶 - 玻璃,500 mL | VWR | 10754-818 | 高压灭菌 |
| 微量离心管 - 0.4 mL | Thermo Fisher | 3485 | 高压灭菌 |
| 微量离心管 - 2 mL | Thermo Fisher | 3434ECONO | 高压灭菌 |
| 移液器吸头 - 10 μL | VWR | 37001-166 | 高压灭菌 |
| 移液器吸头 - 1,000 μL | VWR | 13503-464 | 高压灭菌 |
| 移液器吸头 - 200 μL | VWR | 37001-596 | 高压灭菌 |
| 移液器 - 10 μL | Thermo Fisher | 4641170N | |
| 移液器 - 1,000 μL | Thermo Fisher | 4641210N | |
| 移液器 - 200 μL | Thermo Fisher | 4641230N | |
| 木瓜蛋白酶 - 0.22 微米滤过 | Worthington Biochemical | LK003178 | |
| 青霉素-链霉素溶液(Pen Strep) | Thermo Fisher | 15070063 | |
| 培养皿 - 100 mm 一次性 | Fisher Scientific | 08-757-100D | |
| 培养皿 - 100 mm 玻璃 | VWR | 10754-788 | |
| 培养皿 - 35 mm | Fisher Scientific | 08-757-100A | |
| 磷酸盐缓冲液(PBS)(1x) | Corning | 21-040-CV | |
| 等离子清洗系统 | Plasma Etch, Inc. | PE-50 | |
| 聚-D-赖氨酸氢溴酸盐(PDL) | Sigma Aldrich | P6407-5MG | |
| 聚乙烯锥形(离心)管 - 15 mL | Fisher Scientific | 05-527-90 | |
| 聚丙烯锥形(离心)管 - 50 mL | Falcon | 352070 | |
| 手术口罩 | Imco | 1530-imc | |
| 丙酮酸钠 | Sigma Aldrich | P4562-5G | |
| 手术刀片 | World Precision Instruments | 500237-G | |
| 虹膜剪 | World Precision Instruments | 14111-G | |
| 大剪刀 | World Precision Instruments | 14214 | |
| 小手术剪 | World Precision Instruments | 501733-G | |
| 血清移液管 - 无菌,1 mL | VWR | 89130-892 | |
| 血清移液管 - 无菌,2 mL | VWR | 89130-894 | |
| 血清移液管 - 无菌,25 mL | VWR | 89130-900 | |
| 血清移液管 - 无菌,50 mL | VWR | 89130-902 | |
| 软件:Matlab GUI | Peixoto Lab | npeixoto@gmu.edu | 用于分析 .mat 文件。 可免费索取。 请发送邮件至 npeixoto@gmu.edu 获取副本。 |
| 软件:MCS MC_Rack | MultiChannel System | N/A | 用于数据采集 |
| 软件:NeuroExplorer | Plexon | http://www.plexon.com/products/neuroexplorer | 用于将 .nex 文件转换为 .mat 文件 |
| 软件:Offline Sorter | Plexon | http://www.plexon.com/products/offline-sorter | 用于神经元峰电位分选,并将数据文件转换为 .plx 格式,再转为 .nex 格式 |
| 软件手册:MCS MC_Rack | MultiChannel System | https://www.multichannelsystems.com/sites/multichannelsystems.com/files/documents/manuals/MC_Rack_Manual.pdf | |
| 软件手册:NeuroExplorer | Plexon | https://www.neuroexplorer.com/downloads/Nex3Manual.pdf | |
| 软件手册:Offline Sorter | Plexon | www.plexon.com/system/files/downloads/Offline%20Sorter%20v2.8%20Manual.pdf | |
| 刮勺 - 小型双头 | World Precision Instruments | 503440 | |
| Stericup 0.22 µm 孔径滤器 - 250 mL | Millipore | SCGVU02RE | |
| 转移移液管 - 大孔径 | Thermo Fisher | 335-1S | |
| 转移移液管 - 小孔径 | Thermo Fisher | 242-1S | |
| 台盼蓝 | Sigma Aldrich | T8154-20ML | |
| Whatman 滤纸 | Whatman | 1442 150 | 裁成 8 个扇形片,置于玻璃培养皿中高压灭菌 |
参考文献
- Charkhkar, H., Frewin, C., et al. Use of cortical neuronal networks for in vitro material biocompatibility testing. Biosens Bioelectron. 53, 316-323 (2014).
- Bologna, L. L., Nieus, T., Tedesco, M., Chiappalone, M., Benfenati, F., Martinoia, S. Low-frequency stimulation enhances burst activity in cortical cultures during development. Neuroscience. 165 (3), 692-704 (2010).
- Fröhlich, F., McCormick, D. A. Endogenous electric fields may guide neocortical network activity. Neuron. 67 (1), 129-143 (2010).
- Anastassiou, C. A., Perin, R., Markram, H., Koch, C. Ephaptic coupling of cortical neurons. Nature Neurosci. 14 (2), 217-223 (2011).
- Ozen, S., Sirota, A., et al. Transcranial electric stimulation entrains cortical neuronal populations in rats. J. Neurosci. 30 (34), 11476-11485 (2010).
- Wagenaar, D. A., Madhavan, R., Pine, J., Potter, S. M. Controlling bursting in cortical cultures with closed-loop multi-electrode stimulation. J. Neurosci. 25 (3), 680-688 (2005).
- Shahaf, G., Marom, S. Learning in networks of cortical neurons. J. Neurosci. 21 (22), 8782-8788 (2001).
- Marom, S., Shahaf, G. Development, learning and memory in large random networks of cortical neurons: lessons beyond anatomy. Q Rev Biophys. 35 (1), 63-87 (2002).
- Marom, S., Eytan, D. Learning in ex-vivo developing networks of cortical neurons. Prog Brain Res. 147, 189-199 (2005).
- Li, Y., Zhou, W., Li, X., Zeng, S., Luo, Q. Dynamics of learning in cultured neuronal networks with antagonists of glutamate receptors. Biophys. J. 93 (12), 4151-4158 (2007).
- Li, Y., Zhou, W., Li, X., Zeng, S., Liu, M., Luo, Q. Characterization of synchronized bursts in cultured hippocampal neuronal networks with learning training on microelectrode arrays. Biosens Bioelectron. 22 (12), 2976-2982 (2007).
- Chiappalone, M., Massobrio, P., Martinoia, S. Network plasticity in cortical assemblies. Eur. J. Neurosci. 28 (1), 221-237 (2008).
- le Feber, J., Stegenga, J., Rutten, W. L. C. The effect of slow electrical stimuli to achieve learning in cultured networks of rat cortical neurons. PloS one. 5 (1), 8871(2010).
- Ruaro, M. E., Bonifazi, P., Torre, V. Toward the neurocomputer: image processing and pattern recognition with neuronal cultures. IEEE Trans Biomed Eng. 52 (3), 371-383 (2005).
- Hamilton, F., Graham, R., et al. Time-Dependent Increase in Network Response to Stimulation. PloS one. 10 (11), 0142399(2015).
- Guidelines for Euthanasia of Rodents Using Carbon Dioxide. , Available from: https://oacu.oir.nih.gov/sites/default/files/uploads/arac-guidelines/rodent_euthanasia_adult.pdf (2016).
- Banker, G., Goslin, K. Culturing Nerve Cells: Business Source. , MIT Press. Cambridge. (1998).
- Gullo, F., Maffezzoli, A., Dossi, E., Wanke, E. Short-latency cross-and autocorrelation identify clusters of interacting cortical neurons recorded from multi-electrode array. J. Neurosci. Methods. 181, 186-198 (2009).
- Eytan, D., Brenner, N., Marom, S. Selective Adaptation in Networks of Cortical Neurons. J. Neurosci. 23 (28), (2003).
- Bonifazi, P., Ruaro, M. E., Torre, V. Statistical properties of information processing in neuronal networks. Eur. J. Neurosci. 22 (11), 2953-2964 (2005).
重印与许可
