本文报道了一种用于操控G-四链体的单分子磁镊平台,该平台可用于研究G4的稳定性及其受多种蛋白质调控的机制。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
非经典的核酸二级结构G-四链体(G4)参与多种细胞过程,如DNA复制、转录、RNA加工以及端粒延长。在这些过程中,多种蛋白质会结合并解旋G4结构以执行其功能。由于G4的功能通常依赖于其折叠结构的稳定性,因此研究G4结合蛋白如何调控G4的稳定性具有重要意义。本文介绍了一种利用磁力镊子操控单个G4分子的方法,可实现实时研究G4结合蛋白对单个G4分子的调控作用。总体而言,该方法适用于广泛的研究领域,可用于蛋白质/配体与各种DNA或RNA二级结构之间相互作用及调控的分析。
引言
四链DNA或RNA的G4结构在许多重要的生物学过程中发挥着关键作用1。多种蛋白质参与G4的结合与调控,包括端粒结合蛋白(端粒酶、POT1、RPA、TEBPs、TRF2)1,2、转录因子(核仁素、PARP1)3、RNA加工蛋白(hnRNP A1、hnRNP A2)4、解旋酶(BLM、FANCJ、RHAU、WRN、Dna2、Pif1)5,以及DNA复制相关蛋白(Rif1、REV1、PrimPolymerase)6。蛋白质的结合可稳定或破坏G4结构,从而调控其后续的生物学功能。G4的稳定性通常通过紫外(UV)或圆二色光谱(CD)法测定其热变性来评估7。然而,这些条件缺乏生理相关性,且难以用于研究结合蛋白的影响7。
单分子操控技术的快速发展使得能够在纳米级空间分辨率下实时研究生物大分子(如DNA或蛋白质)的折叠与去折叠过程8。原子力显微镜(AFM)、光镊和磁镊是最常用的单分子操控方法。与AFM和光镊相比9,磁镊结合抗漂移技术可实现对单个分子折叠-去折叠动力学长达数天的稳定测量10,11。
本文报道了一种利用磁镊进行单分子操控的实验平台,用于研究结合蛋白对G4稳定性的调控作用12,13。该研究概述了基本实验方法,包括样品和流动通道的制备、磁镊系统的搭建以及力的校准。第3步中描述的力控制和抗漂移方案,可实现多种力控制模式下的长时间测量,例如恒力(力钳)和恒定加载速率(力斜坡)模式,以及力跃迁测量。第4步所述的力校准方案可在高达100 pN的宽力范围内,对长度< 1 µm的短连接分子实现相对误差在10%以内的力校准。本文以RNA解旋酶RHAU(别名DHX36、G4R1)为例,展示了该平台的应用,该蛋白在解析RNA G4结构中发挥关键作用13。
访问受限。请登录或开始试用以查看此内容。
方案
1. 单分子拉伸用G4 DNA的制备
- 使用DDNA聚合酶,以λ噬菌体DNA为模板,分别采用5'-巯基和5'-生物素标记的引物通过PCR制备5'-巯基标记和5'-生物素标记的双链DNA接头14(图1)。这两种双链DNA接头均具有较高的GC含量(> 60%),以防止在高拉力下或DNA过度拉伸转变过程中发生DNA熔解15。
- 使用商业纯化试剂盒纯化PCR产物,并按照生产商说明书使用BstXI限制性内切酶进行消化。
- 使用T4 DNA连接酶,按照生产商说明书将可形成G4结构的单链DNA与侧翼单链DNA及双链DNA接头进行连接。按照生产商说明书,使用商业纯化试剂盒通过凝胶回收法纯化连接产物。
2. 流通通道的制备
- 盖玻片清洗与表面功能化
- 将底部盖玻片(#1.5,22 mm × 32 mm)和顶部盖玻片(#1.5,20 mm × 20 mm)放入盖玻片染色缸中(每缸可容纳7片盖玻片,体积约为20 mL)。用蒸馏水在染色缸中冲洗盖玻片2至5次。
- 加入约 20 mL 的 5–40% 去垢剂溶液至每个广口瓶中,然后置于超声波清洗仪中清洗 30 分钟。用蒸馏水冲洗 > 重复10次以去除去垢剂。
- 在烘箱中将盖玻片在染色缸内干燥(约 150 °C; 注意,热),或通过 N2 气体。将干燥的上层盖玻片存放在干燥柜中。
- 使用血浆(O2 气体)清洗瓶中的盖玻片10分钟。在此10分钟期间,准备20 mL甲醇中含1%(3-氨基丙基)三乙氧基硅烷(APTES)的溶液(注意,有毒/易燃)。使用化学通风橱将 APTES 溶解于甲醇中。
注意:储存 APTES 溶液时应避免潮湿。陈旧的 APTES 常导致盖玻片表面功能化出现问题。 - 等离子清洗后立即向瓶中加入全部1% APTES溶液,孵育1 h。将废液倒入专用于1% APTES甲醇溶液的废液瓶中。涉及甲醇的操作步骤均须在易燃化学品通风橱中进行。
- 用甲醇冲洗容器一次 > 用蒸馏水清洗10次,然后放入烘箱干燥(~150 °C; 注意,热)。若两周内暂不使用,可将APTES包被的底盖玻片存放在干燥柜中。
注意:在完成2.1.1至2.1.4的每一个子步骤后,可在进行下一步之前暂停清洗过程。
- 组装流体通道
- 准备两个“间隔物”, 即,每个通道使用Parafilm或双面胶带(约4 mm × 20 mm)。将两片间隔物沿底盖玻片的长边放置。将顶盖玻片置于间隔物上,形成一个流动池(中间区域约10 mm × 20 mm) 图 2A,B).
- 如果使用Parafilm作为间隔物,将流体通道置于加热器上(60-120 °C; 警告,热)5-10秒,同时轻轻按压上层盖玻片的两侧,使两片盖玻片通过Parafilm粘合在一起。所形成的流动通道高度约为~ 100 µm,从而该通道的体积约为 ~ 20 µL.
- 用硅胶密封流道的长边以防止泄漏。在流道的每个开口端用硅胶制作一个小型凹槽状结构,作为溶液的入口和出口。
注意:入口和出口也可以通过其他方式进行, 例如,通过使用石蜡将小塑料环粘附固定。 - 将通道存放于干燥柜中,最长可保存4周。
- 将DNA固定在流动通道的底部表面
- 稀释氨基包被的聚苯乙烯微球(直径: 3 µm) 用1×磷酸盐缓冲液(PBS)稀释200倍。涡旋混匀磁珠溶液,然后流入微流控通道中。在通道中孵育磁珠溶液约30分钟。通过冲洗去除未结合的磁珠 200 µL 1× PBS缓冲液
- 调整(增加或减少)孵育时间,以达到每 50 mm × 50 mm 区域 1–5 个微珠的表面密度。将沉积有参考微珠的通道储存不超过 3 天。
- 将磺基琥珀酰亚胺基-4-(N-马来酰亚胺基甲基)环己烷-1-羧酸酯(Sulfo-SMCC)粉末用 1×PBS 溶液稀释(约 0.5 mg/mL)。涡旋混匀后,流入通道中。
注意:使用前需新鲜配制 Sulfo-SMCC 溶液,并立即加入通道中,以避免 SMCC 发生水解。 - 在通道中孵育 SMCC 溶液 30 分钟。用大量(1 mL,约 50 倍通道体积)1×PBS 溶液清洗,去除 SMCC 溶液。
注意:仔细洗去多余的 SMCC。此步骤对于 DNA 在盖玻片上的结合至关重要。 - DNA 拴系
- 将硫醇-生物素标记的DNA稀释于1×PBS中,使DNA终浓度约为0.3 nM。轻轻吹打混匀溶液,将DNA溶液注入SMCC包被的通道中,室温(约 23 °C).
- 轻柔洗去游离的 DNA 200 µL 含10 mg/mL牛血清白蛋白(BSA)和0.01% 2-巯基乙醇的1×PBS封闭溶液
- 通过将通道在封闭液(10 mg/mL BSA,0.01% 2-Mercaptoethanol)中孵育,对通道表面进行封闭 > 2 小时;此步骤完成后,通道即可用于实验。制备好的通道可保存于 4 °C 约 1 天。
注意:封闭步骤对于减少 DNA 和磁珠在盖玻片上的非特异性结合至关重要。
3. 磁力镊子装置的搭建与单条双链DNA分子的识别
- 磁镊装置设置
- 启动磁镊控制系统程序。此处磁镊由自行开发的 LabVIEW 程序控制。
- 在安装通道前对准磁体中心。使用 4X 物镜调节磁体在显微镜光轴方向上的 x 轴和 y 轴位置。
- 使用计算机控制的电机化操纵器沿 z 方向移动磁体(图 2A),当磁体接触显微镜上的盖玻片时,将距离设为 d = 0(d:磁体与盖玻片之间的距离)。
- 通过操纵器编程控制磁体运动,以实现对力的调控,包括恒定力(即,恒定 d)和随时间变化的力 F(t)(即,随时间变化的 d(t))。
- 使用明亮的发光二极管(LED)光源通过物镜对微珠进行背向散射照明。利用电荷耦合器件(CCD)相机以 100 Hz 的采样频率采集微珠图像。
- 样品设置及单条双链 DNA 分子连接的识别
- 连接形成
- 将 200 倍稀释的 M-280 超顺磁性微珠悬浮液(溶于检测溶液中:100 mM KCl、2 mM MgCl2、10 mM Tris-pH 7.4)轻柔地注入通道中。孵育 10 分钟,使微珠通过硫醇标记端与固定在 SMCC 涂层表面的生物素标记 DNA 分子结合。使用 200 µL 标准反应溶液轻柔冲洗,去除未连接的微珠。
注:与 M-270 等其他商用磁性微珠相比,M-280 微珠对表面的非特异性结合较低。
- 将 200 倍稀释的 M-280 超顺磁性微珠悬浮液(溶于检测溶液中:100 mM KCl、2 mM MgCl2、10 mM Tris-pH 7.4)轻柔地注入通道中。孵育 10 分钟,使微珠通过硫醇标记端与固定在 SMCC 涂层表面的生物素标记 DNA 分子结合。使用 200 µL 标准反应溶液轻柔冲洗,去除未连接的微珠。
- 将通道安装至显微镜载物台上。使用 100X 油浸物镜在底面寻找微珠。
- 选择一个表面固定的参考微珠和一个可移动的连接微珠。在不同离焦平面上建立参考微珠和连接微珠的初始图像库。
- 微珠图像校准
- 实验前,使用物镜压电驱动器获取参考微珠和连接微珠在离焦间距为 20–50 nm 的多个离焦平面上的图像,分别存储为两个独立的微珠图像库,并以离焦距离进行索引(图 2D)。
- x、y、z 方向位置测定
- 实验过程中,通过微珠质心确定其在 x-y 平面上的位置;通过将当前微珠图像与图像库中的图像进行比对,确定连接微珠的高度变化。采用微珠图像傅里叶变换功率谱的自相关函数分析方法16。
- 利用参考微珠进行抗漂移反馈
- 实验过程中,通过低频反馈控制,使用压电驱动器“锁定”物镜与图像库中某一特定参考微珠图像之间的距离,使固定微珠的实时图像与图像库中某一特定图像具有最佳相关性(图 2D)。
- 施加约 65 pN 的力,判断连接是否为单条双链 DNA 分子。若该连接表现出特征性的 DNA 过度拉伸转变17,18,19,则判定为单条双链 DNA 分子。重复此过程直至找到单条双链 DNA 连接。(力的校准及 DNA 过度拉伸转变详见下节)。
- 连接形成
4. 磁力镊子力的校准
- 通过珠子涨落直接测定长DNA分子(48,502 bp λ-DNA)的受力(最高达100 pN):
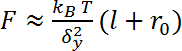
,其中 kB 是玻尔兹曼常数, T 是开尔文温标下的温度, δ2y 是珠子在垂直于磁场方向和受力方向上的波动方差。在此方向上,珠子的运动可被描述为长度为的摆动波动 l + r0,其中 l 是DNA沿受力方向(伸展)的端到端距离,以及 r0 是微珠的半径10 (图 3A). - 确定力的校准曲线 F 随磁铁与磁珠距离的变化函数 d,以及 F(d) 使用长λ-DNA对不同微珠进行测量。通常,磁铁与盖玻片之间的距离被用作参数,此时DNA连接长度可忽略不计。拟合 F-d 通过双指数衰减函数拟合曲线:
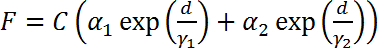
,其中拟合参数 α1、α2、γ1、γ2 由磁力镊子确定,参数 C 由磁珠的异质性决定。通过移动 C, F-d 不同微珠获得的曲线可以重叠10 (图 3B). - 参数校准 C 用于短DNA实验的单个磁珠。
- 基于涨落确定力的大小需要以高于拐角频率的频率记录微珠的位置:
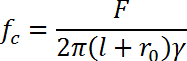
,其中 γ 为小球的阻滞系数。对于短 DNA 在高力条件下的情况,需要以超过 100 Hz 的频率进行记录,因此无法通过相机直接基于涨落测量力。然而,该参数 C 可通过在低力范围内测量力来确定(< 15 pN)通过波动分析并使用校准数据进行拟合 F-d 曲线以获取参数 C20. - 或者,对于含有双链DNA的实验,确定该参数 C 利用约 65 pN 力下的 DNA 拉伸过渡图 3C)21,22,23 通过记录 d 双链DNA出现延伸跳跃的位置(轮廓长度增加0.6倍)。在确定该参数后 C,计算连接珠的受力。
- 基于涨落确定力的大小需要以高于拐角频率的频率记录微珠的位置:
- 通过磁体运动的反函数来控制加载速率 F(d)。磁铁应以双指数方式接近样品。
注:通过该外推法测定的力的相对误差约为 10%,主要由微珠半径的异质性引起20.
5. 结合蛋白存在与缺失条件下对G4的单分子操控
- 力-斜坡实验
- 在识别出双链DNA连接后,以0.2 pN/s的加载速率进行力增加扫描,随后以-0.2 pN/s的速率进行力减小扫描。每次拉伸循环后,在1 pN的力下保持30秒,以允许单链DNA重新折叠形成G-四链体(G4)。
- 力-跃迁实验
- 在54 pN下循环作用力30秒,使折叠的G4结构解折叠;随后在1 pN下保持60秒,使折叠的G4-15T结构重新折叠。
- 流加蛋白质溶液
- 在约20 pN的力下流加蛋白质溶液,以避免微珠附着到盖玻片上。使用具有高度G4结构特异性的DEAH-box RHAU解旋酶24。重组的Drosophila melanogaster RHAU(DmRHAU)解旋酶在Escherichia coli中表达,并按先前所述方法纯化25。DmRHAU的G4解旋活性在四分子G4 DNA底物上进行检测13。
- 使用自行编写的Matlab程序分析解折叠力14。
访问受限。请登录或开始试用以查看此内容。
结果
拉伸单个G4分子的实验装置如图4所示。一段位于两个双链DNA手柄之间的单链G4形成序列,被固定在盖玻片与顺磁性微球之间。为找到单个双链DNA锚定的微球,通过以恒定加载速率增加作用力来进行过伸展实验。研究生物分子折叠与去折叠过程通常采用三种测量方式:(i) 恒力测量,(ii) 力- ramps 测量,以及 (iii) 力-跃变测量。由于该G4结构的去折叠速率极慢,其平衡态的折叠-去折叠转变仅在数天以上的时间尺度下才可能发生,因此采用力- ramps 测量和力-跃变测量来表征G4结构的去折叠动力学及其稳定性。
存在或不存在RHAU蛋白时G4解折叠的力-递增测量:
图 4B 显示了在加载速率为 0.2 pN/s 的条件下进行力...
访问受限。请登录或开始试用以查看此内容。
讨论
如上所述,本文报道了一种利用单分子磁镊研究G4 DNA机械稳定性及其与蛋白质相互作用的平台。与该平台配套,开发了高效寻找G4 DNA连接分子、并以纳米级空间分辨率测量G4结构折叠-去折叠动力学及稳定性的实验方案。该平台采用焦平面锁定技术,实现了高度稳定的抗漂移控制,这对于在缓冲液交换实验中检测微小结构变化(如G4的步长约为7 nm)以及蛋白质相互作用至关重要。该平台最近已被用于端粒G414和c-Myc启动子G412的折叠与去折叠动力学研究,以及G4结合蛋白RHAU解旋酶的研究13。
常见的实验误差包括DNA和磁珠在盖玻片上的非特异性结合,或多个DNA分子结合到磁珠上。为减少非特异性结合,首先应定期检查APTES和SMCC等化学试剂的储存情况;其次,选择合适类型的磁珠并阻断非特异性结合至关重要。使用10 mg/mL BSA缓冲液或短DNA寡核苷酸(如poly T)封闭磁珠的疏水表面,可显著降低非特异性结合。最后,可通过DNA特征性的拉伸过渡态...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢孟盼对稿件的校对。本工作获得新加坡教育部学术研究基金第三层次(MOE2012-T3-1-001)对J.Y.的资助;新加坡机械生物学研究所通过新加坡国家研究基金会对J.Y.的资助;新加坡国家研究基金会总理办公室研究员计划(NRF研究员奖编号NRF-NRFI2016-03)对J.Y.的资助;中央高校基本科研业务费专项资金(2017KFYXJJ153)对H.Y.的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DNA PCR 引物 | IDT | DNA 样品制备 | |
| DNA PCR 化学试剂 | NEB | DNA 样品制备 | |
| 限制性内切酶 BstXI | NEB | R0113S | DNA 样品制备 |
| 盖玻片(#1.5,22*32 mm 和 20*20 mm) | BMH.BIOMEDIA | 72204 | 流动通道制备 |
| Decon90 | Decon Laboratories Limited | 流动通道制备 | |
| APTES | Sigma | 440140-500ML | 流动通道制备 |
| Sulfo-SMCC | ThermoFisher Scientific | 22322 | 流动通道制备 |
| M-280 磁性微珠,链霉亲和素包被 | ThermoFisher Scientific | 11205D | 流动通道制备 |
| Polybead 氨基微球 3.00 μm | Polysciences, Inc | 17145-5 | 流动通道制备 |
| 2-巯基乙醇 | Sigma | M6250-250ML | 流动通道制备 |
| Olympus 显微镜 IX71 | Olympus | IX71 | 磁镊装置搭建 |
| 压电 Z 轴平台 P-721 | Physik Instrumente | P-721 | 磁镊装置搭建 |
| Olympus 物镜 MPLAPON-油 100X | Olympus | MPLAPON-Oil 100X | 磁镊装置搭建 |
| CCD/CMOS 相机 | AVT | Pike F-032B | 磁镊装置搭建 |
| 线性平移平台 | Physik Instrumente | MoCo DC | 磁镊装置搭建 |
| LED 光源 | Thorlabs | MCWHL | 磁镊装置搭建 |
| 立方磁铁 | Supermagnete | 磁镊装置搭建 | |
| Labview | National Instruments | 磁镊装置搭建 | |
| OriginPro/Matlab | OriginLab/MathWorks | 数据分析 |
参考文献
- Rhodes, D., Lipps, H. J. G-quadruplexes and their regulatory roles in biology. Nucleic Acids Res. 43 (18), 8627-8637 (2015).
- Brazda, V., Haronikova, L., Liao, J. C., Fojta, M. DNA and RNA quadruplex-binding proteins. Int J Mol Sci. 15 (10), 17493-17517 (2014).
- Gonzalez, V., Hurley, L. H. The C-terminus of nucleolin promotes the formation of the c-MYC G-quadruplex and inhibits c-MYC promoter activity. Biochemistry. 49 (45), 9706-9714 (2010).
- Wang, F., et al. telomerase-interacting protein that unfolds telomere G-quadruplex and promotes telomere extension in mammalian cells. Proc Natl Acad Sci U S A. 109 (50), 20413-20418 (2012).
- Mendoza, O., Bourdoncle, A., Boule, J. B., Brosh, R. M., Mergny, J. L. G-quadruplexes and helicases. Nucleic Acids Res. 44 (5), 1989-2006 (2016).
- Schiavone, D., et al. PrimPol Is Required for Replicative Tolerance of G Quadruplexes in Vertebrate Cells. Mol Cell. 61 (1), 161-169 (2016).
- Lane, A. N., Chaires, J. B., Gray, R. D., Trent, J. O. Stability and kinetics of G-quadruplex structures. Nucleic Acids Res. 36 (17), 5482-5515 (2008).
- Woodside, M. T., Block, S. M. Reconstructing folding energy landscapes by single-molecule force spectroscopy. Annu Rev Biophys. 43, 19-39 (2014).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nat Methods. 5 (6), 491-505 (2008).
- Chen, H., et al. Improved high-force magnetic tweezers for stretching and refolding of proteins and short DNA. Biophys J. 100 (2), 517-523 (2011).
- Chen, H., et al. Dynamics of equilibrium folding and unfolding transitions of titin immunoglobulin domain under constant forces. J Am Chem Soc. 137 (10), 3540-3546 (2015).
- You, H., Wu, J., Shao, F., Yan, J. Stability and kinetics of c-MYC promoter G-quadruplexes studied by single-molecule manipulation. J Am Chem Soc. 137 (7), 2424-2427 (2015).
- You, H., Lattmann, S., Rhodes, D., Yan, J. RHAU helicase stabilizes G4 in its nucleotide-free state and destabilizes G4 upon ATP hydrolysis. Nucleic Acids Res. 45 (1), 206-214 (2017).
- You, H., et al. Dynamics and stability of polymorphic human telomeric G-quadruplex under tension. Nucleic Acids Res. 42 (13), 8789-8795 (2014).
- Fu, H., Chen, H., Marko, J. F., Yan, J. Two distinct overstretched DNA states. Nucleic Acids Res. 38 (16), 5594-5600 (2010).
- Gosse, C., Croquette, V. Magnetic tweezers: micromanipulation and force measurement at the molecular level. Biophys. J. 82 (6), 3314-3329 (2002).
- Fu, H., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc Natl Acad Sci U S A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc Natl Acad Sci U S A. 110 (10), 3865-3870 (2013).
- Chen, H., et al. Improved High-Force Magnetic Tweezers for Stretching and Refolding of Proteins and Short DNA. Biophys. J. 100 (2), 517-523 (2011).
- Fu, H. X., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc. Natl. Acad. Sci. U.S.A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc. Natl. Acad. Sci. U.S.A. 110 (10), 3865-3870 (2013).
- Vaughn, J. P., et al. The DEXH protein product of the DHX36 gene is the major source of tetramolecular quadruplex G4-DNA resolving activity in HeLa cell lysates. J Biol Chem. 280 (46), 38117-38120 (2005).
- Giri, B., et al. G4 resolvase 1 tightly binds and unwinds unimolecular G4-DNA. Nucleic Acids Res. 39 (16), 7161-7178 (2011).
- De Vlaminck, I., Dekker, C. Recent advances in magnetic tweezers. Annu Rev Biophys. 41, 453-472 (2012).
- Yan, J., Skoko, D., Marko, J. F. Near-field-magnetic-tweezer manipulation of single DNA molecules. Phys Rev E Stat Nonlin Soft Matter Phys. 70 (1 Pt 1), 011905(2004).
- Le, S., et al. Disturbance-free rapid solution exchange for magnetic tweezers single-molecule studies. Nucleic Acids Res. 43 (17), e113(2015).
- Neidle, S. Quadruplex Nucleic Acids as Novel Therapeutic Targets. J Med Chem. 59 (13), 5987-6011 (2016).
- Simone, R., Fratta, P., Neidle, S., Parkinson, G. N., Isaacs, A. M. G-quadruplexes: Emerging roles in neurodegenerative diseases and the non-coding transcriptome. FEBS Lett. 589 (14), 1653-1668 (2015).
- Balasubramanian, S., Hurley, L. H., Neidle, S. Targeting G-quadruplexes in gene promoters: a novel anticancer strategy? Nat Rev Drug Discov. 10 (4), 261-275 (2011).
- Amato, J., et al. Toward the Development of Specific G-Quadruplex Binders: Synthesis, Biophysical, and Biological Studies of New Hydrazone Derivatives. J Med Chem. 59 (12), 5706-5720 (2016).
- Wells, R. D. Non-B DNA conformations, mutagenesis and disease. Trends Biochem Sci. 32 (6), 271-278 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
