本文为初学者研究人员提供了针对具有重要药理学意义的细菌属Streptomyces进行表型鉴定的实验方案。
本文内容
摘要
摘要
链霉菌是一类广泛分布于全球土壤中的丝状放线菌门细菌,能够产生多种抗生素及其他次级代谢产物。Streptomyces coelicolor 是一种特性明确且非致病性的模式菌种,适用于多种实验室分析。本文所述的表型分析方法以 S. coelicolor 作为链霉菌的代表性模型,但这些方法同样适用于该属所有其他成员以及部分亲缘关系相近的放线菌。表型分析对于鉴定环境中新发现的 Streptomyces 物种至关重要,同时也是鉴定新分离的 Streptomyces 突变菌株的首要步骤。掌握表型分析技术对于大量新进入 Streptomyces 研究领域的科研人员尤为重要,该研究领域涵盖细菌发育、细胞分裂、染色体分离以及第二信使信号传导等方面。近年来,通过分离新型土壤微生物来开展抗生素发现的众包科研项目日益增多,这使得从事 Streptomyces 研究的教师及其大学或高中学生对表型分析技术培训的需求显著增加。本文介绍了通过肉眼观察和显微镜检查进行细菌菌株扩增、保存及特征鉴定的方法。阅读本文后,新进入该领域的研究人员(包括微生物学教学实验室人员和公民科学家)应能够熟练操作 Streptomyces 菌株,并开展初步的表型观察实验。
引言
链霉菌是一类革兰氏阳性、丝状的土壤细菌,以其能够产生多种次级代谢产物而闻名,包括超过三分之二的商业化抗生素,以及抗肿瘤、抗HIV和抗寄生虫药物1。S. coelicolor 是该属中遗传学研究最为深入的代表菌种2,3,也是本文所述方法所使用的物种。S. coelicolor 具有复杂的生活周期,始于单个孢子的萌发,随后发育成广泛分支的营养菌丝,并向琼脂培养基内生长。随着生活周期的推进,会形成气生菌丝,突破基质菌丝的表面张力,最终断裂成细胞长链,并进一步转化为成熟的灰色色素孢子。这些新生孢子的扩散即标志着下一个生活周期的开始4。
由于其复杂的分化模式,S. coelicolor 是研究细菌发育的优良模型。历史上,突变会阻断发育的两个主要阶段,并产生明显的视觉表型。bld(无毛,bald)突变体无法形成气生菌丝,导致缺乏毛茸茸的气生菌丝结构,菌落呈现"无毛"外观。在孢子形成和成熟过程中受抑制的突变体被称为whi(白色,white)突变体,因为它们通常无法产生野生型水平的灰色孢子色素,气生菌丝保持白色。其他有趣的突变体则在抗生素产生、细胞分裂、染色体分离或其他重要过程中受到抑制4,5。
尽管已发现许多发育相关基因 链霉菌属 物种,基于突变体筛选尚未达到饱和,推测仍存在更多未被发现的物种。我们的实验室正利用自行构建的微型转座子系统持续鉴定新的发育相关基因。通过转座子进行的随机诱变实验中分离得到的新型突变菌株,需经过表型筛选,以确定每个新发现基因的可能功能。6,7. 本文所述的细菌表型分析方法适用于 链霉菌属 通过转座子诱变分离的突变体8,9,10,11,12,13 以及其他随机方法,例如化学诱变和紫外线(UV)诱变14,以及利用重组工程定向构建突变,如基因缺失15,16 或CRISPR-Cas9(成簇规律间隔短回文重复序列)基因组编辑技术17,18,19 和点突变20.
随着病原体对抗生素的耐药性日益普遍,开发新型抗生素的需求也愈发紧迫21,22。该 "小世界倡议" (或SWI)是一种有效的科学、技术、工程和数学(STEM)学习方法23 和研究策略24 通过众包大学生,以及近期的高中生,来应对抗生素耐药性问题。该项目支持的课程内容包括鉴定可产生新型抗生素的新型土壤微生物(http://www.smallworldinitiative.org)。人们认为,大量尚未发现的抗生素仍将主要来源于 链霉菌属 广泛分布于多种土壤和水体生境中的物种25,26,27,28,29,31最近,我们实验室及其他研究团队已发现并鉴定了信号传导基因 链霉菌属 调控形态与发育的物种,包括抗生素的产生7,32,33这些基因表达水平的变化会导致抗生素的产量和产生时间发生改变。对新物种及新型抗生素产生突变体进行熟练的表型鉴定仍具有重要意义。随着新任教师及其学生逐渐成为药物发现领域的重要贡献者,对这些初学者进行细菌表型鉴定的培训显得尤为必要。此外,这些实验适用于高中STEM课程或大学微生物学教学实验室,可在教学实验环境中用于演示基本的微生物遗传学原理。
方案
1. 准备仪器、培养基、溶液和培养皿
- 用铝箔覆盖装有牙签的50 mL烧杯,高压灭菌以保持无菌状态。
- 对将要使用的所有干燥物品进行灭菌(枪头、玻璃棒、玻璃器皿) 等等。在高压灭菌锅中灭菌。
注意:小心!请遵循所使用灭菌器型号的所有安全操作指南。灭菌器存在爆炸风险,以及因蒸汽、接触高温表面、材料和培养基而导致烫伤的风险。有关灭菌器安全操作,请参阅 "正确使用高压灭菌器"34. - 制备 MS 琼脂(甘露醇大豆粉 (SFM))14 用于培养细胞。
- 向1 L烧瓶中加入5 g大豆粉和5 g琼脂。
- 将5 g甘露醇溶解于250 mL自来水中,加入含有大豆粉和琼脂的烧瓶中。
- 在烧瓶口添加泡沫塞和铝箔,于121 °C、15 psi条件下高压灭菌至少30分钟。
注意:该培养基极易沸腾溢出。请使用容量至少为待灭菌 MS 琼脂实际体积四倍的锥形瓶。在安全注意事项相似的前提下,可使用标准高压锅代替高压灭菌器。若无法使用高压灭菌器,也可用微波炉对培养基和材料进行灭菌。35,36高中教师也可以考虑与当地学院或大学合作,以获取经过高压灭菌的实验用品。 - 将培养基冷却至手感适宜的温度。注意不要冷却过久,因为琼脂在低于 50 °C 时会凝固。
- 将MS琼脂从烧瓶倒入无菌培养皿中,直至每个培养皿底部约半满(每培养皿约25 mL培养基)。待琼脂凝固后方可使用。将琼脂平板置于塑料袋中,室温保存备用。
注意:琼脂平板也可保存在冰箱中,特别是当培养基中需要添加抗生素时。
2. 划线 链霉菌属 用于扩增的平板接种
- 采用标准方法(如 Sanders, 201237 中所示的四区划线法),将 Streptomyces 菌株划线接种于 MS 琼脂平板上,获得单菌落。
注意:可使用接种环或无菌牙签。可选:其他常用于 Streptomyces 物种的培养基包括 R2YE 培养基和最低培养基14。 - 在 30 °C 条件下培养平板。
- 每隔 4–6 天挑取单个菌落重新划线接种。随着菌落老化,其发生随机突变的风险增加。
3. 制备甘油菌丝体冻存液用于细菌保存
注意:可为所有链霉菌(Streptomyces)菌株建立菌丝储备,包括无法完成孢子形成的 whi 和 bld 菌株以及其他发育突变体。
- 使用无菌木棒将15–20个菌落于200–500 µL 20%甘油中充分研磨。
- 用微量移液器或无菌转移吸管将研磨后的菌悬液转移至1.5 mL冷冻保存管中。
注意:微量移液器使用的基本操作在其他文献中已有介绍38。 - 加入足够的20%甘油,使终体积达到1 mL,并轻轻混匀。将样品保存于-80 °C。
注意:小心操作!使用低温防护手套和实验服,防止皮肤接触极低温物质造成冻伤。也可使用-20 °C冰箱保存,但长期保存时间可能缩短。应避免反复冻融,以延长菌种存活时间。
4. 为能够产孢的菌株制备甘油孢子保存液
注意:孢子保存液更适合长期保存以维持活性,但仅适用于能够完成孢子形成过程的菌株。
- 将100 µL研磨后的材料(来自步骤3.1)涂布于琼脂平板上,以获得融合生长的菌苔37。
注意:涂布平板的方法参见Sanders37(修改:无需使用转盘)。可用一只手旋转平板,同时用另一只手将涂布棒在琼脂培养基表面轻轻前后移动进行涂布。- 用移液器将100 µL研磨后的菌丝体加至MS琼脂平板中央。
- 将玻璃或金属涂布工具部分浸入70%乙醇中消毒,然后缓慢通过一次本生灯火焰,以加速乙醇蒸发。
警告:乙醇高度易燃。切勿将正在燃烧的涂布棒插入乙醇中,或让燃烧的乙醇滴落回乙醇容器内。也可使用一次性无菌棉签在平板上涂布,此方法无需乙醇或火焰。 - 用一只手旋转MS琼脂平板,同时用无菌涂布棒以前后移动的方式将样品均匀涂布。
- 在30 °C下培养5–7天,直至菌株充分产孢。
注意:培养时间因物种和菌株而异。
- 向已完成产孢的链霉菌(Streptomyces)融合菌苔中央加入2 mL无菌生理盐水(0.8% NaCl)。
- 用无菌接种环(或棉签)轻轻摩擦菌丝表面,缓慢向菌苔边缘移动,以收集孢子。
- 将含有孢子的生理盐水用移液器转移至15 mL锥形管中,剧烈涡旋振荡,使孢子链断裂为单个细胞。
- 在室温下以约2,500 x g离心5分钟。
- 吸出上清液并弃去。通过剧烈涡旋振荡,利用残留的少量液体重新分散孢子沉淀。
- 用移液器反复吹吸,将孢子重悬于1 mL 20%甘油溶液中。
- 将甘油孢子储备液转移至1.5 mL冻存管中,在-80 °C保存。
警告:操作时应佩戴低温防护手套和实验服,防止皮肤接触极低温造成损伤。也可选择-20 °C冰箱保存,但长期储存时可能降低存活率。应避免反复冻融以延长孢子活性。
5. 进行诱变
- 根据参考的预期结果进行定点突变 引言 并由 Baltz 于 2016 年近期综述39.
注意:某些表型分析实验无需进行诱变,例如旨在从环境中鉴定新物种的情况。随机诱变的方法包括转座子的使用。8,9,10,11,12,13紫外线辐射或化学物质14定点突变15,16,17,18,19,20 可采用多种技术来构建特定的点突变、缺失或其他类型的突变。
6. 比较并记录视觉外观
- 记录每种突变株在划线接种后(同第2步操作)相对于野生型亲本菌株的菌落形态,并将新分离菌株与研究充分的物种(如 S. coelicolor 或 S. venezuelae 在表征新 链霉菌属 物种。注意特征(图1)如基本形态、菌落表面(绒毛状、光滑、皱褶) 等等。),不透明度、隆起程度和色素沉着(区分营养菌丝、气生菌丝和/或周围培养基)。
- 标记一个MS琼脂平板,以楔形模式划线接种野生型和突变株图1)。注意避免菌株之间相互接触,以防交叉污染。记录菌株划线接种到平板的日期和时间。将平板在30 °C条件下培养。
- 将培养好的培养皿置于彩色或白色纸张上,以均一化背景。在纸张上注明菌株名称、日期、培养温度以及首次划线接种后的时间。用数码相机拍摄培养皿照片,并确保上述信息显示在纸张背景上,以尽量减少混淆。
注意:如果需要将照片用于图表制作,文字部分可在后期从图像中裁剪掉。
7. 进行相差显微镜观察
- 用70%乙醇清洗镊子,然后通过本生灯火焰灼烧以蒸发乙醇,完成灭菌。待其冷却。
- 用70%乙醇清洗盖玻片,然后将其置于无菌培养皿中晾干,以完成灭菌。
- 制备待观察细菌生长的盖玻片悬滴标本。
- 用无菌镊子夹取一块无菌盖玻片,将其放置于细菌密集生长的MS琼脂平板上。用镊子轻轻按压盖玻片背面,以确保足量的细菌孢子和气生菌丝被转移至盖玻片上。
- 从平板上取下盖玻片,将其带有细胞材料的一面朝下,覆盖在已滴加15 µL以水配制的50%甘油封片液的显微镜载玻片表面。将盖玻片以45°角缓慢放下,使其自然覆盖在甘油液滴上,以减少气泡产生。
- (可选)用透明指甲油封片,以长期保存标本。
- 在生命周期的不同时间点,按照Frohlich40所述方法进行相差显微镜观察。
注意:重复成像有助于更全面的分析,并能够检测发育过程中的延迟现象。应独立重复观察,以确保结果的准确性和可重复性。- 将制备好的玻片置于显微镜载物台上,在盖玻片中央滴加一滴浸油。旋转至100X相差物镜,并将聚光镜转盘调至相应的"匹配"相差档位。物镜接触浸油后,仅使用微调旋钮对焦。
- 观察多个视野,以识别突变株与野生型之间明显且一致的差异,例如产孢能力、孢子大小与形态以及总体孢子数量(见图2)。
注意:相差显微镜的替代方法包括微分干涉差显微镜(DIC)40,以及适用于明场显微镜的简单染色技术41,如结晶紫染色。
8. 进行荧光显微镜观察
- 用70%乙醇清洗镊子,然后通过本生灯火焰灼烧,以进行灭菌。
- 用无菌镊子夹取一张无菌盖玻片,将其放置在细菌生长明显的MS琼脂平板上。用镊子轻轻触碰盖玻片背面,确保有足够量的细菌孢子和气生菌丝被转移。
- 从平板上取下盖玻片,将带有细胞材料的一面朝上放置在卡纸上,以便于操作。
- 用冰甲醇淹没盖玻片(20 × 20 mm2盖玻片约需300 µL),然后完全自然晾干。
注意:甲醇为致突变剂,避免直接接触皮肤。 - 用磷酸盐缓冲液(PBS)42轻轻加入并吸除溶液,对盖玻片进行三次洗涤。
- 在标记好的显微镜载玻片上加入15 µL浓度为100 μg/mL的碘化丙啶和/或用50%甘油配制的10 μg/mL荧光素异硫氰酸酯标记的小麦胚芽凝集素(WGA-FITC)。
注:碘化丙啶将DNA染成红色,用于检测染色体DNA的位置;WGA-FITC将细胞壁染成绿色。 - 将盖玻片有细胞材料的一面朝下倒置在载玻片的荧光染料液滴上。(可选)用透明指甲油封片以保存样本。 由于染料对光敏感,需在避光或弱光环境中孵育15分钟。
- 使用配备落射荧光激发滤光片的100倍物镜、相差或微分干涉(DIC)显微镜观察样本,碘化丙啶使用“Texas Red”滤光片组或激发/发射最大值为535/617 nm,FITC使用FITC滤光片组或激发/发射最大值为490/525 nm。
- 将载玻片置于载物台上,使用粗调和微调旋钮进行聚焦。
- 观察荧光信号,方法如其他文献所述43。
- 可使用免费的图像分析软件,辅助识别荧光强度较低的孢子44。
结果
初步表型分析实验对于新物种和菌株的鉴定至关重要,可作为系统发育学和DNA-DNA杂交实验的补充手段,用于新物种的特征描述。Streptomyces通过化学诱变、紫外线诱变或转座子诱变等随机诱变方法获得的突变体,通常通过在琼脂平板上进行直接的肉眼观察筛选来鉴定。将Streptomyces菌落与野生型亲本菌株进行比较,观察其表型变化。例如,气生菌丝颜色较浅可能表明由于孢子形成缺陷导致灰色色素水平降低,而缺乏绒毛状外观则提示气生菌丝形成受阻(图1)。许多链霉菌会在营养菌丝或周围琼脂中产生有色抗生素。S. coelicolor可产生两种有色抗生素和两种无色抗生素。其中,放线紫红素为蓝色色素抗生素,十一烷基灵菌红素为红色色素抗生素45。经过初步肉眼菌落筛选的菌株随后通过划线法分离单菌落进行扩增培养。
在通过肉眼鉴定出潜在的有趣突变体后,对菌株进行显微镜检查。相差显微镜特别适用于观察 链霉菌属 以野生型菌株作为对照,筛选发育缺陷的突变体(图2)。野生型 S. coelicolor 菌落通常在培养约两天后产生气生菌丝 30 °C 在MS琼脂培养基上,菌株在生长三天后会形成长串的孢子。在其他类型的培养基上,其生命周期的进展可能稍快或稍慢。在分析突变体是否存在发育缺陷或延迟时,必须确保突变体与野生型在相同的生长条件下进行比较。秃型突变体(bald mutants)在琼脂培养基上长时间培养后可能仍能产生孢子。一类被称为白型突变体(white mutants)的突变株,可能表现为孢子形成延迟、产孢数量减少、产生的孢子存在形态和/或大小缺陷,或仅产生较低水平的成熟灰色孢子色素。46. 目前研究的其他突变体可能在生命周期进程中出现延迟或加速,例如影响信号分子积累的突变体例如,环二鸟苷单磷酸47).
对上述光学显微镜技术的一个简单延伸是采用荧光显微镜,利用碘化丙啶对染色体DNA类核进行染色,并用荧光标记的小麦胚芽凝集素对孢子形成隔膜的细胞壁进行染色。缺乏染色体的孢子将不显示红色碘化丙啶荧光信号,而含有较正常量少的DNA的孢子则可通过荧光强度减弱来识别(图3)。小麦胚芽凝集素可用于染色细胞壁,从而观察细胞壁染色模式的差异(例如,细胞分裂缺陷)。在图4中,对S. venezuelae野生型菌株进行了WGA-FITC染色;该物种由于具有较快的生活周期以及可在液体培养基中产孢的特性,近年来正被用作另一种链霉菌模式生物45,图中清晰显示了在孢子形成早期典型的梯状排列的分裂隔膜结构。
本文所述的初步表型分析策略应实现以下目标:1)鉴定出具有研究价值的突变菌株,以供进一步研究;2)获得关于新鉴定突变菌株及其所突变基因潜在功能的知识;3)制定后续一系列实验步骤,以进一步阐明该基因的功能。对于从环境中新鉴定出的链霉菌而言,研究人员将能够了解该潜在新物种与已知链霉菌(Streptomyces)物种之间的差异与特征。

图1:显示琼脂平板上菌落宏观表型的代表性照片 S. coelicolor. 琼脂平板显示了野生型菌株气生菌丝的模糊、灰色视觉外观 S. coelicolor 与具有发育表型的各种随机转座子插入突变体相比的菌株MT1110(WT)。这些突变体要么缺乏气生菌丝[秃状(bald)bld)] 或具有孢子色素减少的气生菌丝[白色(whi)]。使用mini-Tn5进行插入突变生成转座子突变体6,7在MS琼脂培养基上于28°C培养5天 30 °C培养皿直径,100 mm。
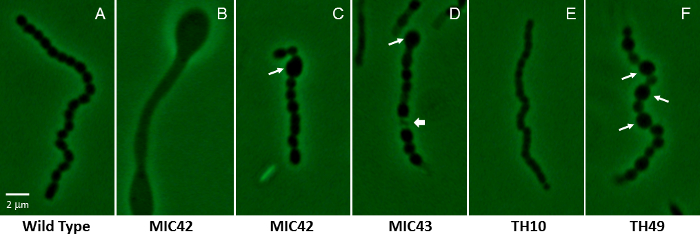
图 2:相差显微照片显示含有随机转座子插入突变的 S. coelicolor 白色突变株的代表性气生菌丝。 (A)显示的是代表性野生型气生菌丝,其经历了同步且规则间隔的细胞分裂,产生形状和大小均匀的孢子(MT1110)。 (B-F)其余图示展示了通过随机转座子诱变分离得到的各种白色突变株截然不同的显微表型。图 B 显示了一条未经历孢子形成的气生菌丝,而是在菌丝内形成了膨大的区域。图 C、D 和 F 中的长箭头指示了突变株 MIC42、MIC43 和 TH49 所特有的异常大孢子。图 D 中的短箭头指示了一个裂解的孢子区室的示例。图 E 显示了突变株 TH10 产生的孢子链中典型的部分收缩的小型区室。菌株在 MS 琼脂培养基上于 30 °C 培养 5 天。这些突变株与 图 1 中所示的突变株无关。野生型孢子的长轴直径约为 1.1 µm。比例尺 = 2 µm。 请点击此处查看该图的放大版本。
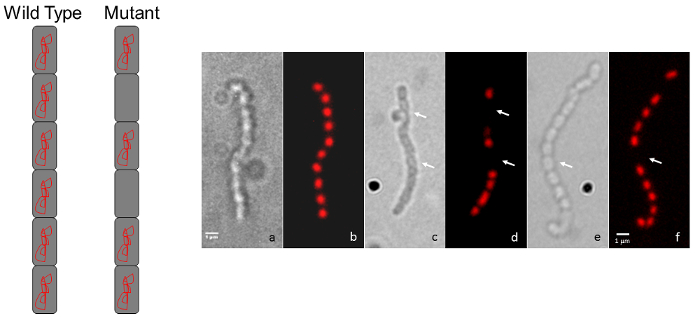
图3:显示 S. coelicolor 突变体染色体分离表型的代表性显微图像。(A)示意图展示了典型的野生型孢子链中染色体DNA呈规律间隔分布的染色特征(每个孢子均含有染色体DNA),与之对比的是具有染色体分离缺陷的突变体所表现出的间断性染色模式。(B)每对图像左侧为微分干涉差(DIC)显微图像,右侧为碘化丙啶染色的荧光图像,显示同一孢子链。野生型表型(a、b)与两个随机转座子插入突变体(c、d 和 e、f)进行比较。箭头指示无DNA的孢子。菌株在MS琼脂培养基上30 °C培养5天。本图所示突变体与图1和图2中的突变体无关。比例尺 = 1 µm。请点击此处查看该图的放大版本。
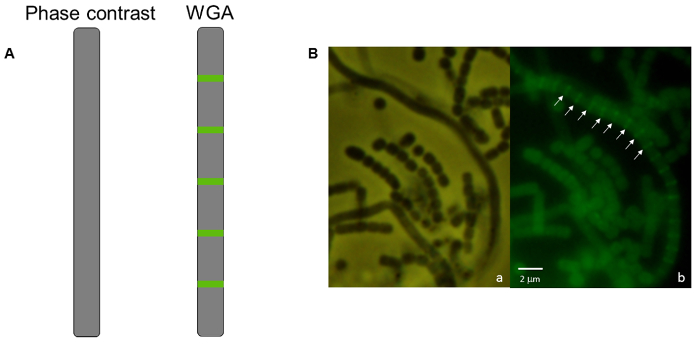
图4:用WGA-FITC染色的S. venezuelae野生型菌株的荧光显微图像。(A)在相差显微镜下观察,气生菌丝的示意图显示表面光滑,无凹陷,且无可见的孢子形成迹象;相比之下,在荧光显微镜下使用WGA-FITC染色时,同一菌丝显示出梯状排列的细胞壁染色,表明该菌丝已开始进入早期孢子形成阶段。(B)野生型S. venezuelae的显微图像。(a)在孢子链中可见光滑的气生菌丝。(b)在图版a所示的菌丝体中,一条处于发育早期的气生菌丝表现出梯状的细胞壁沉积结构。箭头指示由WGA-FITC染色显示的规则间隔的隔膜形成,这些隔膜在单个气生菌丝发育过程中同步产生,伴随发育相关的孢子形成过程。菌株在MYM(Maltose、Yeast extract、Malt extract)MYM琼脂培养基上于30 °C培养38小时。比例尺 = 2 µm。请点击此处查看该图的放大版本。
讨论
本文介绍了开始的实验方案 链霉菌属 研究人员可通过包含菌株传代及制备长期保存菌种所需步骤,启动相关研究。随后,我们描述了对菌株进行宏观及显微观察表征的实验方案 链霉菌属 菌株。对发育突变体进行表型分析的一些典型初始步骤包括:1)在琼脂培养基上将突变体菌落与野生型菌落进行肉眼观察比较;2)相差显微镜观察;3)对产孢气生菌丝进行荧光显微镜观察。根据上述三个步骤中所呈现的表型,可进一步采用多种技术以更深入地解析特定菌株的表型特征。
初步表型分析实验通常用于鉴定新物种、筛选感兴趣的突变体、对突变体进行部分表征,并根据已鉴定突变体的表型初步推断特定基因的典型功能。本文所述方法已在大学教学实验室中被用于识别和表征多种多样的 Streptomyces 突变体,包括细胞分裂缺陷型48,49,50,51,52,53,54、产孢异常型55,56、气生菌丝形成缺陷型57,58、抗生素合成能力改变型59、第二信使信号传导异常型47以及染色体分离异常型60等。这些技术是确定突变体表型的关键第一步,能够揭示大量关于目标基因功能的重要信息。这些方法可轻松拓展至其他 Streptomyces 物种,并已被用于描述 S. griseus、S. venezuelae、S. scabies 以及其他多种链霉菌菌株的特性。本文所介绍的视频实验方案预期将成为新进入 Streptomyces 研究领域(例如药物发现领域)的研究人员的重要资源,尤其适用于致力于应对抗生素耐药性危机的新任教师,以及正在指导大量本科学生研究人员参与“小世界倡议”(Small World Initiative)众包科研项目的研究人员。
本文所述技术除了适用于科研实验室外,还可通过视频和文本中描述的改进方法,轻松应用于大学和高中的课堂教学。在一所小型文理学院,一年级显微镜学课程模块的学生能够进行菌株划线培养,拍摄在琼脂培养基上生长的菌株的数码照片,并开展相差显微镜和荧光显微镜观察。该模块为期3周,共计15小时的实验课,最终学生提交了包含多图面板的成果集。约160名一年级学生参与了320株新型转座子突变体的初步表型分析。来自三所机构的本科研究学生参与了其他突变体的初步表型分析,并对大量菌株进行了后续表征。在相对较短的时间内获得的全面数据,充分体现了本文所述实验方案的价值。数百株额外的突变体已以甘油菌丝冻存液的形式保存,以备将来进一步表征。
在完成此处所述的初步实验后,可采用多种方法进一步拓展有关目标菌株的信息。如果突变类型未知,应采用基因分型方法来确定突变的类型和/或位置。例如,对野生型染色体进行随机转座子诱变6,7,8,9,10,11,12,13,所得菌落应首先进行表型初筛,如上文所述。随后应采用诸如反向聚合酶链式反应(iPCR)61等技术确定转座子的插入位置。在完成初步表征后,确定新发现突变体的基因型是一个关键步骤。
在课堂中可能提及或通过进一步研究探索的一些常用于后续表型分析的高级方法包括:利用绿色荧光蛋白(GFP)标记来确定目标蛋白的定位模式,以及基因表达分析,如实时定量PCR(qPCR)和通过RNA测序(RNA-seq)比较野生型与突变体的全基因组基因表达模式。遗传互补分析同样需要具备表型分析技能。在互补实验中,将基因的野生型拷贝导入突变菌株,以确定新引入的等位基因是否能够弥补突变等位基因的功能缺失。该过程需要比较互补菌株与原始突变体及亲本野生型菌株的表型。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢奥特拜因大学为GVK和SGK提供的本科生研究奖学金及学生研究基金奖;感谢奥特拜因大学吉尔伯特·E·米尔斯教授纪念带薪学术休假计划奖以及生物与地球科学系教职员工研究与学术奖为JAB提供的支持。GVK和SGK还获得了科学领域伯特和简·霍恩冠名学生研究基金的资助。作者还衷心感谢杜肯大学资助的本科生研究项目奖学金对GVK和SGK的支持。 前朱尼亚塔学院本科生研究人员Ryan Johnson和Lindsey Draper分别为图2和图3提供了显微图像。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 50% 甘油 | Sigma-Aldrich | G5516 | |
| 浸油(型号 DF) | Cragille | 16482 | |
| 镜头纸 | Fisherbrand | 11-995 | |
| 无菌水 | GeneMate | G-3250-1L | |
| 100% 乙醇 | Sigma-Aldrich | E7023 | |
| 碘化丙啶 | Invitrogen | P1304MP | |
| 牙签(扁平型) | Target | 081-22-1957 | |
| 移液器吸头(10 mL) | GeneMate | P-1240-10 | |
| 移液器吸头(200 mL) | GeneMate | P-1240-200Y | |
| 移液器吸头(1,250 mL) | GeneMate | P-1240-1250 | |
| 6英寸木制涂药棒 | Solon Care | 070809 | |
| 棉签 | Fisherbrand | 23-400-124 | |
| 大豆粉 | Bob's Red Mill | 1516C164 | |
| D-甘露醇 | Sigma-Aldrich | M4125-1KG | |
| 琼脂 | Sigma-Aldrich | A1296-1KG | |
| 100% 甘油 | VWR amresco life science | 0854-1L | |
| 0.8% NaCl(生理盐水) | Sigma-Aldrich | SLBB9000V | |
| 1.2 mL 冻存管 | NEST | 606101 | |
| 超低温(-80 °C)冰箱 | SO-LOW | U85-18 | |
| 冻存安全手套 | Bel-Art | H13201 | |
| 培养皿 | Sigma-Aldrich | P5856-500EA | |
| 盖玻片 #1.5 | Thomas Scientific | 64-0721 | |
| 载玻片 | Carolina | 63-2010 | |
| 高压灭菌器 | Tuttnauer | 2540E | |
| 相差显微镜 | Olympus | BX40 | |
| 镊子 | Carolina Biological | 624504 | |
| 本生灯 | Carolina Biological | 706706 | |
| 甲醇 | Sigma-Aldrich | 34860-1L-R | |
| PBS(磷酸盐缓冲液) | Sigma-Aldrich | P4417-50TAB | |
| WGA-FITC | Biotium | 29022-1 | |
| 透明指甲油 | OPI | 22001009000 | |
| ImageJ | NIH | 免费软件 | |
| 100 mL 烧杯 | Pyrex USA | 1000-T | |
| 1 L 烧杯 | Carolina Biological | 721253 | |
| 1 L 三角瓶 | Fisherbrand | S63274 | |
| 250 mL 三角瓶 | Pyrex USA | 4980 | |
| 100 mL 量筒 | Carolina Biological | 721788 | |
| 500 mL 量筒 | Carolina Biological | 721792 | |
| 搅拌子 | Fisher Scientific | 22-271825 | |
| 离心机 | Eppendorf | 5810R | |
| 显微镜用相机 | Olympus | DP72 | |
| 腈类检查手套(中号) | Bio Excell | 71011002 | |
| 涡旋混合器 | Carolina Biological | 701077 |
参考文献
- Barka, E. A., et al. Taxonomy, physiology, and natural products of Actinobacteria. Microbiol. Mol. Biol. Rev. 80 (1), 1-43 (2015).
- Bentley, S. D., et al. Complete genome sequence of the model actinomycete Streptomyces coelicolor A3(2). Nature. 417 (2), 141-147 (2002).
- Redenbach, M., et al. A set of ordered cosmids and a detailed genetic and physical map for the 8 Mb Streptomyces coelicolor A3(2) chromosome. Mol. Microbiol. 21 (1), 77-96 (1996).
- McCormick, J. R., Flardh, K. Signals and regulators that govern Streptomyces development. FEMS Microbiol. Rev. 36 (1), 206-231 (2012).
- Flardh, K., Buttner, M. J. Streptomyces morphogenetics: dissecting differentiation in a filamentous bacterium. Nat. Rev. Microbiol. 7 (1), 36-49 (2009).
- Bennett, J. A. Molecular Genetic analysis of division and development in Streptomyces coelicolor. , Ph.D. Dissertation (2007).
- Hull, T. D., et al. Cyclic Di-GMP phosphodiesterases RmdA and RmdB are involved in regulating colony morphology and development in Streptomyces coelicolor. J. Bacteriol. 194 (17), 4642-4651 (2012).
- Petzke, L., Luzhetskyy, A. In vivo Tn5-based transposon mutagenesis of streptomycetes. Appl. Microbiol. Biotechnol. 83 (5), 979-986 (2009).
- Xu, Z., et al. Large-Scale Transposition Mutagenesis of Streptomyces coelicolor Identifies Hundreds of Genes Influencing Antibiotic Biosynthesis. Appl. Environ. Microbiol. 83 (6), (2017).
- Fernandez-Martinez, L. T., et al. A transposon insertion single-gene knockout library and new ordered cosmid library for the model organism Streptomyces coelicolor A3(2). Antonie Van Leeuwenhoek. 99 (3), 515-522 (2011).
- Gehring, A. M., Nodwell, J. R., Beverley, S. M., Losick, R. Genomewide insertional mutagenesis in Streptomyces coelicolor reveals additional genes involved in morphological differentiation. Proc. Natl. Acad. Sci. U.S.A. 97 (17), 9642-9647 (2000).
- Bishop, A., Fielding, S., Dyson, P., Herron, P. Systematic insertional mutagenesis of a streptomycete genome: a link between osmoadaptation and antibiotic production. Genome Res. 14 (5), 893-900 (2004).
- Bilyk, B., Weber, S., Myronovskyi, M., Bilyk, O., Petzke, L., Luzhetskyy, A. In vivo random mutagenesis of streptomycetes using mariner-based transposon Himar1. Appl. Microbiol. Biotechnol. 97 (1), 351-359 (2013).
- Kieser, T., Bibb, M. J., Buttner, M. J., Chater, K. F., Hopwood, D. A. Practical Streptomyces Genetics. , The John Innes Foundation. (2000).
- Gust, B., Kieser, T., Chater, K. F. REDIRECT technology: PCR-targeting system in Streptomyces coelicolor. , John Innes Centre, Norwich Research Park, Colney, Norwich NR4 7UH, United Kingdom. (2002).
- Gust, B., Chandra, G., Jakimowicz, D., Yuqing, T., Bruton, C. J., Chater, K. F. Lambda red-mediated genetic manipulation of antibiotic-producing Streptomyces. Adv. Appl. Microbiol. 54, 107-128 (2004).
- Tong, Y., Charusanti, P., Zhang, L., Weber, T., Lee, S. Y. CRISPR-Cas9 based engineering of Actinomycetal genomes. ACS Synth. Biol. 4 (9), 1020-1029 (2015).
- Huang, H., Zheng, G., Jiang, W., Hu, H., Lu, Y. One-step high-efficiency CRISPR/Cas9-mediated genome editing in Streptomyces. Acta BiochimBiophys. Sin.(Shanghai). 47 (4), 231-243 (2015).
- Cobb, R. E., Wang, Y., Zhao, H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS Synth. Biol. 4 (6), 723-728 (2015).
- Carey, M. F., Peterson, C. L., Smale, S. T. PCR-mediated site-directed mutagenesis. Cold Spring Harb Protoc. 2013 (8), 738-742 (2013).
- Brown, E. D., Wright, G. D. Antibacterial drug discovery in the resistance era. Nature. 529 (7586), 336-343 (2016).
- Dodds, D. R. Antibiotic resistance: A current epilogue. Biochem. Pharmacol. 134, 139-146 (2017).
- Caruso, J. P., Israel, N., Rowland, K., Lovelace, M. J., Saunders, M. J. Citizen Science: The Small World Initiative improved lecture grades and California critical thinking skills test scores of nonscience major students at Florida Atlantic University. J. Microbiol. Biol. Educ. 17 (1), 156-162 (2016).
- Davis, E., et al. Antibiotic discovery throughout the Small World Initiative: A molecular strategy to identify biosynthetic gene clusters involved in antagonistic activity. Microbiology Open. 6 (3), (2017).
- van Keulen, G., Dyson, P. J. Production of specialized metabolites by Streptomyces coelicolor A3(2). Adv. Appl. Microbiol. 89, 217-266 (2014).
- Aigle, B., et al. Genome mining of Streptomyces ambofaciens. J. Ind. Microbiol. Biotechnol. 41 (2), 251-263 (2014).
- Antoraz, S., Santamaria, R. I., Diaz, M., Sanz, D., Rodriguez, H. Toward a new focus in antibiotic and drug discovery from the Streptomyces arsenal. Front. Microbiol. 6, 461(2015).
- Onaka, H. Novel antibiotic screening methods to awaken silent or cryptic secondary metabolic pathways in actinomycetes. J. Antibiot.(Tokyo). 70 (8), 865-870 (2017).
- Chen, J., Wu, Q., Hawas, U. W., Wang, H. Genetic regulation and manipulation for natural product discovery. Appl. Microbiol. Biotechnol. 100 (7), 2953-2965 (2016).
- Katz, L., Baltz, R. H. Natural product discovery: past, present, and future. J. Ind. Microbiol. Biotechnol. 43 (2-3), 155-176 (2016).
- Liu, G., Chater, K. F., Chandra, G., Niu, G., Tan, H. Molecular regulation of antibiotic biosynthesis in Streptomyces. Microbiol. Mol. Biol. Rev. 77 (1), 112-143 (2013).
- den Hengst, C. D., Tran, N. T., Bibb, M. J., Chandra, G., Leskiw, B. K., Buttner, M. J. Genes essential for morphological development and antibiotic production in Streptomyces coelicolor are targets of BldD during vegetative growth. Mol. Microbiol. 78 (2), 361-379 (2010).
- Tran, N. T., Den Hengst, C. D., Gomez-Escribano, J. P., Buttner, M. J. Identification and characterization of CdgB, a diguanylate cyclase involved in developmental processes in Streptomyces coelicolor. J. Bacteriol. 193 (12), 3100-3108 (2011).
- Anonymous. Lab Safety. Proper Use of Autoclaves. JoVE Science Education Database. , Cambridge, MA. (2017).
- Border, B. G., Rice-Spearman, L. Microwaves in the laboratory: effective decontamination. Clin. Lab. Sci. 12 (3), 156-160 (1999).
- Bhattacharjee, M. K., Delsol, J. K. Does microwave sterilization of growth media involve any non-thermal effect? J. Microbiol. Methods. 96, 70-72 (2014).
- Sanders, E. R. Aseptic laboratory techniques: plating methods. J. Vis. Exp. (63), e3064(2012).
- Anonymous, General Laboratory Techniques. An Introduction to the Micropipettor. JoVE Science Education Database. , Cambridge, MA. (2017).
- Baltz, R. H. Genetic manipulation of secondary metabolite biosynthesis for improved production in Streptomyces and other actinomycetes. J. Ind. Microbiol. Biotechnol. 43 (2-3), 343-370 (2016).
- Frohlich, V. C. Phase Contrast and Differential Interference Contrast (DIC) Microscopy. J. Vis. Exp. (18), e844(2008).
- Anonymous, General Laboratory Techniques. Introduction to Light Microscopy. JoVE Science Education Database. , Cambridge, MA. (2017).
- Sambrook, J., Fritsch, E. F., Maniatis, T. Molecular Cloning: A Laboratory. 3, 2nd ed, Cold Spring Harbor Laboratory Press. Cold Spring Harbor, New York. (1989).
- Anonymous, General Laboratory Techniques. Introduction to Fluorescence Microscopy. JoVE Science Education Database. , Cambridge, MA. (2017).
- Jensen, E. C. Quantitative analysis of histological staining and fluorescence using ImageJ. Anat. Rec.(Hoboken). 296 (3), 378-381 (2013).
- Chater, K. F. Recent advances in understanding Streptomyces. F1000Res. 5, (2016).
- Chater, K. F. Regulation of sporulation in Streptomyces coelicolor A3(2): a checkpoint multiplex? Curr. Opin. Microbiol. 4 (6), 667-673 (2016).
- Tschowri, N. Cyclic dinucleotide-controlled regulatory pathways in Streptomyces species. J. Bacteriol. 198 (1), 47-54 (2016).
- Bennett, J. A., et al. Medium-dependent phenotypes of Streptomyces coelicolor with mutations in ftsI or ftsW. J. Bacteriol. 191 (2), 661-664 (2009).
- Mistry, B. V., Del Sol, R., Wright, C., Findlay, K., Dyson, P. FtsW is a dispensable cell division protein required for Z-ring stabilization during sporulation septation in Streptomyces coelicolor. J. Bacteriol. 190 (16), 5555-5566 (2008).
- Bennett, J. A., Aimino, R. M., McCormick, J. R. Streptomyces coelicolor genes ftsL and divIC play a role in cell division but are dispensable for colony formation. J. Bacteriol. 189 (24), 8982-8992 (2007).
- Bennett, J. A., McCormick, J. R. Two new loci affecting cell division identified as suppressors of an ftsQ-null mutation in Streptomyces coelicolor A3(2). FEMS Microbiol. Lett. 202 (2), 251-256 (2001).
- Dharmatilake, A. J., Kendrick, K. E. Expression of the division-controlling gene ftsZ during growth and sporulation of the filamentous bacterium Streptomyces griseus. Gene. 147 (1), 21-28 (1994).
- McCormick, J. R., Losick, R. Cell division gene ftsQ is required for efficient sporulation but not growth and viability in Streptomyces coelicolor A3(2). J. Bacteriol. 178 (17), 5295-5301 (1996).
- McCormick, J. R., Su, E. P., Driks, A., Losick, R. Growth and viability of Streptomyces coelicolor mutant for the cell division gene ftsZ. Mol. Microbiol. 14 (2), 243-254 (1994).
- Flärdh, K., Findlay, K. C., Chater, K. F. Association of early sporulation genes with suggested developmental decision points in Streptomyces coelicolor A3(2). Microbiology. 145 (9), 2229-2243 (1999).
- van Wezel, G. P., van der Meulen, J., Kawamoto, S., Luiten, R. G., Koerten, H. K., Kraal, B. ssgA is essential for sporulation of Streptomyces coelicolor A3(2) and affects hyphal development by stimulating septum formation. J. Bacteriol. 182 (20), 5653-5662 (2000).
- Capstick, D. S., Willey, J. M., Buttner, M. J., Elliot, M. A. SapB and the chaplins: connections between morphogenetic proteins in Streptomyces coelicolor. Mol. Microbiol. 64 (3), 602-613 (2007).
- Ma, H., Kendall, K. Cloning and analysis of a gene cluster from Streptomyces coelicolor that causes accelerated aerial mycelium formation in Streptomyces lividans. J. Bacteriol. 176 (12), 3800-3811 (1994).
- Xu, Z., et al. Large-scale transposition mutagenesis of Streptomyces coelicolor identifies hundreds of genes influencing antibiotic biosynthesis. Appl. Environ. Microbiol. 83 (6), (2017).
- Dedrick, R. M., Wildschutte, H., McCormick, J. R. Genetic interactions of smc, ftsK, and parB genes in Streptomyces coelicolor and their developmental genome segregation phenotypes. J. Bacteriol. 191 (1), 320-332 (2009).
- Pavlopoulos, A. Identification of DNA sequences that flank a known region by inverse PCR. Methods Mol. Biol. 772, 267-275 (2011).
重印与许可
