本文介绍了活细胞成像技术,用于在不同处理条件下,随时间定量测量胶质母细胞瘤脑肿瘤干细胞的迁移和侵袭能力。
本文内容
摘要
摘要
胶质母细胞瘤(GBM)是一种侵袭性脑肿瘤,目前可用的治疗手段对其控制效果较差。GBM的关键特征包括快速增殖以及向正常脑组织广泛浸润。复发被认为源于具有放射和化学耐药性的脑肿瘤干细胞(BTSCs),这些细胞从原发肿瘤病灶扩散并侵入周围脑组织,从而逃避手术切除。因此,靶向BTSCs及其侵袭能力的疗法可能改善该疾病的不良预后。本研究团队及其他研究团队已成功从GBM患者样本中建立并鉴定了BTSC细胞系。这些BTSC细胞系表现出基本的肿瘤干细胞特性,如克隆性自我更新、多向分化潜能以及在免疫缺陷小鼠体内启动成瘤的能力。为了改进当前针对GBM的治疗策略,有必要更深入地理解BTSC迁移与侵袭的分子机制。然而,在GBM研究中,对迁移和侵袭的探讨在一定程度上受到现有技术局限性的制约,因为这些技术未能充分模拟 体外 BTSCs 以神经球形式培养时的生长特性。本文描述了快速且定量的活细胞成像检测方法,用于研究 BTSCs 的迁移和侵袭特性。第一种方法为 BTSC 迁移检测,用于测量细胞向化学趋化梯度的迁移能力。第二种方法为 BTSC 侵袭检测,用于成像并量化神经球中的细胞向基质内的侵袭过程。本文所述检测方法可用于在不同时间点及不同处理条件下对 BTSC 的迁移与侵袭进行定量分析。
引言
胶质母细胞瘤(GBM)是最常见且最具侵袭性的脑癌类型,尽管目前采用手术切除后辅以放疗和化疗的治疗方案,患者的中位生存期仅为15个月1。GBM具有侵袭性强、高度耐药的特点,最终无法治愈,因此需要持续深入研究其内在生物学特性,以发现新的治疗途径。GBM患者高死亡率的主要原因是肿瘤细胞广泛侵入邻近的正常脑组织,并沿血管迁移,从而导致治疗后疾病复发2,3。一部分被称为脑肿瘤干细胞(BTSCs)的细胞具有缓慢增殖和治疗抵抗的特性,被认为可能是导致疾病复发的根源。GBM来源的BTSCs表现出克隆性自我更新能力、多向分化潜能以及肿瘤启动潜能4,5,6。BTSCs还保留了其原始GBM肿瘤的遗传、分子和表型异质性7,8,9,10。这些特性使得BTSCs成为研究GBM及探索新型治疗策略的极为有用的模型系统。体内实验表明,将这些类干细胞植入新生大鼠11或非肥胖型糖尿病/重度联合免疫缺陷(NOD/SCID)小鼠脑内后,能够形成肿瘤并实现生长与侵袭4。BTSCs在体内反复形成具有原始肿瘤细胞和组织学特征的侵袭性肿瘤的能力,有力支持了其作为肿瘤起始细胞的作用12。
目前,研究人员正在开发新型治疗策略,以靶向BTSCs并改善胶质母细胞瘤(GBM)患者的长期预后。然而,对于与治疗耐药性和复发相关的细胞迁移和侵袭过程,当前的理解仍然有限。迁移和侵袭是两种不同的现象:迁移是指细胞定向移动的过程,涉及细胞骨架的重组、黏附分子的变化以及黏着斑接触点的组装与解聚;而侵袭则不仅包括迁移,还需要对细胞外基质等物理屏障进行降解破坏13。研究细胞迁移和侵袭的一种广泛接受的方法是Boyden小室实验14,15。该技术使用双室结构,其中上下室均填充培养基,下室中额外添加趋化因子。趋化作用可通过特定生长因子或细胞因子诱导,也可使用胎牛血清作为非特异性趋化因子。细胞沿着趋化因子浓度梯度,穿过微孔膜进行迁移。在实验终点,可通过细胞学染料或荧光染料对迁移至微孔膜底侧的细胞进行染色,进而实现可视化和定量分析。通过在微孔滤膜上包被I型胶原蛋白或类似基底膜的细胞外基质成分,Boyden迁移实验可被改造为侵袭实验。具有侵袭能力的细胞能够降解基质,穿过滤膜到达底部,并以类似于迁移实验的方式进行定量。其他常用的迁移检测方法还包括划痕损伤实验和细胞排阻区域实验13。划痕损伤实验通过在单层细胞上制造一条划痕,形成空白区域,随后在固定时间间隔内成像,观察细胞从伤口边缘向空白区域迁移直至划痕闭合的过程。在细胞排阻实验中,先使用物理屏障在细胞接种前创建一个无细胞区域;待细胞生长至融合状态后移除屏障,随后定期成像,观察细胞向无细胞区域的迁移情况16。
这些已建立的检测方法常用于研究贴壁且均一的细胞群体的迁移或侵袭能力,但在研究胶质母细胞瘤脑肿瘤干细胞(GBM BTSCs)或其他异质性癌细胞群体时存在明显局限性。Boyden小室实验仅能提供终点测量结果 与 对细胞运动进行动力学评估。由于不同培养条件下的细胞迁移速率常存在差异,因此,对细胞迁移过程进行时间序列观察对于脑肿瘤干细胞(BTSC)迁移能力的测量具有重要意义。因此,每种培养类型均需优化实验条件和时间点,这需要耗费大量时间进行充分的取样与定量分析。划痕实验和细胞排阻实验并不适用于BTSC培养,因为即使在层粘连蛋白包被的培养板上以单层条件培养BTSC时,我们仍观察到BTSC倾向于抵抗进入空置区域,并偏好紧密聚集于其他细胞附近。此外,这些传统的迁移实验方法无法在整个实验过程中实现对单个细胞的可视化与持续监测。而在BTSC等异质性细胞群体中,对单个细胞进行长时间追踪对于迁移评估具有重要价值。Boyden小室、划痕实验及细胞排阻区实验在应用于BTSC培养时还存在其他缺点:它们通常需要相对较多的细胞数量,建立过程耗时较长,且或迅速达到平衡状态,或缺乏稳定的趋化因子梯度。因此,这些方法并不适用于稀有细胞群体或生长缓慢的细胞群体,也不适合用于药物筛选。此外,这些实验无法在三维(3D)环境中测量细胞侵袭能力,而这一点对于在神经球条件下培养的BTSC尤为重要。
本文描述了专门改进的实验方法,用于观察和定量单个脑肿瘤干细胞(BTSC)的迁移行为,以及培养为神经球形式的胶质母细胞瘤(GBM)BTSC的侵袭能力。第一种实验方法是对Boyden小室实验的改进,结合活细胞延时成像技术和趋化迁移板,用于测量细胞的趋化性迁移13。多孔板格式的活细胞成像可实现对多种处理条件下细胞迁移过程的可视化与定量分析。本文描述的第二种实验方法为球体侵袭实验13,17,用于评估在神经球条件下培养并嵌入三维细胞外基质中的BTSC在不同处理条件下的侵袭特性。总体而言,相较于以往报道的方法,这些实验方法更适用于研究异质性BTSC培养物的迁移和侵袭特性。同时,它们也为探索靶向迁移和侵袭过程的新型治疗策略提供了更好的研究机会,而迁移与侵袭在疾病复发和致死性中具有重要作用。
方案
1. 培养源自人胶质母细胞瘤标本的脑肿瘤干细胞
注意:BTSC 培养物此前已从人脑胶质母细胞瘤(GBM)患者样本中建立6,7,8,9,10。
- 在37 °C水浴中,将一管冷冻保存的BTSCs置于含有70%乙醇的烧杯内,待冰完全融化后立即取出。将融化的细胞加入10 mL培养基中,转移至15 mL锥形管,以150相对离心力(RCF)离心7分钟。
注意:在本实验方案中,“完全培养基”指用于培养BTSCs的标准培养基(先前由Kelly et al.)6描述),通常含有生长因子;不含生长因子的培养基则指除未添加任何生长因子外其余成分均相同的基礎培养基。 - 吸除培养基,将细胞重悬于8 mL完全培养基中,并将细胞与培养基转移至T25培养瓶。
- 在非黏附条件下培养1周后,每日观察培养瓶,若培养基开始耗尽或因酸化而呈现橙黄色变化,则根据需要补充1 - 2 mL完全培养基。当神经球直径达到约250 μm时进行传代(通常在培养10 - 14天后)(图1)。
注意:不同BTSC细胞系的倍增时间差异较大。可使用目镜测微尺测量神经球大小。 - 传代BTSCs时,通过移液将培养基沿培养瓶壁吹下,以收集全部神经球,转移至15 mL锥形管,并在150 RCF下离心7分钟。
注意:可将培养瓶置于显微镜下检查,确保所有神经球均已收集。必要时可用5 mL磷酸盐缓冲液(PBS)或培养基额外冲洗一次,以收集残留的神经球。 - 为将BTSC神经球解离为单细胞,吸除培养基后加入1 mL预热的细胞解离液,在37 °C孵育7分钟。使用设定为800 μL的P1,000移液器将BTSC悬液吹打40次。
注意:若神经球未充分解离,可延长37 °C孵育时间。 - 向解离后的BTSCs中加入5 mL含抗生素(青霉素和链霉素)的PBS,以150 RCF离心7分钟。
- 吸除上清液,根据细胞沉淀的大小,将BTSCs重悬于1 - 4 mL完全培养基中。
注意:若细胞浓度过高,超出准确计数范围,需进一步稀释细胞悬液。 - 使用可排除死细胞的染料(如台盼蓝)对活细胞进行计数,并将BTSCs接种至目标培养瓶或培养板中——通常在T25培养瓶中加入8 mL完全培养基,接种200,000 - 300,000个细胞。
2. 脑肿瘤干细胞迁移实验
- 在T25培养瓶中接种200,000个细胞,加入8 mL完全培养基,于计划进行迁移实验前1-2周开始培养。
注意:接种至执行实验之间的时间间隔将根据所用BTSC培养物的生长速率而有所不同。- 为检测药物处理对迁移的影响,通过将相应体积的溶剂(如DMSO)或目标药物原液直接加入含细胞的培养基孔中,对细胞进行预处理。
- 通过在表面涂覆一层薄胶原蛋白,制备趋化迁移板(图2A)。
- 计算96孔趋化迁移板中需要涂覆胶原蛋白的孔数。每种实验条件至少设置三个重复孔。
- 将5 mg/mL的I型胶原蛋白原液用含0.14%乙酸的细胞培养级水稀释至0.2 mg/mL。
- 将0.2 mg/mL胶原蛋白溶液分别加入膜插件孔和底部储液池孔中。
注意:底部储液池每孔需225 µL,膜插件孔每孔需75 µL胶原蛋白以实现适当包被。 - 将迁移板置于37 °C培养箱中孵育1小时。吸除孔内胶原溶液时避免刮伤胶原涂层。
- 用无菌1×PBS洗涤孔两次。若板子不立即使用,吸除PBS后可在4 °C保存最多2周。使用前需将趋化迁移板恢复至室温。
- 准备趋化迁移板的底部储液池。
- 向趋化迁移板的底部储液池孔中加入225 µL不含生长因子但补充10% FBS作为趋化因子的培养基。
- 以倾斜角度轻轻将膜插件放入底部储液池,避免产生气泡。
- 将细胞接种至趋化迁移板的膜插件中。
- 将解离后的BTSCs重悬于不含生长因子的培养基中,细胞密度为50,000个细胞/mL。若需评估不同药物处理下的迁移情况,可在培养基中添加相应药物。或者,在接种时接种等量的预处理细胞与对照细胞,并维持最终药物浓度不变。
- 在设定的处理条件下,将步骤2.4.1中的50 µL BTSCs加入迁移板的每一孔中。
- 进行趋化迁移成像。
- 将趋化迁移板放入活细胞成像系统,并设置自动成像软件每1-2小时获取一次显微图像,持续最多72小时。使用商用软件(见材料表),右键点击时间轴,将扫描间隔设置为每2小时一次,持续24小时。
注意:不同BTSC培养物的成像时间间隔和总时长可能有所不同;建议初始设置为每2小时一次,持续72小时,待积累特定BTSC培养物的经验后再调整。若无自动成像系统,也可使用连接成像软件的显微镜和相机手动获取相同视野的图像。 - 图像采集完成后,获取整个实验的图像数据,并使用分析软件创建处理定义,以区分细胞与膜背景及迁移孔(图2B,红色掩模)。使用商用软件(见材料表),选择新建处理定义,将BTSCs的处理参数设置为种子阈值52、生长阈值85、尺寸调整(像素)-1,以及最小面积200 μm2。将此处理定义应用于膜的底侧。若该分析无法准确区分细胞与膜背景,请进行相应调整。
- 收集每个实验组三个重复孔膜底侧的细胞表面积数据,该数据仅统计已穿过孔的细胞。以迁移细胞的表面积(μm2)随时间变化作图(图2C、图3)。
注意:确保在首次时间点时,各处理组膜顶侧接种并计数的相对细胞数量相近(所有孔间差异小于20%),以避免接种不均带来的影响。使用商用软件(见材料表)进行数据导出时,可启动步骤2.5.2中创建的处理定义,点击指标,再点击图表/导出,然后选择数据导出。
- 将趋化迁移板放入活细胞成像系统,并设置自动成像软件每1-2小时获取一次显微图像,持续最多72小时。使用商用软件(见材料表),右键点击时间轴,将扫描间隔设置为每2小时一次,持续24小时。
3. 脑肿瘤干细胞神经球侵袭实验
- 在T25培养瓶中接种200,000个细胞,加入8 mL完全培养基,于计划进行侵袭实验前1-2周开始培养。
注意:从接种到进行实验的时间取决于所用BTSC细胞系的增殖速率。- 对于预处理细胞,在神经球准备接种进行侵袭实验前,按预定时间将目标化合物以所需浓度加入培养瓶中。
- 等待神经球平均大小达到约150 - 200 μm;通常需要7 - 14天,具体时间取决于所用BTSC细胞系。
注意:培养瓶中观察到神经球大小分布不均是常见现象。 - 轻柔倾斜并用移液器混匀培养瓶,将每种处理条件下500 μL的BTSC神经球转移至1.5 mL离心管中;该体积用于接种三个重复孔。
注意:步骤3.3.1 - 3.3.2为可选步骤,但建议在新BTSC细胞系首次进行侵袭实验时执行。- 为确定最终进入孔中的神经球密度,请按照步骤3.3准备一个1.5 mL离心管。轻轻混匀神经球后,取100 μL加入另一个96孔板中,静置5分钟,使神经球依靠重力沉降。
- 在显微镜下检查神经球数量,确保成像区域中有多个神经球但不过于密集。
注意:侵袭性神经球需要足够空间使其直径扩大至三倍而不与邻近神经球相互接触。可通过计数每孔神经球数量,并在步骤3.3中从T25培养瓶向1.5 mL离心管中增加或减少神经球数量来调整每孔接种量。
- 将步骤3.3中含细胞的1.5 mL离心管置于冰上,并在冰上执行步骤3.5 - 3.7。
- 让神经球在1.5 mL离心管底部依靠重力沉降5分钟,同时将标记好的96孔板预冷于冰上。
- 将神经球重悬于细胞外基质蛋白中。
- 每种处理条件在冰上准备500 μL浓度为0.4 mg/mL的I型胶原溶液:加入459 μL培养基(不含生长因子)、40 μL 5 mg/mL胶原储备液和0.92 μL无菌1N NaOH(表1)。
注意:每种处理条件需500 μL胶原溶液:三个重复孔每孔100 μL,另加200 μL余量。若需药物处理,应在此处以目标终浓度加入,并从溶液的培养基组分中扣除相应体积。本方案描述使用I型胶原作为细胞外基质蛋白,但也可测试其他任何细胞外基质蛋白。此外,对于侵袭速率较慢的BTSC细胞系,可在培养基中补充生长因子或FBS以提高侵袭速率。 - 待步骤3.5中的神经球沉降后,尽可能吸除上清液,避免损失已沉降的神经球沉淀。轻轻将神经球重悬于步骤3.6.1中配制的500 μL胶原溶液中。
- 每种处理条件在冰上准备500 μL浓度为0.4 mg/mL的I型胶原溶液:加入459 μL培养基(不含生长因子)、40 μL 5 mg/mL胶原储备液和0.92 μL无菌1N NaOH(表1)。
- 将100 μL胶原与神经球混合液加入冰上的96孔板中三个重复孔内。在冰上静置5分钟,使神经球沉降。
- 将96孔板转移至37 °C培养箱中孵育5分钟,以促进胶原聚合。
- 立即准备对96孔板进行成像。
- 将96孔板放入活细胞成像系统的载物盘或显微镜载物台上,获取图像作为接种时神经球大小的参考,此时尚未开始侵袭。
- 每隔一小时获取一次图像,直至侵袭速率趋于平稳;通常在24小时内达到平台期。
注意:可根据所用设备调整成像间隔。对于具有不同侵袭速率的BTSC细胞系,也可调整成像间隔和总持续时间。
- 测定BTSC随时间侵袭基质过程中表面积的增加情况。
注意:不同处理条件下,接种时细胞的表面积(以三个重复孔的平均值计算)应相近(各孔间差异小于20%),以确保BTSC侵袭差异不受接种神经球数量或大小的影响。- 使用活细胞分析系统进行图像采集时,采用10X物镜,对三个重复孔每孔采集四幅图像。为确定代表孔内细胞汇合百分比的相对细胞表面积,设置图像处理定义,特异性突出显示细胞与孔背景的差异。使用商业软件(见材料表),选择新建处理定义,将分割调整值设为0.8,面积最小值设为300 μm2,偏心率最大值设为0.99。若该分析无法准确区分细胞与背景,请进行相应调整。
注意:若采用其他方法随时间记录神经球侵袭过程,建议对三个重复孔随时间采集多个视野图像。然而,若每次间隔未拍摄完全相同的视野,将增加所收集数据的标准误差。可使用计算机软件辅助测量每幅图像中侵袭细胞的表面积。 - 收集每个时间点每个孔的总细胞表面积(相对或绝对值)数据,计算三个重复孔的平均值。通过绘制细胞面积随时间增加的曲线图来展示BTSC的侵袭情况。
注意:使用商业软件(见材料表)进行数据采集时,可启动步骤3.10.1中创建的处理定义,点击Metrics,再点击Graph/export,然后点击Data export。
- 使用活细胞分析系统进行图像采集时,采用10X物镜,对三个重复孔每孔采集四幅图像。为确定代表孔内细胞汇合百分比的相对细胞表面积,设置图像处理定义,特异性突出显示细胞与孔背景的差异。使用商业软件(见材料表),选择新建处理定义,将分割调整值设为0.8,面积最小值设为300 μm2,偏心率最大值设为0.99。若该分析无法准确区分细胞与背景,请进行相应调整。
结果
本文描述了利用活细胞成像实验研究脑肿瘤干细胞(BTSC)迁移与侵袭过程中可获得的数据示例。BTSC以单细胞形式接种,可在无黏附条件下生长为悬浮的神经球(图1)。我们展示了BTSC可被解离后接种于趋化迁移培养板中膜插件的孔内,该膜插件表面涂有一层I型胶原蛋白(图2A)。在实验开始时,单个BTSC均匀分布在膜插件的上表面。在24至72小时的时间内,细胞黏附于膜表面,沿胶原包被的区域移动,并通过96个微孔中的其中一个迁移至膜的下表面,朝向储液孔中的趋化因子移动。通过将膜上表面的细胞标记为黄色、微孔标记为蓝色、膜下表面的细胞标记为红色,可以观察到细胞从膜上表面进入微孔(黄色细胞接近蓝色微孔)以及从膜下表面离开微孔(红色细胞离开蓝色微孔)的过程(图3)。重要的是,可在同一趋化迁移培养板中对药物处理组细胞与溶剂对照组细胞同时进行接种和成像,以研究治疗干预对BTSC迁移的影响(图2B)。该趋化迁移培养板允许同时对膜插件上表面和下表面的细胞进行成像,因此可通过计数迁移至膜下表面的细胞数量,实现对细胞迁移随时间变化的定量分析(图2C)。
我们发现,如果BTSCs未完全解离,则细胞无法穿过孔径,而会以小型神经球的形式残留(图4A)。此外,每孔接种的BTSCs数量不应超过2,500个,否则会导致细胞聚集成团,而非迁移至膜的底侧(图4B)。最后,在接种细胞以及将膜插件放置到下层储液槽时,必须避免在膜插件孔中产生气泡,因为气泡会影响成像和定量分析的准确性(图4C)。
接下来,我们展示BTSC从神经球向周围基质的侵袭过程,可在96孔板体系中进行随时间推移的成像与定量分析(图5A)。通过定量细胞随时间侵入基质过程中所覆盖的表面积,可实现对侵袭能力的测量。利用图像分析软件,应用了一种处理定义,将掩膜叠加至细胞表面积区域,从而实现随时间自动定量(图5B)。此外,还可生成BTSC侵袭过程的时间延时视频,以便直观观察BTSC侵袭的整体动态过程(图6)。同时,可采用荧光显微镜对表达荧光蛋白(如绿色荧光蛋白GFP或红色荧光蛋白RFP)的BTSC进行成像。在此,我们制作了一段表达胞质GFP的BTSC的时间延时视频,以帮助追踪单个BTSC在侵袭类基底膜基质过程中的行为(图7)。该BTSC神经球侵袭实验体系还允许在重复孔中加入药物处理,以直接评估药物对BTSC从神经球向基质侵袭的影响(图8A)。通过计算并绘制重复孔中多个神经球随时间变化的定量数据,可评估不同浓度药物对侵袭的影响(图8B)。
未能遵循上述方案可能导致无法获得可靠且准确的数据。包埋过大的BTSC神经球(直径大于200 µm)会导致焦平面过深,难以在单个视野中准确量化所有神经球(图8C)。同样,在包埋神经球时未能将基质保持在4 °C,也会导致神经球不在同一焦平面上,以及细胞外基质未能均匀固化,从而无法获取准确数据(图8D)。
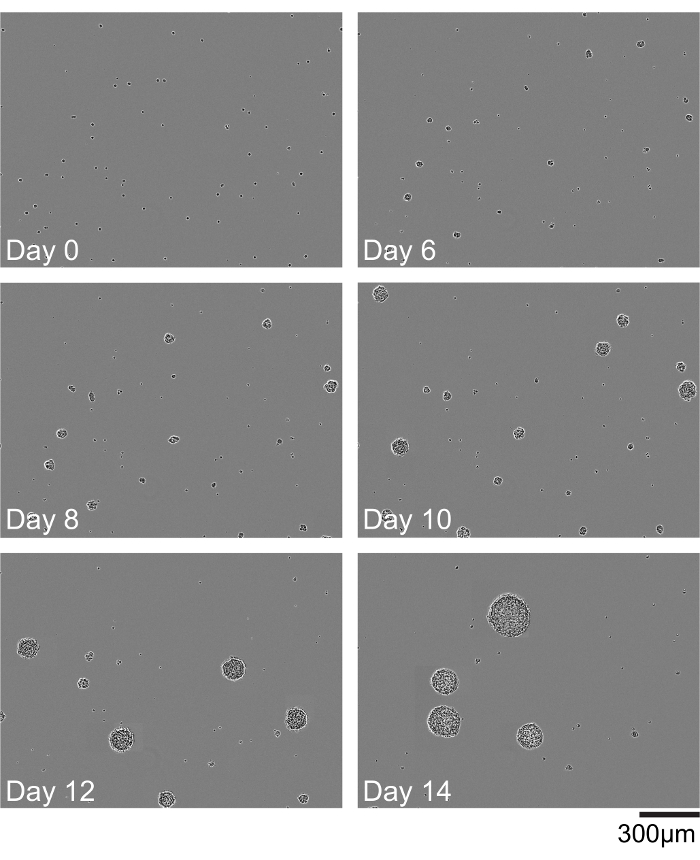
图1:BTSCs的培养。 这些图像展示了BTSCs从单个细胞培养形成神经球的代表性示例,培养周期为14天。此处显示的第14天神经球大小适于传代。 请点击此处查看此图的放大版本。
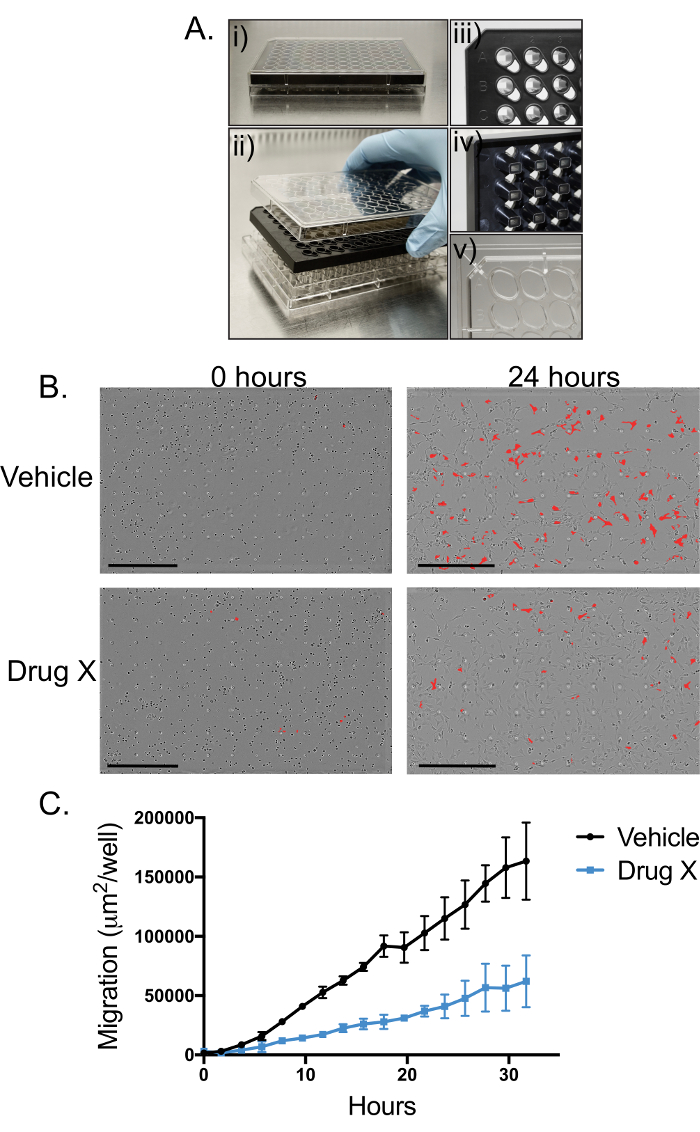
图2:BTSC迁移的活细胞成像。 (A) 这是一个在进行BTSC迁移实验前,预先包被了一层I型胶原蛋白的96孔趋化迁移板的示例。图中显示:i) 将盖板、膜插件和储液槽三部分组装在一起的完整板;ii) 三部分分离状态;iii) 膜插件顶部的近距离俯视图;iv) 膜插件底部的近距离视图;v) 储液槽底部的近距离图像。B) 这些是实验开始时(0 h)和 24 h 时 BTSC 迁移的代表性图像。图像聚焦于细胞最初接种的膜插件顶部。迁移至趋化迁移板底部的细胞以红色标出。在 0 h 时,仅有少量细胞迁移至膜的底侧。24 h 后,迁移细胞数量显著增加。经溶剂处理的细胞在 24 h 时图像的比较 与 药物X表明该药物处理可减少BTSC的迁移。比例尺代表 600 µm. (C该图展示了经溶剂或药物X预处理后BTSC迁移的定量结果。图表显示,药物处理对BTSC的迁移具有显著影响。数据点为三个技术重复孔的均值,误差条代表标准差(SD)。 请点击此处以查看该图的放大版本。
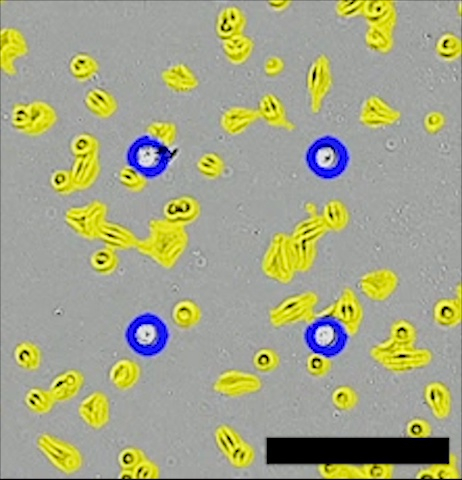
动画图 3:BTSC 迁移延时视频。 本视频展示了使用I型胶原包被的趋化迁移板进行BTSC迁移的过程。膜插件上表面的细胞以黄色标记,已迁移至膜插件下表面的细胞以红色标记,膜上的孔隙以蓝色标记。成像聚焦平面设定在膜下表面的细胞。该视频由每小时采集一次、持续51小时的延时图像组成,以每秒4帧的速度合成。比例尺代表200 µm。请点击此处观看该视频。(右键可下载。)
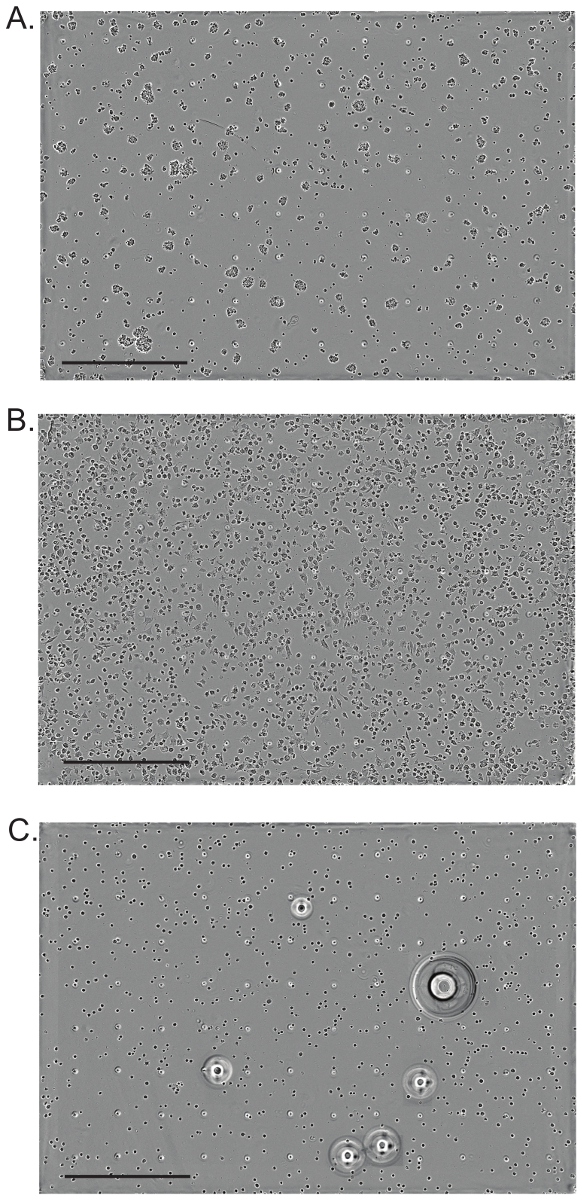
图 4:趋化迁移实验设置中常见错误示例。 (A)该图显示了在接种至趋化迁移板上层膜插件前,BTSCs 未完全解离的示例。由于细胞球体积较大,而膜孔较小,细胞无法迁移至下层储液室。 (B)该图显示了接种细胞过多的迁移实验示例。细胞聚集会干扰细胞迁移,并影响定量分析的准确性。 (C)该图显示了在接种 BTSCs 的膜插件上形成气泡的示例。气泡会导致图像质量下降,并阻碍迁移量的准确量化。比例尺为 600 µm。 请点击此处查看该图的高清版本。
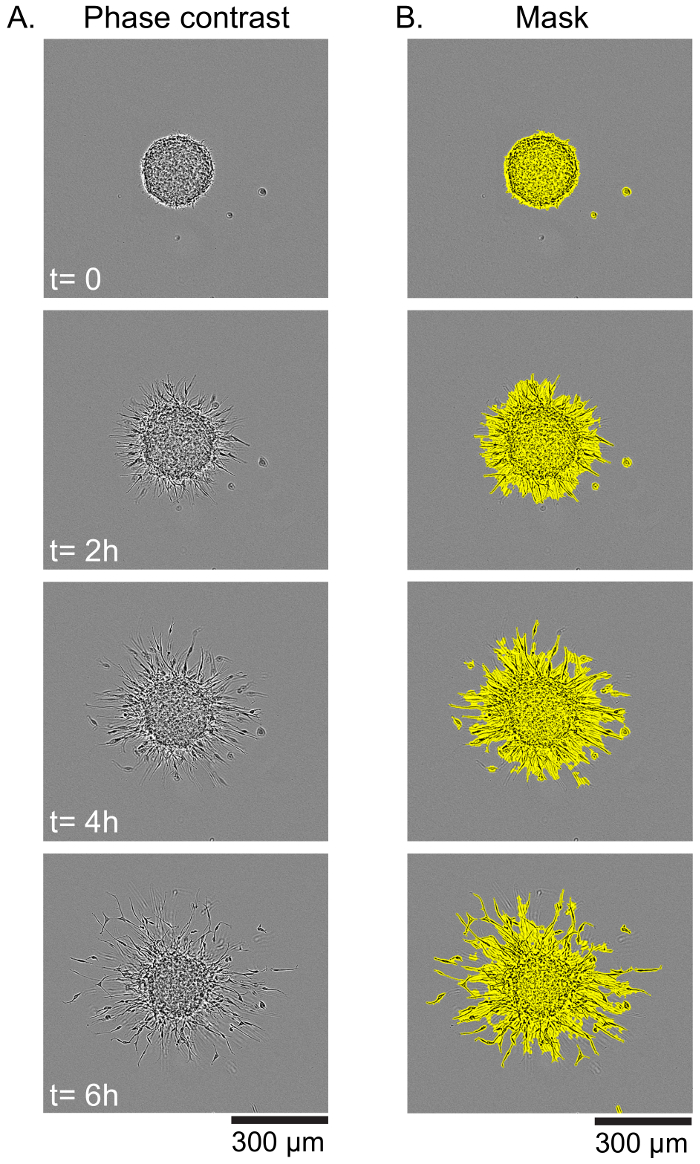
图 5:BTSC 神经球侵袭实验。 本图展示了一个 BTSC 从神经球侵入 0.4 mg/mL I 型胶原基质的示例,观察时间为 6 小时。其中,(A) 显示了各时间点的相差图像,(B) 叠加了代表性的定量掩膜图像,具体操作详见方案步骤 3。 请点击此处查看该图的高清版本。
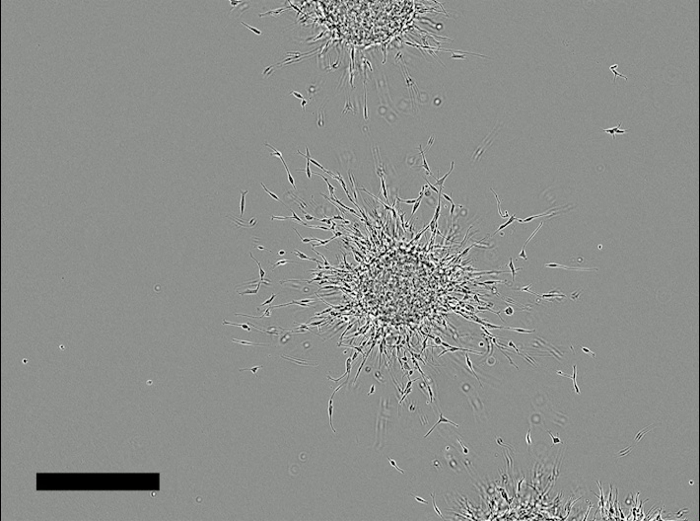
图6:BTSC神经球在I型胶原中的侵袭过程延时视频。 本视频展示了BTSC从神经球侵袭进入0.4 mg/mL I型胶原基质的过程(也如图5A中的静态图像所示)。图像使用10倍物镜每小时采集一次,持续12小时,并以每秒4帧的速度合成。比例尺为300 µm。请点击此处观看该视频。(右键可下载。)
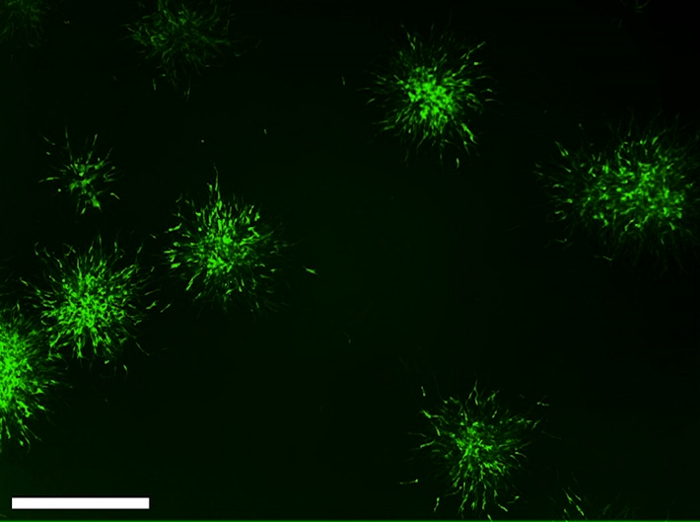
图 7:BTSC 神经球在模拟基底膜基质中的侵袭延时视频。 本视频展示了表达胞质 GFP 的 BTSC 从神经球侵袭进入模拟基底膜基质的过程。图像使用 4X 物镜每 30 分钟采集一次,持续 48 小时,并以每秒 8 帧的速度合成。比例尺代表 800 µm。请点击此处观看该视频。(右键可下载。)
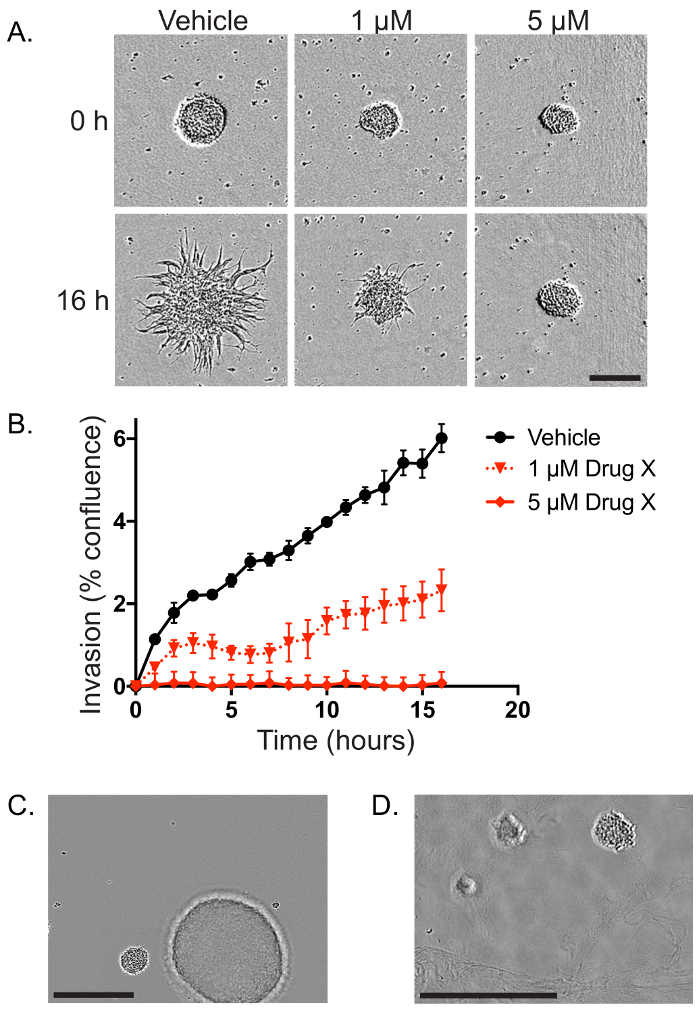
图8:经药物处理的BTSC神经球侵袭实验。(A)将BTSC神经球包埋于基底膜样基质中,基质中添加溶剂或指定浓度的药物X。每小时采集一次图像,此处显示的是接种时和16小时后的图像。比例尺为200 µm。(B)按照实验方案第3步所述,每小时定量分析BTSC从神经球向周围基质的侵袭情况。数据点为三个技术重复孔的平均值,误差线表示平均值的标准误(SEM)。(C)该图显示的是包埋于I型胶原中的BTSC神经球,其中神经球过大,无法进行定量分析。比例尺为300 µm。(D)该图显示的是包埋于I型胶原中的BTSC神经球,但胶原未完全凝固。比例尺为300 µm。请点击此处查看该图的放大版本。
| 胶原溶液制备 | |
| 胶原储存液浓度(mg/ml) | 5 |
| 终浓度胶原(mg/ml) | 0.4 |
| 所需孔数: | 5 |
| 总体积(μl) | 500 |
| 胶原储存液体积(μl) | 40 |
| 1N NaOH 体积(μl) | 0.92 |
| 培养基体积(μl) | 459 |
表1:0.4 mg/mL I型胶原溶液的制备。 列出了I型胶原溶液已知的起始浓度和目标终浓度。所列体积足以将神经球接种至三个重复孔,另加两孔余量,可包含一个处理条件,具体操作详见实验方案步骤3。
讨论
由于癌细胞具有活跃的增殖特性,这为细胞迁移研究带来了潜在的技术挑战。在本实验所描述的迁移实验中,BTSC细胞在无生长因子的条件下接种,以限制其增殖;同时,趋化迁移板中的趋化因子梯度在72小时内不会完全平衡。此外,由于实验过程中采用活细胞成像技术对细胞进行实时监测,可直接观察细胞是否发生广泛分裂。为了确保迁移实验的成功,接种前必须将神经球完全解离为单细胞,并准确计数细胞数量。若接种细胞团或接种细胞过多,导致细胞聚集,将阻碍细胞穿过微孔(图4A 和 4B)。在将细胞接种至趋化迁移板或将膜插件放置到底部储液室时,应避免产生气泡。气泡可能改变焦平面,影响定量分析的准确性(图4C)。整个板表面需均匀涂覆一层薄薄的胶原蛋白,因为这为细胞提供了可迁移的基底,使其能够附着并沿生物学相关表面迁移至趋化因子所在区域。
本文所述的BTSC迁移实验方案可用于评估单个细胞迁移的动力学过程,在测试不同处理条件时所需细胞数量少于现有方案。这对于生长非常缓慢的细胞培养体系尤为重要,因为很难收集到大量细胞用于实验。趋化迁移板的孔密度较低,使得趋化因子梯度的平衡过程更缓慢(超过72小时),从而在较长时间内更有效地模拟生物体内的趋化性迁移过程。本方案经过优化,在趋化迁移板上形成极薄的胶原蛋白涂层,以确保该检测反映的是细胞迁移而非侵袭行为。同时,这也有利于成像以及对黏附于膜插件表面胶原基质上的单个细胞进行定量分析。然而,该技术的一个局限性在于,若要对多个孔中随时间变化的细胞迁移情况进行定量分析,使用商业软件(见材料表)将大大简化并加快数据处理过程。本迁移检测方法的一个显著优势是其对多种其他细胞类型的广泛适用性,尤其适用于那些生长缓慢、黏附困难或迁移速度较慢的细胞系的趋化性迁移定量研究。
为了确保BTSC侵袭实验的成功,必须在神经球直径超过200 µm之前将其收集。过大的神经球其焦平面范围过大,难以进行一致的成像和定量分析(图5C)。此外,神经球可能开始相互聚集和黏连,这会影响数据的准确性和可重复性。另外,必须在胶原蛋白仍处于冰上时,让神经球沉降到孔板底部,以确保神经球能够在单一焦平面上成像(图5D)。同样重要的是,在胶原蛋白完全凝固之前不得移动孔板,否则可能破坏基质的均匀形成,从而对图像质量产生不利影响(图5D)。对于本研究所描述的BTSC侵袭实验,其主要优势之一是,以神经球形式培养的BTSC可直接用于侵袭能力评估,无需将其转为贴壁培养。此外,BTSC神经球可包埋于任何细胞外基质中,既可使用特定组织来源的细胞外基质单一组分,也可使用 commercially available 基底膜混合物。通过指定特定的细胞外基质,有助于识别或验证特定的侵袭机制。例如,利用本实验方案,可评估靶向基质金属蛋白酶基因家族中特定成员的效果,这些基因已知可降解特定的基质成分。此外,尽管本方案专门针对BTSC神经球,但其他以球状形式培养的细胞也可采用类似方法进行实验,例如以乳腺球形式培养的乳腺癌细胞或以肿瘤球形式培养的原代结直肠癌细胞;然而,该技术的应用范围仅限于能够在培养中形成球状结构的细胞类型。迁移和侵袭实验的其他优势还包括操作简便、适用于96孔板格式,并且数据可随时间进行量化分析。
总体而言,为了防止胶质母细胞瘤(GBM)治疗后的复发,开发能够促进对BTSC迁移和侵袭进行研究的方法至关重要。本文所述的迁移实验方案相较于以往建立的迁移检测方法具有诸多优势,尤其适用于GBM BTSC的研究。该改进的迁移实验方案包括将神经球培养条件下生长的BTSC进行解离,并将单细胞接种至96孔胶原包被的趋化迁移板中。利用活细胞成像系统,可随时间动态监测并量化BTSC的迁移行为。本文描述的侵袭实验则可用于监测BTSC从神经球向基质中的侵袭过程。该实验方法涉及将神经球包埋于96孔板中的胶原基质或其他富含蛋白质的细胞外基质中。通过活细胞延时成像系统对培养板进行成像,可随时间分析不同处理条件下BTSC的侵袭情况。因此,这些实验方法为希望深入理解BTSC迁移与侵袭机制的科研人员提供了有力的工具。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Rozina Hassam 和 Orsolya Cseh 提供的技术支持。本研究项目部分得到了加拿大创新基金会(资助对象:H. Artee Luchman 和 Samuel Weiss)以及加拿大干细胞网络(同样资助 H. Artee Luchman 和 Samuel Weiss)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 大鼠 I 型胶原蛋白 | Trevigen | 3440-100-01 | |
| Matrigel 基质 | Corning | 356230 | |
| NaOH | VWR | BDH3247-1 | |
| 乙酸 | Millipore Sigma | AX0073-6 | |
| 96 孔板 | Eppendorf | 30730119 | |
| T25 Nunc EasYFlask | ThermoFisher | 156367 | |
| Falcon 15 ml 圆底离心管 | ThermoFisher | 352096 | |
| Incucyte ClearView 96 孔趋化分析板 | Essen Bioscience | 4582 | |
| IncuCyte Zoom 活细胞成像分析系统 | Essen Bioscience | 4545 | |
| IncuCyte Zoom 活细胞分析软件 | Essen Bioscience | 2016A Rev1 | |
| Accumax 细胞解离液 | Innovative Cell Technologies | AM105 | |
| 青霉素、链霉素 | Sigma | P4333 | |
| 磷酸盐缓冲液(PBS) | Sigma | D8537 | |
| 细胞培养级水 | Lonza BioWhittaker | 17-724Q | |
| 胎牛血清(FBS) | Invitrogen | 12483-020 |
参考文献
- Stupp, R., et al. Radiotherapy plus concomitant and adjuvant temozolomide for glioblastoma. New England Journal of Medicine. 352 (10), 987-996 (2005).
- Holland, E. C. Glioblastoma multiforme: the terminator. Proceedings of the National Academy of Sciences. 97 (12), 6242-6244 (2000).
- Heddleston, J. M., et al. Glioma stem cell maintenance: the role of the microenvironment. Current Pharmaceutical Design. 17 (23), 2386-2401 (2011).
- Singh, S. K., et al. Identification of human brain tumour initiating cells. Nature. 432 (7015), 396-401 (2004).
- Galli, R. Isolation and Characterization of Tumorigenic, Stem-like Neural Precursors from Human Glioblastoma. Cancer Research. 64 (19), 1-12 (2004).
- Kelly, J. J. P., et al. Proliferation of Human Glioblastoma Stem Cells Occurs Independently of Exogenous Mitogens. STEM CELLS. 27 (8), 1722-1733 (2009).
- Cusulin, C., et al. Precursor States of Brain Tumor Initiating Cell Lines Are Predictive of Survival in Xenografts and Associated with Glioblastoma Subtypes. Stem Cell Reports. 5 (1), 1-9 (2015).
- Luchman, H. A., et al. Dual mTORC1/2 Blockade Inhibits Glioblastoma Brain Tumor Initiating Cells In Vitro and In Vivo and Synergizes with Temozolomide to Increase Orthotopic Xenograft Survival. Clinical Cancer Research. 20 (22), 5756-5767 (2014).
- Jensen, K. V., Cseh, O., Aman, A., Weiss, S., Luchman, H. A. The JAK2/STAT3 inhibitor pacritinib effectively inhibits patient-derived GBM brain tumor initiating cells in vitro and when used in combination with temozolomide increases survival in an orthotopic xenograft model. PLoS ONE. 12 (12), e0189670(2017).
- Nguyen, S. A., et al. Novel MSH6 Mutations in Treatment-Naive Glioblastoma and Anaplastic Oligodendroglioma Contribute to Temozolomide Resistance Independently of MGMT Promoter Methylation. Clinical Cancer Research. 20 (18), 4894-4903 (2014).
- Hemmati, H. D., et al. Cancerous stem cells can arise from pediatric brain tumors. Proceedings of the National Academy of Sciences. 100 (25), 15178-15183 (2003).
- Lee, J., et al. Tumor stem cells derived from glioblastomas cultured in bFGF and EGF more closely mirror the phenotype and genotype of primary tumors than do serum-cultured cell lines. Cancer Cell. 9 (5), 391-403 (2006).
- Menyhárt, O., et al. Guidelines for the selection of functional assays to evaluate the hallmarks of cancer. BBA - Reviews on Cancer. 1866 (2), 300-319 (2016).
- Boyden, S. The chemotactic effect of mixtures of antibody and antigen on polymorphonuclear leucocytes. The Journal of Experimental Medicine. 115, 453-466 (1962).
- Albini, A., et al. A Rapid in Vitro Assay for Quantitating the Invasive Potential of Tumor Cells. Cancer Research. 47 (12), 3239-3245 (1987).
- Liang, C. -C., Park, A. Y., Guan, J. -L. In vitro scratch assay: a convenient and inexpensive method for analysis of cell migration in vitro. Nature Protocols. 2 (2), 329-333 (2007).
- Naber, H. P., Wiercinska, E., Ten Dijke, P., van Laar, T. Spheroid Assay to Measure TGF-β-induced Invasion. Journal of Visualized Experiments. (57), (2011).
重印与许可
