本文的目的是提供一份全面、系统的指南,用于高效纯化组蛋白H3和H4,并定量分析乙酰化组蛋白残基。
本文内容
摘要
摘要
在所有真核生物中,染色质作为全部遗传信息的生理模板,对遗传至关重要。染色质会经历多种多样的翻译后修饰(PTMs),这些修饰主要发生在组蛋白的氨基末端即组蛋白尾部从核小体核心延伸出来,在细胞生长和分化过程中,可由组蛋白乙酰转移酶(HATs)添加乙酰基团,或由组蛋白去乙酰化酶(HDACs)去除乙酰基团。组蛋白尾部赖氨酸(K)残基上特定的乙酰化模式通过以下两种机制决定转录活性染色质与转录抑制染色质之间的动态稳态:(1)影响核心组蛋白的组装;(2)在转录位点招募协同或拮抗的染色质相关蛋白。组蛋白尾部翻译后修饰(PTMs)的复杂特性所构成的基本调控机制,影响了大多数以染色质为模板的生物学过程,从而导致正常及病理状态下细胞成熟与分化的改变。本报告旨在为初学者提供一种高效的方法,用于从细胞和脑组织中纯化核心组蛋白蛋白,并可靠地定量组蛋白H3和H4上的乙酰化修饰标记。
引言
表观遗传学是指在不依赖DNA序列改变的情况下,基因活性发生的可遗传变化1,2基因转录与抑制由以下两个因素决定:(1)染色体DNA的可及性,该DNA缠绕在由核心组蛋白蛋白八聚体(各含两份H2A、H2B、H3和H4)组成的核小体上;(2)转录因子和支架蛋白在特定启动子位点的可获得性3,4基因转录受到酶介导的特定DNA启动子区域修饰以及组蛋白尾部翻译后修饰的调控5,6,7组蛋白H3和H4的N端序列是真核生物中已知最高度保守的序列之一3,其翻译后修饰在决定染色质结构与功能中的核心作用已有广泛记载8,9组蛋白尾部的翻译后修饰(PTMs)即乙酰化、甲基化、磷酸化和泛素化)改变尾部的相互作用能力,影响染色质纤维的结构状态和折叠,从而调控DNA的可及性与加工过程4,10,11,12乙酰基团由一组特定的组蛋白相互作用表观遗传酶分别添加到组蛋白尾部的K残基上或从其上移除,这些酶分别为HATs和HDACs。13例如,组蛋白H4在赖氨酸12位点的乙酰化(H4K12ac)此前已被证明可激活与记忆获取和巩固相关基因的转录14此外,大量证据表明,酶介导的基因转录表观遗传调控是正常细胞生长与分化的重要环节6,15基因表达的表观遗传调控发生改变,无论是由于DNA的表观遗传修饰,还是表观遗传酶自身发生突变,均已被证实与人类疾病中的基因活性异常密切相关,而特定基因活性的改变往往是此类疾病的标志性特征。例如, 癌症6,16,17因此,核心组蛋白PTMs的变化评估正成为潜在治疗干预的重要靶点。然而,确定组蛋白PTMs的丰度、相互作用伙伴及其特定功能一直具有挑战性。18.
在本报告中,描述了一种经过优化的中通量策略,可用于从细胞和脑组织中单步纯化核心组蛋白,并提供了组蛋白H3和H4翻译后修饰(PTMs)定量的完整实验方案。值得注意的是,尽管目前基于酸的纯化技术和基于抗体的组蛋白检测方法已被广泛用于组蛋白表征,但这些方法在关键实验步骤方面缺乏详细的描述,从而阻碍了组蛋白快速且可重复的提取与定量。例如,细胞提取物和组织活检样本的处理需要不同的工具和技术才能成功提取。此外,本论文所呈现的优化方案展示了一种实用的中通量操作流程。核心组蛋白以单一且高纯度的组分被提取出来,从而可在后续基于抗体的PTM检测中避免杂质干扰,实现可靠检测。同时,本研究克服了因组蛋白分子量较小而带来的检测难题。通常情况下,纯化、定量与凝胶电泳方案之间缺乏兼容性,使科研人员难以获得可重复且具有明确结论的结果。本文提供了一种优化的工作流程,用于从细胞和组织中纯化核心组蛋白,并为其后续的PTM分析做好准备 通过 western blot 结果展示如下。
本方案可实现核心组蛋白蛋白的纯化,同时保留其天然的翻译后修饰(即乙酰化、甲基化和磷酸化)。图1展示了组蛋白纯化方案的时间线。
方案
所有小鼠均饲养于美国迈阿密大学米勒医学院经AAALAC认证的动物实验设施内,环境温湿度受控。所有实验均经迈阿密大学米勒医学院机构动物护理和使用委员会(IACUC)批准,并依照美国国立卫生研究院(NIH)的规定进行。.
1. 样品提取物的制备
- 贴壁细胞
- 将细胞以适当的培养基接种于10 cm培养皿中(细胞系如BV2、HEK-293和SH-SY5Y每皿接种量为1 × 10⁶ 至 1 × 10⁹ 个细胞,原代细胞如原代皮层神经元每皿接种量约为1 × 10¹⁵ 个细胞)。确保细胞在培养皿表面均匀分布,并在37 °C、5% CO2条件下培养48 h,使其生长至约100%融合度。
- 当细胞达到所需融合度后,在生物安全柜中轻轻吸除培养基,并用预热的无血清培养基洗涤细胞2次。
- 吸除无血清培养基,向每皿中加入1 mL冰预冷的提取缓冲液(0.4 M硫酸、1 mM KCl、1 mM MgCl2、50 mM Tris-HCl [pH 8.0] 及1×蛋白酶抑制剂混合物)。
- 使用塑料细胞刮刀将细胞连同提取缓冲液一起刮下,并用1,000 µL移液器转移至已标记的1.5 mL离心管中。上下吹打3次以促进匀浆化。
- 盖紧所有离心管,立即置于冰上。
- 脑组织
- 若使用冷冻组织,将组织置于预冷的1.5 mL离心管中,在冰上短暂解冻;若使用新鲜组织,则直接进入步骤1.2.2。
注:本方案描述的是使用冷冻小鼠脑组织及小鼠前额叶皮层样本的操作流程。 - 使用手持式Dounce匀浆器,加入适量提取缓冲液并按推荐次数进行研磨(见表1)。为避免染色质过度剪切,请勿超过推荐的研磨次数。
- 使用单通道1,000 µL移液器将匀浆液转移至预冷的1.5 mL离心管中。盖紧所有离心管,立即置于冰上。
- 若使用冷冻组织,将组织置于预冷的1.5 mL离心管中,在冰上短暂解冻;若使用新鲜组织,则直接进入步骤1.2.2。
2. 粗组蛋白提取物的制备
- 将含有细胞或组织悬浮于提取缓冲液中的1.5 mL离心管置于旋转平台上,在4 °C、15 rpm条件下旋转,以提取粗制组蛋白。
注意:不同细胞和组织类型的提取时间可能有所不同,需针对每个实验流程进行优化。本方案展示了分别经过15分钟、2小时和24小时提取后获得的结果(图2、图3、图4和图5)。 - 预先将微量离心机冷却至4 °C。达到所需提取时间后,在4 °C下以最大转速离心10分钟。
- 将含有粗制组蛋白的上清液转移至新的预冷1.5 mL离心管中,弃去沉淀。
- 将上清液储存在-80 °C(此步骤可作为暂停点,参见图1中的“暂停步骤”),或立即进行下一步操作。
- 用1/4体积的5×中和缓冲液对粗制组蛋白进行中和(例如,向1 mL粗制组蛋白中加入250 µL 5×中和缓冲液)。通过移液器上下吹打6次,充分混匀。
- 使用pH试纸检测混合液的pH值,并根据需要添加更多中和缓冲液,调节至pH 7。
- 按以下步骤评估粗制组蛋白提取物中组蛋白与非组蛋白的存在情况(图2)。
- 取37.5 µL样品加入12.5 µL 4×(Laemmli)上样缓冲液中,于99 °C变性10分钟。
- 将样品上样至SDS-PAGE凝胶,并在100 V电压下电泳运行1小时。
- 用考马斯亮蓝R-250染色液对凝胶染色过夜,随后用考马斯亮蓝R-250脱色液连续洗涤三次(每次1小时)进行脱色。
注意:粗制组蛋白(图2)可与洗脱并纯化的组蛋白(即,层析柱上样样品 [图5A])进行比较。
3. 核心组蛋白的纯化
- 离心柱平衡
- 向每个使用的离心柱中加入 500 µL 平衡缓冲液。切勿接触柱膜。
- 在 4 °C 条件下以 800 × g 离心 3 分钟。弃去穿流液。重复一次。
- 组蛋白纯化
- 将步骤 2.6 中得到的目标样品 500 µL 加入离心柱中。在 4 °C 条件下以 800 × g 离心 3 分钟。收集穿流液。
- 根据需要重复上一步骤,直至全部样品加载至离心柱中。切勿过度填充离心柱。
- 合并每次离心步骤的穿流液,用于分析离心柱的结合效率(图 3)。
- 按照步骤 2.7 分析离心柱穿流液。
- 离心柱洗涤
- 向每个离心柱中加入 500 µL 洗涤缓冲液。在 4 °C 条件下以 800 × g 离心 3 分钟。收集洗涤穿流液(洗涤液 #1)。
- 重复步骤 3.3.1,共进行三次洗涤。分别收集洗涤液 #2 和 #3。请勿混合连续的离心柱洗涤穿流液。
- 为进一步评估离心柱的组蛋白结合效率,按照步骤 2.7 分析三次洗涤的穿流液(图 4)。
- 组蛋白洗脱
- 将离心柱转移至一个新的已标记的 1.5 mL 离心管中。
- 加入 50 µL 组蛋白洗脱缓冲液。在 4 °C 条件下以 800 × g 离心 3 分钟。保留含有组蛋白的洗脱穿流液。
- 如需进行额外洗脱,重复步骤 3.4.2。请勿合并第一次和第二次的洗脱穿流液,因其组蛋白含量和纯度不同。
4. 核心组蛋白的沉淀
- 向纯化的组蛋白中加入高氯酸(PCA),使其终浓度为 4% PCA(例如,添加 3 µL 70% PCA 溶液 50 µL 来自步骤 3.4.2 的纯化组蛋白
- 离心3秒,使管壁残留液体全部沉至管底。用移液器吹打混匀6次。
- 将试管放入试管架中,在37°C下孵育24 h 4 °C.
- 第二天,将微量离心机预冷至 4 °C 并以最大速度离心样品75分钟 4 °C.
- 离心结束后,管底可见少量白色沉淀,其中含有沉淀的组蛋白。切勿涡旋样品。
- 小心吸去上清液,并在不扰动沉淀的情况下加入 500 µL 加入预冷的4% PCA溶液。
- 离心 4 °C 10分钟内以最高速度离心。小心吸除上清液。
- 重复步骤 4.7 两次。
- 在不扰动沉淀物的情况下,加入 500 µL 冰冷丙酮。在 4 °C 10分钟,最大转速离心。小心吸除上清液。
- 重复步骤 4.9,共 2 次。
- 小心吸去上清液,将离心管敞口放置,在冰上干燥样品30分钟。检查所有残留的丙酮是否已完全挥发。
- 将离心管敞口放置,在室温(RT)下干燥 5 分钟。
- 将沉淀重悬于 30 µL 无菌水。不要反复吹打。用手指轻轻弹击离心管。
- 盖上所有管盖,将组蛋白在冰上复溶 30 - 50 分钟,具体时间取决于沉淀物大小。检查沉淀物是否已充分重悬。
- 盖上所有管盖,室温静置5分钟,使沉淀进一步重悬。
注意:此溶液(步骤 3.4.3 中的第一和第二次洗脱液)包含已纯化并脱盐的组蛋白,可用于进一步的定量和组蛋白乙酰化分析。
5. 洗脱组蛋白的定量
- 根据制造商的操作说明使用分光光度计,对步骤 4.15 最终洗脱后获得的总组蛋白进行定量。在 230 nm 处测定吸光度,并记录 A260/A280 比值,该比值可指示样品中核酸污染的程度。
- 使用以下公式计算组蛋白浓度(x):
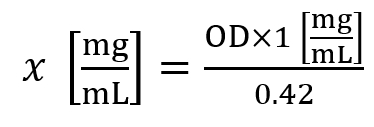
其中,OD 为在 A230 nm 处测得的光密度值。 - 对于细胞系,组蛋白浓度约为 1.5 mg/mL 视为平均得率;而对于 30 mg 组织,组蛋白浓度约为 5.0 mg/mL 视为平均得率。
6. 蛋白质印迹分析
- 将第4.15步纯化并洗脱的组蛋白调整至每样品约含10 µg组蛋白蛋白。
- 加入适量的水和4倍浓度的Laemmli上样缓冲液,以调整上样体积。
- 在99 °C下变性样品10分钟,然后置于冰上冷却。离心3秒以收集管壁上的所有残留液体和冷凝液。
- 将样品上样至SDS-PAGE凝胶,并在100 V电压下电泳运行1小时。
- 为观察总组蛋白蛋白,使用考马斯亮蓝R-250染色液对凝胶染色过夜,并用考马斯亮蓝R-250脱色液连续洗涤三次(每次1小时)进行脱色。
注意:第一次洗脱的组蛋白蛋白含有高质量的组蛋白(图5A),而第二次洗脱的组蛋白含量很低或几乎不含组蛋白(图5B)。 - 为定量组蛋白翻译后修饰(PTMs),使用转移系统(见材料表)将SDS-PAGE凝胶(步骤6.4)中的组蛋白蛋白转移至PVDF膜上。
- 组装转移三明治结构时,打开转移系统卡夹,将标记为Bottom+的PVDF膜组件放置在卡夹底部,膜面朝上。用印迹滚轮轻轻滚动,去除组件与膜之间的任何气泡。
- 将凝胶置于膜上方,用印迹滚轮轻轻滚动凝胶以去除膜与凝胶之间的气泡,然后将上层组件放置在凝胶上。再次轻轻滚动,盖上卡夹盖,用力按压,并顺时针旋转旋钮锁定。
- 将卡夹插入转移系统的插槽中。在仪器屏幕上选择Turbo Protocol。单个小型凝胶使用3分钟程序,两个以上小型凝胶使用7分钟程序。
- 用Ponceau S染色液染色膜5分钟,以观察总组蛋白蛋白。
- 用含0.1% Tween 20的1x Tris缓冲盐水(TBS)洗涤2小时,5%脱脂牛奶封闭1小时。随后加入一抗和二抗孵育(分别在4 °C过夜或室温1小时),或根据先前优化的实验方案进行操作。
注意:在本实验方案中,使用了针对乙酰化组蛋白H4K12(图6和图7)和H3K27(图8)的抗体。
结果
为展示组蛋白纯化流程的进展及所有分析组分的构成,我们对人源小胶质细胞BV2细胞的不同组蛋白提取物进行了评估。为演示组蛋白H3和H4翻译后修饰(即,乙酰化)的定量分析,我们使用了脑组织裂解液。
BV2 细胞以 5 x 10⁶ 每10 cm细胞培养皿中接种细胞,培养48小时至汇合。随后收集细胞,通过在含有0.4 M硫酸、1 mM KCl、1 mM MgCl₂的提取缓冲液中孵育,使组蛋白从染色质中释放。2,50 mM Tris-HCl(pH 8.0)及1×蛋白酶抑制剂。提取时间在15分钟至24小时之间,经考马斯亮蓝染色检测,对粗制组蛋白提取物的整体组成无显著影响(图2)。接下来,将粗制组蛋白通过已平衡的组蛋白柱,收集穿流液并进行分析。通过考马斯亮蓝染色检测穿流液中是否含有组蛋白蛋白,以此判断柱结合效率的高低。经检测,穿流液中未检测到组蛋白蛋白,因此确定柱结合效率为100%(图3)。所有结合组蛋白的膜均用洗涤缓冲液洗涤三次,以去除任何残留的杂质,仅保留结合在硅胶上的组蛋白。我们确定,对于所有组蛋白提取时间(即,15分钟、2小时和24小时),第一次膜洗涤对去除柱中的非组蛋白污染最为关键,而第二次和第三次洗涤对样品纯度无显著影响。因此,根据样品类型的不同,最后两次洗涤步骤可省略。在使用洗脱缓冲液(含1 mM NaCl和EDTA)首次从柱上洗脱组蛋白后,组蛋白通过4%高氯酸过夜沉淀,随后离心收集沉淀物,洗涤并分析纯化组蛋白H3和H4的富集情况。我们观察到,与15分钟和2小时的提取时间相比,24小时的提取时间可增加纯化组分中H3和H4组蛋白的含量图 5A)。柱层析的第二次洗脱未获得高质量或高产量的组蛋白(图 5B).
接下来,我们使用脑组织匀浆来定量组蛋白 H3 和 H4 的翻译后修饰(PTMs),即乙酰化水平。将野生型(C57BL6/J)雄性小鼠经口给予广谱 HDAC 抑制剂三丁酸甘油酯(tributyrin),剂量为 5 g/kg,连续给药 3 天。第 4 天采集全脑组织,并根据所述方案提取粗制组蛋白。采用非配对 t-测试,我们确定三丁酸甘油酯可增加粗提物中组蛋白的乙酰化水平(t(6) = 6.184, P = 0.0004);然而,提取物中检测到杂质(组蛋白条带未清晰定义)。因此,H4K12ac 抗体特异性不高图6)。为了进一步评估本方案在较小组织切片上的适用性,我们采集了经每日10 mg/kg M344(一种I类和IIb类HDAC抑制剂)处理四个月的三重转基因阿尔茨海默病(3 × Tg-AD)小鼠的前额叶皮层。组蛋白的提取与沉淀操作均按照本文所述方案进行。利用纯化的组蛋白H3和H4组分,我们确定M344可使H4K12乙酰化水平升高2.4倍(t(6) = 13.03, P < 0.0001),H4K12ac 抗体具有高特异性(图7同样,我们观察到在另一种HDAC抑制剂(即选择性HDAC3抑制剂RGFP-966)处理下,BV2细胞中组蛋白H3乙酰化水平升高。 10 µM RGFP-966 处理 24 小时后,组蛋白 H3K27 乙酰化水平大约升高两倍。采用非配对 Student's t 检验 t-检验用于比较对照组 与 处理后的细胞
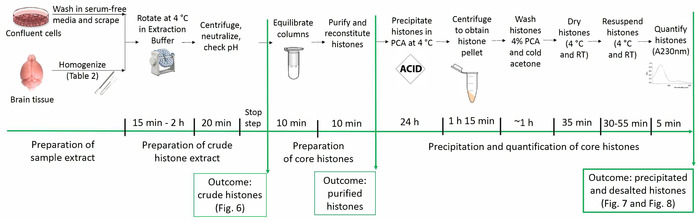
图 1:组蛋白纯化方案的时间线。 下方展示了组蛋白分析各步骤及每步所需的大致时间。括号内引用了文中展示特定步骤结果的对应图示。请点击此处查看此图的放大版本。

图2:考马斯亮蓝染色凝胶图,显示从BV2细胞中提取的粗制组蛋白。 BV2细胞在开始组蛋白提取实验前培养了48小时。分别在15分钟、2小时和24小时三个时间点提取粗制组蛋白,每个时间点设三个重复(同样适用于 图3, 图4,以及 图5非组蛋白和组蛋白均存在于粗制组蛋白提取物中。 请点击此处以查看此图的放大版本。

图 3:BV2 细胞组蛋白纯化步骤后穿流液的考马斯亮蓝染色凝胶代表性结果。粗提组蛋白经过组蛋白结合柱后,穿流液中仅含有非组蛋白蛋白质,该组分中不存在组蛋白。请点击此处查看该图的放大版本。
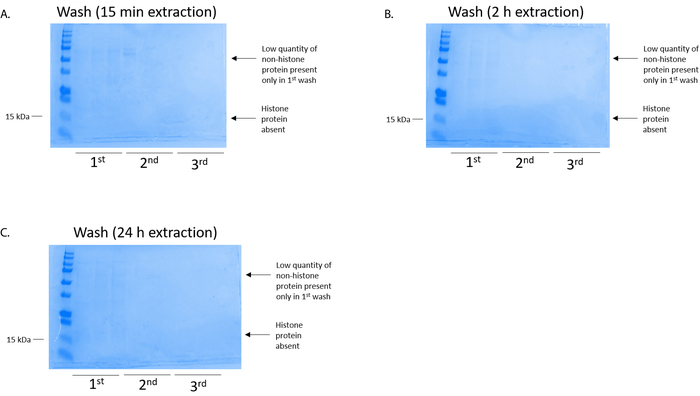
图 4:代表性考马斯亮蓝染色凝胶,显示从小鼠小胶质细胞 BV2 中纯化组蛋白后柱层析洗涤步骤的结果。无论组蛋白提取时间分别为(A)15 分钟、(B)2 小时或(C)24 小时,非组蛋白仅在第一次洗涤的组蛋白结合柱中微量存在。所有洗涤组分中均未检测到组蛋白。 请点击此处查看该图的放大版本。

图5:代表性考马斯亮蓝染色凝胶,显示从小鼠小胶质细胞BV2中纯化组蛋白后的洗脱结果。(A)在组蛋白纯化柱第一次洗脱后,检测到高质量的纯化并去盐的组蛋白H3和H4。(B)组蛋白纯化柱的第二次洗脱未获得高质量或高产量的组蛋白H3或H4。请点击此处查看该图的放大版本。
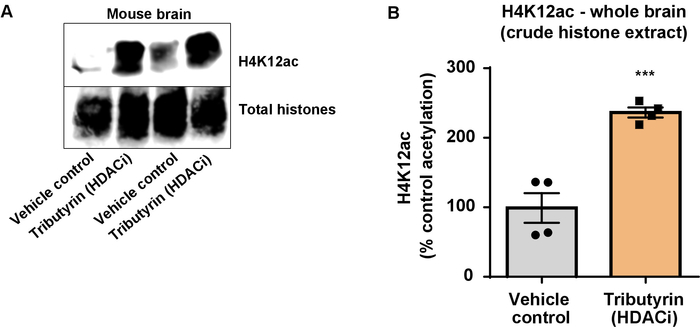
图6:广谱HDAC抑制剂三丁酸甘油酯可增加野生型小鼠全脑中H4K12的乙酰化水平。 (A) 该图显示了一张代表性 Western 印迹,表明在广泛作用的 HDAC 抑制剂曲古抑菌素 A 处理后,从小鼠全脑粗制组蛋白提取物中检测到 H4K12 乙酰化水平升高。B该图展示了 H4K12 乙酰化水平升高的定量结果 体内非配对 t-检验用于组间比较(t(6) = 6.076, P = 0.0005)。柱状图表示均值 ± 均值的标准误(SEM)。 N = 8. ***P < 0.0001. 请点击此处以查看此图的放大版本。
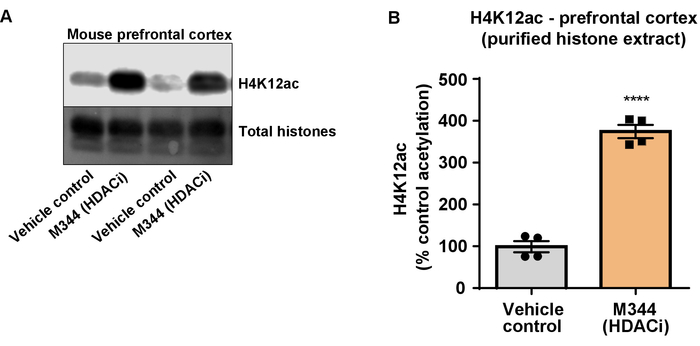
图7:I类和IIb类组蛋白去乙酰化酶抑制剂M344可增加三重转基因阿尔茨海默病(3 × Tg-AD)小鼠前额叶皮层中H4K12的乙酰化水平。(A)该图显示了一个代表性Western印迹结果,表明在3 × Tg-AD小鼠前额叶皮层中提取并经脱盐纯化的组蛋白样品中,H4K12乙酰化水平因M344对HDACs的抑制而升高。(B)该图显示了给予M344(每日10 mg/kg剂量,持续四个月)后H4K12乙酰化水平升高的定量分析结果。采用非配对t检验进行组间比较(t(6) = 13.30,P < 0.0001)。柱状图表示均值 ± 标准误(SEM)。N = 8。****P < 0.00001。请点击此处查看该图的放大版本。
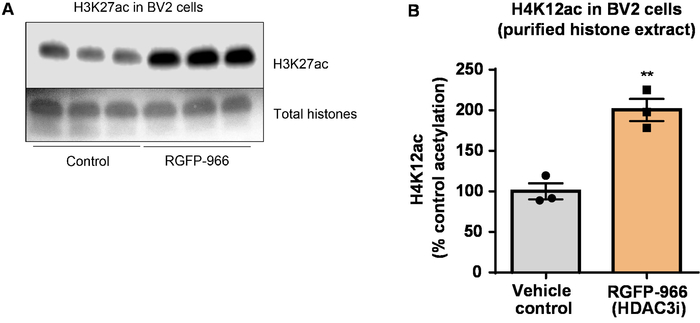
图8:选择性HDAC3抑制剂RGFP-966可增加BV2小胶质细胞中H3K27的乙酰化水平。 (A该图显示了一张代表性Western印迹,表明在RGFP-966抑制HDAC3后,从BV2细胞中提取并脱盐纯化的组蛋白样品中H3K27乙酰化水平升高。BRGFP-966 处理 24 小时后,组蛋白 H3 赖氨酸(K)27 位点的乙酰化水平大约增加两倍。未配对 t-检验用于比较对照组 与 处理后的细胞(t(4) = 5.981, P = 0.002)。柱状图表示均值 ± 标准误(SEM)。 N = 6. **P < 0.01. 请点击此处以查看此图的放大版本。
| 代表性组织(一侧半球)* | 平均组织重量(mg) | 裂解缓冲液体积(mL) | 研磨次数 |
| 小鼠小脑 | 40 | 1 | 40 |
| 小鼠额叶皮层 | 30 | 0.3 | 20 |
| 小鼠海马 | 27 | 0.3 | 18 |
| 小鼠内嗅皮层 | 19 | 0.3 | 17 |
| * 所有实验均使用成年雄性小鼠进行。 | |||
| 平均年龄:16 个月。平均体重:30 克。 | |||
表1:脑组织匀浆的优化条件。
讨论
在本研究中,我们展示了一种优化的纯化核心组蛋白蛋白并定量组蛋白H3和H4翻译后修饰(例如,乙酰化)的方法。本方案提供了一个完整的工作流程,涵盖了细胞和脑组织制备、粗提组蛋白纯化,以及详细的组蛋白沉淀、洗脱和定量步骤,后续还可进行组蛋白电泳和可靠的组蛋白翻译后修饰定量。尽管组蛋白样本操作过程较为耗时,但本文提供的大量细节信息可确保高质量数据的可重复生成。
目前许多已发表的实验方案需要使用高效液相色谱(HPLC)来分离组蛋白H3和H4的纯组分19。尽管HPLC是一种强大的技术,但其复杂性和低通量特性使得大多数分子生物学家和非专业人员很少频繁使用。事实上,许多实验室无法获得HPLC设备,且操作该仪器需要高技能的专业人员。HPLC通常耗时较长、成本较高,并可能带来潜在的安全风险。本文介绍了一种成本低廉、中等通量的策略,可获得与HPLC相当质量的结果,同时避免使用HPLC。所报道的策略更为实用,几乎适用于任何实验室,因为它采用简单的离心柱方法,无需特殊的仪器操作技能。此外,组蛋白H3/H4四聚体能够以单一、纯净且丰度较高的组分被提取出来,从而实现对每种蛋白质上保留的翻译后修饰(PTMs)进行可靠定量。
翻译后文本: PTMs 对氧化应激的变化和 pH 的变化极为敏感20,21因此,与先前发表的方法相比18我们报告了一种在无血清培养基中洗涤细胞的有效策略,以确保细胞的代谢干扰最小化,并避免血清成分对天然蛋白质翻译后修饰的干扰。本方案不仅绕过了传统的细胞核分离步骤,还提供了细胞裂解的最佳时间以及精确的组织匀浆程序,可在保持核膜完整性的同时避免细胞核聚集。尽管提取时间可根据细胞数量、细胞类型及组织大小进行调整, 等等。,延长裂解时间并不可取,因为它可能导致细胞核裂解和DNA释放,使样品难以处理。重要的是,本方案中设置了多个检查点,用于验证组蛋白纯化是否成功例如, 步骤2.7和3.2.3)。该策略还有助于在整个 lengthy 实验过程中进行故障排查。
本方案另一个重要且独特的特点是,可根据需要完全兼容下游的蛋白质印迹分析工具及其他检测方法。组蛋白的分子量约为 15 kDa13,22,23,与其他小分子量蛋白类似,使用常规免疫印迹技术检测时存在较大挑战。采用高性能、高通量的转膜系统,结合分辨率优化的蛋白凝胶,可在无 SDS 条件下保持蛋白质的天然构象及其活性,同时实现低分子量组蛋白的高效转膜,从而确保组蛋白翻译后修饰(PTM)定量结果的可靠性。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢佛罗里达州卫生部Ed和Ethel Moore阿尔茨海默病研究项目(资助编号6AZ08和7AZ26)、美国国立卫生研究院-酒精滥用与酒精中毒研究所(资助编号5R01AA023781-03)以及美国心脏协会(资助编号17PRE33660831)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | ThermoFiser Scientific | 05-408-129 | 或来自其他来源的等效产品 |
| 无菌水 | Gibco | 15-230-204 | 或来自其他来源的等效产品 |
| 70% 高氯酸 | Sigma Aldrich | 311421 | 或来自其他来源的等效产品 |
| 100% 丙酮 | Sigma Aldrich | 270725 | 或来自其他来源的等效产品 |
| pH 指示试纸,不褪色 | Milliipore Sigma | 1095310001 | |
| 4x SDS 样品缓冲液 | BIO-RAD | 161-0747 | |
| 台式离心机转子 | Cole-Parmer | UX-04397-34 | 或来自其他来源的等效产品 |
| 1.5 mL 离心管架 | ThermoFiser Scientific | 05-541 | 或来自其他来源的等效产品 |
| 组蛋白纯化小量试剂盒 | Active Motif | 40026 | 试剂盒中包含离心柱 |
| 蛋白酶抑制剂混合物 | ThermoFiser Scientific | 78430 | 或来自其他来源的等效产品 |
| Nanodrop 仪器 | ThermoFiser Scientific | ND-2000 | |
| 细胞培养皿 | VWR | 10062-880 | 用于从培养细胞中提取组蛋白 |
| 细胞培养基 | 根据所用细胞系而定 | 根据所用细胞系而定 | 用于从培养细胞中提取组蛋白 |
| 低血清培养基 | ThermoFiser Scientific | 51985091 | 用于从培养细胞中提取组蛋白 |
| 塑料细胞刮刀 | Falcon | 353086 | 用于从培养细胞中提取组蛋白 |
| SDS-PAGE 梯度凝胶 | BIO-RAD | 456-9035 | 用于从培养细胞中提取组蛋白 |
| 考马斯亮蓝 R-250 染色液 | BIO-RAD | 1610436 | 用于从培养细胞中提取组蛋白 |
| 考马斯亮蓝 R-250 脱色液 | BIO-RAD | 1610438 | 用于从培养细胞中提取组蛋白 |
| Trans-Blot Turbo Mini PVDF 转膜试剂包 | BIO-RAD | 1704156 | 用于从培养细胞中提取组蛋白 |
| Trans-Blot Turbo 转膜系统 | RIO-RAD | 1704150 | 用于从培养细胞中提取组蛋白 |
| Ponceau S 染色液 | CellSignalling | 59803S | 用于从培养细胞中提取组蛋白 |
| Dounce 匀浆器(容量 7 mL,小间隙尺寸) | Kimble Chase | 885302-0007 | 用于从组织中提取组蛋白 |
| 100% 漂白剂 | Clorox | 68973 | 用于从组织中提取组蛋白 |
| H4K12ac 抗体 | Active Motif | 39166 | 用于通过 WB 定量翻译后修饰 |
| H3K27ac 抗体 | Active Motif | 39134 | 用于通过 WB 定量翻译后修饰 |
参考文献
- Holliday, R. Is there an Epigenetic Component in Long-term Memory? Journal of Theoretical Biology. 200, 339-341 (1999).
- DeWoskin, V. A., Million, R. P. The epigenetics pipeline. Nature Reviews Drug Discovery. 12, 661-662 (2013).
- Eberharter, A., Becker, P. B. Histone acetylation: a switch between repressive and permissive chromatin. EMBO Reports. 3, 224-229 (2002).
- Grunstein, M. Histone acetylation in chromatin structure and transcription. Nature. 389, 349-352 (1997).
- Sartor, G. C., Powell, S. K., Brothers, S. P., Wahlestedt, C. Epigenetic Readers of Lysine Acetylation Regulate Cocaine-Induced Plasticity. The Journal of Neuroscience. 35, 15062-15072 (2015).
- Komatsu, N., et al. SAHA, a HDAC inhibitor, has profound anti-growth activity against non-small cell lung cancer cells. Oncology Reports. 15, 187-191 (2006).
- Bahari-Javan, S., Sananbenesi, F., Fischer, A. Histone-acetylation: a link between Alzheimer's disease and post-traumatic stress disorder. Frontiers in Neuroscience. 8, 160(2014).
- Roh, T. -Y., Cuddapah, S., Zhao, K. Active chromatin domains are defined by acetylation islands revealed by genome-wide mapping. Genes & Development. 19, 542-552 (2005).
- Mutskov, V., Felsenfeld, G. Silencing of transgene transcription precedes methylation of promoter DNA and histone H3 lysine 9. The EMBO Journal. 23, 138-149 (2004).
- Howe, L., Brown, C. E., Lechner, T., Workman, J. L. Histone acetyltransferase complexes and their link to transcription. Critical Reviews in Eukaryotic Gene Expression. 9, 231-243 (1999).
- Jenuwein, T., Allis, C. D. Translating the histone code. Science. 293, 1074-1080 (2001).
- Bowman, G. D., Poirier, M. G. Post-Translational Modifications of Histones That Influence Nucleosome Dynamics. Chemical Reviews. 115, 2274-2295 (2015).
- Volmar, C. -H., Wahlestedt, C. Histone deacetylases (HDACs) and brain function. Neuroepigenetics. 1, 20-27 (2015).
- Plagg, B., Ehrlich, D., Kniewallner, K. M., Marksteiner, J., Humpel, C. Increased Acetylation of Histone H4 at Lysine 12 (H4K12) in Monocytes of Transgenic Alzheimer's Mice and in Human Patients. Current Alzheimer Research. 12, 752-760 (2015).
- Bhaskara, S., et al. Hdac3 is essential for the maintenance of chromatin structure and genome stability. Cancer Cell. 18, 436-447 (2010).
- Mottamal, M., Zheng, S., Huang, T. L., Wang, G. Histone Deacetylase Inhibitors in Clinical Studies as Templates for New Anticancer Agents. Molecules. 20, 3898-3941 (2015).
- Ramakrishnan, S., et al. HDAC 1 and 6 modulate cell invasion and migration in clear cell renal cell carcinoma. BMC Cancer. 16, 617(2016).
- Wapenaar, H., Dekker, F. J. Histone acetyltransferases: challenges in targeting bi-substrate enzymes. Clinical Epigenetics. 8, 59(2016).
- Klinker, H., Haas, C., Harrer, N., Becker, P. B., Mueller-Planitz, F. Rapid Purification of Recombinant Histones. PLoS ONE. 9, e104029(2014).
- Chen, K., et al. Neurodegenerative Disease Proteinopathies Are Connected to Distinct Histone Post-translational Modification Landscapes. ACS Chemical Neuroscience. 9, 838-848 (2018).
- Simithy, J., Sidoli, S., Garcia, B. A. Integrating Proteomics and Targeted Metabolomics to Understand Global Changes in Histone Modifications. Proteomics. , e1700309 (2018).
- Volmar, C. -H., et al. An Epigenetic Approach for the Modulation of Amyloid Precursor Protein (APP) Processing and Improvement of Memory in Alzheimer's Disease. Neuropsychopharmacology: official publication of the American College of Neuropsychopharmacology. 40, S470(2015).
- Volmar, C. -H., et al. M344 promotes nonamyloidogenic amyloid precursor protein processing while normalizing Alzheimer’s disease genes and improving memory. Proceedings of the National Academy of Sciences. 114 (43), E9135-E9144 (2017).
重印与许可
