我们介绍一种荧光生成型肽切割检测方法,可快速筛选蛋白酶对代表病毒融合肽切割位点的肽段的蛋白水解活性。该方法也可用于蛋白质序列中任何其他氨基酸基序,以检测蛋白酶活性。
方法文章
一种用于筛选蛋白水解活性的荧光生成肽切割检测法:在冠状病毒刺突蛋白激活中的应用
* These authors contributed equally
本文内容
摘要
摘要
冠状病毒或流感病毒等包膜病毒需要对其融合蛋白进行蛋白水解切割,才能感染宿主细胞。这些病毒通常表现出细胞和组织嗜性,并适应特定细胞或组织中的蛋白酶。此外,病毒在复制过程中可能在基因组中引入突变或插入序列,从而影响切割过程,进而促进其对新宿主的适应。本文介绍一种基于荧光的肽段切割检测方法,可用于快速筛选模拟病毒融合蛋白切割位点的肽段。该技术具有高度灵活性,既可用于研究单一蛋白酶对多种不同底物的蛋白水解活性,也可用于探索多种蛋白酶对一种或多种肽段底物的切割活性。在本研究中,我们使用了模拟冠状病毒刺突蛋白切割位点基序的肽段,检测了来源于人类和骆驼的中东呼吸综合征冠状病毒(MERS-CoV),证明切割位点中的单个或双氨基酸替换可改变弗林蛋白酶(furin)的活性,并显著影响切割效率。我们还将该方法与生物信息学分析相结合,检测了不同血清型和毒株的猫冠状病毒刺突蛋白的弗林蛋白酶切割活性。相较于传统用于分析病毒蛋白水解活性的方法,这种基于肽段的检测方法更节省人力和时间,结果可在一天内获得。
引言
病毒与宿主细胞膜的融合是包膜病毒生命周期中的关键步骤,有助于病毒进入细胞并进行复制。通常,病毒具有特化的蛋白(或多种蛋白),可结合宿主细胞膜上的受体,并触发病毒与细胞膜的融合1。病毒融合蛋白已被分为三大类(I–III)1。目前对公共卫生构成重大威胁的多种病毒,例如流感病毒(代表长期从禽类跨种传播的病原体)和中东呼吸综合征冠状病毒(MERS-CoV)(代表近期从骆驼跨种传播的病原体),均利用所谓的I类融合蛋白,且其发挥融合活性需要宿主蛋白酶对其进行蛋白水解加工2。类似地,对野生和家养猫科动物构成重大疾病威胁的猫冠状病毒(FCoV),也具有I类融合蛋白。I类病毒融合蛋白通常以未切割的前体形式合成,一般包含两个功能域,分别负责受体结合和触发膜融合过程。迄今为止,流感病毒血凝素(HA)是研究最为清楚的融合蛋白,已有大量研究阐述了其在宿主细胞入侵和膜融合过程中的分子机制3。在此情况下,融合蛋白的切割发生在HA内部特定的序列或切割位点,结合pH依赖性的构象变化,最终导致病毒融合肽的暴露1,2。
融合肽及其上游的蛋白酶识别序列对病毒的致病性及宿主适应性至关重要。蛋白酶识别序列的改变可显著影响其切割效率,从而可能对病毒和宿主产生重大后果。4一方面,它可以抑制切割,从而阻断病毒的生命周期;但另一方面,突变可能增强特定蛋白酶对底物的特异性,和/或允许 "新" 蛋白酶以切割融合蛋白。随后,如所观察到的,这也能扩展细胞和组织嗜性。 例如, 甲型流感病毒亚型5,6通常,由于激活这些病毒的蛋白酶分布局限,低致病性禽流感(LPAI)病毒和大多数人流感病毒仅局限于胃肠道或呼吸道。这类血凝素(HA)蛋白的融合肽前通常含有一段由1至2个非连续碱性氨基酸组成的四氨基酸序列,可被胰蛋白酶样丝氨酸蛋白酶(如胰蛋白酶、matriptase或TMPRSS2)识别。7,8当病毒获得插入或突变,使其裂解位点变为多碱性位点时,可使弗林蛋白酶(furin)激活血凝素(HA),从而可能导致更严重的全身性感染6,9这些病毒被称为高致病性禽流感病毒(HPAI),以H5N1毒株为代表。
与流感病毒HA不同,许多冠状病毒(如MERS-CoV)在其刺突蛋白中具有两个不同的切割位点。S1/S2位点将N端受体结合域(S1)与C端融合域(S2)分开,而在S1/S2位点下游靠近融合肽处存在第二个切割位点,称为S2′。10有研究提出,这些位点是依次被切割的,先在S1/S2位点切割,随后在S2'位点切割。与大多数流感病毒株的血凝素(HA)不同,MERS-CoV刺突蛋白的S1/S2和S2'位点可被前体蛋白转化酶(proprotein convertase, PC)家族的蛋白酶(如弗林蛋白酶furin)识别。该酶家族通常在含有R/K-(X)n-R/K基序的成对碱性氨基酸位点处进行切割。0,2,4,6-精氨酸/赖氨酸(X代表任意氨基酸)2通常,切割位点上游的氨基酸被称为P1、P2、P3, 等等从切割位点开始计数,其下游的氨基酸被标记为P1'、P2'、P3' 等等.11猫冠状病毒(FCoV)毒株可能具有单个或双个切割位点。与MERS-CoV类似,某些FCoV毒株在其S蛋白中也具有两个切割位点(S1/S2和S2')。然而,这一特征仅见于血清型I的FCoV(A分支)。相比之下,血清型II(B分支)的成员仅具有单个切割位点(S2')。2,12已有多种蛋白酶被提出可切割FCoV的切割位点,包括弗林蛋白酶(furin)、类胰蛋白酶(trypsin-like proteases)和组织蛋白酶(cathepsin)。研究表明,肠道型FCoV(又称猫肠道冠状病毒,FECV)的S蛋白可能在S1/S2位点被弗林蛋白酶切割,而该位点(以及S2'位点)的突变会导致其对蛋白酶需求的改变。这些突变与病毒嗜性及致病性的变化相关,可使病毒转变为全身性感染并具有巨噬细胞嗜性,即发展为猫传染性腹膜炎病毒(FIPV)。13.
病毒在每次复制周期中会自然地将其基因组引入突变,且经常产生新的亚型和毒株 流感、MERS-CoV 和 FCoV 被描述14,15,16作为评估新发病毒对公共卫生威胁的快速评价的一部分,研究裂解位点的变化及其对激活这些病毒的蛋白酶谱的影响至关重要。本文描述了一种基于多肽的检测方法,可快速评估MERS-CoV刺突蛋白裂解位点的改变如何影响特定蛋白酶的底物特异性,并可用于快速筛选多种蛋白酶对特定或多个序列的裂解能力4在第二组实验中,我们采用该技术测定不同猫冠状病毒血清型和毒株的弗林蛋白酶切割活性。
本实验中所用的肽经过荧光共振能量转移(FRET)对修饰,其N端连接7-甲氧基香豆素-4-基乙酰基(MCA),C端连接2,4-二硝基苯基(DNP)。在实验过程中,激发MCA后发出的光能只要MCA与DNP彼此靠近,就会被DNP淬灭。然而,一旦发生肽链切割,DNP便不再能淬灭MCA的荧光发射,此时荧光信号可被荧光酶标仪检测。通过测量实验过程中荧光信号的变化,可确定肽的切割速率,并计算蛋白酶切割该特异性肽的速度(即Vmax)17。
为了设计多肽,必须已对相应融合蛋白的基因进行测序,或已在数据库中提供。然而,与传统方法相比,该方法所需劳动强度和成本较低,传统方法通常需要将融合蛋白基因克隆到表达载体中,并在哺乳动物细胞中表达,以分析其切割情况。从开始到结束,传统方法可能需要数天至数周时间,而一旦多肽和蛋白酶可用,本文所述的多肽检测可在一天内完成。根据样本数量,实验的建立需时5至30分钟,荧光酶标仪的运行时间为1小时。数据分析可能再次需要最多2小时,具体时间取决于样本量。
本文中,我们选择了两个不同的示例来展示该检测方法。在第一个示例中,我们展示了比较人源和骆驼源MERS-CoV经弗林蛋白酶(furin)介导的切割数据,以评估骆驼源毒株在跨越物种屏障后是否具有在人体内被激活的潜力。在第二个示例中,我们采用荧光肽检测法分别确定两种I型和两种II型猫冠状病毒(FCoV)毒株S1/S2与S2′位点或S2′位点的弗林蛋白酶介导的切割情况。在这些实验中,我们使用胰蛋白酶切割作为阳性对照。
方案
1. 肽的设计与制备
- 从公共数据库(如 NCBI(https://www.ncbi.nlm.nih.gov/)或病毒病原体数据库(https://www.viprbrc.org))获取目标融合蛋白的序列。选择位于融合肽上游的蛋白酶识别位点,并包含该序列上下游各 2-3 个氨基酸。
- 订购多肽时,在其N端修饰FRET配对物7-甲氧基香豆素-4-基乙酰基(MCA),C端修饰N-2,4-二硝基苯基(DNP)。
注意:多家供应商提供此类修饰产品,价格和交货时间取决于所选供应商。然而,也存在其他可选的修饰方法,其灵敏度不同,且需要根据波长对酶标仪进行相应调整。 - 根据制造商的建议,通过轻轻吹打使肽重新悬浮。例如,将肽溶解于70%乙醇中,终浓度为1 mM。
- 如有需要,若多肽通过移液难以充分重悬,可将含有多肽和溶剂的离心管置于超声水浴中,直至完全重悬。
- 将多肽分装至避光或耐光管中,以防止多肽漂白。分装体积宜小,以避免多次冻融循环。例如, 100 µL。将分装样品储存在 -20°C。
2. 准备荧光酶标仪
- 打开酶标仪,等待自检完成。
- 在连接的计算机上启动操作软件,并确保其与酶标仪已连接。
- 打开温度设置,将温度设定为 30 °C(或根据蛋白酶最佳活性所需的温度)。
- 点击 控制 | 仪器设置 以配置实验参数。
- 选择“动力学”模式。
- 选择“荧光”检测模式。
- 输入激发波长和发射波长:分别为 330 nm 和 390 nm。
- 取消勾选“自动截止”。
- 选择“中等”,正常灵敏度。
- 设定实验运行时间为 1 小时,每 60 秒进行一次检测。
- 设置首次检测前混匀 5 秒,每次检测前混匀 3 秒。
- 选择需要读取的孔位并开始实验。
3. 准备检测
- 通过计算每种成分的适当用量并加入来配制测定缓冲液。对于弗林蛋白酶(furin),配制含有100 mM HEPES、1 mM CaCl2、1 mM 2-巯基乙醇和5% Triton X-100的缓冲液。对于胰蛋白酶(trypsin),使用标准的磷酸盐缓冲盐水(PBS)溶液。
注意:10 mL 或更少的体积已足够。缓冲液的组成根据测定中所用蛋白酶的不同而有所变化。 - 将缓冲液置于冰上冷却。
- 将测定板放置在冰上,并在下方垫一块薄金属板以增强冷却效果和稳定性。使用底部平坦、未经处理的实心黑色聚苯乙烯96孔板。
注意:必须使用黑色板,以防止相邻孔之间的荧光"串扰"。 - 根据以往文献或实验数据,计算每个反应所需添加的蛋白酶适量。对于弗林蛋白酶,每个反应使用1个单位,相当于0.5 µL。对于胰蛋白酶,每个反应使用0.5 µL的160 nM TPCK处理的胰蛋白酶。
- 每个样品在每次测定中设置3个技术重复,每份样品总体积为100 µL。
注意:已通过实验评估,在正常光照或弱光条件下进行移液操作无显著差异。然而,肽类样品不应长时间暴露于光线下。 - 向每个孔中加入适量的测定缓冲液(如步骤3.1所述,为94.5 µL)。
- 向每个孔中加入蛋白酶。对于弗林蛋白酶和TPCK胰蛋白酶,每个样品均加入0.5 µL。在6个孔中(3个为空白对照,3个为肽段对照),不加相应的蛋白酶,而是加入0.5 µL缓冲液。
- 向除空白对照孔外的每个孔中加入肽段,使其终浓度为50 µM。本实验中,移取5 µL按步骤1.3所述配制的肽段溶液;在空白对照孔中则加入5 µL缓冲液代替肽段。
注意:最初测试了多种肽段浓度与所述酶浓度的组合,以确保酶已被饱和。 - 将板插入荧光酶标仪,点击开始运行。
4. 数据分析
- 保存实验文件。
- 点击 导出,将文件导出为 .txt 格式。
- 将 .txt 文件导入电子表格中。
- 针对每个样本的技术重复,绘制相对荧光单位(RFU)随时间变化的曲线图,其中 y 轴为相对荧光单位(RFU),x 轴为时间(补充图 1)。
- 选择曲线呈线性范围且最接近荧光信号起始上升阶段的数据区间。
- 将所选数据绘制在第二个图表上,并添加线性趋势线。
- 在趋势线选项中选择 在图表上显示公式,该公式将显示 Vmax 值。
- 根据 3 次技术重复的结果,计算每个样本的平均 Vmax 值。
- 重复实验两次,共获得 3 次生物学重复。
- 基于 3 次独立的生物学重复数据,计算标准差。
结果
在本研究的第一部分,我们使用了代表三种不同MERS-CoV刺突蛋白S2'切割位点的多肽:分别来自典型的人源EMC/2012毒株(Genbank AFS88936.1),以及两株分别从埃及和摩洛哥分离的骆驼源MERS-CoV毒株NRCE-HKU205(Genbank AHL18090.1)和Mor215(Genbank AVN89324.1)(表1)16,18。
与 EMC/2012 毒株相比,HKU205 毒株的 S2' 裂解位点在 P2 和 P1' 位置存在两个突变,可能影响其被弗林蛋白酶(furin)识别的能力,从而改变裂解效率(表 1)。此外,我们还希望探究 HKU205 毒株中每个单独突变对弗林蛋白酶裂解的影响。因此,我们设计了两种肽段,分别将 HKU205 毒株中的单个突变引入 EMC/2012 毒株的肽段序列中(EMC/2012 mutA-S S2' 和 EMC/2012 mutS-I S2')(表 1)。实验结果显示,弗林蛋白酶能够高效裂解 EMC/2012 肽段,其 Vmax 为 6.3 ± 1.2 RFU/min;而使用 HKU205 毒株的 S2' 肽段时,几乎未检测到裂解活性(Vmax 为 0.5 ± 0.1 RFU/min)(图 1a)。在检测 EMC/2012 mutA-S S2' 肽段时,我们发现其裂解效率相较于野生型序列显著降低(Vmax 为 3.6 ± 1 RFU/min)。而在测试 EMC/2012 mutS-I S2' 肽段时,裂解几乎未发生(Vmax 为 1.1 ± 0.9 RFU/min)(图 1a)。
最近有报道称,在西非分离到的MERS-CoV毒株在系统发育上与中国阿拉伯半岛发现的MERS-CoV不同16。其中一种新近报道的分离株为Mor213株,其S2'位点P4位置携带亮氨酸而非精氨酸(表1),这可能影响其被弗林蛋白酶识别的能力,并改变切割效率。我们的肽段检测结果显示,与EMC/2012毒株位点相比,Mor213 S2'位点的切割程度极低(图1b)。Mor213肽段的Vmax为1.0 ± 0.1。
在本研究的第二部分中,我们采用相同的肽段检测方法评估了弗林蛋白酶介导的猫冠状病毒(FCoV)刺突蛋白(S蛋白)裂解位点的裂解情况。我们使用了模拟两种FCoV血清型I病毒S1/S2裂解位点的肽段:FECV I And-4(来自Whittaker实验室)和FIPV I Black(Genbank AB088223.1)。此外,我们还使用了模拟这些病毒S2'位点的肽段,以及两种FCoV血清型II病毒的相应肽段:FECV II 1683(Genbank AFH58021.1)和FIPV II 1146(Genbank AAY32596.1)(表1)。通常情况下,当裂解位点的P1和P4位置存在碱性残基(精氨酸和赖氨酸)时,弗林蛋白酶可介导裂解。P1、P4和P1'位置的突变被认为会干扰弗林蛋白酶的裂解能力,从而改变蛋白对蛋白酶的需求(表1)。实验结果显示,典型的S1/S2肽段FECV I And-4 S1/S2可被弗林蛋白酶裂解(Vmax为100.36 ± 7.61 RFU/min),而突变型S1/S2肽段FIPV I Black S1/S2则未观察到裂解活性(Vmax为-1.37 ± 1.29 RFU/min)(图2A)。类似地,弗林蛋白酶能够裂解典型的S2'肽段FECV II 1683 S2'(Vmax为5.46 ± 0.97 RFU/min),但无法裂解突变型S2'肽段FECV I And-4 S2'(Vmax为0.26 ± 0.11 RFU/min)、FIPV I Black S2'(Vmax为0.30 ± 0.14 RFU/min)以及FIPV II 1146 S2'(Vmax为-0.36 ± 0.11 RFU/min)(图2B)。我们使用胰蛋白酶作为肽段裂解的阳性对照,结果显示所有测试的肽段均可被胰蛋白酶裂解(补充图2)。
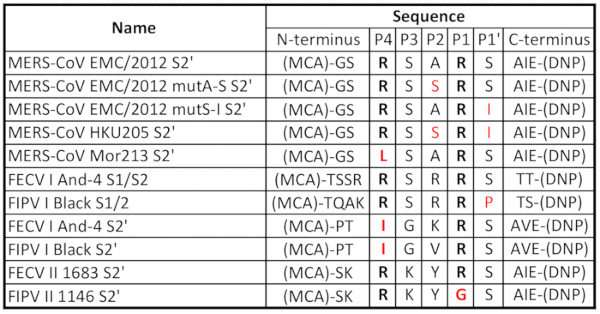
表1. 使用的肽及其对应的氨基酸序列。 实验中使用的肽含有(7-甲氧基香豆素-4-基)乙酰基/2,4-二硝基苯基(MCA/DNP)FRET对。P4和P1切割位点处被弗林蛋白酶(furin)识别的精氨酸(R)残基以粗体显示。红色显示的残基表示相对于参考序列的突变。
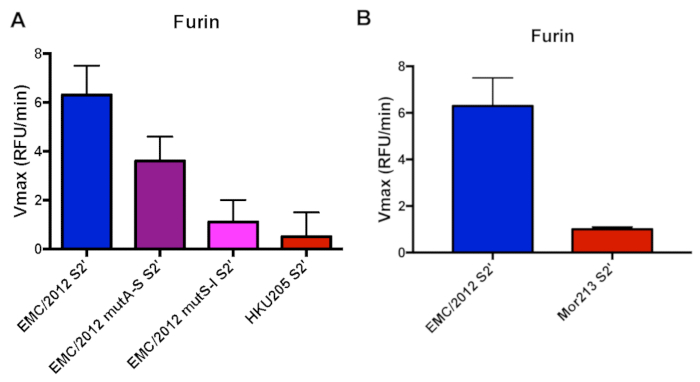
图 1。弗林蛋白酶介导的人源与骆驼源MERS-CoV S2'位点荧光肽的蛋白水解切割。A. 人源MERS-CoV EMC/2012 S2'位点与骆驼源毒株HKU205(双突变体)以及EMC/2012的单突变体(mutA-S和mutS-I)的弗林蛋白酶切割实验。 B. 人源MERS-CoV EMC/2012 S2'位点与骆驼源毒株Mor213的弗林蛋白酶切割实验。在图 A 和 B 中,将肽段与重组弗林蛋白酶共同孵育,并使用荧光仪检测蛋白水解反应引起的荧光增强。实验重复三次,结果为三次独立实验(n=3)Vmax平均值。误差线表示标准差(SD)。 请点击此处查看该图的放大版本。
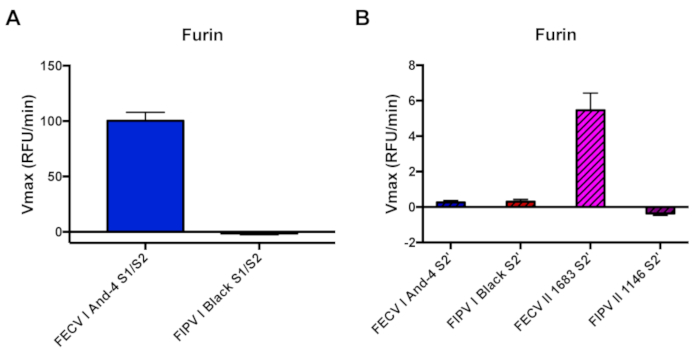
图 2.Furin 介导的 FCoV S1/S2 和 S2' 位点荧光肽的蛋白水解切割。 A. FECV I And-4 和 FIPV I Black S1/S2 位点的 Furin 切割实验。将肽段与重组 Furin 共同孵育。B. FECV I And-4、FIPV I Black、FECV II 1683 和 FIPV II 1146 S2' 位点的 Furin 切割实验。通过荧光计检测蛋白水解加工引起的荧光增强。实验重复三次,结果为三次独立实验(n=3)Vmax 平均值。误差线表示标准差(SD)。请点击此处查看该图的放大版本。
补充表1:用于图1和图2的Vmax值。 Vmax值根据补充图1所示的曲线图计算得出,具体方法见方案第4部分。 请点击此处下载该表格。
补充 图1:酶标仪软件导出的原始数据示意图。用于测定 Vmax 的随时间变化的荧光强度曲线图。请点击此处下载该图。
补充 图2:胰蛋白酶介导的 FCoV S1/S2 和 S2' 位点荧光肽的蛋白水解切割。 FECV I And-4 和 FIPV I Black 的 S1/S2 位点,以及 FECV I And-4、FIPV I Black、FECV II 1683 和 FIPV II 1146 的 S2' 位点的胰蛋白酶切割实验。请点击此处下载该图。
讨论
本文介绍一种荧光生成肽检测方法,可用于快速筛选蛋白序列被蛋白酶蛋白水解切割的特性。在我们的第一个示例中,我们选择了MERS-CoV刺突(S)蛋白的不同切割位点基序,以说明该检测方法的一种应用。许多具有I类融合蛋白的包膜病毒,如MERS-CoV、SARS-CoV(严重急性呼吸综合征冠状病毒)和流感病毒,对公共卫生构成重大威胁,且不断出现新的亚型,有可能从其天然宿主跨越物种屏障传播给人类1,15,16。在实验室中分离并培养这些病毒并不总是可行,或需要特殊的实验设施,而并非所有研究机构都具备此类条件。因此,亟需能够在常规实验室条件下评估新发病毒对公共卫生潜在威胁的方法。除了感染人类的病毒外,某些动物病毒(如FCoV)也具有相同的I类融合蛋白,因而与其人类对应病毒具有相似的特征。分离这些动物病毒同样存在挑战,因此有必要采用创新工具对其进行研究。
上述病毒生命周期中的一个关键步骤是宿主细胞进入以及由宿主蛋白酶对相应融合蛋白进行蛋白水解加工所介导的膜融合过程1,2。研究病毒生命周期这一环节的常规方法是将融合蛋白基因克隆到哺乳动物表达载体中,转染能够表达该蛋白的哺乳动物细胞,随后与目标蛋白酶共孵育或共转染,分离蛋白并进行蛋白质印迹(western blot)分析。该方法存在若干局限性:克隆所需的病毒DNA/RNA可能难以获得;若无可用的DNA或RNA,则需合成基因,成本较高;检测融合蛋白及其切割产物所需的特异性抗体可能不易获得;此外,完成整个研究可能需要数周时间。如果研究目的涉及对切割位点的多个突变进行分析,则还需进行定点突变,使得实验更加耗时、费力且成本高昂。而本文所描述的荧光肽检测方法则不存在这些限制。目标肽段可根据公开可获取的序列进行设计,目前有多个供应商可提供适用于此类研究的多种重组蛋白酶,且该检测方法从实验操作到数据分析可在一天内完成。
在本示例中,我们研究了由来自埃及和摩洛哥的人类及骆驼样本中获得的MERS-CoV刺突蛋白S2'蛋白酶识别位点经弗林蛋白酶(furin)介导的切割情况。人类EMC/2012株和骆驼HKU205株的S2'位点均含有典型的RXXR弗林蛋白酶切割基序。然而,根据PiTou 2.0切割评分算法预测,HKU205的S2'位点不会被弗林蛋白酶切割,该结果也通过实验得以证实19。HKU205 S2'位点无法被弗林蛋白酶加工的原因,可能是由于其P1'位置存在异亮氨酸(isoleucine)。当我们检测了两个在EMC/2012 S2'序列中分别携带单个突变的多肽时,证实P1'位置的异亮氨酸几乎完全阻断了切割,而丙氨酸到丝氨酸的替换则导致切割效率降低。Mor213的S2'位点不含弗林蛋白酶切割基序,因此几乎未检测到切割现象,这并不意外。我们还研究了弗林蛋白酶如何切割猫冠状病毒(FCoV)刺突蛋白的S1/S2和S2'蛋白酶识别位点。我们观察到弗林蛋白酶能够切割两种猫肠冠状病毒(FECV)多肽(FECV I And-4 S1/S2和FECV II 1683 S2'),而来源于猫传染性腹膜炎病毒(FIPV)的突变序列则不能被弗林蛋白酶切割。
在比较EMC/2012 S2'肽(图1A)与FECV I And-4 S1/2肽(图2A)的弗林蛋白酶介导切割时,我们发现其Vmax存在约26倍的差异。这一现象可通过两个序列中的弗林蛋白酶切割基序加以解释(表1)。尽管弗林蛋白酶切割的最低要求是RXXR基序,但RXRR序列的切割效率显著更高2。因此,具有RSAR基序的EMC/2012 S2'肽与含有RSRR弗林蛋白酶切割位点的FECV I And-4 S1/2肽相比,其切割特异性较低(表1)。
然而,该检测方法的一个主要局限性在于,这些肽段无法反映其通常所嵌入的蛋白质的三级结构。全长融合蛋白的裂解会暴露融合肽,并触发宿主细胞的入侵。1蛋白酶与融合蛋白之间的相互作用可能受到融合蛋白三级结构的影响,而我们假设肽段基本呈线性。因此,肽段检测中观察到的切割可能为人工假象,未必反映真实情况 体内 这种情况在matriptase切割流感H3N2血凝素(HA)亚型的研究中已有报道。尽管多个研究团队在肽段实验中描述了matriptase对H3N2 HA的切割作用,但也有研究显示,在细胞培养条件下将全长H3N2 HA蛋白与matriptase共孵育,并未产生具有融合活性的HA蛋白。4,20,21还有其他例子表明,蛋白水解切割的生物学重要调控发生在蛋白质构象水平。已有研究描述,融合蛋白有时需要经历一系列融合前事件,才能暴露其切割位点以进行融合。例如,塞姆利基森林病毒(Semliki Forest virus)的融合蛋白需要在多个融合前事件中发生结构重排,才能暴露其融合蛋白,使其可被蛋白酶切割激活。22因此,荧光生成肽检测所获得的结果需要通过细胞融合实验或类似实验进行验证。然而,该肽检测方法仍可实现对多种蛋白酶/肽组合的快速筛选,从而减少后续实验的工作量和时间,因为未显示切割作用的组合极有可能在后续实验中呈现相同结果 体内.
该检测方法的第二个主要局限性涉及蛋白酶。目前仅能检测可溶性蛋白酶,而无法检测跨膜蛋白酶。根据实验目的的不同,这可能成为一个问题。例如,流感病毒血凝素(HA)可被多种位于细胞膜上的跨膜蛋白酶激活8。在一定程度上,可以使用可溶性的蛋白酶催化活性结构域来绕过这一问题,但结果需谨慎解读,并应通过传统方法进行验证。我们以之前提到的matriptase及其对H3N2 HA的活性为例进行说明。体内的matriptase定位于细胞膜,但市面上可获得的酶仅为可溶性催化结构域。正如在融合蛋白讨论中所提及的,可能需要完整的全长蛋白酶与全长底物蛋白相互作用才能实现有效切割,而仅测试单一结构域可能导致假阳性结果。
该方法已证明可用于研究弗林蛋白酶(furin)对特异性氨基酸序列的切割作用。然而,该技术的应用范围可扩展至任何可获得的蛋白酶(例如,组织蛋白酶、前体蛋白转化酶),因此成为筛选蛋白酶切割肽段候选物的有效方法。此外,已有研究表明,该检测方法还可用于评估蛋白酶抑制剂的效果,从而为筛选蛋白酶抑制剂提供了一种快速且简便的工具23。
此处所述的荧光生成性肽切割检测法可作为生物信息学切割评分算法的补充,该算法基于氨基酸特性及序列来预测特定蛋白酶对肽的切割。这两种技术若与传统的蛋白质印迹法相结合,可成为研究蛋白酶切割作用的有效方法 体外.
披露
作者无任何利益冲突需要披露。
致谢
本研究中MERS项目的科研经费由NIH资助项目R21 AI111085提供。猫冠状病毒研究得到了Morris Animal Foundation、Winn Feline Foundation以及康奈尔大学猫健康中心科研基金的支持。我们还要感谢Malik Peiris在Mor213序列尚未公开时即提供给我们使用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 多肽 | Biomatik | N/A | |
| Furin | NEB | P8077S | |
| 经TPCK处理的胰蛋白酶 | Sigma-Aldrich | 4352157-1KT | |
| HEPES | Sigma-Aldrich | H3375 | |
| CaCl2 | Sigma-Aldrich | C1016 | |
| 2-巯基乙醇 | Sigma-Aldrich | M6250 | |
| Triton-X100 | Sigma-Aldrich | X100 | |
| PBS | 康宁 | 21-040-CV | |
| SpectraMax Gemini XPS | Molecular Devices | XPS | |
| SoftMax Pro 6.5.1 | Molecular Devices | N/A | |
| 96孔板(实心黑色聚苯乙烯,平底,未处理) | Costar | 3915 | |
| 轻阻尼管 | 沃森实验室 | 131-915BL 或 131-915BR | |
| Microsoft Excel | 微软 | N/A | |
| Prism 7 | GraphPad | N/A |
参考文献
- Harrison, S. C. Viral membrane fusion. Virology. 479-480, 498-507 (2015).
- Millet, J. K., Whittaker, G. R. Host cell proteases: Critical determinants of coronavirus tropism and pathogenesis. Virus Research. , (2014).
- Hamilton, B. S., Whittaker, G. R., Daniel, S. Influenza virus-mediated membrane fusion: Determinants of hemagglutinin fusogenic activity and experimental approaches for assessing virus fusion. Viruses. 4 (7), 1144-1168 (2012).
- Straus, M. R., Whittaker, G. R. A peptide-based approach to evaluate the adaptability of influenza A virus to humans based on its hemagglutinin proteolytic cleavage site. PloS one. 12 (3), e0174827(2017).
- Kawaoka, Y., Webster, R. G. Sequence requirements for cleavage activation of influenza virus hemagglutinin expressed in mammalian cells. Proceedings of the National Academy of Sciences of the United States of America. 85 (2), 324-328 (1988).
- Abdelwhab, E. S. M., et al. A Unique Multibasic Proteolytic Cleavage Site and Three Mutations in the HA2 Domain Confer High Virulence of H7N1 Avian Influenza Virus in Chickens. Journal of Virology. 90 (1), 400-411 (2016).
- Steinhauer, D. Role of hemagglutinin cleavage for the pathogenicity of influenza virus. Virology. 258 (1), 1-20 (1999).
- Böttcher-Friebertshäuser, E., Klenk, H. D., Garten, W. Activation of influenza viruses by proteases from host cells and bacteria in the human airway epithelium. Pathogens and disease. 69 (2), 87-100 (2013).
- Horimoto, T., Nakayama, K., Smeekens, S. P., Kawaoka, Y. Proprotein-processing endoproteases PC6 and furin both activate hemagglutinin of virulent avian influenza viruses. Journal of Virology. 68 (9), 6074-6078 (1994).
- Belouzard, S., Chu, V. C., Whittaker, G. R. Activation of the SARS coronavirus spike protein via sequential proteolytic cleavage at two distinct sites. Proceedings of the National Academy of Sciences. 106 (14), 5871-5876 (2009).
- Polgar, L. General Aspects of Proteases. Mechanisms of Protease Action. , 43-76 (1989).
- Whittaker, G. R., André, N. M., Millet, J. K. Improving Virus Taxonomy by Recontextualizing Sequence-Based Classification with Biologically Relevant Data: the Case of the Alphacoronavirus 1 Species. mSphere. 3 (1), 1-8 (2018).
- Licitra, B. N., et al. Mutation in spike protein cleavage site and pathogenesis of feline coronavirus. Emerging Infectious Diseases. 19 (7), 1066-1073 (2013).
- Sanjuan, R., Nebot, M. R., Chirico, N., Mansky, L. M., Belshaw, R. Viral Mutation Rates. Journal of Virology. 84 (19), 9733-9748 (2010).
- Trombetta, C., Piccirella, S., Perini, D., Kistner, O., Montomoli, E. Emerging Influenza Strains in the Last Two Decades: A Threat of a New Pandemic? Vaccines. 3 (1), 172-185 (2015).
- Chu, D. K. W., et al. MERS coronaviruses from camels in Africa exhibit region-dependent genetic diversity. Proceedings of the National Academy of Sciences. , 1-6 (2018).
- Caprioli, R. M., Smith, L. Determination of Km and Vmax for Tryptic Peptide Hydrolysis Using Fast Atom Bombardment Mass Spectrometry. Analytical Chemistry. 58 (6), 1080-1083 (1986).
- Millet, J. K., Goldstein, M. E., Labitt, R. N., Hsu, H., Daniel, S., Whittaker, G. R. A camel-derived MERS-CoV with a variant spike protein cleavage site and distinct fusion activation properties. Emerging microbes and infections. 5 (12), e126-e129 (2016).
- Tian, S., Huajun, W., Wu, J. Computational prediction of furin cleavage sites by a hybrid method and understanding mechanism underlying diseases. Scientific Reports. 2, (2012).
- Hamilton, B. S., Gludish, D. W. J., Whittaker, G. R. Cleavage Activation of the Human-Adapted Influenza Virus Subtypes by Matriptase Reveals both Subtype and Strain Specificities. Journal of Virology. 86 (19), 10579-10586 (2012).
- Beaulieu, A., et al. Matriptase Proteolytically Activates Influenza Virus and Promotes Multicycle Epithelium Replication in the Human Airway. Journal of virology. 30 (878), 4237-4251 (2013).
- Hammar, L., Markarian, S., Haag, L., Lankinen, H., Salmi, A., Holland Cheng, R. Prefusion rearrangements resulting in fusion peptide exposure in Semliki Forest virus. Journal of Biological Chemistry. 278 (9), 7189-7198 (2003).
- Hamilton, B. S., Chung, C., Cyphers, S. Y., Rinaldi, V. D., Marcano, V. C., Whittaker, G. R. Inhibition of influenza virus infection and hemagglutinin cleavage by the protease inhibitor HAI-2. Biochemical and Biophysical Research Communications. 450 (2), 1070-1075 (2014).
重印与许可
