在本实验方案中,我们演示了如何繁殖墨西哥盲鱼(Astyanax mexicanus)成鱼,培育其幼体,并对后幼体阶段的鱼类进行整体免疫组织化学染色,以比较表型栖息地型与洞穴型之间的表型差异。
本文内容
摘要
摘要
适应河流和洞穴环境的Astyanax mexicanus种群在形态、生理和行为方面表现出差异。针对成体形态比较的研究已揭示了其中部分差异的遗传基础。然而,关于这些种群在仔鱼后期阶段(开始摄食时)的差异了解较少。此类研究可能有助于理解洞穴鱼如何在其自然环境中存活至成年。在实验室中比较仔鱼后期发育的方法需要标准化的养殖和喂养方案。本文描述了如何在受精后两周内,使用富含营养的轮虫作为饲料,并在非循环水系统中培育鱼类。我们展示了如何从此类育苗系统中收集仔鱼后期的鱼体,并进行整体免疫染色。对于研究A. mexicanus的发育过程和基因功能而言,免疫染色是一种优于转基因表达分析的替代方法。此外,该育苗方法也可作为建立密度匹配种群的标准操作流程,用于后续生长至成鱼阶段的研究。
引言
墨西哥盲鱼, Astyanax mexicanus 是一种鱼类的单一物种,存在栖息于河流中的种群(即表层鱼)和多个栖息于洞穴中的种群(即洞穴鱼),后者以其所栖息的洞穴命名(即, 天纳哈、莫利诺、帕琼)。越来越多的研究人员正在使用 A. mexicanus 研究行为的遗传与发育基础1,2,3,4,代谢5,6,7,8,以及形态演化9,10,11可用于研究的资源 A. mexicanus 包含一个已测序并注释的基因组12;转录组13;发育分期表14以及繁育方法15,16,17,创建转基因生物18以及基因编辑19传播更多工具和更新的标准实验方案将加速洞穴鱼研究领域的发展(参见本方法合集)20).
我们的目标是通过提供一种可靠的方法来扩展现有的工具库,以在不同实验室之间可比地评估后幼体阶段 A. mexicanus 个体中基因活性的 原位 检测。实现这一目标面临两个挑战。首先,各实验室之间需要建立标准化的孵化与饲养方案,因为投喂频率和饲养密度等参数的差异会影响鱼类的生长与发育,从而影响基因活性。其次,需要一种既标准化又具备适应性的方法,用于检测后幼体鱼中基因活性的表达模式。本文中,我们针对这些问题提出了解决方案,建立了将鱼类培养至后幼体阶段的标准操作规程,并介绍了一种可靠的全组织免疫组织化学(IHC)技术,用于检测 A. mexicanus 中的基因表达。
我们首先演示如何通过自然产卵繁殖鱼类,并鉴别受精卵。接下来描述如何孵化受精卵(获得仔鱼),并将仔鱼转移至育苗容器中,在不循环或更换水体的条件下,以每容器20尾鱼的密度饲养两周。受精后第5天,鱼体已发育至后仔鱼阶段(卵黄供应已耗尽),此时提供以藻类喂养的Brachionus plicatilis(轮虫)作为营养丰富的饵料,该饵料无需每日补充。该方法可为仔鱼及后仔鱼的发育提供稳定一致的生长参数。
为了评估基因功能,我们演示了如何将鱼从育苗容器中取出并进行整体免疫组织化学染色(IHC)。本研究所采用的IHC方法改编自适用于Danio rerio21的实验方案,可有效检测所有已测试的A. mexicanus组织中的抗原,包括脑、肠和胰腺。相较于构建转基因动物以研究基因表达和蛋白质定位,IHC是一种更快速的替代方法。该实验方案将有助于开展关于A. mexicanus的培养研究,并可用于比较表型鱼与洞穴鱼在幼体后阶段的表型差异。
方案
本方案中所述的所有操作程序均已获得哈佛医学院机构动物护理和使用委员会(IACUC)的批准。
1. 杂交育种
注意:已有多种已发表的繁殖方法15,16,17,20也可用于此步骤。在繁殖前,成年鱼类在23 °C条件下维持10:14的光暗循环,并每天投喂一次颗粒饲料(参见材料表)。鱼类可在带有机械过滤和紫外灭菌的循环水系统中进行繁殖。也可在静水(非循环)水族箱中完成繁殖,但鱼类在静水水族箱中不应超过3天,因为水质会迅速恶化。
- 用适合鱼类生存的水(去氯水,并调节至:pH = 7.1 ± 0.2,电导率 = 900 ± 150 µS,温度 = 23 °C)注满一个5加仑的水箱。
- 在水箱底部放置塑料网(参见材料)。若在静水水箱中进行繁殖,将水温加热器固定在水箱侧壁;若在循环水系统中繁殖,则将加热器置于系统集水槽中。
注意:塑料网可防止成鱼吞食鱼卵。 - 将一条雌性及两条雄性年龄超过1年的 A. mexicanus 鱼放入水箱中,让其适应环境30分钟。
- 将加热器温度设定为24 °C(或比起始温度高1 °C)。
- 24小时后,将温度升高1 °C。
- 再经过24小时后,再次将温度升高1 °C。在此3天期间,每天使用手电筒照射水箱底部检查是否有鱼卵,并在此期间停止喂食。
- 若经过3天仍未诱导产卵,则关闭加热器,使水温恢复至室温(RT),然后将鱼移回原始水箱。
2. 孵化受精卵
- 一旦在繁殖缸中发现卵,立即移除成鱼和塑料网,并使用烧杯或杯子将水位降低至10 cm。
注意:为估算产卵时间,可用移液管取数枚卵置于培养皿中,利用体视显微镜观察其发育阶段14,进而推算受精时间。 - 将繁殖缸移至便于操作的工作台面,清除不透明的卵或粪便,仅保留缸内半透明且具活力的受精卵。
注意:此时可记录具活力卵的数量。 - 用适合鱼类的水(见步骤1.1)注满繁殖缸,并在注水过程中向缸内加入6–7滴亚甲蓝。
注意:亚甲蓝的终浓度约为1.5 ppm。 - 在缸内放入加热棒和气石(连接空气泵并配备调速阀)。
- 将加热棒设定为24 °C,并调节气流控制阀,使气泡缓慢而均匀地释放。
- 在缸口加盖,以帮助维持水温。
注意:卵通常在产卵后24小时内开始孵化。
3. 将孵化的幼虫转移到育苗容器中
- 加入20 g盐(参见 材料) 加入8升已备好的养鱼用水(见步骤1.1),搅拌至完全溶解。将每个1.5升的育苗容器(见 材料) 用1升配制好的水冲洗。
- 使用移液管将孵化后的幼鱼转移至已准备好的育苗容器中,每个容器放20尾鱼。
注意:使用头灯有助于定位和转移孵化的幼虫。 - 在移除所有可见的孵化幼虫后,通过搅拌,和/或用移液管向水箱的边缘和角落吹入水流,搅动水体。
注意:这有助于发现首次检查时遗漏的幼虫。 - 在此阶段,根据实验室福利办公室(OLAW)的指南处理未使用的幼虫。向容器中加入次氯酸钠,使其终浓度达到6.15%。静置至少5分钟后,再倒入下水道。
- 每天观察育苗容器,并及时清除任何死亡的幼体。用受精的日期和时间标记每个育苗容器。
4. 轮虫类鱼饲料的制备
- 有关轮虫的获取信息,请参见材料表。按照引用的实验方案建立、维持并收获轮虫22。
- 通过将3 mL藻类混合物(见材料表)加入1 L收获的轮虫中来制备鱼食。该混合物将直接添加到育苗容器中作为食物来源。
5. 仔鱼后期的投喂
- 当鱼类发育至受精后5天(dpf)时,向每个育苗容器中加入3 mL鱼食(按步骤4.2制备)。在最佳密度下,轮虫应在育苗容器的角落处成团密集可见,而在容器中央则较不明显。继续添加轮虫混合液,直至达到适宜密度。
- 每天检查容器中轮虫的存在情况,若浓度降低则补充更多轮虫。持续清除任何死亡的仔鱼。
- 当鱼类达到14 dpf时,将其转移至配备循环水系统的水族箱中,养殖密度为每升水体5尾鱼。
注:此时可记录存活的后期仔鱼数量。
6. 幼鱼后期整体免疫组织化学
- 将含有目标发育阶段幼鱼的培养容器通过尼龙网筛过滤,将幼鱼转移至含有洁净待用鱼水的容器中,禁食 24 小时(参见步骤 1.1)。
注意:必须彻底清除所有食物。即使肠道中残留微量食物也会产生自发荧光,从而影响成像效果。 - 收集并处死幼鱼。
注意:处死程序应遵循 OLAW 指南,并经所在机构动物护理与使用委员会批准。我们发现单独使用三卡因无法有效处死幼鱼,若未同时将鱼置于冰上,当鱼从三卡因溶液转移至固定液时会重新活动。- 在烧杯中配制三卡因溶液:将 0.4 g 三卡因-S 和 0.8 g 碳酸氢钠加入 1 L 去离子水中,然后将溶液置于冰上冷却。
- 将含有幼鱼的水通过尼龙网筛过滤以收集幼鱼。轻轻将网筛浸入冰冻的三卡因溶液中,并在冰上放置 10 分钟。
- 固定已处死的幼鱼。
- 使用剪去尖端的移液管将幼鱼转移至锥形管中。
- 用移液管吸除三卡因溶液,替换为固定液,并在摇床上孵育。
注意:固定液种类及固定时间需根据所用抗体确定。对于 材料表 中列出的抗体,4 °C 下使用 10% 福尔马林溶液(含 4% 甲醛,参见材料)过夜固定已足够。
警告:福尔马林具有毒性且易燃。操作时应佩戴个人防护装备(手套、实验服和防溅护目镜),并在化学通风橱中进行。含福尔马林的溶液应作为危险废物处理。 - 用移液管小心吸除固定液,避免扰动幼鱼,加入 3 mL 磷酸盐缓冲液-吐温溶液 [含 0.1% Triton 的 PBS(PBST),参见 材料],在室温下轻轻摇动孵育 15 分钟。
- 吸除 PBST,更换新鲜 PBST,继续孵育 15 分钟。重复此“洗涤”步骤一次。
注意:幼鱼可在含 0.02% 叠氮化钠的 PBS 中于 4 °C 下保存数周。
- 进行整体免疫染色。
- 配制 50 mL 封闭液 [PB-0.5% Triton X, 0.2% 牛血清白蛋白(BSA)、1% 二甲基亚砜(DMSO)、0.02% 叠氮化钠、5% 驴血清]。
警告:叠氮化钠和 DMSO 具有毒性。操作时应佩戴个人防护装备(手套、实验服和防溅护目镜)。所有含此类成分的溶液均应作为危险废物处理。 - 用移液管将幼鱼转移至带螺口盖的 4 mL 玻璃小瓶中。用移液管吸除 PBST,加入 3 mL 封闭液,在室温下轻轻摇动孵育 1 小时。
- 用移液管吸除封闭液,加入用封闭液稀释的一抗,于室温下轻轻振荡孵育过夜。
注意:例如,可加入 1:250 稀释的抗 HuC/HuD 神经元蛋白小鼠单克隆抗体(参见 材料表 中在 A. mexicanus 中成功应用的抗体列表)。此步骤中应设置一组不加一抗的对照样本。抗体体积应足以覆盖幼鱼并允许充分振荡。 - 按照步骤 6.3.4 的方法用 PBST 洗涤幼鱼 3 次。更换为用封闭液稀释的二抗,于室温下轻轻振荡孵育过夜。
注意:每种一抗和二抗的最佳浓度、孵育时间及温度需单独优化。对于 材料表 中列出的抗体,室温下过夜孵育效果良好。 - 按照步骤 6.3.4 的方法用 PBST 洗涤幼鱼 3 次,每次洗涤 15 分钟。
- 将幼鱼转移至 PBS 中短期保存,以便后续进行解剖、封片或切片操作。
- 配制 50 mL 封闭液 [PB-0.5% Triton X, 0.2% 牛血清白蛋白(BSA)、1% 二甲基亚砜(DMSO)、0.02% 叠氮化钠、5% 驴血清]。
结果
表1展示了在静水繁殖箱中对表面鱼以及Tinaja、Molino和Pachón洞穴鱼进行为期一年繁殖的成功情况。表面鱼和Pachón洞穴鱼的受精卵均成功孵化出幼体,而Molino和Tinaja洞穴鱼在部分情况下未能成功孵化(分别有2/6和2/18的产卵事件未产生孵化幼体)。产卵数量存在差异,但这种差异似乎与亲鱼的年龄无关。表2列出了部分产卵事件所产生的孵化幼体总数以及亲鱼的年龄。总体而言,我们发现表面鱼每次产卵产生的幼体数量最多(平均1,550 ± 894,n = 5),其次是Pachón(平均879 ± 680,n = 6)、Tinaja(平均570 ± 373,n = 11)和Molino(平均386 ± 276,n = 3)。所产生的幼体数量通常超过每次实验或成鱼培育所需数量。我们通常设置6–18个育苗容器(120–360条幼鱼),并将剩余的鱼实施安乐死。
为了评估育苗方案的成功率,我们记录了成功产卵事件中孵化出的幼体数量以及存活的仔鱼数量。表3展示了在循环水箱中一个月繁殖期间的数据,包括转移到育苗容器中并存活至14天后受精(dpf)的幼体数量。在此期间,存活率在41%至81%之间,每种群可获得用于实验或继续培育为成鱼的个体数量为65至293尾。
为了确定整体免疫染色是否成功,我们将孵育过一抗的样品荧光信号与仅孵育二抗的样品进行比较。只有孵育过一抗的鱼才能观察到荧光信号。我们已成功利用该方案对表面型和洞穴型两种形态在发育至12.5天时的神经元10(图1)以及胰腺细胞6进行了标记。
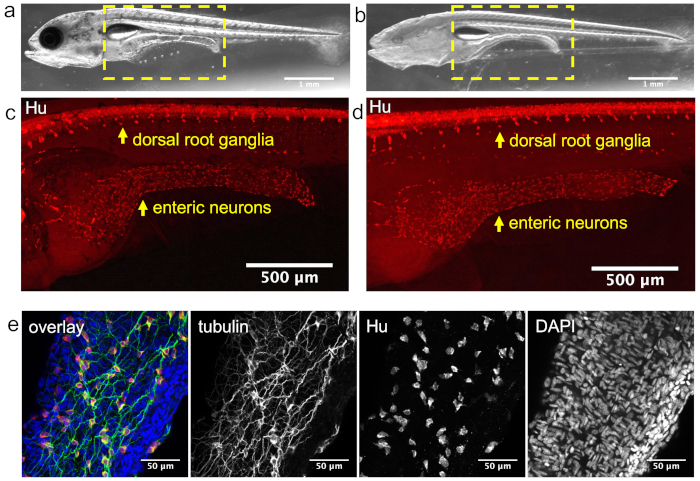
图 1:神经元标记。对 A. mexicanus 进行整体免疫染色。显示12.5天幼鱼的表型鱼(a)和帕琼洞穴鱼(b)。图中显示表型鱼(c)和帕琼洞穴鱼(d)中段区域的图像[在(a)和(b)中以黄色虚线轮廓标示],使用泛神经元抗体(Hu)染色。(e)表型鱼肠道局部的共聚焦图像,显示肠神经元(Hu)及其突起(乙酰化微管蛋白)。此图像中,肠道被解剖取出,并置于含DAPI的介质中封片,以标记细胞核。请点击此处查看该图的高清版本。
| 种群 | 尝试次数 | 产卵事件 | 产卵批次 |
| surface | 94 | 23 | 23 |
| Molino | 110 | 6 | 4 |
| Pachón | 167 | 13 | 13 |
| Tinaja | 242 | 18 | 16 |
表1:一年内静水养殖A. mexicanus的数据汇总。 繁殖尝试次数、成功产卵事件次数,以及产生孵化幼体的产卵事件次数。
| 种群 | 亲本年龄 | 孵化幼体数量 |
| 地表种群 | 1年 | 989 |
| 地表种群 | 1年 | 1050 |
| 地表种群 | 3年 | 2214 |
| 地表种群 | 3年 | 432 |
| 地表种群 | 3年 | 1768 |
| 地表种群 | 4年 | 2852 |
| Pachón | 1年 | 1194 |
| Pachón | 1年 | 1933 |
| Pachón | 1.5年 | 371 |
| Pachón | 3年 | 480 |
| Pachón | 4年 | 1190 |
| Pachón | 4年 | 110 |
| Tinaja | 9个月 | 259 |
| Tinaja | 9个月 | 253 |
| Tinaja | 10个月 | 1100 |
| Tinaja | 11个月 | 857 |
| Tinaja | 1年 | 713 |
| Tinaja | 1年 | 853 |
| Tinaja | 1年 | 542 |
| Tinaja | 1.5年 | 360 |
| Tinaja | 1.5年 | 58 |
| Tinaja | 1.5年 | 1100 |
| Tinaja | 4年 | 185 |
| Molino | 2.5年 | 460 |
| Molino | 2.5年 | 619 |
| Molino | 3年 | 81 |
表2:来自所列种群的单次产卵事件中雌性的近似年龄及孵化幼虫数量 A. mexicanus
| 种群 | 尝试次数 | 产卵事件次数 | 产卵批次 | 每窝卵数 | 转移至育苗杯的幼体数 | 14天后存活的仔鱼数 | 存活率 (%) |
| surface | 4 | 3 | 2 | 576 & 1728 | 360 | 174 | 48 |
| Molino | 4 | 2 | 1 | 228 | 159 | 65 | 41 |
| Tinaja | 4 | 1 | 1 | 1952 | 175 | 93 | 53 |
| Pachón | 4 | 1 | 1 | 1696 | 360 | 293 | 81 |
表3:在一个循环水系统中对 A. mexicanus 进行一个月繁殖并培育幼鱼的数据汇总。 包括繁殖尝试次数、成功产卵事件次数、成功孵化出幼鱼的产卵批次数量、每批幼鱼的平均数量、转移至育苗容器中的幼鱼数量,以及14天后育苗容器中存活的仔鱼数量。
讨论
比较地表与洞穴型 A. mexicanus 的基因活性需要严格控制的环境参数,以及可在不同实验室间重复的方法。我们提供的 A. mexicanus 饲养方案可确保幼体后期发育阶段营养供给的一致性。采用该喂养方案后,可结合本文所展示的可靠的免疫组织化学实验流程,在不同种群之间可靠地比较基因功能。本文将探讨该方法的意义及其局限性与未来应用前景。
为实现密度匹配的生长,我们发现,后幼体阶段的鱼类可在1.5 L容器中以轮虫为食,在不循环水的条件下培养两周。该方案也可用于循环水系统中养鱼;然而,必须每天补充轮虫,以弥补通过水槽出水流失的轮虫。新孵化的卤虫(Artemia)无节幼体通常被用作水产养殖中的饵料,但我们发现使用轮虫具有显著优势,包括:成本更低、生物安全性更高、营养更稳定以及水质更优(见下文)。
首先,轮虫的耗材每周费用为4美元,而相比之下 卤虫关于生物安全,轮虫在实验室受控条件下进行培养,而 卤虫 从野外采集,其微生物或病原体含量存在自然变异23此外,营养成分的组成 卤虫 无节幼体的品质受环境因素影响,因而具有不一致性。孵化后,无节幼体依赖自身储存的能量生存;随着发育进程,其营养价值迅速下降,因此最好在孵化后数小时内投喂给鱼类。 卤虫 从孵化后12小时开始投喂,代表了首次可对其进行营养强化;然而,此时它们已过大,5 dpf的鱼类无法摄食。相比之下,轮虫持续摄食海洋微藻,因此无论何时收获,其营养成分均较高。轮虫的体型明显小于 Artmeia 无节幼体(160 与 400 微米),使鱼类更容易捕捉和吞食。后期幼鱼阶段的表层鱼和洞穴鱼摄食轮虫的数量相似,表明二者在对轮虫的偏好性或捕捉能力上无显著差异。10.
最后, 卤虫 卤虫无节幼体在引入淡水数小时后便开始死亡。未被摄食的无节幼体将迅速腐解,若不人工清除,会快速降低水质。清除死亡个体 卤虫 耗时且对后幼体阶段的鱼类存在危险,因为这些鱼的体型并不比卤虫大多少,可能会被意外移除或受伤。轮虫可以在育苗容器中无限期存活,并持续为鱼类提供食物,且不会显著影响水质。
尽管使用轮虫作为食物来源具有显著优势,但为了维持轮虫种群,必须每天向培养系统中添加藻类。这可以通过自动喂食器将液态藻类注入轮虫培养容器中来实现(参见材料表)。此外,必须每隔24至48小时从该系统中收获一次轮虫,以维持培养体系的健康状态。对于繁殖鱼类频率极低(例如每年一次)且不关注幼后阶段种群间比较的研究人员,可能更倾向于选择卤虫(Artemia)作为食物来源,因为其休眠卵可在需要时随时孵化。
建议记录孵化出的幼虫数量及存活幼虫数量,以监测孵化和生长的成功情况。如果大部分胚胎或幼虫死亡,可能是由于细菌或真菌污染所致。建议监测养鱼用水的水质,并使用70%乙醇对所有器械进行灭菌。育苗容器在清洗和灭菌后可重复使用。为降低疾病风险,还必须及时从育苗容器中移除任何死亡的鱼体,并且在鱼开始摄食前(即5 dpf之前)不得添加轮虫。
A. mexicanus 约在1岁时达到性成熟。这与能够在10至12周时繁殖的Danio rerio(斑马鱼)相比,在制备转基因A. mexicanus方面存在一定的局限性24。免疫组织化学(IHC)是一种研究基因表达和蛋白质定位的替代方法。本文所述方案的每一步均可进行调整,并可用于检测任何目标组织中的抗原。但需要注意的是,由于色素沉着的存在(这一障碍在无色素的洞穴鱼中不存在),在表面鱼中某些组织可能更难以观察,这可能会影响比较研究的结果解读。为解决这一潜在问题,可在固定后使用3%过氧化氢对表面鱼的色素进行漂白处理。
免疫组织化学(IHC)需要成功的组织固定、封闭和抗体渗透。每一步的具体方法因目标组织和蛋白的不同而有所差异。所选用的固定剂及固定时间必须在保持细胞结构完整性的同时,保留抗原的表位。在本实验方案中,我们采用交联型固定剂(多聚甲醛),避免使用变性固定剂(如甲醇或丙酮)。我们发现,丙酮处理会减弱神经元和胰腺标志物的抗体信号。封闭步骤对于防止抗体与组织中的非靶标蛋白结合至关重要。本方法在封闭液中使用正常血清(5%)和牛血清白蛋白(BSA,0.2%)的组合。封闭液中的抗体和蛋白可结合组织蛋白上的活性位点,从而减少一抗和二抗的非特异性结合。
为了实现抗体渗透,必须对组织进行通透处理。这可以通过去垢剂或变性溶剂实现,但需优化条件以保护抗原表位。本实验方案采用 Triton 与二甲基亚砜(DMSO)联合使用。在封闭和抗体孵育步骤中,Triton 和 DMSO 的浓度分别为 0.5% 和 1%。采用该浓度时,我们已在脑、胰腺、肠道和肌肉中观察到染色信号,表明此方法可能适用于所有组织的渗透。鱼体大小也可能影响抗体渗透效果。本方案尚未在超过 14 天龄(约 7 mm 长)的鱼体上进行测试。若染色结果不理想,建议调整固定、封闭及抗体渗透步骤。此外,利用现有的基因组信息25,比对免疫原序列与 A. mexicanus 目标蛋白的序列保守性也至关重要。
A. mexicanus 是研究进化的理想模型 由于来自同一物种但在截然不同环境中进化的种群可在实验室中直接进行比较,因此实验室内部及各实验室之间标准化的饲养方案对于理解表型鱼与洞穴鱼之间的生物学差异至关重要。本文提供了一种方法,用于在生长参数保持一致的条件下,研究后期幼鱼的发育过程及基因活性。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作由美国国立卫生研究院(National Institutes of Health)基金资助 [HD089934, DK108495]。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 亚甲蓝 | Kordon | B016CBHZUS | 抗真菌剂 |
| 加热器 | Finnex | 4711457836017 | 100W 数字控制加热器 |
| 气石 | Lee's Aquarium & Pet Products | 10838125202 | 一次性气石 |
| 盐 | Instant Ocean | 51378014021 | 海水盐 |
| 育苗容器 | IPC | 21545-002 | 40 盎司或 1.5 L 透明容器 |
| 移液吸头 | VWR | 414004-002 | 塑料球头移液管 |
| 紧凑型培养系统(CCS)起始套装,含褶皱臂尾轮虫(L型)轮虫 | Reed Mariculture | na | 鱼饲料 |
| RGcomplete | APBreed | 817656016572 | 32 盎司瓶装轮虫饲料 |
| 可编程自动加样泵 DP-4 | Jebao | DP-4 | 轮虫自动投喂器 |
| Tricane-S | Western Chemical | MS 222 | 鱼类麻醉剂 |
| 碳酸氢钠 | Sigma-Aldrich | S5761-500G | 用于 Tricane 溶液 |
| 尼龙网筛 | HIC (Harold Import Co.) | 735343476235 | 直径 3 英寸 |
| 中性缓冲福尔马林溶液,10% | Sigma-Aldrich | HT501128-4L | 固定剂 |
| 10X PBS | Invitrogen | AM9625 | 缓冲液,用蒸馏水稀释至 1X |
| Triton-x 100 | Sigma-Aldrich | T8787-250ML | 去垢剂 |
| 叠氮化钠 | Sigma-Aldrich | S2002-25G | 抗菌剂 |
| 牛血清白蛋白 | Sigma-Aldrich | A9647-100G | 封闭试剂 |
| 带螺旋盖的 4 mL 玻璃小瓶 | Wheaton | 224742 | 染色用小瓶 |
| 用于繁殖缸的塑料网筛 | Pentair | N1670 | 裁剪成比繁殖缸底部各边均大 6 mm 的矩形。在矩形的每个角上裁去一个 6 mm 的正方形。将筛网四边向下弯折。在每个角的筛网两侧(上下)各放置一对 6 mm 的乙烯基涂层圆盘磁铁。筛网应尽可能紧贴缸壁。可用金属鱼网将筛网从缸中取出。 |
| 乙烯基涂层圆盘磁铁 | Kjmagnets | D84PC-AST | |
| New Life Spectrum Thera-A 颗粒鱼饲料 | New Life International | na | 成鱼饲料。该产品的零售商列表可在公司网站上获取 |
| 抗体 | |||
| 来自豚鼠的胰岛素抗体 | Dako | A0564 | 1:200 |
| 来自绵羊的胰高血糖素抗体 | Abcam | ab36215 | 1:200 |
| 来自小鼠的乙酰化微管蛋白抗体 | Sigma | T6793 | 1:500 |
| 来自小鼠的 HuD/HuC 抗体 | Life Technologies | A-21271 | 1:500 |
| 来自兔的氧化亚氮合酶(nNOS)抗体 | Abcam | ab106417 | 5μg/mL |
| 来自兔的胆碱乙酰转移酶(ChAT)抗体 | Abcam | ab178850 | 1:2000 |
| 来自兔的5-羟色胺(5HT)抗体 | Immunostar | 20080 | 1:500 |
参考文献
- Carlson, B. M., Klingler, I. B., Meyer, B. J., Gross, J. B. Genetic analysis reveals candidate genes for activity QTL in the blind Mexican tetra, Astyanax mexicanus. PeerJ. 6, e5189(2018).
- Chin, J. S. R., Gassant, C. E., et al. Convergence on reduced stress behavior in the Mexican blind cavefish. Developmental Biology. 441 (2), 319-327 (2018).
- Lloyd, E., Olive, C., et al. Evolutionary shift towards lateral line dependent prey capture behavior in the blind Mexican cavefish. Developmental Biology. 441 (2), 328-337 (2018).
- Tabin, J. A., Aspiras, A., et al. Temperature preference of cave and surface populations of Astyanax mexicanus. Developmental Biology. 441 (2), 338-344 (2018).
- Xiong, S., Krishnan, J., Peuß, R., Rohner, N. Early adipogenesis contributes to excess fat accumulation in cave populations of Astyanax mexicanus. Developmental Biology. 441 (2), 297-304 (2018).
- Riddle, M. R., Aspiras, A. C., et al. Insulin resistance in cavefish as an adaptation to a nutrient-limited environment. Nature. 555 (7698), 647-651 (2018).
- Moran, D., Softley, R., Warrant, E. J. Eyeless Mexican cavefish save energy by eliminating the circadian rhythm in metabolism. PloS One. 9 (9), e107877(2014).
- Aspiras, A. C., Rohner, N., Martineau, B., Borowsky, R. L., Tabin, C. J. Melanocortin 4 receptor mutations contribute to the adaptation of cavefish to nutrient-poor conditions. Proceedings of the National Academy of Sciences. 112 (31), 9668-9673 (2015).
- Tang, J. L. Y., Guo, Y., et al. The developmental origin of heart size and shape differences in Astyanax mexicanus populations. Developmental Biology. 441 (2), 272-284 (2018).
- Riddle, M. R., Boesmans, W., Caballero, O., Kazwiny, Y., Tabin, C. J. Morphogenesis and motility of the Astyanax mexicanus gastrointestinal tract. Developmental Biology. 441 (2), 285-296 (2018).
- Gore, A. V., Tomins, K. A., et al. An epigenetic mechanism for cavefish eye degeneration. Nature Ecology & Evolution. 2 (7), 1155-1160 (2018).
- McGaugh, S. E., Gross, J. B., et al. The cavefish genome reveals candidate genes for eye loss. Nature Communications. 5, (2014).
- Gross, J. B., Furterer, A., Carlson, B. M., Stahl, B. A. An Integrated Transcriptome-Wide Analysis of Cave and Surface Dwelling Astyanax mexicanus. PLoS One. 8 (2), e55659(2013).
- Hinaux, H., Pottin, K., et al. A Developmental Staging Table for Astyanax mexicanus Surface Fish and Pachón Cavefish. Zebrafish. 8 (4), 155-165 (2011).
- Borowsky, R. Breeding Astyanax mexicanus through natural spawning. Cold Spring Harbor Protocols. 3 (11), (2008).
- Borowsky, B. R. Handling Astyanax mexicanus Eggs and Fry. CSH Protocols. , (2008).
- Stahl, B. A., Gross, J. B. A Comparative Transcriptomic Analysis of Development in Two Astyanax Cavefish Populations. Journal of Experimental Zoology Part B: Molecular and Developmental Evolution. 328 (6), 515-532 (2017).
- Elipot, Y., Legendre, L., Père, S., Sohm, F., Rétaux, S. Astyanax Transgenesis and Husbandry. How Cavefish Enters the Laboratory. Zebrafish. 11 (4), 291-299 (2014).
- Ma, L., Jeffery, W. R., Essner, J. J., Kowalko, J. E. Genome editing using TALENs in blind Mexican Cavefish, Astyanax mexicanus. PloS One. 10 (3), e0119370(2015).
- JoVE. Current methods in Astyanax mexicanus research. , Available from: https://www.jove.com/methods-collections/16/current-methods-inastyanax-mexicanusresearch (2018).
- Heanue, T. A., et al. A Novel Zebrafish ret Heterozygous Model of Hirschsprung Disease Identifies a Functional Role for mapk10 as a Modifier of Enteric Nervous System Phenotype Severity. PLoS Genetics. 12 (11), (2016).
- Reed Mariculture Culturing Rotifers in Small Systems (Home or Lab). , Available from: http://reedmariculture.com/support_rotifers_culturing.php (2018).
- Riddle, M. R., Baxter, B. K., Avery, B. J. Molecular identification of microorganisms associated with the brine shrimp Artemia franciscana. Aquatic Biosystems. 9 (1), (2013).
- Tsang, B., et al. Breeding Zebrafish: A Review of Different Methods and a Discussion on Standardization. Zebrafish. 14 (6), 561-573 (2017).
- Cave fish assembly and gene annotation. , Available from: http://useast.ensembl.org/Astyanax_mexicanus/Info/Annotation (2018).
重印与许可
