本文介绍了一种利用SUMO结合元件(SUBEs)从人肝癌细胞以及肝细胞癌小鼠模型获得的肝肿瘤组织中,在体内富集、分离、鉴定和表征经SUMO修饰蛋白的实验方案。
本文内容
摘要
摘要
翻译后修饰是调控真核细胞中蛋白质稳态与功能的关键机制。在肝癌中的所有类泛素蛋白修饰中,SUMO(小泛素样修饰物,Small Ubiquitin MOdifier)修饰受到最为广泛的关注。由于体内存在具有活性的特异性SUMO蛋白酶,内源性SUMO化蛋白的分离具有较大挑战性。早期对体内SUMO化修饰的研究主要依赖于对特定SUMO化蛋白的分子检测(例如,通过蛋白质印迹法)。然而,在许多情况下,通常使用非修饰型重组蛋白制备的抗体无法有效免疫沉淀目标蛋白的SUMO化形式。 镍柱层析是通过捕获带有组氨酸标签的SUMO分子来研究SUMO化修饰的另一种方法。该方法主要用于稳定表达或 transiently 转染His-SUMO分子的细胞。为克服这些局限性,研究人员开发了SUMO结合元件(SUMO-binding entities, SUBEs),用于分离内源性的SUMO化蛋白。本文详细描述了利用SUBEs从人肝癌细胞及肝癌小鼠模型的肝组织中富集、分离和鉴定SUMO化底物所需的全部步骤。首先,介绍了人肝癌细胞和肝肿瘤组织样本的制备与裂解方法;随后,详尽阐述了SUBEs及其对照的制备过程,并提供了蛋白下拉实验的操作流程。最后,列举了若干可用于鉴定和表征SUMO化蛋白质组的方法示例,包括使用Western印迹分析检测肝肿瘤中特定SUMO化底物,或采用质谱技术进行蛋白质组学分析,以高通量方式表征肝癌细胞中的SUMO化蛋白质组及其相互作用网络。
引言
肝癌是全球第六大常见癌症,也是癌症相关死亡的第二大原因1肝细胞癌(Hepatocellular Carcinoma, HCC)是最常见的原发性肝癌类型。历史上,HCC 发生的常见危险因素包括慢性乙型或丙型肝炎病毒感染以及长期过量饮酒。近几十年来,代谢综合征和2型糖尿病 2型糖尿病和非酒精性脂肪性肝病(NAFLD)已成为肝细胞癌(HCC)发生的风险因素2肝细胞癌在表型和遗传上均具有高度异质性,其信号通路网络复杂且常发生紊乱。近年来,尽管人们对参与肝细胞癌发病机制的分子通路的认识有所加深,但目前仍缺乏有效的治疗策略用于肝细胞癌的临床管理。在肝细胞癌中多条信号通路被激活,抑制其中一条通路通常会导致其他通路的代偿性激活。3这一直是治疗肝细胞癌(HCC)的主要难点之一。因此,采用更全局性的策略可能为肝癌的临床管理提供潜在的治疗途径,例如靶向蛋白质的翻译后修饰(PTMs),因为多种信号通路可同时受到蛋白质PTMs的调控。
翻译后修饰被认为是调控蛋白质稳态和功能的关键机制4。翻译后修饰(PTMs)可引入蛋白质结构和功能的改变,从而增加蛋白质组的多样性。最常见的翻译后修饰包括磷酸化、甲基化、乙酰化、糖基化、泛素化以及泛素样蛋白(UbLs)的共价连接。在所有泛素样蛋白中,SUMO(小泛素样修饰物,Small Ubiquitin MOdifier)介导的蛋白质修饰因其在多种细胞过程中的关键作用而受到广泛关注,这些过程包括转录调控、细胞定位、DNA修复以及细胞周期进程5。最近研究表明,在肝癌中SUMO化修饰发生异常6,7,8,9,特定蛋白质的SUMO化改变已被证实参与癌症相关疾病的发展进程9。
在哺乳动物中,存在五种SUMO旁系同源物,即SUMO-1至SUMO-5。迄今为止,在蛋白质水平上尚无实验证据表明内源性SUMO-4和内源性SUMO-5存在共价修饰反应10,11,12。哺乳动物中的SUMO化修饰由一种涉及三种酶的酶促硫酯级联反应完成,这三种酶分别为异源二聚体的SUMO激活酶(SAE1/SAE2,又称E1)、SUMO结合酶(Ubc9,又称E2)以及针对每种靶蛋白特异的SUMO-E3连接酶。多个SUMO E3连接酶家族的作用似乎与特异性的SUMO蛋白酶(SUSPs或SENP蛋白酶)13处于动态平衡状态,从而使SUMO化反应具有高度可逆性。此外,与非SUMO化总蛋白相比,发生SUMO化的蛋白仅占很小一部分。因此,在体内分离内源性SUMO化蛋白具有较大挑战性13。
体内SUMO化最初通过蛋白质印迹法(western blot)使用针对目的蛋白的抗体进行研究14。首先用特异性抗体对目的蛋白进行免疫沉淀,然后使用抗SUMO抗体进行聚丙烯酰胺凝胶电泳-蛋白质印迹分析(PAGE-western blot)。该策略的主要问题是,针对非修饰重组蛋白制备的抗体并不总能有效免疫沉淀出蛋白的SUMO化形式。另一种方法是在细胞中瞬时表达带有组氨酸标签(His6)的SUMO分子及目的蛋白,随后通过镍柱层析研究SUMO化修饰。在此基础上,从稳定表达His6-SUMO的细胞中检测SUMO修饰形式将更为便捷15。对于体内研究,已有研究利用串联的SUMO相互作用基序(tandem-SUMO-interacting motifs, SIM)富集方法实现对多聚SUMO偶联物的纯化16。其他研究团队则采用表位标签化的SUMO抗体策略,为在原代细胞、组织和器官中研究内源性SUMO化提供了可行工具17,18。最近,Nielsen及其同事利用基于抗体的富集方法,在细胞和组织中鉴定了内源性且位点特异性的SUMO修饰19。
为了提供关于SUMO化在体内作用的补充信息,研究人员开发了SUMO结合实体(SUMO-binding entities, SUBEs),也称为SUMO陷阱20。值得注意的是,串联泛素结合实体(tandem ubiquitin binding entities, TUBEs)被认为是SUBEs的概念前体,是目前可商业获得的用于检测和分离多泛素化蛋白的工具21。SUBEs是一类重组蛋白,包含串联重复的SIM结构域,从而能够识别修饰蛋白上的SUMO分子,并整体提高对SUMO底物的亲和力。SUMO陷阱通过将来源于E3泛素连接酶RNF4的SIM2和SIM3基序以串联方式插入含有谷胱甘肽S-转移酶(glutathione S-transferase, GST)的载体中而构建,其中GST作为异源载体蛋白20。尽管SUBEs不能有效用于鉴定单SUMO化靶蛋白,但该方法为在体内纯化和鉴定多SUMO化靶蛋白提供了有力工具。本文中,我们描述了将SUBEs应用于分离人肝癌细胞及小鼠肝组织活检样本中SUMO化蛋白的方法,这对于肝癌研究具有重要意义。本论文所述实验方案的整体流程见图1。
方案
所有实验均经CIC bioGUNE机构动物护理与使用委员会批准。已尽一切努力减轻动物痛苦,并尽量减少动物使用数量。3月龄雄性甘氨酸 N-甲基转移酶(Gnmt 缺陷的Gnmt−/−) 及其野生型同窝小鼠(Gnmt+/+) 被使用。
1. 细胞准备与裂解
注意:本研究中使用了 Huh-7(人肝癌细胞系)和 THLE2(人肝细胞系)。
- 将细胞接种于P100培养皿中,在37 °C、含5% CO2和95%湿度的湿润环境中,使用标准培养基进行培养。
- 通过使用Neubauer血细胞计数板对细胞进行计数,以每皿1.2–1.5 × 10⁶个细胞的密度将细胞接种于P100培养皿中进行培养。
- 在补充有10%胎牛血清(FBS)、1%青霉素-链霉素-两性霉素B(PSA)和1%谷氨酰胺的DMEM培养基中培养Huh-7细胞。
- 将THLE2细胞培养于预先包被的培养皿中,包被液包含0.01 mg/mL纤连蛋白、0.01 mg/mL牛血清白蛋白(BSA)和0.03 mg/mL I型胶原蛋白,均溶于生长培养基中;生长培养基由支气管上皮细胞生长基础培养基(BEGM)组成,并添加生长因子(0.4% BPE、0.1%胰岛素、0.1%氢化可的松、0.1%视黄酸、0.1%转铁蛋白、0.1%三碘甲腺原氨酸),以及10% FBS、1% PSA、5 ng/mL表皮生长因子(EGF)和70 ng/mL磷酸乙醇胺。
- 实验终点时,吸除培养皿中的培养基,并用5 mL无菌1×磷酸盐缓冲液(PBS)洗涤细胞。将培养皿置于冰上,直接加入500 µL裂解缓冲液(50 mM Tris pH 8.5、150 mM NaCl、5 mM EDTA、1% Nonidet P-40(NP40),并补充完全不含EDTA的蛋白酶抑制剂混合物以及每P100培养皿50 μM PR-619)进行细胞裂解。使用细胞刮棒轻轻将细胞从培养皿底部刮入裂解液中。
注意:处理后需目视检查培养皿底部,确认所有细胞均已脱落。 - 或者,可通过胰酶消化法收集细胞:吸除细胞培养基后,向培养皿中加入1 mL 1×(0.05%)胰蛋白酶-EDTA溶液,用量以覆盖细胞为宜,并将培养皿置于37 °C、5% CO2、95%湿度的培养箱中约5分钟,确保所有细胞脱离培养皿。加入2 mL预热的生长培养基以终止胰酶消化反应。在150 g条件下离心10分钟,吸除上清液。用1× PBS洗涤一次后,在150 x g条件下离心10分钟。吸除上清液后,加入500 µL裂解缓冲液(50 mM Tris pH 8.5、150 mM NaCl、5 mM EDTA、1% NP40,补充完全不含EDTA的蛋白酶抑制剂混合物以及每P100培养皿50 μM PR-619)。
注意:添加PR-619至关重要。 - 在15,500 x g、4°C条件下离心10分钟。将上清液转移至另一管中,弃去沉淀。
注意:此步骤可暂停,样品可于-80 °C保存,待后续分析时使用。
2. 组织制备与裂解
- 处死动物后,取出小鼠肝脏,用预冷的 PBS 清洗,并立即在液氮中速冻。将样品储存于 −80 °C,待后续分析使用。
- 取速冻或新鲜肝脏的 75 mg 组织片段,加入 1 mL 冰冷裂解缓冲液(50 mM Tris pH 8.5,150 mM NaCl,5 mM EDTA,1% NP40,并添加完全不含 EDTA 的蛋白酶抑制剂混合物和 50 μM PR-619)中进行匀浆。使用匀浆器以 6500 x rpm 运行两次,每次 60 秒,中间间隔 30 秒(参见材料表)。
- 将样品在微量离心机中以 15,500 x g、4 °C 离心 10 分钟。将上清液转移至另一管中,弃去沉淀。
- 或者,将 75 mg 冻存组织在液氮中研磨。然后用 1 mL 裂解缓冲液回收组织。
- 将样品在微量离心机中以 15,500 x g、4 °C 离心 10 分钟。将上清液转移至另一管中,弃去沉淀。
注意:此步骤可暂停,样品可于 -80 °C 保存,待后续分析。
3. GST-SUBEs 或 GST 对照与谷胱甘肽-琼脂糖珠的结合
注意:GST-SUBEs 或 GST 对照的合成不在本文范围之内,可参考先前发表的文献20。此外,GST- 和对照 SUBEs 可从商业途径获得(例如 SignalChem)。
- 谷胱甘肽琼脂糖微珠的制备
- 将1 mL去离子水加入70 mg冻干的谷胱甘肽琼脂糖珠中,于4 °C下重悬过夜(或在室温下至少30分钟)。
- 充分溶胀后彻底洗涤珠子(以去除冻干粉状琼脂糖珠中通常含有的乳糖和乙醇)。首先用 10 mL 去离子水或 PBS 洗涤,随后在 300 × g 条件下离心 x g 室温下孵育5分钟。重复此步骤三次。
- 经过3次洗涤后,将磁珠重悬于1 mL磷酸盐缓冲液(PBS)中,制成50%(v/v)的悬液。
注意:本试剂盒适用于10个样本的分析。
- 每个样本中加入 100 μg 的 GST-SUBEs 或 GST 对照(参见参考文献)20) 加入100 μL谷胱甘肽琼脂糖珠悬液和500 µL PBS。
注意:目标 SUMO 化蛋白的相对丰度决定了用于下拉实验的 GST-SUBEs 用量。对于每种新的实验模型,应在正式实验前通过 Western 印迹分析输入样本、结合组分和穿流组分(FT),使用抗 SUMO2/3 抗体或针对目标蛋白(如肝激酶 B1(LKB1))的抗体进行检测。 - 将所有 GST-SUBEs 或 GST 对照与 3.2 步骤中制备的珠粒一起孵育,在旋转仪或小型滚轴混合器中缓慢旋转孵育(参见 材料表在 4 °C 下孵育至少 2 小时(慢结合反应)。
注意:添加 1 mM 二硫苏糖醇(DTT)可提高 GST 与谷胱甘肽珠的结合效果。 - 通过300 × g离心回收琼脂糖珠 x g 室温孵育5分钟。最后,将磁珠重悬于PBS中,制成50%(v/v)的悬液。
注意:此处可暂停实验流程,样品可于 -80 ˚C 保存,直至进一步分析。
4. GST 下拉实验
- 在步骤 1.5、2.3 或 2.5 之后,取总体积的 1/10(例如 50 μL),加入等体积的 3 倍煮沸缓冲液(250 mM Tris-HCl pH 6.8,500 mM β-巯基乙醇,50% 甘油,10% SDS,溴酚蓝)进行稀释。此部分称为 INPUT(上样输入)。
- 将步骤 1.5、2.3 或 2.5 所得澄清裂解液 450 μL 加入 100 μL 谷胱甘肽珠悬浮液中。在 4 °C 下缓慢旋转孵育至少 2 小时。
注意:也可使用步骤 1.5、2.3 或 2.5 中经 Bradford 法测定的总蛋白 100–200 μg(总体积为 450 μL)。 - 在微量离心机中以 300 x g 离心 5 分钟沉淀珠子,收集上清液用于分析。另取总体积的 1/10(例如 50 μL)转移至独立离心管中,加入等体积的 3 倍煮沸缓冲液稀释。此部分为流穿(FT)组分。
- 用 1 mL 冰冷的含 0.05% Tween 20 的 PBS 缓冲液洗涤剩余样品三次,每次在 4 °C 下以 300 x g 离心 1 分钟。小心吸除液体,确保无残留。珠子部分即为结合的 SUBEs(SB)组分。
- 用 15 μL 3 倍煮沸缓冲液和 15 μL 裂解缓冲液洗脱样品。此部分称为 BOUND(结合)组分。
5. 通过蛋白质印迹分析鉴定和表征SUMO靶标
- 使用抗SUMO2/3抗体或任何其他选择的特异性抗体,按照先前所述方法进行蛋白质印迹分析22。
6. 通过质谱法鉴定和表征SUMO化蛋白质组
注意:对于质谱分析(MS),样品采用 Wisniewski 等人所述的滤膜辅助样品制备(FASP)方法进行处理23。
- 使用 Stage-Tip C18 微柱对肽段进行脱盐处理,并在质谱分析前将其重悬于 0.1% 甲酸(FA)中。
- 将样品上样至液相色谱-质谱联用系统(见材料表),并进行三针重复进样(技术重复)(图 2b)。
- 使用配套软件进行蛋白质鉴定和丰度计算。
- 进行统计分析和热图生成时,将数据导入 Perseus 分析平台(http://www.perseus.tufts.edu/hopper/)。采用基于置换的错误发现率(FDR)校正 t 检验来比较蛋白质丰度。将 q < 0.05 且 SUBEs/GST 比值大于 2 的蛋白质视为富集蛋白24。
注意:最终分析中仅包含至少由两种不同肽段鉴定出的蛋白质。
结果
通过蛋白质印迹分析鉴定肝肿瘤活检组织中的特异性SUMO化底物
肝激酶B1(LKB1)的SUMO化最近被证实是肝癌中一种重要的致癌驱动因素9,25. 缺乏甘氨酸的小鼠 N-甲基转移酶(Gnmt,通常被称为 Gnmt−/−是一种会自发产生肝细胞癌(HCC)的模型,HCC 是最常见的原发性肝癌类型。SUBEs 被用于富集和分离 SUMO 化蛋白,包括在 Gnmt−/− 肝癌小鼠及其野生型同窝小鼠Gnmt+/+)。在 图2a,SUBEs 拉下实验中获得的三种不同组分(input、FT 和 BOUND)的 Ponceau S 染色结果已包含在内。Ponceau S 染色可用于检测蛋白质在印迹过程中上样是否受到可能的不利影响,以供后续 Western blot 分析评估。在 图2b 使用SUBEs捕获内源性SUMO化LKB1的LKB1蛋白的Western blot分析结果如图所示。在肝肿瘤中,LKB1的SUMO化水平升高。在Western blot分析中,通过丽春红染色检测输入组分中的蛋白上样量和转膜效率,结果显示各组蛋白上样量相等且转膜充分,并在洗涤后(流穿组分)未发生显著变化。使用SUBEs捕获的蛋白量明显更高,尤其是在肿瘤组织中。作为替代方案,可通过考马斯亮蓝染色重复凝胶以获得类似信息。某些黏性蛋白(如p53或某些蛋白的SUMO化形式)可能非特异性结合GST对照。为降低背景信号,可使用低密度琼脂糖微珠、以BSA进行封闭,或增加洗涤次数。然而,这些操作可能影响后续应用(如质谱分析),并可能导致低亲和力相互作用蛋白的丢失。
通过质谱分析对人肝癌细胞中SUMO相互作用组的表征
为了研究 SUMO 捕获系统(SUMO-trap)与天然 SUMO 化蛋白相互作用的能力,采用了 Huh-7(人肝癌细胞)和非转化的肝上皮细胞系 THLE2。第一步是通过 SUBEs 捕获总结合物质,并以 GST 作为阴性对照,对捕获产物进行可视化检测。为此,可采用常规的蛋白质染色方法,如图3a所示。随后,我们进行了质谱分析。在 Huh7 GST 样本中平均鉴定出 2268 种蛋白质(三个重复分别为 2339、2297 和 2168),而在 Huh7 SUBEs 样本中平均鉴定出 2812 种蛋白质(分别为 2815、2817 和 2806)。经过差减分析后,共有 742 种蛋白质在 SUBEs 中富集。另一方面,在 THLE2 GST 样本中平均鉴定出 2497 种蛋白质(分别为 2476、2520 和 2495),在 SUBEs 样本中平均鉴定出 2763 种蛋白质(分别为 2823、2783 和 2684),其中 577 种蛋白质被认为在 SUBEs 样本中富集。对技术重复样本的分析得到了如图3b所示的热图,该图采用默认参数计算(欧几里得距离、平均连接法,并使用 k 均值预处理)。热图展示了在每种细胞系中显著且特异性富集的前 100 种蛋白质的分布情况。
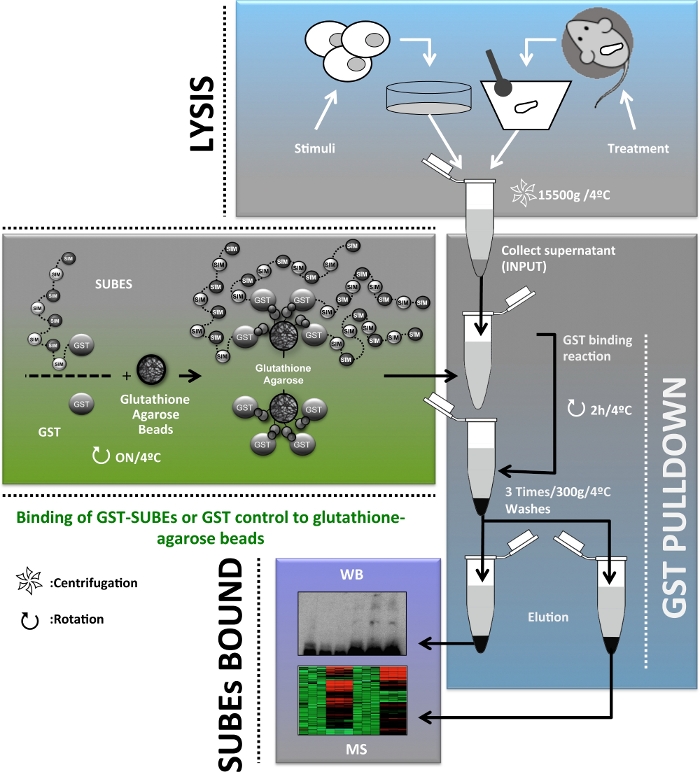
图1:用于体内富集、分离、鉴定和表征肝癌中SUMO化蛋白质组的研究流程图示意图。 请点击此处查看此图的放大版本。

图 2:小鼠肝细胞癌模型中 LKB1 被 SUMO-2 修饰的情况。
(a)SUBEs 拉下实验中获得的三个不同组分(上样量 input、流穿 FT 和结合 BOUND)的 Ponceau S 染色结果。
(b)利用 SUMO 结合实体(SUBEs)捕获内源性 SUMO 化修饰的 LKB1,并通过 Western blot 检测 LKB1;GAPDH 作为上样对照。
请点击此处查看该图的高清版本。
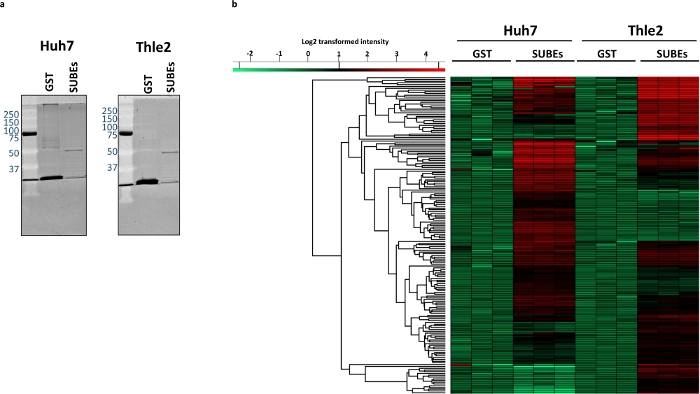
图3:肿瘤性Huh-7细胞系与非转化肝上皮细胞系THLE2之间SUMO化蛋白质组的差异。
(a)捕获蛋白材料的Sypro染色,包含GST(阴性对照)和SUBEs。(c)热图显示Huh-7和THLE2 SUBE样品中差异富集的蛋白质。请点击此处查看该图的放大版本。
讨论
本文提供了利用SUBE对肝癌体内模型中SUMO化蛋白进行富集、分离、鉴定和表征的方法学的完整且详细的描述。在小鼠肝肿瘤和人肝癌细胞中,我们均能够准确地分离和鉴定目标SUMO化蛋白,并对SUMO化蛋白质组及其相互作用组进行高通量表征。尽管SUBE的合成不在本论文的讨论范围之内,但如需进一步信息,可参考以下文献26。所描述的实验方案快速且高度敏感,其中关键步骤是使用SENP抑制剂(PR-619)。作为替代方案,裂解缓冲液中也可使用化学异肽酶抑制剂,如NEM(N-乙基马来酰亚胺)和IAA(2-碘乙酰胺),但已有研究表明,在SUBE实验方案中使用PR-619更具优势,因为其他抑制剂会干扰GST与谷胱甘肽磁珠的结合20。
SUBEs 是由多个 SIM 串联重复序列组成的重组蛋白,能够识别修饰蛋白上的 SUMO 分子,从而提高对 SUMO 底物的整体亲和力。由于其高特异性和高灵敏度,相较于文献中其他方法(例如使用针对目标蛋白的抗体通过 Western 印迹检测特定 SUMO 化蛋白,或利用不同组氨酸标签修饰的 SUMO 分子进行镍柱层析),采用 SUBEs 分离 SUMO 化蛋白质组具有明显优势。然而需要注意的是,SUBEs 实验在非变性条件下进行,因此 SUMO 化蛋白与其他相互作用蛋白之间的结合得以保留。因此,我们获得的是关于 SUMO 相互作用组的信息,而不仅仅是 SUMO 化靶蛋白的列表。因此,需要进一步实验来确认所鉴定出的蛋白是 SUMO 的直接靶标还是其相互作用因子。SUBEs 的另一个局限性在于,所使用的对照 GST 捕获体系能够结合大量与氧化应激相关的背景蛋白。这一问题在质谱分析中尤为突出,因为该技术具有极高的灵敏度。为克服这些局限性,已开发出生物素标记的 SUMO 捕获体系(bioSUBEs)26。SUBEs 的另一局限在于,我们仅能捕获由 SUMO2 和 SUMO3 修饰的蛋白,而无法分离经 SUMO1 修饰的蛋白。
使用SUBEs的另一个问题是实验所需起始材料的量。用于捕获SUMO化蛋白的起始材料应根据所探索的不同实验条件进行调整。尽管已有报道显示在多种细胞环境中存在基础水平的SUMO化,但该修饰过程在多种应激条件或刺激后会被强烈诱导。如果比较未经处理与经处理的样品,必须确保层析柱未达到饱和,以便能够观察到不同条件之间的差异。在我们正在分析的小鼠表型中,未使用任何处理,其基础SUMO化水平较低。因此,实验中使用了较大量的蛋白。非特异性结合的背景水平可通过使用GST作为对照进行控制;如果非特异性结合较高,则应减少起始材料的用量或缩短结合时间。即使这些捕获系统更倾向于富集多聚SUMO化蛋白,且不应期望实现SUMO化蛋白的完全耗尽,但洗脱组分(FT)的分析通常可反映捕获效率——当捕获效率理想时,总体SUMO化水平的降低一般可被清晰观察到。
最后,SUBEs 技术的其他应用包括将其与实时表面等离子共振(SPR)技术联用,从而实现对细胞提取物中 SUMO 化蛋白的实时相互作用分析27。此外,最近开发出了生物素标记的 SUMO 捕获探针(bioSUBEs),其优势在于可降低较大标签(如在质谱分析过程中)带来的背景干扰26。同时,bioSUBE 版本还可通过链霉亲和素偶联的不同荧光染料,在活细胞中利用链霉亲和素与生物素的结合特性,实现对 SUMO 化蛋白的荧光检测。此外,类似于泛素串联结合实体(TUBEs)的方法21,也可将 GST 和 bioSUBE 两种形式用于 SUMO 化蛋白的检测与定量分析。
总体而言,利用SUBEs分离和表征肝癌中与SUMO化相关的蛋白质组,是一种快速且灵敏的方法,可提供大量关于SUMO化通路在肝癌中尚不甚明确的作用的信息。
披露
Martínez-Chantar 博士为 Mitotherapeutix LLC 提供咨询建议。
致谢
本工作获得了法国国家癌症研究院(Institut National du Cancer, FRANCE)项目资助(INCa grant PLBIO16-251,编号PLBIO16-251)、墨西哥国家科学技术委员会-对外关系司(CONACyT-SRE)资助项目0280365以及法国奥克西塔尼大区REPERE项目(M.S.R.)的支持。同时获得美国国立卫生研究院(NIH,美国卫生与公共服务部)R01AR001576-11A1项目、巴斯克政府-卫生部2013111114项目(资助M.L.M.-C)、ELKARTEK 2016项目、巴斯克政府工业部、西班牙科学与创新部(MINECO)SAF2017-87301-R项目(纳入2013-2016年国家科学技术与创新研究计划,并由FEDER基金共同资助)、巴斯克健康研究与创新基金会(BIOEF)EITB Maratoia BIO15/CA/014项目、卡洛斯三世健康研究所(Instituto de Salud Carlos III)PIE14/00031项目(纳入2013-2016年国家科学技术与创新研究计划,并由FEDER基金共同资助)(资助M.L.M.-C)、西班牙抗癌协会(Asociación Española contra el Cáncer)(资助T.C.D.、M.L.M.-C)、欧洲肝脏研究学会(EASL)Daniel Alagille 奖项(资助T.C.D.)、 西班牙抗癌协会科学基金会(AECC Scientific Foundation)2017年罕见肿瘤专项资助(资助M.L.M.)、La Caixa基金会项目(资助M.L.M.)的支持。我们感谢西班牙科学与创新部(MINECO)授予CIC bioGUNE卓越研究中心塞韦罗·奥乔亚认证(Severo Ochoa Excellence Accreditation,编号SEV-2016-0644)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| (Gnmt−/−)/(Gnmt+/+) 小鼠 | CIC bioGUNE | ||
| 0.5% 胰蛋白酶-EDTA | Life Technologies | 15400-054 | |
| BEBM | Lonza/Clonetics Corporation | cc-3171 | |
| BEGM Bullet 试剂盒 | Lonza/Clonetics Corporation | CC3170 | |
| 溴酚蓝 | Sigma | 115-39-9 | |
| BSA | Sigma | A4503 | |
| C18 微柱 | Millipore | Z720070 | |
| I 型胶原蛋白 | Santa Cruz Biotechnology | sc-136157 | |
| 不含 EDTA 的完全蛋白酶抑制剂片剂 | Roche | 4693132001 | |
| DMEM | Life Technologies | A14431-01 | |
| DTT | Sigma | 43815 | |
| EDTA | Sigma | E6758 | |
| EGF | Sigma | e9644 | |
| FBS | Life Technologies | 10270 | |
| 纤连蛋白 | Life Technologies | 33010018 | |
| 谷氨酰胺 | Life Technologies | 25030-024 | |
| 谷胱甘肽琼脂糖微珠 | Sigma | G4510 | |
| 甘油 | Sigma | G5516 | |
| GST-对照 | SignalChem | G52-30H | |
| GST-SUBEs | SignalChem | S291-340G | |
| Huh7 | CLS (细胞系服务) | 300156 | https://clsgmbh.de/ |
| IAA (2-碘乙酰胺) | Merck | L58046844 | |
| LKB1 抗体 | Santa Cruz Biotechnology | sc-32245 | |
| Mini LabRoller 旋转混合仪 | LABNET | H5500 | https://www.labnetinternational.com |
| NaCl | Merck | 106404041000 | |
| nanoElute | BRUKER | https://www.bruker.com/ | |
| NEM (N-乙基马来酰亚胺) | Sigma | E3876 | |
| NP40 | Fluka | 74385 | |
| PBS | Life Technologies | 14190-094 | |
| Peaks 软件 | Bioinformatics Solutions Inc. | http://www.bioinfor.com/ | |
| 磷酸乙醇胺 | Sigma | P0503 | |
| Ponceau S 溶液 | Sigma | P7170 | |
| PR-619 | Merck | 662141 | |
| Precellys 24 | Bertin Technologies | P000669-PR240-A | |
| PSA | Life Technologies | 151-40-122 | |
| PSG | Life Technologies | 10378-016 | |
| SDS | Sigma | L3771 | |
| SUMO2/3 抗体 | Abcam | Ab3742 | |
| THLE-2 | ATCC | ATCC CRL-2706 | http://www.lgcstandards-atcc.org |
| timsTOF Pro 配 PASEF 质谱仪 | BRUKER | https://www.bruker.com/ | |
| β-巯基乙醇 | Sigma | 60-24-2 |
参考文献
- Forner, A., Llovet, J. M., Bruix, J. Hepatocellular carcinoma. Lancet. 379 (9822), 1245-1255 (2012).
- Gerbes, A., et al. Gut roundtable meeting paper: selected recent advances in hepatocellular carcinoma. Gut. , (2017).
- Avila, M. A., Berasain, C., Sangro, B., Prieto, J. New therapies for hepatocellular carcinoma. Oncogene. 25 (27), 3866-3884 (2006).
- Grotenbreg, G., Ploegh, H. Chemical biology: dressed-up proteins. Nature. 446 (7139), 993-995 (2007).
- Hendriks, I. A., Vertegaal, A. C. A comprehensive compilation of SUMO proteomics. Nature Reviews in Molecular Cell Biology. 17 (9), 581-595 (2016).
- Seeler, J. S., Dejean, A. SUMO and the robustness of cancer. Nature Reviews Cancer. 17 (3), 184-197 (2017).
- Tomasi, M. L., et al. S-adenosyl methionine regulates ubiquitin-conjugating enzyme 9 protein expression and sumoylation in murine liver and human cancers. Hepatology. 56 (3), 982-993 (2012).
- Li, J., et al. Cbx4 governs HIF-1alpha to potentiate angiogenesis of hepatocellular carcinoma by its SUMO E3 ligase activity. Cancer Cell. 25 (1), 118-131 (2014).
- Zubiete-Franco, I., et al. SUMOylation regulates LKB1 localization and its oncogenic activity in liver cancer. EBioMedicine. 40, 406-421 (2019).
- Sarge, K. D., Park-Sarge, O. K. SUMO and its role in human diseases. Internationa Review of Cell and Molecular Biology. 288, 167-183 (2011).
- Da Silva-Ferrada, E., Lopitz-Otsoa, F., Lang, V., Rodriguez, M. S., Matthiesen, R. Strategies to Identify Recognition Signals and Targets of SUMOylation. Biochemical Research International. , 875148(2012).
- Liang, Y. C., et al. SUMO5, a Novel Poly-SUMO Isoform, Regulates PML Nuclear Bodies. Science Reports. 6, 26509(2016).
- Mikolajczyk, J., et al. Small ubiquitin-related modifier (SUMO)-specific proteases: profiling the specificities and activities of human SENPs. Journal of Biologucal Chemistry. 282 (36), 26217-26224 (2007).
- Hilgarth, R. S., Sarge, K. D. Detection of sumoylated proteins. Methods in Molecular Biology. 301, 329-338 (2005).
- Vertegaal, A. C., et al. A proteomic study of SUMO-2 target proteins. Journal of Biological Chemistry. 279 (32), 33791-33798 (2004).
- Bruderer, R., et al. Purification and identification of endogenous polySUMO conjugates. EMBO Reports. 12 (2), 142-148 (2011).
- Becker, J., et al. Detecting endogenous SUMO targets in mammalian cells and tissues. Nature Structural Molecular Biology. 20 (4), 525-531 (2013).
- Barysch, S. V., Dittner, C., Flotho, A., Becker, J., Melchior, F. Identification and analysis of endogenous SUMO1 and SUMO2/3 targets in mammalian cells and tissues using monoclonal antibodies. Nature Protocols. 9 (4), 896-909 (2014).
- Hendriks, I. A., et al. Site-specific characterization of endogenous SUMOylation across species and organs. Nature Communications. 9 (1), 2456(2018).
- Da Silva-Ferrada, E., et al. Analysis of SUMOylated proteins using SUMO-traps. Science Reports. 3, 1690(2013).
- Hjerpe, R., et al. Efficient protection and isolation of ubiquitylated proteins using tandem ubiquitin-binding entities. EMBO Reports. 10 (11), 1250-1258 (2009).
- Embade, N., et al. Murine double minute 2 regulates Hu antigen R stability in human liver and colon cancer through NEDDylation. Hepatology. 55 (4), 1237-1248 (2012).
- Wisniewski, J. R., Zougman, A., Nagaraj, N., Mann, M. Universal sample preparation method for proteome analysis. Nature Methods. 6 (5), 359-362 (2009).
- Meier, F., et al. Online Parallel Accumulation-Serial Fragmentation (PASEF) with a Novel Trapped Ion Mobility Mass Spectrometer. Molecular and Cellular Proteomics. 17 (12), 2534-2545 (2018).
- Ritho, J., Arold, S. T., Yeh, E. T. A Critical SUMO1 Modification of LKB1 Regulates AMPK Activity during Energy Stress. Cell Reports. 12 (5), 734-742 (2015).
- Lang, V., Da Silva-Ferrada, E., Barrio, R., Sutherland, J. D., Rodriguez, M. S. Using Biotinylated SUMO-Traps to Analyze SUMOylated Proteins. Methods in Molecular Biology. 1475, 109-121 (2016).
- Xolalpa, W., Rodriguez, M. S., England, P. Real-Time Surface Plasmon Resonance (SPR) for the Analysis of Interactions Between SUMO Traps and Mono- or PolySUMO Moieties. Methods in Molecular Biology. 1475, 99-107 (2016).
重印与许可
