本方案可在单细胞和细胞群体水平上,对细菌在胁迫条件下的生长过程进行时间分辨的描述。
本文内容
摘要
摘要
分析细菌在胁迫条件下生长和存活的能力,对于广泛的微生物学研究至关重要。表征细菌细胞对诱导胁迫处理(如暴露于抗生素或其他抗菌化合物、辐照、非生理pH、温度或盐浓度)的响应具有重要意义。不同的胁迫处理可能干扰不同的细胞过程,包括细胞分裂、DNA复制、蛋白质合成、膜完整性或细胞周期调控。这些效应通常与细胞尺度上的特定表型相关。因此,理解胁迫引起的生长或活力缺陷的程度及其因果关系,需要在单细胞水平和群体水平上对多个参数进行细致分析。本文介绍的实验策略结合了传统的光密度监测和涂布平板实验,以及流式细胞术和活细胞实时显微成像等单细胞分析技术。这一多尺度研究框架能够以时间分辨的方式描述胁迫条件对细菌群体命运的影响。
引言
本实验方案的主要目的是在群体水平和单细胞水平上分析细菌细胞在受到胁迫处理后的生物学行为。传统上,细菌的生长和存活能力通常在群体水平上进行评估,方法包括通过监测光密度(OD600nm)来间接反映细菌细胞生物量的合成情况,或通过平板培养法测定培养物中活菌浓度(每毫升菌落形成单位,CFU/mL)。在正常(无胁迫)生长条件下,OD600nm 与 CFU/mL 的测量值之间存在严格的相关性,因为细菌的倍增时间直接依赖于细胞生物量的增加1,2。然而,当外界条件影响细胞生物量合成3、细胞分裂4或引发细胞裂解时,这种相关性常常被打破。一个简单的例子是那些抑制细胞分裂的胁迫处理,会导致形成丝状细菌细胞5,6。由于细胞生物量合成未受影响,丝状细胞能够正常伸长,但无法分裂为可存活的子细胞。因此,培养物的光密度会以正常速率随时间增加,但通过平板法测定的活菌浓度(CFU/mL)则不会相应增加。在这种情况下,正如许多其他类似情形一样,光密度和涂布平板的测量结果虽然提供了一定信息,却无法全面揭示所观察到的胁迫诱导效应。因此,需要将这些群体水平的检测方法与单细胞分析技术相结合,以深入表征胁迫引起的生长缺陷。
本文描述了一种结合四种互补实验方法的实验流程:(1)传统的平板培养实验和基本的光密度监测,分别用于检测细胞活力和细胞生物量合成;(2)流式细胞术,用于在大量细胞中评估细胞大小和DNA含量参数;(3)显微镜静态成像,用于分析细胞形态;(4)在微流控腔室中进行延时单细胞成像,以研究细胞命运的时间动态变化。这一多尺度研究框架有助于结合单个细胞的行为,解释对细胞生长和活力产生的整体效应。该方法可广泛应用于解析多种细菌物种对几乎所有感兴趣胁迫条件的响应,包括特定条件下的生长(如培养基种类、pH、温度、盐浓度)或暴露于抗生素及其他抗菌化合物的情况。
方案
1. 细胞培养、应激诱导及取样步骤
注意:使用无菌的培养玻璃器皿、移液器吸头以及经0.22 µm过滤的培养基,以避免背景颗粒污染。此处细胞培养采用低自发荧光的丰富定义培养基(见材料表)7,8。
- 从冷冻甘油菌种中挑取目标菌株,在Luria-Broth(LB)琼脂糖平板(如需要可添加选择性抗生素)上划线,于37 °C培养过夜(17 h)。
注意:本实验示例使用Escherichia coli MG1655 hupA-mCherry菌株。该菌株表达带有荧光标记的HU类核相关蛋白亚基α,从而可在活细胞中通过光学显微镜观察染色体9。 - 用单个菌落接种5 mL培养基,于37 °C、140转/分钟(rpm)振荡培养过夜(17 h)。必须使用锥形瓶(≥50 mL)或大直径(≥2 cm)试管,以确保振荡培养时有充分通气。
- 次日早晨测定600 nm处的光密度(OD600nm),并将菌液稀释至含有新鲜培养基的试管中,使OD600nm为0.01。菌液总体积需根据实验中拟分析的时间点数量进行调整。
- 将200 µL菌液样品加入微孔板(每孔工作体积0.2 mL,底部透明)中,并置于自动酶标仪(见材料表)内,在37 °C孵育期间监测OD600nm。
- 将接种后的试管于37 °C振荡(140 rpm)培养至OD600nm = 0.2,此时对应于丰富培养基中的完全对数生长期。
注意:为获得正常的对数期生长,细胞必须至少生长4−5代。步骤1.3中使用的初始接种量(OD600nm = 0.01)在贫瘠培养基中生长时(即对数期在OD低于0.2时达到)或需要更多代数时(例如特定生理学研究或延长应激处理)需进行相应调整。 - 当OD600nm = 0.2时,采集以下菌液样品作为t0时间点(应激诱导前的对数生长期细胞):(1)150 µL样品立即用于微流控装置进行延时显微成像(见第2节);(2)200 µL样品用于稀释涂布平板实验(见第3节);(3)250 µL样品置于冰上用于流式细胞术分析(第4节);(4)10 µL样品立即点样于载玻片上的琼脂糖垫上,用于显微快照成像(见第5节)。
- 将试管中剩余的菌液暴露于拟研究的特定应激处理条件下,并于37 °C振荡(140 rpm)孵育。
注意:用于OD600nm监测的自动酶标仪中的菌液也应接受相同的应激处理。 - 在应激处理后的适当时间点(t1、t2、t3等),从应激处理的菌液中采集以下样品:(1)200 µL用于稀释涂布平板实验(见第2节);(2)250 µL置于冰上用于流式细胞术分析(第3节);(4)10 µL立即点样于载玻片上的琼脂糖垫上,用于显微快照成像(见第4节)。
注意:每种诱导应激的处理方式其效率均依赖于剂量和时间。因此,可能需要进行预实验以确定获得最佳效果所需的处理剂量和持续时间。可通过使用自动酶标仪(可结合涂布实验)监测经不同剂量和暴露时间处理的菌液的OD变化来实现。在本实验中,菌液用终浓度为5 µg/mL的细胞分裂抑制抗生素头孢氨苄(Ceph.)处理60分钟。随后通过离心(475 g,5 min)将细胞沉淀至15 mL离心管中,弃去上清液,用移液器轻轻加入等体积新鲜培养基重悬菌体沉淀,并转移至洁净试管中。洗涤后的细胞于37 °C振荡(140 rpm)培养以恢复生长。样品分别在t60(添加头孢氨苄后60分钟,即“头孢氨苄-60分钟处理”样品)、t120(洗涤后60分钟)和t180(洗涤后120分钟)采集。
2. 涂布实验
注意:平板培养实验可用于测定培养样品中能够形成菌落形成单位(CFU)的细胞浓度。该方法可揭示单个细胞分裂为两个有活力细胞的速率,并可用于检测细胞分裂停滞现象(例如细菌世代时间延长或细胞裂解)。
- 将200 µL培养样品在新鲜培养基中进行10倍系列稀释,直至10-7。取适当稀释度的100 µL接种于非选择性LB琼脂平板上,以便在37 °C过夜培养后获得3−300个菌落。
注意:在新鲜培养基中进行系列稀释时必须迅速操作,以限制细菌分裂。或者,研究人员可考虑使用不含碳源的生理盐水溶液,以防止稀释过程中细胞分裂。 - 次日,计数菌落数量,以确定各培养样品中可存活细胞的浓度(CFU/mL)。绘制未经处理和经处理的细胞培养物的CFU/mL随时间变化曲线。
3. 流式细胞术
注意:以下部分描述了用于流式细胞术分析的细胞样品制备。该分析技术可揭示大量细胞的细胞大小和DNA含量分布。如有可能,建议立即处理流式细胞术样品。或者,样品可在冰上保存(最长6小时),并在当天完成铺板和显微镜成像后,统一进行分析。
- 将250 µL培养样品稀释,用4 °C的新鲜培养基制备成终体积为250 µL、浓度约为15,000 个细胞/µL(对应OD600nm ~0.06)的悬液。
注意:冰上孵育可限制细胞生长和形态变化。或者,用户可考虑使用75%乙醇对细胞进行固定,这通常是流式细胞术推荐的做法10。 - 进行DNA染色时,将细菌样品与10 µg/mL的DNA荧光染料溶液按1:1比例混合,避光孵育15分钟后进行样品分析。
- 将样品以约120,000 个细胞/分钟的流速上机进行流式细胞术检测。在适当设置下,采集前向散射光(FSC)、侧向散射光(SSC)以及DNA荧光染料的荧光信号(FL-1)。
- 绘制FSC和FL-1的细胞密度直方图,以表示细胞群体中细胞大小和DNA含量的分布情况。
4. 快照显微成像
注意:以下部分描述了用于群体快照分析的显微镜载玻片制备和图像采集。该步骤将提供有关细胞形态(细胞长度、宽度、形状)以及染色体DNA细胞内组织结构的信息。
- 在开始观察前,将恒温显微镜腔室预热至 37 °C,以稳定温度。该腔室可在延时实验期间调节显微镜光学系统和样品载物台的温度。
- 按照 Lesterlin 和 Dubarry7 的方法制备琼脂糖包埋载玻片。
- 从蓝色框架(见材料表)底部移除塑料薄膜,保留另一侧的凹形塑料膜。将蓝色框架粘附在显微镜玻璃载片上。
- 用移液器吸取约 150 µL 熔化的 1% 琼脂糖培养基溶液,注入蓝色框架的腔室内。迅速用洁净的盖玻片覆盖以去除多余液体,并在室温下静置数分钟,使琼脂糖垫凝固。
- 当细胞样品准备就绪后,移除蓝色框架上的盖玻片和塑料薄膜。将 10 µL 细胞样品滴加到琼脂糖垫上,轻轻倾斜载玻片以铺展液滴。待液体完全被吸附后,将洁净的盖玻片贴附于蓝色框架上,密封样品。此时显微镜载片已准备就绪,可用于显微观察。
- 将载片置于显微镜载物台上,使用透射光(配备相差物镜)以及在适当波长(mCherry 为 560 nm)的光源激发下进行图像采集。
- 选择包含孤立细胞的视野,以便在图像分析过程中实现自动细胞识别。确保至少成像 300 个细胞,以对细胞群体进行可靠的统计学分析。
5. 微流控延时显微镜成像
注意:以下部分介绍微流控板的制备(参见材料表)、细胞加样、微流控程序以及延时图像采集。该成像过程可实时显示单个细胞的行为。
- 根据微流控软件用户指南中的说明,从微流控板中移除保存液,并替换为预热至 37 °C 的新鲜培养基。
- 将微流控板密封至流路控制系统,并点击 Priming 按钮。
- 将带有流路控制系统的微流控板放置于显微镜载物台上,在开始显微成像前于 37 °C 预热约 2 小时。
注意:此预热步骤至关重要,可避免微流控腔室膨胀,否则会在延时实验过程中改变显微镜的焦距,影响图像采集质量。 - 密封微流控板。将第 8 孔中的培养基替换为 150 µL 培养样品,并根据需要将第 1 至第 5 孔中的培养基替换为含或不含诱导应激试剂的培养基。
- 密封微流控板并将其放置于显微镜载物台上。
- 在 微流控软件(参见 材料表) 上运行细胞加载程序。通过明场透射光显微镜观察,检查细胞加载是否充分。若腔室内细胞密度不足,可再次运行细胞加载程序。
- 在明场透射光模式下仔细调焦,并选择若干含有孤立细菌的视野。应选择不过于密集的区域,以便能够长时间监测单个细胞的生长(建议每 100 µm2 区域内约有 10−20 个细胞)。这也将有助于图像分析过程中的细胞识别。
- 在微流控软件中,点击“创建实验方案”按钮。可选地,编程注入生长培养基,持续时间为 1−2 个世代时间,以使细胞适应环境。随后,编程注入诱导应激的培养基,压力为 2 psi,持续 10 分钟,接着在 1 psi 下持续注入所需时长的应激培养基。若需分析细胞在应激后的恢复情况,则编程注入新鲜生长培养基,持续所需时长。
注意:在本实验中,头孢氨苄在 2 psi 下注入 10 分钟,随后在 1 psi 下持续 50 分钟;之后在 2 psi 下注入新鲜生长培养基 10 分钟,接着在 1 psi 下持续 3 小时。 - 以延时成像模式进行显微镜图像采集,每隔 10 分钟采集一帧图像,使用相衬透射光成像,如需检测 mCherry 信号,则同时使用 560 nm 激发光源。
注意:显微图像采集的起始时间必须与微流控注入程序的启动时间同步。
6. 图像分析
注意:本节简要描述了快照和延时显微镜图像处理与分析的关键步骤。显微镜图像的打开与可视化通过开源软件 ImageJ/Fiji(https://fiji.sc/)11 完成。定量图像分析使用开源 ImageJ/Fiji 软件结合免费的 MicrobeJ 插件12(https://microbej.com)进行。本方案采用 MicrobeJ 5.13I 版本。
- 打开 Fiji 软件和 MicrobeJ 插件。
- 对于快照分析,将对应于一个显微镜载玻片(一个样本)的所有图像拖入 MicrobeJ 加载栏,以合并图像并保存生成的图像堆栈文件。对于延时成像数据,只需将图像堆栈拖入 MicrobeJ 的加载栏即可。
- 基于相差图像的分割,自动检测细胞轮廓;若适用,再基于染色DNA荧光信号的分割,自动检测类核结构。通过视觉检查细胞检测的准确性,必要时使用MicrobeJ编辑工具进行修正。保存所得结果文件。
注意:用于检测的设置参数 E. coli 细胞在图中被标出 材料清单 (参见 MicrobeJ 中“评论/描述”列)。对于其他细菌种类(尤其是非杆状细菌),用户必须在检测前优化设置参数(参见 MicrobeJ 教程)。对于延时成像,建议使用 MicrobeJ 编辑工具进行半自动化的细胞检测,以便追踪单个细胞的命运变化(参见 MicrobeJ 教程)。 - 点击图标 结果J 完成分析并获得 结果J 窗口。此后可生成多种不同类型的输出图表。绘制细胞形态/长度的归一化直方图以及每个细胞的平均拟核数量的归一化直方图。
结果
所描述的程序用于分析行为 大肠杆菌 K12细胞在短暂暴露于头孢氨苄期间的状态,头孢氨苄是一种特异性抑制细胞分裂的抗生素(图1A)13。该 hupA-mCherry 大肠杆菌 使用表达荧光标记 HU 蛋白并结合染色体 DNA 的菌株,以研究在该处理过程中染色体的动态变化8,9指数生长期 hupA-mCherry 大肠杆菌 细胞在处理前(t0)以及与头孢氨苄孵育60分钟后(t60)。随后,洗去抗生素,并在1小时后(t120)和 2 小时(t180) 进行了分析(图1B).
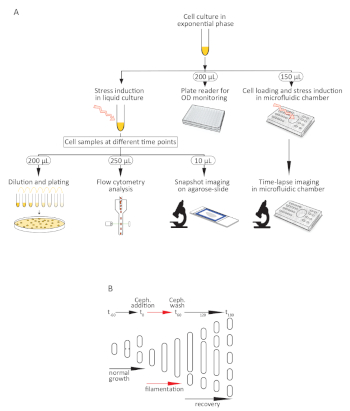
图1:细菌对胁迫处理响应的分析流程。(A)方法示意图。(B)卡通图展示细菌在丰富培养基中正常生长以及瞬时暴露于头孢氨苄(Ceph.)期间的细胞形态变化,从添加头孢氨苄(t0)开始,至洗脱后从(t60)到(t180)的过程。请点击此处查看该图的放大版本。
OD 与 CFU/mL 的平行演化是帮助理解胁迫处理效应的首个指标。这两个参数在未受干扰的生长过程中严格相关,但在胁迫条件下常发生解耦并独立演化。在存在头孢氨苄的情况下生长的细胞培养物,其 OD600nm 的增加程度与未受胁迫的培养物相似(图 2A),表明该药物未影响细胞生物量的合成。然而,由于细胞分裂受到严格抑制,在存在头孢氨苄时,活细胞浓度并未增加(图 2B)。当移除头孢氨苄后,细胞重新开始分裂,并最终在 (t180) 时达到与未受胁迫培养物相当的浓度。这些结果反映了头孢氨苄的抑菌作用,即诱导细胞分裂发生完全可逆的抑制。不同类型的胁迫会根据其诱导的效应(例如细胞形态改变,如丝状化或膨大,以及伴随或不伴随裂解的细胞死亡),导致 OD 与 CFU/mL 曲线出现不同程度的解耦。不同胁迫诱导效应可能产生的结果示例列于 图 2C 中,此列表并非穷尽。
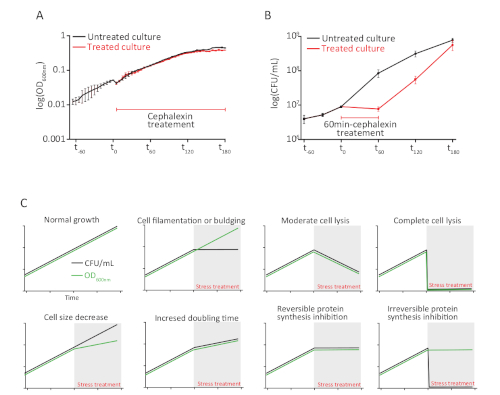
图 2:群体水平下未经处理与经头孢氨苄处理的细菌细胞生长监测。 (A)光密度监测(OD600nm/mL)。(B)未经处理及经头孢氨苄处理 60 分钟的培养物中活细胞浓度(CFU/mL)。误差线表示三次实验重复的标准偏差。(C)可能结果及其相关应激效应的示意图。 请点击此处查看该图的放大版本。
单细胞分析对于准确解读群体水平上观察到的应激反应至关重要。流式细胞术可检测数千个细胞的细胞大小和DNA含量14,15(图3)。暴露于头孢氨苄后,细胞大小和DNA含量均平行增加(t60)。当去除头孢氨苄后,群体的细胞大小和DNA含量逐渐下降,在t180时恢复至与未受应激群体相似的水平。这些结果表明,头孢氨苄并未抑制DNA复制,而是诱导形成了含有多个染色体拷贝的丝状细胞。当药物被洗脱后,这些丝状细胞分裂为具有正常细胞大小和DNA含量的细胞。若应激因素抑制DNA合成,则流式细胞术结果将显著不同,此类应激会导致形成仅含一个未复制染色体的丝状细胞。在此情况下,细胞大小会类似地增加,但不会伴随DNA含量的上升。
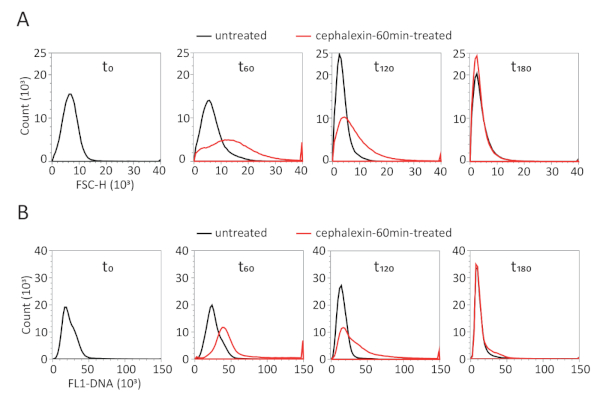
图3:未处理与头孢氨苄处理60分钟细胞的代表性流式细胞术分析。 (A)细胞大小分布直方图(FSC-H)。(B)DNA含量直方图(FL1-SYTO9)。分析细胞数 n = 120,000。 请点击此处查看该图的放大版本。
采用快照显微成像技术观察细胞形态以及由 HU-mCherry 定位显示的细胞内 DNA 组织结构(图 4A)。头孢氨苄诱导形成长度增加但细胞宽度正常且无分裂隔膜的细胞。这些平滑的丝状细胞中含有规则排列的 DNA 结构,称为拟核,表明头孢氨苄未影响染色体的复制与分离。定量图像分析在很大程度上证实了此前通过流式细胞术观察到的细胞大小和 DNA 含量增加现象(图 4B,C)。若施加诱导 DNA 损伤的胁迫条件,则结果会显著不同,此类胁迫会导致丝状细胞形成,其中 DNA 复制持续进行但分离过程受阻。在此情况下,细胞大小和 DNA 含量同样会增加,但细胞内仅含有一个无定形的 DNA 团块。快照图像还可揭示其他类型的异常细胞形态,或微型细胞、无核细胞以及裂解细胞(ghost cells)的存在。
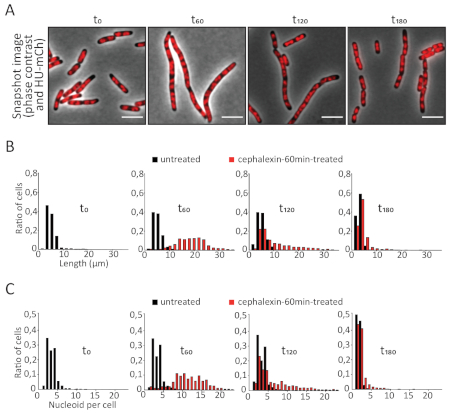
图4:未经处理与头孢氨苄处理60分钟后的细胞显微镜快照分析。 (A)代表性显微镜图像,显示相差图像(灰色)和 HU-mCherry 信号(红色)。(B)细胞长度分布直方图。比例尺 = 5 µm。(C)每细胞类核数量的直方图。每组样本分析了800至2,000个细胞。请点击此处查看该图的放大版本。
与微流控装置结合的延时显微镜技术16有助于确认先前观察到的表型,并进一步揭示生长缺陷的发生过程及其因果关系。延时成像结果(图5A 和 视频1)证实,细胞伸长(细胞质量合成)以及染色体复制与分离在头孢氨苄处理下并未受到抑制。此外,该实验还揭示了去除头孢氨苄后细胞恢复的过程。对丝状细胞谱系的分析显示,在洗脱药物约20分钟后,细胞分裂重新启动(图5B)。分裂产生的子细胞具有活力,能够继续分裂,最终形成33个大小正常且DNA含量正常的细胞。据此可计算出整个实验180分钟期间的平均世代时间为约31分钟,与通过CFU/mL测量所得的无应激群体世代时间(约33分钟)相近。
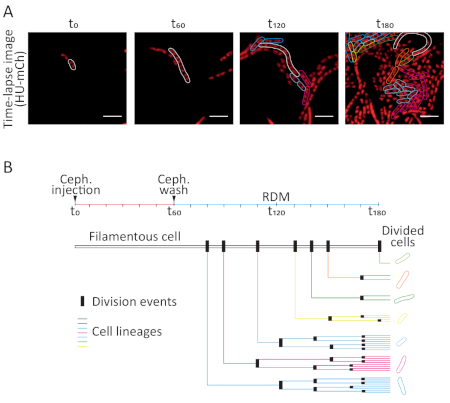
图 5:头孢氨苄处理 60 分钟后细胞的显微延时分析。 (A)代表性显微图像,显示相位对比(灰色)和 HU-mCherry 信号(红色)。被监测的丝状细胞以白色轮廓标示,分裂后的细胞以不同颜色标示。比例尺 = 5 µm。(B)对应于图(A)及视频 1的丝状细胞谱系示意图。请点击此处查看该图的放大版本。
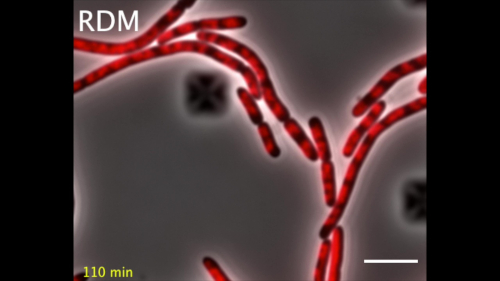
视频 1:E. coli HU-mCherry 经头孢氨苄处理后的微流控视频。 在 60 分钟后注入头孢氨苄,随后注入新鲜 RDM 培养基持续 3 小时。时间以黄色标注(每 10 分钟一帧)。比例尺 = 5 µm。 请点击此处观看视频(右键可下载)。
讨论
在实验过程中,必须密切关注细胞的生长状态。在细胞达到完全对数生长期之前,需培养若干代。为确保本方法的成功,所有细胞样品应同时采集,且最好每次仅同时分析一个经处理和一个未经处理的培养样品。用于显微镜成像的细胞样品在整个操作过程中必须保持在实验温度条件下。因此,实验开始前必须预先加热显微镜腔室和微流控腔室。若流式细胞术样品无法立即分析,可将其置于冰上保存最多6小时。冰上孵育可限制细胞的生长和形态变化。 alternatively,用户可考虑使用75%乙醇固定细胞,这通常是流式细胞术推荐的固定方法10。如果实验方案要求从培养基中洗去应激诱导剂,则离心和移液操作需格外小心,以避免损伤可能存在的异常细胞。
流式细胞术和快照分析均可获取细胞大小和DNA含量参数,而快照分析还能进一步观察细胞形态。若缺乏可用于观察目标生物类核结构的荧光融合蛋白,可使用DAPI10(4',6-二脒基-2-苯基吲哚)或其他稳定的DNA染料进行DNA染色。如果无法进行流式细胞术分析,则必须通过显微镜成像并分析大量细胞。
也可以利用携带与特定通路相关蛋白的荧光融合蛋白的菌株进行显微成像。这有助于揭示应激对多种细胞过程的影响,例如复制、转录、细胞壁合成或细胞分裂。该方法可应用于多种细菌物种,唯一要求是微流控装置必须与细胞形态相容。标准微流控板适用于细胞宽度在 0.7 µm 至 4.5 µm 之间的杆状细菌。然而,对于球菌、卵形球菌或其他形态特殊的细菌菌株,则需要进行测试。此外,如果由于设备不可用或细菌菌株不兼容而无法进行微流控实验,可在琼脂糖固定的载玻片上进行延时成像,最长持续时间为 2 小时。
这种多尺度分析方法的主要优势在于,能够全面观察胁迫诱导对细菌生长能力多个方面(即:生物量合成、细胞活力、细胞形态、膜完整性、DNA含量)的影响,以及这些参数在胁迫条件下细菌群体生长过程中随时间变化的动态规律。该方法还可用于在单细胞水平和群体水平上分析正常生长能力的恢复情况。该策略适用于多种细菌物种,以及几乎各种类型的胁迫处理,例如暴露于抗生素或其他抗菌化合物、分析多物种群体中与其他生物相互作用的影响,或基因突变所产生的效应。
披露
作者声明无竞争利益。
致谢
作者感谢 F. Cornet 提供 hupA-mCherry 菌株,A. Dedieu 在流式细胞术方面的技术支持,以及 A. Ducret 在 MicrobeJ 使用方面的帮助。资助情况:C. Lesterlin 感谢法国国家健康与医学研究院(Inserm)和法国国家科学研究中心(CNRS)以及 ATIP-Avenir 项目、施伦贝格尔教育与研究基金会(FSER 2019)、法国国家科研署对 PlasMed 研究项目(ANR-18-CE35-0008)的资助,同时感谢 FINOVI 对 J. Cayron 的经费支持;感谢“法国抗癌联盟”(La Ligue contre le cancer)对流式细胞仪设备的资助。作者贡献:C.L. 和 J.C. 设计了实验方案并撰写了论文;J.C. 完成了实验并分析了数据。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | BioRad | 1613100 | 认证分子生物学级琼脂糖 |
| Attune NxT 声学聚焦流式细胞仪 | ThermoFisher Scientific | A24858 | 流式细胞仪 |
| CellASIC ONIX 微流控系统 | Merck Millipore | CAX2-S0000 | 微流控系统 |
| CellASIC ONIX2 FG | Merck Millipore | ONIX2 1.0.1 | 微流控软件 |
| CellASIC ONIX2 Manifold Basic | Merck Millipore | CAX2-MBC20 | 流体控制模块系统 |
| CytoOne 96孔板(带盖) | Starlab | CC7672-7596 | 工作体积为0.2 mL、底部透明平底的微孔板,适用于全自动酶标仪 |
| E. coli菌株,携带染色体插入的hupA-mCherry融合基因 | 通过P1转导将hupA-mCherry导入E. coli MG1655构建而成 | ||
| Fiji | ImageJ | https://fiji.sc/ | 图像处理软件。若在发表文章中使用,请引用Schindelin等人 |
| Gene Frame | Thermo Scientific | AB-0578 | 蓝色密封框(125 μL,1.7 × 2.8 cm) |
| LB琼脂培养基 | MP Biomedicals | 3002232 | 用于涂布实验的生长培养基 |
| MicrobeJ | ImageJ/Fiji插件 | https://www.microbej.com/ | 显微图像分析插件。若在发表文章中使用,请引用Ducret et al。检测参数设置:细菌:面积(μm²):0.1-最大值;长度(μm):0.5-最大值;宽度(μm):0.6-最大值;范围(μm):0.5-最大值;角动性(弧度):0-0.3;其余所有参数均为0-最大值。核区:容差:500;阈值:局部;其余所有参数均为0-最大值 |
| CellASIC ONIX微流控芯片 | Merck Millipore | B04A-03-5PK | 用于微流控系统的芯片 |
| 尼康Eclipse Ti显微镜 | Nikon | 荧光显微镜 | |
| MOPS EZ Rich Defined Medium(RDM) | Teknova | M2105 | 富营养生长培养基,含10× MOPS混合液、0.132 M K2HPO4、10× AGCU、5× EZ补充剂、20%葡萄糖,经0.22 μm滤膜过滤 |
| SYTO9绿色荧光核酸染料 | ThermoFisher Scientific | S34854 | DNA荧光染料 |
| TECAN Infinite M1000 | TECAN | 30034301 | 全自动酶标仪 |
参考文献
- Donachie, W. D., Begg, K. J., Vicente, M. Cell length, cell growth and cell division. Nature. 264 (5584), 328-333 (1976).
- Donachie, W. D., Blakely, G. W. Coupling the initiation of chromosome replication to cell size in Escherichia coli. Current Opinion in Microbiology. 6 (2), 146-150 (2003).
- Patterson, D., Gillespie, D. Effect of Elevated Temperatures on Protein Synthesis in Escherichia coli. Journal of Bacteriology. 112 (3), 1177(1972).
- Begg, K. J., Donachie, W. D. Cell shape and division in Escherichia coli: experiments with shape and division mutants. Journal of Bacteriology. 163 (2), 615-622 (1985).
- Van De Putte, P., Van Dillewijn, J., Roersch, A. The Selection of Mutants of Escherichia Coli with Impaired Cell Division at Elevated Temperature. Mutation Research. 106, 121-128 (1964).
- Walker, A. R. Initial characterization of temperature-sensitive cell division mutants of Escherichia coli. Biochemical and Biophysical Research Communications. 47 (5), 1074-1079 (1972).
- Lesterlin, C., Duabrry, N. Investigating Bacterial Chromosome Architecture. Chromosome Architecture. 1431, http://link.springer.com/10.1007/978-1-4939-3631-1_6 61-72 (2016).
- Stracy, M., et al. Live-cell superresolution microscopy reveals the organization of RNA polymerase in the bacterial nucleoid. Proceedings of the National Academy of Sciences. 112 (32), E4390-E4399 (2015).
- Fisher, J. K., et al. Four-dimensional imaging of E. coli nucleoid organization and dynamics in living cells. Cell. 153 (4), 882-895 (2013).
- Lesterlin, C., Pages, C., Dubarry, N., Dasgupta, S., Cornet, F. Asymmetry of chromosome Replichores renders the DNA translocase activity of FtsK essential for cell division and cell shape maintenance in Escherichia coli. PLoS genetics. 4 (12), e1000288(2008).
- Schindelin, J., et al. Fiji - an Open Source platform for biological image analysis. Nature Methods. 9 (7), (2019).
- Ducret, A., Quardokus, E. M., Brun, Y. V. MicrobeJ, a tool for high throughput bacterial cell detection and quantitative analysis. Nature Microbiology. 1 (7), 16077(2016).
- Rolinson, G. N. Effect of beta-lactam antibiotics on bacterial cell growth rate. Journal of General Microbiology. 120 (2), 317-323 (1980).
- Boye, E., Løbner-Olesen, A. Flow cytometry: illuminating microbiology. The New Biologist. 2 (2), 119-125 (1990).
- Rieseberg, M., Kasper, C., Reardon, K. F., Scheper, T. Flow cytometry in biotechnology. Applied Microbiology and Biotechnology. 56 (3-4), 350-360 (2001).
- Nolivos, S., et al. Role of AcrAB-TolC multidrug efflux pump in drug-resistance acquisition by plasmid transfer. Science. 364 (6442), 778-782 (2019).
- Chao, Y., Zhang, T. Optimization of fixation methods for observation of bacterial cell morphology and surface ultrastructures by atomic force microscopy. Applied Microbiology and Biotechnology. 92 (2), 381-392 (2011).
重印与许可
