建立了一种基于肿瘤细胞与基质成纤维细胞异质相互作用的新型三维球体模型。本文介绍了肿瘤细胞与基质成纤维细胞的共培养、延时成像及共聚焦显微镜技术,用于可视化球体的形成过程。该三维模型为研究肿瘤-基质相互作用及筛选抗癌治疗药物提供了一个恰当的研究平台。
本文内容
摘要
摘要
肿瘤-基质相互作用在癌症进展中起着重要作用。三维(3D)肿瘤球体模型是目前癌症干细胞/起始细胞研究、临床前癌症研究和药物筛选中最广泛使用的体外模型。相较于传统的肿瘤细胞培养,3D球体模型具有优势,能够再现真实实体瘤的某些重要特征。然而,传统的3D肿瘤球体仅由肿瘤细胞构成,缺乏肿瘤基质细胞的参与,且细胞外基质(ECM)沉积不足,因而仅能部分模拟体内肿瘤组织的微环境。我们建立了一种由肿瘤细胞和基质成纤维细胞共同构成的新型多细胞三维球体模型,该模型能更真实地模拟体内肿瘤组织的微环境 体内 异质性肿瘤微环境及其固有的间质纤维化。类球体的形成受到肿瘤间质成纤维细胞的严格调控,并由间质成纤维细胞中某些关键细胞内信号通路(如 Notch 信号通路)的活性所决定。本文介绍了肿瘤细胞与间质成纤维细胞共培养的技术、用于可视化细胞间相互作用的时间序列成像,以及用于展示类球体三维结构特征的共聚焦显微镜方法。我们还展示了该三维类球体模型在实际应用中的两个示例。这种新型的多细胞三维类球体模型为研究肿瘤-间质相互作用、阐明间质成纤维细胞如何调控决定肿瘤进展和侵袭性的肿瘤干细胞/起始细胞,以及探索间质反应在癌症药物敏感性与耐药性中的作用提供了有用的平台。该平台也可作为药物发现中恰当的体外模型。
引言
实体瘤是由肿瘤细胞和多种间质细胞组成的复杂组织1,2,3,4。间质成纤维细胞,即癌症相关成纤维细胞(CAF),是大多数类型实体瘤中主要的间质细胞群体之一。CAF通过分泌生长因子、细胞因子/趋化因子、合成细胞外基质(ECM)及重塑酶(如胶原蛋白、纤连蛋白和基质金属蛋白酶)、释放外泌体以及直接的异型细胞间相互作用,在调控肿瘤生长、干性、转移、血管生成和耐药性等方面发挥关键作用5,6,7,8,9,10,11。CAF还通过从原发灶中异质性的肿瘤细胞群体中预先筛选出特定的肿瘤克隆,并促进这些被筛选的克隆适应向特定远端器官转移(该器官的微环境最有利于这些克隆的再定植),从而参与决定癌症的器官特异性转移12。此外,成纤维细胞及其分泌的可溶性因子和细胞外基质还参与调控肿瘤血管生成13,14、抗肿瘤免疫反应15,甚至在耐药性和肿瘤复发中也发挥重要作用16,17。
体外三维肿瘤球模型已被开发并用于癌症研究,作为体外癌细胞培养与体内肿瘤模型之间的中间模型18,19,20,21。三维肿瘤球模型在癌症干细胞研究、临床前癌症研究及药物筛选中日益受到重视,因为这些模型能够再现传统二维单层培养所缺乏的一些真实肿瘤的重要特征22。目前许多现有的三维肿瘤球模型仅由肿瘤细胞构成,缺乏肿瘤间质细胞的参与,这常常导致肿瘤球中细胞外基质(ECM)沉积不足,并缺少异型细胞间的相互作用。仅通过癌细胞及其同型细胞间黏附形成的传统三维肿瘤球,可能只能部分模拟体内肿瘤组织的真实情况。为克服上述部分局限,研究人员已提出在三维共培养体系中引入多种类型的间质细胞,并建立了若干种异型三维肿瘤球模型23,24,25,26,27。此外,研究人员还采用外源性三维基质(包括天然水凝胶或合成聚合物,如聚乙二醇、聚(乳酸-共-乙醇酸)和聚(N-异丙基丙烯酰胺))来包埋单细胞或多细胞肿瘤球模型,以构建支持细胞生长的微环境,并模拟细胞与基质间的相互作用28,29,从而提高这些系统的生物学相关性30。然而,在三维共培养体系中引入某些类型的间质细胞(如内皮细胞)会增加体外系统的复杂性,使得针对两种特定细胞类型之间的异型细胞相互作用(例如癌细胞与成纤维细胞之间的相互作用)的研究变得困难。此外,在真实组织中,内皮细胞并不总是直接与癌细胞及其他间质细胞接触,因为毛细血管外部包裹着一层基底膜,阻止了内皮细胞与癌细胞及其他间质细胞的直接接触。而在这些三维肿瘤球模型中,所引入的内皮细胞并未真正形成血管结构,却直接与癌细胞及其他间质细胞发生相互作用,这种情况在体内极为罕见。类似地,某些三维肿瘤球模型中使用的外源性基质在结构和成分上也不同于真实肿瘤组织中的细胞外基质。所有这些人为条件可能导致产生误导性的实验数据。
我们最近创建了一种由肿瘤细胞和癌症相关成纤维细胞(CAF)组成的新多细胞三维球体模型。在本模型中,三维肿瘤球体的形成完全由CAF决定。CAF可诱导并调控肿瘤干细胞/起始细胞的表型。CAF产生的细胞外基质(ECM)具有天然特性,可使硬癌样结构更真实地模拟体内微环境 体内 肿瘤微环境。这种新型的三维模型可作为癌症药物筛选的有用工具,并提供了一个独特的平台,用于研究肿瘤与间质的相互作用,阐明癌相关成纤维细胞(CAF)如何调控肿瘤干细胞/起始细胞,以及探索间质相互作用在癌症药物敏感性与耐药性中的作用。
方案
1. 黑色素瘤细胞和皮肤成纤维细胞的培养
- 培养人黑色素瘤细胞
- 将人黑色素瘤细胞 C816131 在含完全 W489 培养基(见步骤 1.2)的 37 °C、5% CO2 培养箱中,按照常规贴壁细胞培养条件进行培养32。当细胞融合度达到约 90% 时,以 1:5 的比例传代。
- 黑色素瘤细胞培养基(W489)
- 完全 W489 培养基的配制:80% MCDB153 培养基、20% L-15 培养基(见材料表)、2% 胎牛血清(FBS)、5 μg/mL 胰岛素、1.68 mM CaCl2 和 0.11% 碳酸氢钠。用于共培养时,不添加 FBS、胰岛素和 CaCl2。
- 小鼠皮肤成纤维细胞的分离
- 根据机构动物护理与使用委员会(IACUC)的相关指南和规定,从小鼠身上切取 1 cm × 1 cm 的皮肤组织片段。
- 在 4 °C 条件下用分散酶(见材料表)消化皮肤组织过夜。分离真皮层与表皮层后,再用胶原酶(1 mg/mL 溶于 DMEM,见材料表)在室温(RT)下继续消化过夜。
- 小鼠皮肤成纤维细胞的培养
- 用 PBS 洗涤组织沉淀,然后将其接种于含 10% FBS 和 1% 青霉素-链霉素的 DMEM 培养基中,在 37 °C、5% CO2 条件下培养。当细胞融合度达到约 90% 时,以 1:2 的比例传代。
- 在共培养前,采用标准方法用 GFP 慢病毒转导皮肤成纤维细胞。
- 通过免疫染色法鉴定小鼠皮肤成纤维细胞
- 染色用细胞准备
- 将皮肤成纤维细胞以每孔 2 × 10⁴ 个细胞的密度接种于 24 孔板中。第 2 天用 PBS 洗涤细胞两次,加入 2% 中性缓冲甲醛固定 10 分钟。弃去甲醛,再用 PBS 洗涤固定后的细胞两次。
- 免疫染色
- 每孔加入 200 μL 封闭液,在室温下孵育 30 分钟;然后加入 1:200 稀释的小鼠抗 α-SMA 抗体,在 37 °C 孵育 1 小时。用 PBS 洗涤 3 次,每次 5 分钟。
- 加入 1:400 稀释的 Alexa Fluor 488 标记山羊抗小鼠 IgG 抗体,在室温下孵育 1 小时。用 PBS 洗涤 3 次以去除未结合抗体,每次 5 分钟。
- 加入 1 μg/mL DAPI,在室温下孵育 2 分钟。弃去 DAPI 溶液,每孔加入 500 μL PBS。
- 使用倒置荧光显微镜观察细胞并采集图像。
- 染色用细胞准备
- 成纤维细胞与黑色素瘤细胞的预标记
- 第 1 天将成纤维细胞接种至 100 mm 培养皿中,使次日细胞融合度约为 60%。第 2 天弃去培养基,加入 GFP 慢病毒(原液稀释 1:3–1:5)及 4 μg/mL 多聚素(polybrene)的常规培养基,于 37 °C 培养箱中孵育 6 小时。之后弃去培养基,更换为新鲜常规培养基。2 天后使用荧光显微镜观察细胞中的 GFP 信号。在相同条件下,用 DsRed 慢病毒转导 C8161 细胞。GFP 慢病毒和 DsRed 慢病毒的制备方案已有文献报道14,34。
2. 细胞共培养
- 接种C8161-成纤维细胞共培养体系。
- 在球体形成实验的第0天,使用0.25%胰蛋白酶-EDTA分别消化C8161细胞和皮肤成纤维细胞。在室温下以250 g离心5分钟,收集细胞,并用PBS洗涤一次。
- 将细胞重悬于共培养培养基中(无血清、无胰岛素、无钙离子的W489培养基与无血清DMEM按1:1比例混合),调整细胞浓度至2 × 10⁴ 个/mL。
- 按1:1比例混合C8161细胞与成纤维细胞,每孔加入2 mL细胞混合液至24孔板中。每孔应含有每种细胞各2 × 10⁴ 个。每个实验条件需设三个重复。
注意:必须使用未经组织培养处理的培养板(见材料表),否则细胞会牢固贴壁,无法形成悬浮球体。
- 将细胞在37 °C孵育4小时,待细胞贴附后,在各实验指定的时间点进行活细胞延时成像或共聚焦扫描。
3. 活细胞延时成像
- 共培养前,按照制造商说明启动活细胞成像系统(见材料表),并使培养箱达到 37 °C 和 5% CO2 的环境。系统通常需要 1 小时达到平衡状态。将培养板小心放置于培养箱内显微镜的载物台上,并牢固锁紧门。
- 打开活细胞成像系统的软件(见材料表),选择培养板类型和制造商,以便显微镜准确定位扫描区域。选择感兴趣的孔和 10 倍物镜。设置扫描区域、扫描间隔时间以及开始和结束时间。在本方案中,单孔的最大扫描区域格式数为 36,扫描间隔时间为 1 小时。
- 记录 4–52 小时的活细胞成像数据。
注意:起始时间、结束时间和持续时间应根据细胞类型和实验目的进行优化。 - 完成图像记录后,使用活细胞成像系统软件检索数据,并导出视频或图像集。
4. 共聚焦显微镜与三维动态成像
- 将细胞共培养板置于倒置荧光显微镜(参见材料表)载物台上,使用红色和绿色激光束。在5倍或10倍物镜下观察细胞,并选择一个类球体开始扫描。
- 采用1 µm的z轴步进,从类球体底部至顶部进行扫描。使用图像处理软件(参见材料表)处理数据,重建可进一步旋转并保存为三维视频的三维图像。
5. 黑色素瘤细胞的单培养及二维簇/聚集体的形成
- 按照第2.1节所述,将2 × 10⁴个C8161黑色素瘤细胞接种至24孔板的每个孔中。培养细胞7–10天,并使用倒置荧光显微镜拍摄图像。
6. 检测3D类球体和2D细胞簇/聚集体是悬浮在培养基中还是贴附于培养板上
- 进行细胞共培养时,检查第7天形成的3D球状体;进行单细胞培养时,检查第10天形成的2D细胞簇/聚集体。
- 将细胞培养板放置在倒置荧光显微镜的载物台上。将连接注射器的弯针插入孔中,轻柔地反复吸吹培养基,以扰动孔内的培养环境。使用视频软件的录像模式记录该过程(参见材料表)。3D球状体会发生移动,而2D细胞簇/聚集体则保持稳定不动。
7. 三维球状体的共聚焦图像
注意:共培养的细胞开始形成类球体的时间为48–72小时,具体时间取决于所使用的成纤维细胞类型。通常情况下,类球体会随着时间逐渐增大。小的类球体可融合形成更大的类球体,直至第7天。当类球体大小趋于稳定后,可维持超过10天。此后,类球体常从培养板底部脱落,并聚集于孔板中央。在类球体增大的过程中,其中心区域的细胞通常会因营养不足和/或毒性微环境而死亡。因此,三维类球体形成的高峰期以及对成熟类球体进行成像的最佳时间点应通过预实验进行优化。在本实验方案中,共聚焦显微镜观察于第7天左右进行,此时类球体已成熟,且根据中心细胞的荧光信号和形态判断,其中心细胞仍存活。
- 进行共聚焦显微镜观察时,使用绿色和红色激光扫描球状体。在10倍物镜下确定扫描区域,并以1 µm的z步长从球状体底部至顶部进行扫描。
- 利用图像处理软件(例如ImageJ)的3D投影功能,生成球状体形成的三维图像及旋转视频。
8. 细胞内 Notch1 信号通路活性在决定间质对肿瘤干细胞/起始细胞调控中的作用
- 从功能获得性和功能缺失性 Notch1 小鼠中分离和表征皮肤成纤维细胞
- 从两对基因修饰小鼠中分离皮肤成纤维细胞:功能获得性 Notch1 小鼠(GOFNotch1:Fsp1.Cre+/-;ROSALSL-N1IC+/+)及其对照小鼠(GOFctrl:FSP1.Cre-/-;ROSALSL-N1IC+/+),以及功能缺失性 Notch1 小鼠(LOFNotch1:Fsp1.Cre+/-;Notch1LoxP/LoxP+/+)及其对照小鼠(LOFctrl:FSP1.Cre-/-; Notch1LoxP/LoxP+/+)31。使用第 1.3–1.5 节所述方案分离并表征皮肤成纤维细胞。
- 用 GFP 慢病毒转导小鼠皮肤成纤维细胞。
- 见第 1 节,了解使用慢病毒载体转导细胞的方法。
- 成纤维细胞与黑色素瘤细胞的共培养
- 按照第 2 节所述进行细胞共培养实验。
- 通过测量三维球状体的大小,评估成纤维细胞内 Notch1 信号通路活性对间质调控肿瘤干细胞/起始细胞的影响
- 在球状体成熟时(根据成纤维细胞类型不同,通常在第 5–7 天左右生长停止时)拍摄图像,对每种条件下的球状体形成进行定量分析。使用图像处理软件测量三维球状体的大小。
9. 使用三维球体实验检测肿瘤干细胞/起始细胞的药物反应
注意:癌症相关成纤维细胞(CAF)可调控肿瘤异质性,并诱导肿瘤干细胞/起始细胞的表型。CAF 还能支持肿瘤干细胞/起始细胞耐受临床治疗。研究表明,肿瘤干细胞是导致药物耐药性的主要原因。因此,我们采用这种三维球状体模型来评估肿瘤干细胞/起始细胞对药物的反应。该结果可较好地评价抗肿瘤药物的潜在临床疗效。
- 药物给药
- 在24孔板中将细胞共培养后,立即在培养基中配制药物的系列稀释液,使其浓度为根据预实验确定的目标浓度范围的5倍(例如1 nM、2.5 nM、5 nM、10 nM和25 nM)。
向每孔共培养细胞中加入0.5 mL相应的药物溶液。对照组按上述方法加入常规共培养培养基。 - 注意:MEK抑制剂可溶于细胞培养基,因此空白对照为2.5 mL细胞培养基。然而,若药物在水溶液中不溶,需使用DMSO等溶剂,则对照组应使用含相同浓度DMSO的细胞培养基。
- 在24孔板中将细胞共培养后,立即在培养基中配制药物的系列稀释液,使其浓度为根据预实验确定的目标浓度范围的5倍(例如1 nM、2.5 nM、5 nM、10 nM和25 nM)。
- 通过计数类球体量化药物反应
- 使用荧光显微镜观察经药物处理与未处理的细胞,并每天对细胞进行拍照。量化不同实验组中的类球体形成情况,比较不同药物浓度下细胞培养物的类球体形成能力。
注意:类球体通常在共培养后约5−7天出现。此时药物效应将变得明显。 - 使用荧光显微镜对各孔中的类球体和细胞进行成像/拍照,然后利用图像分析软件计算各处理组随时间变化的每个低倍视野(LPF × 4)中类球体的平均大小及形成的类球体数量。
注意:接受有效药物处理的细胞应比对照组形成更少甚至无类球体,这表明所测试药物在抑制肿瘤干细胞方面具有有效性。
- 使用荧光显微镜观察经药物处理与未处理的细胞,并每天对细胞进行拍照。量化不同实验组中的类球体形成情况,比较不同药物浓度下细胞培养物的类球体形成能力。
结果
我们开发了一种新颖的方法,利用体外异型细胞共培养系统生成三维球状体,以模拟体内肿瘤微环境。成纤维细胞来源于小鼠皮肤成纤维细胞。皮肤成纤维细胞的制备如上所述,并鉴定为α-SMA+/Vimentin+/FSP-1+细胞。人转移性黑色素瘤细胞(C8161)在W489培养基中培养,方法如文献32所述。为了可视化并区分成纤维细胞与肿瘤细胞,在细胞共培养前,分别用GFP/慢病毒和DsRed/慢病毒对成纤维细胞和黑色素瘤细胞进行预转导34,36。
图1 展示了黑色素瘤细胞与成纤维细胞共培养形成的多细胞三维球体示例。在无成纤维细胞存在的情况下培养的黑色素瘤细胞未能形成典型的三维球体,尽管部分黑色素瘤细胞在延长培养后可形成二维簇状/聚集体。球体的平均大小约为170–360 μm 直径约为275(标准差=37)的球体,在共培养约36小时后,通过延时成像观察到成纤维细胞与肿瘤细胞相互作用并开始形成三维球状体,如图所示 视频 1延时成像记录了共培养约4–52小时期间细胞间相互作用及球状体形成的初始阶段动态过程。三维球状体形成的高峰期出现在共培养第约5–7天。所形成的三维球状体由成纤维细胞和黑色素瘤细胞组成,其中大部分(约80%)为肿瘤细胞。 视频 2 显示单个培养的黑色素瘤细胞(DsRed)的动态过程+/C8161)在单培养条件下约4–52小时开始形成细胞簇/聚集体。二维(2D)细胞簇/聚集体的形成在约第7–10天达到峰值。 视频 3 和 视频 4 分别显示通过共聚焦显微镜观察到的3D球状体和2D肿瘤细胞簇的结构。在细胞共培养的第7天,采用共聚焦显微镜对3D球状体和2D肿瘤细胞簇进行观察。 视频 5 显示3D球状体悬浮于培养基中且具有移动性,而 视频 6 显示二维肿瘤细胞簇附着于培养板上且不移动。悬浮于培养基中是三维球状体区别于二维细胞簇的特征。当细胞培养皿或孔板中的培养基受到干扰时,无论是通过 滴加 或轻柔地用移液器吹打培养基时,悬浮的3D球状体发生移动,而2D细胞簇则保持不动。仅有少数单个死细胞可移动。
图 2A 展示了该三维模型作为研究肿瘤-间质相互作用的独特平台的一个示例,并阐明成纤维细胞中 Notch1 信号通路活性如何调控癌干细胞/起始细胞及球体形成的机制。两对成纤维细胞(Fb)分别来自功能获得性 Notch1(GOFNotch1:Fsp1.Cre+/-;ROSALSL-N1IC+/+)小鼠的皮肤及其对照组(GOFctrl:FSP1.Cre-/-;ROSALSL-N1IC+/+)小鼠,以及功能缺失性 Notch1(LOFNotch1:Fsp1.Cre+/-;Notch1LoxP/LoxP+/+)小鼠及其对照组(LOFctrl:FSP1.Cre-/-; Notch1LoxP/LoxP+/+)小鼠35。所有成纤维细胞均通过 GFP 慢病毒转导,并与预先用 DsRed 慢病毒转导的 C8161 黑色素瘤细胞共培养。延时成像显示,在共培养的前约 4–52 小时内,Fb-GOFNotch1 与 Fb-GOFctrl 相比,抑制了 C8161 黑色素瘤细胞形成三维球体;相反,Fb-LOFNotch1 与 Fb-LOFctrl 相比,促进了 C8161 黑色素瘤细胞三维球体的形成。图 2B 上图展示了在共培养第 7 天时,与具有不同 Notch 通路活性的成纤维细胞共同培养所形成的三维球体的代表性图像。图 2B 下图展示了在共培养第 7 天时,与具有不同 Notch 通路活性的成纤维细胞共同培养所形成的三维球体平均大小的定量数据。
图3展示了利用该3D模型测试肿瘤干细胞/起始细胞药物反应性的示例。研究表明,肿瘤干细胞/起始细胞与药物耐药性和癌症复发密切相关。因此,利用该3D模型评估药物反应性,可更准确地揭示潜在药物在癌症治疗中的临床疗效。C8161黑色素瘤细胞的生长和侵袭依赖于活跃的MAPK信号通路。这些细胞高表达CDK4/Kit,但不携带BRAF突变。为测试肿瘤干细胞/起始细胞对该MAPK抑制剂的药物反应性,我们采用24孔板共培养C8161黑色素瘤细胞与成纤维细胞。MAPK抑制剂PD0325901(见材料表)以1 nM、2.5 nM、5 nM、10 nM和25 nM的浓度梯度进行系列稀释,并在细胞接种时加入共培养体系中。未处理的共培养细胞作为对照。我们评估了不同药物浓度下细胞共培养物的球体形成能力,并与未处理对照组进行比较。图3A展示了在不同药物浓度下共培养第5天形成的3D球体的代表性图像。图3B为共培养第5天在不同药物浓度下每低倍视野(LPF ×4)中3D球体的平均大小及数量的定量数据。

图1:3D类球体与2D细胞簇的形成。(A)人C8161黑色素瘤细胞与小鼠皮肤成纤维细胞共培养形成的3D类球体的代表性图像。图像拍摄于黑色素瘤细胞与成纤维细胞共培养的第7天。在培养第5至7天时,类球体的平均直径约为170–360 μm(均值 = 275,标准差 = 37)。每低倍视野(LPF ×4)中平均类球体数量为18–26个(20.5 ± 3.6)。(B)C8161黑色素瘤细胞单培养形成的2D肿瘤细胞簇的代表性图像。图像拍摄于黑色素瘤细胞单培养的第7天。请点击此处查看此图的放大版本。
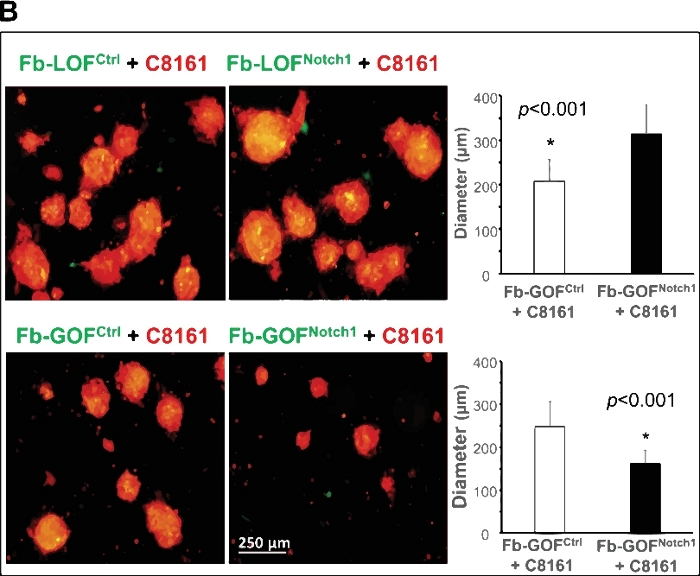
图2:利用三维球体模型阐明CAF中细胞内Notch1信号通路活性在调控肿瘤干细胞/起始细胞中的作用。(A)CAF中细胞内Notch1信号通路的活性决定了黑色素瘤细胞在共培养体系中形成球体的能力。延时视频显示,在与C8161黑色素瘤细胞共培养的前4–52小时内,Fb-GOFNotch1抑制了三维球体的形成,而Fb-LOFNotch1则促进了更多三维球体的形成。(B)上图:在共培养第7天,与具有不同Notch通路功能的成纤维细胞共同培养后形成的三维球体的代表性图像。下图:在共培养第7天,与具有不同Notch通路活性的成纤维细胞共同培养后所形成的三维球体的平均大小(直径 [μm]/球体)的定量数据。统计分析采用双尾学生t检验。数据以均值±标准差(SD)表示。请点击此处查看该图的放大版本。

图3:利用三维类球体模型评估肿瘤干细胞/起始细胞的药物反应。 (A)在不同药物浓度下,细胞共培养第5天形成的三维类球体的代表性图像。(B)在不同药物浓度下,细胞共培养第5天每低倍视野(LPF ×4)中三维类球体的平均大小(直径 [μm]/类球体)和数量的定量数据。定量数据以均值 ± 标准差(SD)表示。 请点击此处查看该图的放大版本。
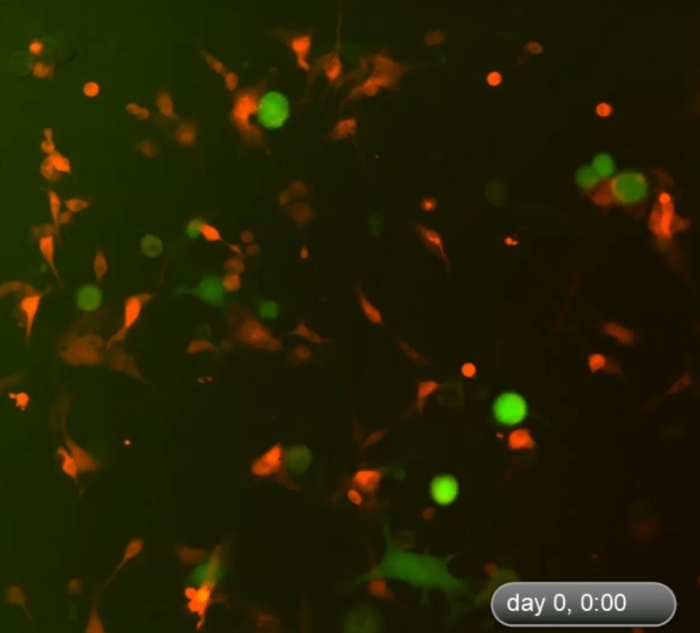
视频 1:共培养早期阶段 3D 类球体形成的动态过程。 时间序列成像显示了共培养过程中成纤维细胞与肿瘤细胞之间的动态细胞间相互作用,以及在共培养开始后约 4–52 小时内 3D 类球体的形成过程。细胞大约在共培养开始后 48 小时开始形成 3D 类球体。3D 类球体形成的高峰期出现在第 ~5−7 天(本视频未展示)。这些 3D 类球体由成纤维细胞和黑色素瘤细胞组成,其中大部分(约 80%)为肿瘤细胞。请点击此处下载该视频。
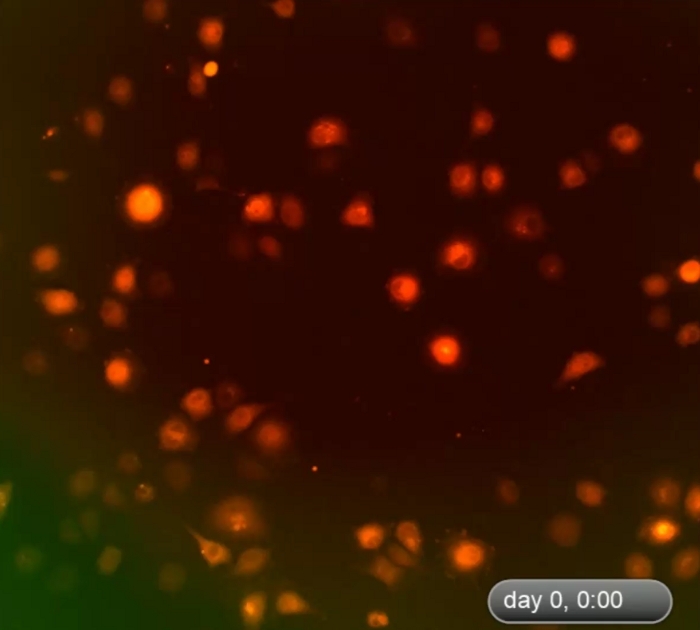
视频 2:共培养早期阶段二维细胞簇形成的动态过程。 时间推移成像显示了C8161黑色素瘤细胞在单培养条件下形成二维细胞簇的动态过程。二维细胞簇的形成大约发生在第7–10天。时间推移成像记录了DsRed+/C8161黑色素瘤细胞在单培养条件下约4–52小时的时间段。请点击此处下载该视频。

视频 3:通过共聚焦显微镜观察三维球状体的结构与旋转。 三维球状体的结构与旋转。使用绿色和红色激光对细胞共培养第7天形成的球状体进行扫描。扫描区域在10倍物镜下确定,扫描从球状体底部至顶部进行,z轴步进为1 µm。三维球状体旋转视频使用Fiji软件制作。请点击此处下载该视频。
视频 4:共聚焦显微镜观察到的二维肿瘤细胞簇的结构与旋转。 二维细胞簇的结构与旋转。在黑色素瘤细胞单培养的第7天,使用共聚焦显微镜采集细胞簇的图像。扫描区域在10倍物镜下确定,从类球体底部至顶部进行扫描,z轴步长为1 µm。二维细胞簇旋转视频使用Fiji软件生成。 请点击此处下载该视频。

视频 5:三维球状体的运动。 三维球状体悬浮于培养基中,未贴附于培养皿/孔板。当轻柔移液扰动细胞培养孔中的静止培养基时,悬浮的三维球状体会发生移动。请点击此处下载该视频。
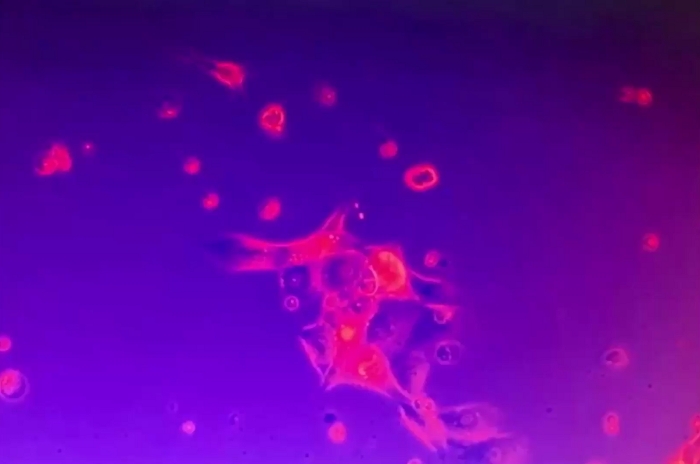
视频 6:二维肿瘤细胞簇的稳定性。 二维肿瘤细胞簇锚定在培养板上,即使培养基受到扰动也保持不动。少数单个死细胞具有移动性。请点击此处下载该视频。
讨论
体外三维细胞培养技术已在癌症研究中广泛应用数十年。与传统的二维细胞培养系统相比,三维微环境能够重现细胞间和/或细胞与基质间的相互作用,从而模拟肿瘤组织中观察到的真实条件。然而,仅由癌细胞和同型细胞间相互作用形成的三维系统未能考虑异型细胞间串扰的重要性,可能在研究中产生不准确的结果。我们近期开发了一种新型三维系统,将癌细胞与癌症相关成纤维细胞(CAF)相结合,以更好地模拟体内异质性肿瘤微环境及其天然且致密的促结缔组织增生反应。
成纤维细胞是肿瘤间质的主要组成部分。癌相关成纤维细胞(CAF)通过分泌可溶性因子、细胞外基质(ECM)/重塑酶10,11以及外泌体,在调控肿瘤进展中发挥重要作用。此外,CAF还参与介导药物耐药性和肿瘤复发16,17。我们的多细胞三维球体系统可用于探究肿瘤与间质相互作用的分子机制,并研究药物耐药性和肿瘤复发问题。CAF主要来源于被激活的局部静息态成纤维细胞,以及从循环系统募集而来的骨髓间充质干细胞(MSC),后者在肿瘤组织内就地分化为CAF37,38,39。在本研究中,我们使用皮肤成纤维细胞构建了多细胞三维球体模型。然而,其他类型的成纤维细胞(例如MSC-DF)也能以与皮肤成纤维细胞非常相似的方式调控肿瘤细胞形成三维球体34。MSC-DF可由小鼠骨髓来源的MSC生成,具体方法是将骨髓单个核细胞在MSC培养基中培养约10天,每隔3天定期更换培养基以富集MSC。这些MSC的表型特征为CD73+/CD105+/Lin-。为了将MSC分化为成纤维细胞,需进一步在完全DMEM培养基中继续培养2周。MSC-DF的表型特征为α-SMA+/Vimentin+/FSP-1+细胞36。MSC-DF可能是重要的肿瘤调控细胞。由于多种实体瘤中的部分CAF是由骨髓释放并募集至肿瘤部位的循环MSC分化而来36,因此MSC-DF可能成为有前景的治疗靶点。而且,在这些细胞被募集至肿瘤组织并分化为CAF之前,更易于对其进行治疗性干预或靶向操作。因此,我们的三维模型提供了一个理想体系,不仅可用于研究和测试肿瘤细胞,还可用于分析CAF的不同组分或亚群。三维球体形成的实验方法简便直接,关键步骤包括:使用无血清培养基进行共培养、采用合适的成纤维细胞与肿瘤细胞比例,以及选择适当的共培养板。该方法的潜在局限性在于三维球体的形成在很大程度上依赖于所使用的肿瘤细胞系。若采用不同的肿瘤细胞系,可能需要优化成纤维细胞与癌细胞之间的比例。需要指出的是,我们在构建三维球体时采用了人黑色素瘤细胞与小鼠成纤维细胞的共培养体系,因为相较于人类细胞,更易于在小鼠成纤维细胞中构建基因过表达(GOF)或基因功能缺失(LOF)模型,从而研究特定分子或信号通路在调控肿瘤球体形成中的作用。人黑色素瘤细胞与小鼠成纤维细胞能够共同形成球体,表明介导细胞间通讯所需的分子具有跨物种活性。我们近期已测试了人成纤维细胞与人黑色素瘤细胞的共培养,结果发现人成纤维细胞同样能够调控人黑色素瘤细胞形成三维球体。
我们在多细胞三维球体模型中使用了人源转移性黑色素瘤细胞C8161。我们还测试了其他人类黑色素瘤细胞,例如携带BRAFV600E突变的1205Lu32细胞,以及高表达CDK4/Kit的MeWo细胞(ATCC HTB-65),发现它们在共培养条件下也能形成三维球体。这表明肿瘤细胞形成三维球体的能力与致癌突变的类型无关。尽管我们尚未验证其他非黑色素瘤来源的肿瘤细胞是否也能与成纤维细胞共同形成三维球体,但我们的研究结果提示,三维球体的形成不仅限于黑色素瘤细胞系,可能也不依赖于特定的癌细胞系。
我们展示了3D球状体模型的两个实际应用示例。其中一个示例用于阐明细胞内Notch信号通路在调控肿瘤干细胞/起始细胞表型及3D球状体形成中的作用。我们利用该3D球状体模型证明,癌相关成纤维细胞(CAF)中的细胞内Notch信号通路是控制肿瘤干细胞/起始细胞表型的分子开关。我们的研究结果不仅揭示了间质调控肿瘤干细胞/起始细胞及肿瘤异质性的分子机制,还强调CAF中的Notch通路是黑色素瘤治疗的关键靶点。此示例表明,我们的3D球状体模型在研究肿瘤细胞与间质成纤维细胞相互作用机制以及识别潜在治疗靶点方面具有重要价值。另一个示例是检测在CAF存在条件下肿瘤干细胞/起始细胞的药物反应。众所周知,包括肿瘤干细胞/起始细胞在内的肿瘤细胞,其药物反应在有无CAF存在时存在差异。该体外系统中CAF的存在使该模型更具临床相关性,所得测试结果更为可靠。此外,我们的3D球状体系统具有高度可变性,可用于多种目的。例如,若在此3D模型中使用耐药性肿瘤细胞,则可将其用于研究药物耐药性乃至肿瘤复发问题。该系统也可经改造用于测试或筛选主要靶向CAF的抗癌药物。CAF近年来已成为极具前景的治疗靶点。靶向CAF具有多项优势:第一,与存在异常(常伴有基因改变)且具有适应性(易对化疗和放疗产生耐药性)的肿瘤细胞相比,肿瘤组织中的CAF属于正常细胞,遗传上更为稳定,因此更不易对治疗产生耐药性;第二,靶向CAF不依赖于肿瘤细胞中致癌突变的类型;第三,靶向CAF可能通过成纤维细胞依赖的抗肿瘤、抗血管生成和/或调节肿瘤免疫应答等途径实现多重打击效应。我们的3D球状体模型是发现多种癌症治疗策略的有力工具。
披露
作者声明不存在任何竞争性经济利益。
致谢
我们感谢迈阿密大学的Omaida C. Velazquez博士提供的有益合作、咨询与讨论;感谢迈阿密大学的Jie Li博士提供MeWo细胞;感谢Wistar研究所的Meenhard Herlyn博士提供其余所有黑色素瘤细胞。我们还感谢迈阿密大学分析成像核心设施主任Marcia Boulina博士提供的成像分析支持。刘兆军得到了Bankhead-Coley癌症研究项目(资助号:09BN-11)、女性癌症协会(the 53rd 年度资助以及迈阿密大学的内部资金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA | Corning | 25-253-CI | |
| 24孔板 | Corning | 351147 | 非组织培养处理板,24孔,平底,带低蒸发盖 |
| Alexa Fluor 488 山羊抗小鼠 IgG | Life Technology | A21202 | |
| CaCl₂ 1.5 M | Sigma-Aldrich | C5670-500G | |
| 胶原酶 I型A | Sigma-Aldrich | C-2674 | 500 mg,DMEM中浓度为1 mg/mL |
| DakoCytomation | Dako | x0909 | |
| DAPI | |||
| Dispase II型 | Roche Diagnostics | 165859 | |
| 杜尔贝科改良伊格尔培养基(DMEM) | Corning | 10-013-CV | |
| 胎牛血清 | VMR | 97068-085 | 优质级 |
| Fiji (ImageJ) | NIH | 免费下载,无需许可证 | |
| IncuCyte Zoom 2016A | Essen Bioscience | ||
| IncuCyte Zoom 系统 | Essen Bioscience | ||
| 胰岛素 | Sigma-Aldrich | I1882 | |
| L-15 培养基(Leibovitz) | Sigma-Aldrich | L1518 | |
| Leica SP5 倒置共聚焦显微镜 | Leica | ||
| MCDB 153 培养基 | Sigma-Aldrich | M7403-10X1L | |
| 小鼠抗 α-SMA(平滑肌肌动蛋白),单克隆抗体 | Abcam | ab18640 | |
| Olympus IX51 倒置荧光显微镜 | Olympus | IX51 | |
| Olympus CellSens | Olympus | ||
| PD0325901 | Selleckchem Chemicals | S1036 | |
| 青霉素-链霉素溶液 | Corning | 30-002- CI | 100 X |
| 碳酸氢钠 7.5% | Corning | 25-035-CI |
参考文献
- Lorusso, G., Ruegg, C. The tumor microenvironment and its contribution to tumor evolution toward metastasis. Histochemistry and Cell Biology. 130, 1091-1103 (2008).
- Anton, K., Glod, J. Targeting the tumor stroma in cancer therapy. Current Pharmaceutical Biotechnology. 10, 185-191 (2009).
- Hanahan, D., Weinberg, R. A. Hallmarks of cancer: the next generation. Cell. 144, 646-674 (2011).
- Junttila, M. R., de Sauvage, F. J. Influence of tumour micro-environment heterogeneity on therapeutic response. Nature. 501, 346-354 (2013).
- Allinen, M., et al. Molecular characterization of the tumor microenvironment in breast cancer. Cancer Cell. 6, 17-32 (2004).
- Bhowmick, N. A., Neilson, E. G., Moses, H. L. Stromal fibroblasts in cancer initiation and progression. Nature. 432, 332-337 (2004).
- Lynch, C. C., Matrisian, L. M. Matrix metalloproteinases in tumor-host cell communication. Differentiation. 70, 561-573 (2002).
- Midwood, K. S., Williams, L. V., Schwarzbauer, J. E. Tissue repair and the dynamics of the extracellular matrix. The International Journal of Biochemistry & Cell Biology. 36, 1031-1037 (2004).
- Olumi, A. F., et al. Carcinoma-associated fibroblasts direct tumor progression of initiated human prostatic epithelium. Cancer Research. 59, 5002-5011 (1999).
- Orimo, A., Weinberg, R. A. Stromal fibroblasts in cancer: a novel tumor-promoting cell type. Cell Cycle. 5, 1597-1601 (2006).
- Luga, V., et al. Exosomes mediate stromal mobilization of autocrine Wnt-PCP signaling in breast cancer cell migration. Cell. 151, 1542-1556 (2012).
- Zhang, X. H., et al. Selection of bone metastasis seeds by mesenchymal signals in the primary tumor stroma. Cell. 154, 1060-1073 (2013).
- Orimo, A., et al. Stromal fibroblasts present in invasive human breast carcinomas promote tumor growth and angiogenesis through elevated SDF-1/CXCL12 secretion. Cell. 121, 335-348 (2005).
- Shao, H., et al. Activation of Notch1 signaling in stromal fibroblasts inhibits melanoma growth by upregulating WISP-1. Oncogene. 30, 4316(2011).
- Ziani, L., Chouaib, S., Thiery, J. Alteration of the Antitumor Immune Response by Cancer-Associated Fibroblasts. Frontier in Immunology. 9, 414(2018).
- Kraman, M., et al. Suppression of antitumor immunity by stromal cells expressing fibroblast activation protein-alpha. Science. 330, 827-830 (2010).
- Straussman, R., et al. Tumour micro-environment elicits innate resistance to RAF inhibitors through HGF secretion. Nature. 487, 500-504 (2012).
- Smalley, K. S., Lioni, M., Noma, K., Haass, N. K., Herlyn, M. In vitro three-dimensional tumor microenvironment models for anticancer drug discovery. Expert Opinion on Drug Discovery. 3 (1), 1-10 (2007).
- Santiago-Walker, A., Li, L., Haass, N. K., Herlyn, M. Melanocytes: from morphology to application. Skin Pharmacology and Physiology. 22, 114-121 (2009).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (basel). 2, 27-46 (2013).
- Beaumont, K. A., Anfosso, A., Ahmed, F., Weninger, W., Haass, N. K. Imaging- and flow cytometry-based analysis of cell position and the cell cycle in 3D melanoma spheroids. Journal of Visualized Experiments. (106), e53486(2015).
- Weiswald, L. B., Bellet, D., Dangles-Marie, V. Spherical cancer models in tumor biology. Neoplasia. 17, 1-15 (2015).
- Cui, X., Hartanto, Y., Zhang, H. Advances in multicellular spheroids formation. Journal of the Royal Society Interface. 14, (2017).
- Fennema, E., Rivron, N., Rouwkema, J., van Blitterswijk, C., de Boer, J. Spheroid culture as a tool for creating 3D complex tissues. Trends in Biotechnology. 31, 108-115 (2013).
- Thoma, C. R., Zimmermann, M., Agarkova, I., Kelm, J. M., Krek, W. 3D cell culture systems modeling tumor growth determinants in cancer target discovery. Advanced Drug Delivery Review. 69-70, 29-41 (2014).
- Bulin, A. L., Broekgaarden, M., Hasan, T. Comprehensive high-throughput image analysis for therapeutic efficacy of architecturally complex heterotypic organoids. Scientific Reports. 7, 16645(2017).
- Lazzari, G., et al. Multicellular spheroid based on a triple coculture: A novel 3D model to mimic pancreatic tumor complexity. Acta Biomaterialia. 78, 296-307 (2018).
- Fong, E. L., Harrington, D. A., Farach-Carson, M. C., Yu, H. Heralding a new paradigm in 3D tumor modeling. Biomaterials. 108, 197-213 (2016).
- Gu, L., Mooney, D. J. Biomaterials and emerging anticancer therapeutics: engineering the microenvironment. Nature Reviews Cancer. 16, 56-66 (2016).
- Tevis, K. M., Colson, Y. L., Grinstaff, M. W. Embedded Spheroids as Models of the Cancer Microenvironment. Advanced Biosystems. 1, (2017).
- Welch, D. R., et al. Characterization of a highly invasive and spontaneously metastatic human malignant melanoma cell line. International Journal of Cancer. 47, 227-237 (1991).
- Balint, K., et al. Activation of Notch1 signaling is required for beta-catenin-mediated human primary melanoma progression. Journal of Clinical Investigation. 115, 3166-3176 (2005).
- Meier, F., et al. Human melanoma progression in skin reconstructs : biological significance of bFGF. the American Journal of Pathology. 156, 193-200 (2000).
- Du, Y., et al. Intracellular Notch1 Signaling in Cancer-Associated Fibroblasts Dictates the Plasticity and Stemness of Melanoma Stem/Initiating Cells. Stem Cells. 37, 865-875 (2019).
- Shao, H., et al. Notch1 Pathway Activity Determines the Regulatory Role of Cancer-Associated Fibroblasts in Melanoma Growth and Invasion. PLoS One. 10, 0142815(2015).
- Shao, H., et al. Notch1-WISP-1 axis determines the regulatory role of mesenchymal stem cell-derived stromal fibroblasts in melanoma metastasis. Oncotarget. 7, 79262-79273 (2016).
- Kalluri, R., Neilson, E. G. Epithelial-mesenchymal transition and its implications for fibrosis. Journal of Clinical Investigation. 112, 1776-1784 (2003).
- Price, J. E. Xenograft models in immunodeficient animals : I. Nude mice: spontaneous and experimental metastasis models. Methods in Molecular Medicine. 58, 205-213 (2001).
- Spaeth, E. L., et al. Mesenchymal stem cell transition to tumor-associated fibroblasts contributes to fibrovascular network expansion and tumor progression. PLoS One. 4, 4992(2009).
重印与许可
