本方案描述了一种动态培养系统,用于在化学成分明确且无饲养层的条件下,利用一次性生物反应器生成尺寸可控的人多能干细胞聚集体,并进一步诱导其向小脑类器官分化。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
小脑在维持平衡和运动协调方面发挥着关键作用,不同小脑神经元的功能缺陷可引发小脑功能障碍。目前关于疾病相关神经元表型的大多数知识均基于死后组织样本,这使得对疾病进展和发展过程的理解变得困难。动物模型和永生化细胞系也已被用作神经退行性疾病的模型,但它们并不能完全模拟人类疾病。人诱导性多能干细胞(iPSCs)在疾病建模方面具有巨大潜力,并为再生医学策略提供了宝贵的细胞来源。近年来,利用患者来源的iPSCs生成脑类器官的技术改善了神经退行性疾病建模的前景。然而,目前仍缺乏能够在三维培养系统中高效生成大量类器官和高产量成熟神经元的实验方案。本文介绍的方案是一种在化学成分明确的条件下,利用可放大的一次性生物反应器,可重复且可规模化地生成具有小脑特征的人iPSC来源类器官的新方法。所生成的类器官在mRNA和蛋白质水平均表达特定的标志物。通过对特定蛋白群组的分析,可识别出不同的小脑细胞群体,其定位对于评估类器官结构至关重要。通过类器官冷冻切片及后续对切片进行免疫染色,用于评估特定小脑细胞群体的存在及其空间组织结构。
引言
人类多能干细胞(PSCs)的出现为再生医学和疾病建模提供了极佳的工具,因为这些细胞可以分化为人体大多数细胞谱系1,2。自发现以来,已有多种方法被用于诱导PSC分化,以模拟包括神经退行性疾病在内的多种疾病3,4,5,6。
最近有研究报告称,由多能干细胞(PSCs)衍生的三维培养物可模拟人类脑部结构,这类结构被称为脑类器官3,7,8。利用健康个体及患者特异性PSCs生成这些结构,为研究人类发育过程及神经发育障碍提供了宝贵的机会。然而,目前用于生成这些高度有序脑结构的方法难以实现大规模生产。为了获得足够大且内部不发生坏死、能够模拟组织形态发生的类器官,现有方案通常依赖于在静态条件下启动神经定向分化,随后将细胞包埋于水凝胶中,并在动态培养系统中继续培养3。然而,此类方法可能限制了类器官生产的可扩展性。尽管已有研究致力于引导PSCs向中枢神经系统特定区域分化,包括皮层、纹状体、中脑和脊髓神经元9,10,11,12,但在动态条件下生成特定脑区仍具挑战性。特别是,在三维结构中生成成熟的 cerebellar 神经元尚未见报道。Muguruma 等人率先建立了可模拟早期小脑发育的培养条件13,并近期报道了一种可使人类胚胎干细胞形成类似妊娠早期小脑的极化结构的方案7。然而,在已报道的研究中,小脑神经元的成熟需要将类器官解离、分选小脑前体细胞,并在单层培养系统中与饲养细胞共培养7,14,15,16。因此,在明确条件下可重复地生成适用于疾病建模的特定小脑类器官,仍面临培养条件和饲养细胞来源变异性的挑战。
本方案介绍了使用一次性垂直轮生物反应器(具体参数见材料表,下文简称生物反应器)实现人多能干细胞(PSCs)三维扩增并高效分化为小脑神经元的最佳培养条件。生物反应器配备大型垂直搅拌桨,结合U形底部结构,可在反应器内实现更均匀的剪切力分布,从而在较低搅拌速度下实现温和、均匀的混合与颗粒悬浮17。利用该系统可获得形态和大小可控的细胞聚集体,这对于实现更均一且高效的分化至关重要。此外,该方法还能以较低的劳动强度生成更多由诱导多能干细胞(iPSC)衍生的类器官。
类器官的主要特征在于其由干细胞形成的三维多细胞结构,能够实现不同类型细胞的自我组织,进而形成类似于人类形态发生过程中所见的特定结构。18,19,20因此,类器官形态是分化过程中需要评估的重要标准。通过对类器官进行冷冻切片,并利用一组特异性抗体对切片进行免疫染色,可实现分子标志物的空间可视化,从而分析细胞增殖、分化、细胞群体身份及细胞凋亡。根据本方案,通过免疫染色类器官冷冻切片,可在第7天观察到初步高效的神经定向分化th 分化第35天。在分化过程中,可观察到多种具有小脑特征的细胞群体。在此动态系统中培养35天后,小脑神经上皮沿顶-底轴组织化,形成由顶端增殖性前体细胞层和基底部的终末分裂后神经元构成的结构。在随后的成熟阶段(分化第35至90天),可观察到不同类型的小脑神经元,包括浦肯野细胞(Calbindin)+)、颗粒细胞(PAX6+/MAP2+),高尔基细胞(Neurogranin)+),单极刷状细胞(TBR2+)以及深部小脑核投射神经元(TBR1+此外,在培养90天后生成的小脑类器官中观察到少量但无统计学意义的细胞死亡。
在此系统中,由人iPSC衍生的类器官可分化为不同类型的 cerebellar 神经元,并在无需解离和饲养层共培养的条件下存活长达3个月,为疾病建模提供了人源小脑神经元的来源。
访问受限。请登录或开始试用以查看此内容。
方案
1. 人iPSC在单层培养中的传代与维持
- 培养板的制备
- 在 4 °C 下解冻基底膜基质(见材料表)原液,并分装为每份 60 μL。将分装样品在 -20 °C 冻存。
- 为包被 6 孔板的孔,将一份基底膜基质在冰上解冻。解冻后,将 60 µL 基质加入 6 mL DMEM-F12 培养基中,通过上下轻柔吹打使其充分重悬。
- 向 6 孔板的每个孔中加入 1 mL 稀释后的基底膜基质溶液,在传代前于室温(RT)孵育至少 1 小时,或在 4 °C 保存最多 1 周。
- 使用 EDTA 传代 iPSC 克隆
- 将 iPSC 细胞在 6 孔板中以单层培养方式维持于 37 °C、95% 湿度、5% CO2 的培养箱中。
注意:本实验方案中使用了三种不同的人源 iPSC 细胞系:F002.1A.1321、人源表观遗传 iPSC 细胞系(iPSC6.2)22,以及商业获取的 iPS-DF6-9-9T.B(见材料表)。 - 传代前,将已储存的包被板(步骤 1.1)在室温(RT)放置 15 分钟,并准备 mTeSR1 培养基(表 1)。
- 使用移液管吸除孔内液体,并立即向每个孔中加入 0.5 mL mTeSR1 培养基。
- 吸除含 iPSC 的孔中的旧培养基,每孔使用 1 mL 0.5 mM EDTA 洗涤一次。
- 向每个孔中加入 1 mL 0.5 mM EDTA,并在室温下孵育 5 分钟。
- 吸除 EDTA 溶液,通过轻轻加入 mTeSR1 培养基并使用 P1000 移液器吹打克隆,将细胞从孔中脱离。将细胞收集至锥形管中。
注意:吹打细胞悬液次数不得超过 3 次。 - 将细胞悬液按 1:4 稀释后,每孔加入 1 mL,使细胞悬液加入后每孔总体积为 1.5 mL。将细胞放回 5% CO2、37 °C 的培养箱中继续培养。
- 每日更换培养基,当细胞融合度达到 75%–80% 时,每 3 天传代一次。
- 将 iPSC 细胞在 6 孔板中以单层培养方式维持于 37 °C、95% 湿度、5% CO2 的培养箱中。
2. 在生物反应器中接种人iPSCs
- 将单层培养的iPSCs在mTeSR1培养基中孵育,培养基中添加10 µM的ROCK抑制剂Y-27632(ROCKi)。向6孔组织培养板的每孔中加入1 mL补充后的培养基,在37 °C、95%湿度、5% CO2条件下孵育1小时。
注:ROCKi用于保护解离的iPSCs免于发生凋亡23。 - 孵育1小时后,吸除每孔中的废弃培养基,并用1 mL 1× PBS每孔洗涤1次。
- 向6孔板的每孔中加入1 mL细胞解离培养基(参见材料表),在37 °C下孵育7分钟,直至细胞在轻柔振荡下易于从孔壁脱落。
- 用P1000移液器反复吹打细胞解离培养基,使细胞脱落并解离为单细胞。向每孔中加入2 mL完全细胞培养基以终止酶消化作用,并轻柔吹打细胞悬液,转移至无菌锥形管中。
- 以210 × g离心3分钟,弃去上清液。
- 将细胞沉淀重悬于培养基(即添加10 µM ROCKi的mTeSR1)中,使用台盼蓝染色和血细胞计数板对iPSCs进行计数。
- 在生物反应器中接种15 × 106个单细胞(最大体积为100 mL),加入60 mL添加10 µM ROCKi的mTeSR1,最终细胞密度为250,000个细胞/mL。
- 将含有iPSCs的容器置于恒温培养箱内的通用底座单元中,培养条件为37 °C、95%湿度、5% CO2。
注:通过将通用底座单元的转速设定为27 rpm,持续搅拌24小时,以促进iPSC形成聚集体。
3. 人iPSC来源的类脑器官中聚集体的分化与成熟
- 将单细胞接种的当天定义为第0天。
- 第1天,使用刻度移液管收集1 mL iPSC细胞聚集体样品。在取样前,将装有聚集体的生物反应器置于通用底座上,并在无菌操作台中保持与之前相同的振荡状态。将细胞悬液接种至超低吸附24孔板中。检查是否已形成由iPSC衍生的细胞聚集体。
- 使用光学显微镜以40x或100x的总放大倍数获取图像,以测量聚集体直径。
- 使用 FIJI 软件测量每张图像中聚集体的面积。
- 选择 “分析 | 设置测量参数” 从菜单栏中选择并点击“面积” 和 “好的”.
- 选择“文件 | 开放” 从菜单栏中打开已存储的图像文件。选择工具栏中提供的直线选择工具,在图像中的标尺上绘制一条直线。选择“分析 | 设置比例尺” 从菜单栏中。
- 在 已知距离添加图像比例尺的尺度范围 µm定义“长度单位”作为 µm. 单击“全球”以保留设置并“好的选择 椭圆选择 在工具栏中。
- 对每个聚集体,使用椭圆工具标定其区域。选择“分析 | 测量”。根据测量得到的面积计算其直径,假设聚集体近似为球形
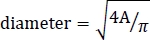
其中 A 为聚集体的面积。
- 当聚集体的平均直径为 100 µm,用不含ROCKi的新鲜mTeSR1培养基替换80%的用过的培养基。当集落达到200–250 μm 直径,将所有用过的培养基更换为gfCDM(表1),使类器官沉降至生物反应器底部。
注意:如果平均聚集体直径超过 350 μm 不要启动分化程序。重复单细胞接种。通常,聚集体需要约1天时间达到平均直径 100 µm. - 将含有聚集体的生物反应器插入放置于培养箱中的通用底座单元内 37 °C,95% 湿度,以及 5% CO₂2.
- 将生物反应器的搅拌速度降低至25 rpm。
- 第2天,重复步骤3.2、3.3和3.4以评估聚集体直径。添加 30 μL FGF2(终浓度50 ng/mL)以及 60 μL SB431542(终浓度, 10 μM) 加入 60 mL gfCDM 分化培养基(表1)。用添加补充物的gfCDM完全替换生物反应器中的废培养基,重复步骤3.6。
注意:SB431542 对于抑制中胚层-内胚层分化并诱导神经分化至关重要24. 使用 FGF2 促进神经上皮组织的尾侧化25. - 第5天,重复步骤3.2、3.3、3.4和3.8。
注意:在分化过程中,细胞聚集体的大小应逐渐增加。然而,聚集体直径仅在分化开始时至关重要,因为该参数可能影响分化的效率。 - 第7天,重复步骤3.2、3.3和3.4。将FGF2和SB431542稀释至2/3:添加 20 μL FGF2 的 40 μL 向60 mL gfCDM分化培养基中加入SB431542。将生物反应器中的用尽培养基全部更换为添加了补充物的gfCDM。重复步骤3.6,并将生物反应器的搅拌速度提高至30 rpm。
- 第14天,重复步骤3.2、3.3和3.4。添加 60 μL 加入 FGF19(终浓度为 100 ng/mL)至 60 mL 的 gfCDM 分化培养基中。将生物反应器中的所有耗尽培养基更换为添加了 FGF19 的 gfCDM。重复步骤 3.6。
注意:FGF19 用于促进中后脑结构的极化26. - 第18天,重复步骤3.2、3.3、3.4和3.11。
- 第21天,重复步骤3.2、3.3和3.4。将生物反应器中的所有用过的培养基更换为完全神经基础培养基(表1)。重复步骤 3.6。
注意:Neurobasal 培养基是一种基础培养基,用于维持类器官中的神经元细胞群体7. - 第28天,重复步骤3.2、3.3和3.4。添加 180 μL 向60 mL完全神经基础培养基中加入SDF1(终浓度300 ng/mL)。用添加SDF1的完全神经基础培养基替换生物反应器中的全部用后培养基。重复步骤3.6。
注意:SDF1 用于促进不同细胞层的有序排列27. - 第35天,重复步骤3.2、3.3和3.4。将生物反应器中的所有用过的培养基更换为完全BrainPhys培养基(表1)。重复步骤 3.6。
注意:BrainPhys 是一种支持具有突触活性神经元的神经元培养基28. - 每3天更换总体积的1/3,使用完全BrainPhys培养基,直至分化第90天。
4. 类器官冷冻切片与免疫组织化学制备
- 类器官免疫染色样本收集
- 从生物反应器中用血清移液管吸取含有类器官的培养基样本1 mL,转移至15 mL锥形管中。
注意:为评估分化效果,应在不同时间点收集类器官,包括第7、14、21、35、56、70、80和90天。 - 移除上清液,并用1 mL 1× PBS洗涤一次。
注意:不要离心类器官。让类器官依靠重力自然沉降到管底。 - 移除上清液,加入1 mL 4%多聚甲醛(PFA),在4 °C下孵育30分钟。弃去用过的PFA,加入1 mL 1× PBS。
- 将类器官保存在1 mL 1× PBS中,置于4 °C,直至进行冷冻切片处理。
注意:固定后的类器官在1× PBS中保存不得超过1周。
- 从生物反应器中用血清移液管吸取含有类器官的培养基样本1 mL,转移至15 mL锥形管中。
- 类器官冷冻切片前处理
- 移除保存的类器官中的上清液,加入1 mL 15%蔗糖溶液(w/v,用1× PBS稀释),轻轻旋转混匀,在4 °C下过夜孵育。
- 配制15%蔗糖/7.5%明胶溶液(表2),并在制备过程中保持在37 °C,以防止明胶凝固。
- 移除15%蔗糖溶液,向类器官中加入1 mL 15%蔗糖/7.5%明胶溶液,轻轻旋转快速混匀,37 °C孵育1小时。
- 将15%蔗糖/7.5%明胶溶液加入塑料容器中,至其体积的一半。在室温下等待凝固。
- 1小时孵育后,用巴氏移液管小心地将含有类器官的蔗糖/明胶液滴置于已凝固的明胶表面。室温下静置约15分钟使其完全凝固,注意避免气泡产生。
- 在类器官上方继续加入15%蔗糖/7.5%明胶溶液,直至填满容器。在室温下等待完全凝固。
- 凝固后,在4 °C下孵育20分钟。
- 将含类器官的明胶切成中心包含类器官的立方体,并用一滴O.C.T.包埋剂将明胶块固定在纸板上。
- 在500 mL烧杯中加入250 mL异戊烷,并在适当容器中加入液氮。使用镊子和厚手套,小心地将盛有异戊烷的烧杯置于液氮表面,将异戊烷冷却至-80 °C。
- 当温度达到-80 °C时,将明胶块放入盛有异戊烷的烧杯中,保持-80 °C直至完全冻结。根据立方体大小,可能需要1–2分钟。
注意:避免温度低于-80 °C或冷冻时间过长,以免导致明胶块开裂。 - 冻结后,迅速将明胶块保存在-80 °C,直至进行冷冻切片。
- 类器官冷冻切片
- 开启冷冻切片机,将样本(OT)和冷冻室(CT)温度均设定为-25 °C。
- 当两个温度稳定后,使用O.C.T.包埋剂将含类器官的明胶块固定在样本台上。
- 设定切片厚度为12 µm。
- 切取明胶块,并在粘附载玻片上收集3–4片切片(见 材料表)。
- 保存于-20 °C,待用。
- 类器官切片免疫染色
- 将含有类器官切片的载玻片放入盛有50 mL预热1× PBS的染色缸中,最多可放置10张载玻片,背对背排列。
注意:所有类器官切片必须完全浸没在液体中。 - 在37 °C下孵育45分钟,以去除明胶。
- 在室温下用50 mL 1× PBS洗涤一次,每次5分钟:将载玻片转移至盛有新鲜1× PBS的染色缸中。
- 将载玻片转移至盛有50 mL新配制甘氨酸溶液(表2)的染色缸中,在室温下孵育10分钟。
- 将载玻片转移至盛有50 mL 0.1% Triton(表2)的染色缸中,在室温下透化10分钟。
- 用1× PBS洗涤两次,每次5分钟。
- 准备免疫染色皿,将3 mm滤纸用1× PBS浸湿。用纸巾在切片周围轻轻擦干载玻片,将其置于3 mm滤纸上。用巴氏移液管将约0.5 mL/片的封闭液(表2)均匀覆盖整个载玻片表面,室温孵育30分钟。
- 吸除多余封闭液,用纸巾在切片周围轻轻擦干载玻片。将50 µL用封闭液稀释的一抗(表3)加至切片上,盖上盖玻片。将载玻片放入预先准备好的免疫染色皿中,4 °C孵育过夜。
- 将载玻片转移至盛有50 mL TBST(表2)的染色缸中,让盖玻片自然脱落,用TBST洗涤三次,每次5分钟。
- 将50 µL用封闭液稀释的二抗加至切片上,盖上盖玻片。将载玻片放入预先准备好的免疫染色皿中,室温孵育30分钟,避光。
- 再次将载玻片转移至染色缸中,用50 mL TBST洗涤三次,每次5分钟。
- 用纸巾在切片周围轻轻擦干载玻片,将载玻片放入预先准备好的免疫染色皿中。用巴氏移液管将0.5 mL DAPI溶液均匀覆盖整个载玻片表面,室温孵育5分钟。
- 重复步骤4.4.9。
- 用纸巾小心擦干载玻片。沿载玻片逐滴加入50 µL封片剂,然后轻轻将盖玻片覆盖在每张载玻片上,略微弯曲以避免产生气泡。
- 将含有类器官切片的载玻片放入盛有50 mL预热1× PBS的染色缸中,最多可放置10张载玻片,背对背排列。
访问受限。请登录或开始试用以查看此内容。
结果
通过使用0.1 L生物反应器促进细胞聚集来启动该实验方案(图1A)。以单细胞接种方式将iPSCs接种,接种密度为250,000个细胞/mL,培养体积为60 mL,搅拌速度为27 rpm。此时间点定义为第0天。24小时后,细胞高效地形成了球状聚集体(第1天,图1B),聚集体形态在第5天之前保持良好,并随着时间推移逐渐增大,表现出聚集体形态和大小的高度均一性(图1B)。显微镜下的定量分析也显示,第1天时聚集体大小呈正态分布(图1C)。聚集体大小是一个重要的物理参数,能够促使细胞向不同谱系分化29,30。因此,基于既往研究中报道的可有效诱导神经31,32和小脑分化
访问受限。请登录或开始试用以查看此内容。
讨论
为了满足药物筛选和再生医学应用中对特定细胞类型的大规模细胞数量及明确培养条件的需求,可扩展的培养系统开发正不断推进。近年来,多个研究团队已报道了可扩展地生成神经前体细胞和功能性神经元32,33,34,这为神经退行性疾病新模型的建立带来了显著进展。然而,胚胎发育过程中某些关键事件的重现仍未能实现,且在悬浮培养条件下长期维持所获得的功能性神经元也尚未实现34。本文介绍了一种动态三维培养系统,可在化学成分明确且无饲养层的动态培养条件下,生成具有小脑特征的诱导多能干细胞(iPSC)来源神经类器官,并进一步促进其成熟为功能性小脑神经元。
在开始小脑分化之前,维持人iPSCs的质量至关重要。因此,为避免影响分化效果,从解冻到生物反应器接种期间,iPSCs的传代次数不应超过三次。分化方案中的一个重要步骤是评估细胞聚集体的大小。聚集体大小在诱导向特定细胞谱系分化过程...
访问受限。请登录或开始试用以查看此内容。
披露
作者YH和SJ是PBS Biotech的员工。作者BL是PBS Biotech, Inc.的首席执行官兼联合创始人。这些合作作者参与了本论文所用生物反应器的开发。这并不影响作者遵守期刊在数据和材料共享方面的所有政策。其他所有作者均声明不存在利益冲突。
致谢
本工作由葡萄牙科学技术基金会(FCT)资助(通过里斯本2020运营计划,项目编号:UIDB/04565/2020,授予T.P.S.的项目PD/BD/105773/2014及授予D.E.S.N.的项目PD/BD/128376/2017),以及由欧洲区域发展基金(FEDER)和FCT共同资助的项目(POR Lisboa 2020—里斯本区域运营计划 葡萄牙2020),包括资助号PAC-PRECISE LISBOA-01-0145-FEDER-016394和CEREBEX小脑类器官生成用于共济失调研究项目LISBOA-01-0145-FEDER-029298。此外,还获得了欧盟“地平线2020”研究与创新计划的支持,资助协议号为739572——再生与精准医学发现中心H2020-WIDESPREAD-01-2016-2017。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 3MM 滤纸 | WHA3030861 | Merck | |
| Accutase | A6964 - 500mL | Sigma | 细胞解离液 |
| 抗 BARHL1 抗体 | HPA004809 | Atlas Antibodies | |
| 抗 Calbindin D-28k 抗体 | CB28 | Millipore | |
| 抗 MAP2 抗体 | M4403 | Sigma | |
| 抗 N-钙黏蛋白抗体 | 610921 | BD Transduction | |
| 抗 NESTIN 抗体 | MAB1259-SP | R&D | |
| 抗 OLIG2 抗体 | MABN50 | Millipore | |
| 抗 PAX6 抗体 | PRB-278P | Covance | |
| 抗 SOX2 抗体 | MAB2018 | R&D | |
| 抗 TBR1 抗体 | AB2261 | Millipore | |
| 抗 TBR2 抗体 | ab183991 | Abcam | |
| 抗 TUJ1 抗体 | 801213 | Biolegend | |
| 无转铁蛋白 | T1147 | Sigma | |
| BrainPhys 神经元培养基 N2-A & SM1 试剂盒 | 5793 - 500mL | Stem cell technologies | |
| 化学成分明确的脂质浓缩液 | 11905031 | ThermoFisher | |
| 盖玻片 24×60 mm | 631-1575 | VWR | |
| 结晶纯化牛血清白蛋白 | 5470 | Sigma | |
| DAPI | 10236276001 | Sigma | |
| 二丁酰环磷酸腺苷 | SC- 201567B -500mg | Frilabo | |
| DMEM-F12 | 32500-035 | ThermoFisher | |
| 胎牛血清 | A3840001 | ThermoFisher | |
| 牛皮来源明胶 | G9391 | Sigma | |
| 玻璃染色缸 | E94 | ThermoFisher | |
| Glutamax I | 10566-016 | ThermoFisher | |
| 甘氨酸 | MB014001 | NZYtech | |
| Ham’s F12 | 21765029 | ThermoFisher | |
| 人表观遗传重编程诱导多能干细胞系 | A18945 | ThermoFisher | iPSC6.2 |
| IMDM | 12440046 | ThermoFisher | |
| 胰岛素 | 91077C | Sigma | |
| iPS DF6-9-9T.B | WiCell | ||
| 异戊烷 | PHR1661-2ML | Sigma | |
| L-抗坏血酸 | A-92902 | Sigma | |
| Matrigel | 354230 | Corning | 基底膜基质 |
| 巯基甘油 | M6154 | Sigma | |
| Mowiol | 475904 | Millipore | 封片剂 |
| mTeSR1 | 85850 -500ml | Stem cell technologies | |
| N2 添加剂 | 17502048 | ThermoFisher | |
| Neurobasal 培养基 | 12348017 | ThermoFisher | |
| 多聚甲醛 | 158127 | Sigma | |
| PBS-0.1 一次性使用反应器 | SKU: IA-0.1-D-001 | PBS Biotech | |
| PBS-MINI MagDrive 基础单元 | SKU: IA-UNI-B-501 | PBS Biotech | |
| 重组人 BDNF | 450-02 | Peprotech | |
| 重组人 bFGF/FGF2 | 100-18B | Peprotech | |
| 重组人 FGF19 | 100-32 | Peprotech | |
| 重组人 GDNF | 450-10 | Peprotech | |
| 重组人 SDF1 | 300-28A | Peprotech | |
| ROCK 抑制剂 Y-27632 | 72302 | Stem cell technologies | |
| SB431542 | S4317 | Sigma | |
| 蔗糖 | S7903 | Sigma | |
| SuperFrost 显微镜载玻片 | 12372098 | ThermoFisher | 防脱显微镜载玻片 |
| Tissue-Tek O.C.T. 包埋剂 | 25608-930 | VWR | |
| 1M Tris-HCl | T3038-1L | Sigma | |
| Triton X-100 | 9002-93-1 | Sigma | |
| Tween-20 | P1379 | Sigma | |
| UltraPure 0.5M EDTA,pH 8.0 | 15575020 | ThermoFisher |
参考文献
- Takahashi, K., et al. Induction of Pluripotent Stem Cells from Adult Human Fibroblasts by Defined Factors. Cell. 131 (5), 861-872 (2007).
- Thomson, J. A. Embryonic Stem Cell Lines Derived from Human Blastocysts. Science. 282 (5391), 1145-1147 (1998).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Ishida, Y., et al. Vulnerability of Purkinje Cells Generated from Spinocerebellar Ataxia Type 6 Patient-Derived iPSCs. Cell Reports. 17 (6), 1482-1490 (2016).
- Liu, Y., Zhang, S. C. Human stem cells as a model of motoneuron development and diseases. Annals of the New York Academy of Sciences. 1198, 192-200 (2010).
- Mariani, J., Coppola, G., Pelphrey, K. A., Howe, J. R., Vaccarino, F. M. FOXG1-Dependent Dysregulation of GABA/ Glutamate Neuron Differentiation in Autism Spectrum Disorders. Cell. 162 (2), 375-390 (2015).
- Muguruma, K., Nishiyama, A., Kawakami, H., Hashimoto, K., Sasai, Y. Self-Organization of Polarized Cerebellar Tissue in 3D Culture of Human Pluripotent Stem Cells. Cell Reports. 10 (4), 537-550 (2015).
- Qian, X., et al. Generation of human brain region-specific organoids using a miniaturized spinning bioreactor. Nature Protocols. 13 (3), 565-580 (2018).
- Aubry, L., et al. Striatal progenitors derived from human ES cells mature into DARPP32 neurons in vitro and in quinolinic acid-lesioned rats. Proceedings of the National Academy of Sciences. 105 (43), 16707-16712 (2008).
- Gunhanlar, N., et al. A simplified protocol for differentiation of electrophysiologically mature neuronal networks from human induced pluripotent stem cells. Molecular Psychiatry. 23 (5), 1336-1344 (2018).
- Hu, B. Y., Zhang, S. C. Differentiation of spinal motor neurons from pluripotent human stem cells. Nature Protocols. 4 (9), 1295-1304 (2009).
- Jo, J., et al. Midbrain-like Organoids from Human Pluripotent Stem Cells Contain Functional Dopaminergic and Neuromelanin-Producing Neurons. Cell Stem Cell. 19 (2), 248-257 (2016).
- Muguruma, K., et al. Ontogeny-recapitulating generation and tissue integration of ES cell-derived Purkinje cells. Nature Neurosciences. 13 (10), 1171-1180 (2010).
- Watson, L. M., Wong, M. M. K., Vowles, J., Cowley, S. A., Becker, E. B. E. A Simplified Method for Generating Purkinje Cells from Human-Induced Pluripotent Stem Cells. The Cerebellum. 17 (4), 419-427 (2018).
- Wang, S., et al. Differentiation of human induced pluripotent stem cells to mature functional Purkinje neurons. Science Reports. 5, 9232(2015).
- Tao, O., et al. Efficient generation of mature cerebellar Purkinje cells from mouse embryonic stem cells. Journal of Neuroscience Research. 88 (2), 234-247 (2010).
- Croughan, M. S., Giroux, D., Fang, D., Lee, B. Novel Single-Use Bioreactors for Scale-Up of Anchorage-Dependent Cell Manufacturing for Cell Therapies. Stem Cell Manufacturing. , 105-139 (2016).
- Simunovic, M., Brivanlou, A. H. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis. Development. 144 (6), 976-985 (2017).
- Lou, Y. R., Leung, A. W. Next generation organoids for biomedical research and applications. Biotechnology Advances. 36 (1), 132-149 (2018).
- Silva, T. P., et al. Design Principles for Pluripotent Stem Cell-Derived Organoid Engineering. Stem Cells International. 2019, 1-17 (2019).
- Silva, T. P., et al. Maturation of human pluripotent stem cell-derived cerebellar neurons in the absence of co-culture. Frontiers of Bioengineering and Biotechnology. , (2020).
- Burridge, P. W., et al. A universal system for highly efficient cardiac differentiation of human induced pluripotent stem cells that eliminates interline variability. PLoS One. 6 (4), 18293(2011).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nature Biotechnology. 25 (6), 681-686 (2007).
- Smith, J. R., et al. Inhibition of Activin/Nodal signaling promotes specification of human embryonic stem cells into neuroectoderm. Developmental Biology. 313 (1), 107-117 (2008).
- Yaguchi, Y., et al. Fibroblast growth factor (FGF) gene expression in the developing cerebellum suggests multiple roles for FGF signaling during cerebellar morphogenesis and development. Developmental Dynamics. 238 (8), 2058-2072 (2008).
- Fischer, T., et al. Fgf15-mediated control of neurogenic and proneural gene expression regulates dorsal midbrain neurogenesis. Developmental Biology. 350 (2), 496-510 (2011).
- Bagri, A., et al. The chemokine SDF1 regulates migration of dentate granule cells. Development. 129 (18), 4249-4260 (2002).
- Bardy, C., et al. Neuronal medium that supports basic synaptic functions and activity of human neurons in vitro. Proceedings of the National Academy of Sciences. 112 (20), 2725-2734 (2015).
- Bauwens, C. L., et al. Control of Human Embryonic Stem Cell Colony and Aggregate Size Heterogeneity Influences Differentiation Trajectories. Stem Cells. 26 (9), 2300-2310 (2008).
- Bratt-Leal, A. M., Carpenedo, R. L., McDevitt, T. C. Engineering the embryoid body microenvironment to direct embryonic stem cell differentiation. Biotechnology Progress. 25 (1), 43-51 (2009).
- Miranda, C. C., et al. Spatial and temporal control of cell aggregation efficiently directs human pluripotent stem cells towards neural commitment. Biotechnology Journal. 10 (10), 1612-1624 (2015).
- Miranda, C. C., Fernandes, T. G., Diogo, M. M., Cabral, J. M. S. Scaling up a chemically-defined aggregate-based suspension culture system for neural commitment of human pluripotent stem cells. Biotechnology Journal. 11 (12), 1628-1638 (2016).
- Bardy, J., et al. Microcarrier Suspension Cultures for High-Density Expansion and Differentiation of Human Pluripotent Stem Cells to Neural Progenitor Cells. Tissue Engineering Part C Methods. 19 (2), 166-180 (2013).
- Rigamonti, A., et al. Large-Scale Production of Mature Neurons from Human Pluripotent Stem Cells in a Three-Dimensional Suspension Culture System. Stem Cell Reports. 6 (6), 993-1008 (2016).
- Arora, N., et al. A process engineering approach to increase organoid yield. Development. 144 (6), 1128-1136 (2017).
- Gimeno, L., Martinez, S. Expression of chick Fgf19 and mouse Fgf15 orthologs is regulated in the developing brain by Fgf8 and Shh. Developmental Dynamics. 236 (8), 2285-2297 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
