本方案介绍了一种具有伴随性纤维化间质区室的三维仿生模型。该模型采用生理相关浓度的水凝胶按比例制备,模拟间质细胞外基质的生物物理特性,而细胞外基质是细胞相互作用、肿瘤生长及转移的活性调节介质。
本文内容
摘要
摘要
肝细胞癌(HCC)是一种在慢性肝病基础上发生的原发性肝肿瘤。慢性肝病和炎症会形成纤维化微环境,积极促进并驱动肝癌的发生。因此,从肿瘤间质微环境与肿瘤细胞相互作用的角度理解肝癌发生机制具有重要意义。三维(3D)细胞培养模型被认为是当前体外二维(2D)细胞培养模型与体内动物模型之间所缺失的桥梁。我们的目标是构建一种新型的3D仿生HCC模型,该模型包含相应的纤维化间质区室和血管结构。我们采用了具有生理相关性的水凝胶(如胶原蛋白和纤维蛋白原),以模拟肿瘤细胞外基质(ECM)的生物物理特性。在该模型中,将嵌入水凝胶基质中的LX2细胞和HepG2细胞接种于倒置的跨膜小室上,随后将HUVEC细胞接种在膜的另一侧。共制备了三种含有细胞的ECM-水凝胶配方,并通过流变学测定其生物物理特性。细胞活力通过细胞活力检测在21天内进行评估。在2D共培养体系和本研究的3D模型中,分别评估了化疗药物多柔比星(doxorubicin)作用72小时的效果。流变学结果显示,该系统可成功模拟纤维化、肝硬化及HCC肝脏的生物物理特性。总体结果表明,与传统的2D培养相比,该3D模型更能真实反映 体内 实际情况。 我们的3D肿瘤模型对化疗药物的反应降低,模拟了HCC患者中常见的药物耐药性现象。
引言
肝细胞癌(HCC)占所有原发性肝癌的90%1,2。目前全球每年报告约81万例死亡和85.4万例新发病例,是全球第五大常见癌症,且死亡率极高1。HCC的发生主要归因于与慢性肝病相关的炎症,包括病毒性肝炎、长期过量饮酒、代谢综合征、肥胖和糖尿病1,3,4。 这些病理状态所伴随的炎症会导致肝细胞损伤,并分泌多种细胞因子,从而激活并募集肝星状细胞和炎症细胞,启动纤维化过程5。肝星状细胞在肝纤维化的起始、进展和逆转过程中发挥关键作用。激活后,它们会分化为具有收缩性、促炎性和促纤维化特性的肌成纤维细胞样细胞6,7,8。由此产生的纤维化反过来导致细胞外基质重塑相关酶活性失调,形成整体硬度增加的微环境,并伴随生长因子的分泌,进一步促进HCC的发生发展9,10。正是肝细胞与间质微环境之间持续的致病性反馈循环,推动了癌症的起始、上皮-间质转化(EMT)、血管生成、转移潜能以及药物反应的改变11,12,13。 因此,从机制层面和治疗角度而言,深入理解肿瘤与肿瘤微环境相互作用在肝癌发生中的作用具有重要意义。
目前,80%的癌症细胞生物学家主要使用二维(2D)体外细胞培养模型14。然而,这些模型并不能真实反映肿瘤微环境,从而影响了对化疗反应的评估14,15,16。目前有96%的化疗药物在临床试验中失败14。 如此高的药物淘汰率可归因于现有的体外预筛模型未能充分反映当前对肝细胞癌(HCC)复杂性及其微环境的理解16。相反,体内动物模型存在免疫系统受损的问题,且肿瘤与微环境之间的相互作用与人类存在差异16,17。平均而言,仅有8%来自动物研究的结果能够可靠地从临床前阶段转化至临床应用16,17。因此,显然有必要开发一种能够有效模拟肝细胞癌及其微环境复杂性的体外平台。这类平台将补充当前可用的体外临床前筛选模型,并减少未来对动物实验的依赖7,14。
其中一种平台是先进的三维(3D)细胞培养模型。在过去十年中,已涌现出大量用于研究肝细胞癌(HCC)的先进3D模型,并发表了多篇综述文章。目前可用于研究HCC的3D模型包括多细胞球体、类器官、基于支架的模型、水凝胶、微流控系统以及生物打印技术。在这些模型中,多细胞球体是肿瘤发育研究中最为人熟知的模型之一。多细胞球体是一种成本低廉、技术难度较低的模型,同时能够有效模拟体内肿瘤的结构特征18,19,20。多细胞球体已为HCC的研究提供了大量信息17,21,22。然而,目前尚缺乏标准化的培养时间,因为多细胞球体的培养周期通常在7至48天之间。培养时间的延长具有重要意义。Eilenberger发现,球体的培养年龄差异会显著影响索拉非尼(一种用于治疗肝癌的激酶抑制剂)的扩散性和毒性23。而Wrzesinski和Fey发现,3D肝细胞球体在胰蛋白酶消化后需要18天才能重新建立关键的肝脏生理功能,并在此恢复后可持续维持稳定的功能达24天之久24,25。
一些更先进的3D肝细胞癌(HCC)模型包括使用人源脱细胞肝脏支架和生物打印支架。Mazza及其同事利用不适合移植的人类脱细胞肝脏构建了一种用于HCC建模的天然3D支架26。这些天然支架能够成功地与肝星状细胞和肝母细胞瘤细胞共培养体系再接种长达21天,并维持I型、III型、IV型胶原蛋白和纤连蛋白等关键细胞外基质成分的表达。除了疾病建模外,该模型还具有功能性器官移植以及临床前药物和毒性筛选的优势26。随着3D生物打印技术的进步,现在也可通过生物打印制备3D细胞外基质支架。 Ma及其同事利用脱细胞细胞外基质工程化水凝胶,打印出具有可变力学性能和仿生微结构的细胞外基质支架27。毫无疑问,这些均为优秀的3D HCC模型。然而,人源肝脏获取困难,以及所需设备和材料成本高昂,限制了这些模型的广泛应用。此外,这些方法在技术上均较为复杂,需要研究人员接受 extensive 培训,而此类培训并非所有研究者都能 readily 获得。
基于肝细胞癌(HCC)的复杂性以及目前可用的三维模型,我们致力于开发一种全面的三维HCC模型。该模型旨在通过引入可调节的水凝胶刚度值,重现癌前病变及肿瘤微环境。 此外,我们还纳入了在HCC发病机制中起关键作用的肝细胞和间质相关细胞系,包括内皮细胞、肝星状细胞和恶性肝细胞,并将其培养于具有生理相关性的水凝胶微环境中。所选用的水凝胶——I型胶原蛋白和纤维蛋白原——其比例模拟了HCC发生和发展过程中肝脏硬度所经历的生物物理变化。 同时,我们希望该模型能够实现长期培养。我们设想的是一种模块化、成本效益高的模型,仅需基础设备、少量培训和经验以及易于获取的材料即可建立。
方案
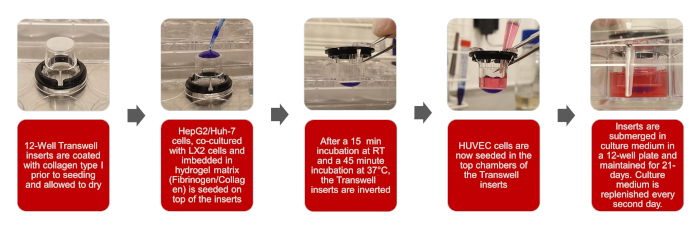
图1:三维仿生肝细胞癌模型构建的示意图 请点击此处查看该图的放大版本。
注意:本方案的整体工作流程见图1中的示意图
1. 纤维蛋白原储备液的制备
- 通过称取 2.21 g CaCl2 并将其加入 20 mL 去离子水(dH2O)中,配制 1 M 氯化钙(CaCl2)储备液。储备液可在室温(RT)下保存。
- 通过称取 5 mg 抑肽酶并将其加入 20 mL dH2O 中,配制 20 mL 抑肽酶储备液(1218.75 KIU/mL)。将储备液分装为每份 1 mL,于 -20 °C 保存。
- 配制 10 mL 浓度为 80 mg/mL 的纤维蛋白原储备液。
- 在 50 mL 离心管中加入 7.849 mL 磷酸盐缓冲液(PBS)、2.051 mL 抑肽酶储备液(1218.75 KIU/mL),使最终抑肽酶浓度为 250 KIU/mL,再加入 100 µL CaCl2(1 M),使最终 CaCl2 浓度为 10 mM。
- 称取 800 mg 纤维蛋白原。
- 称取 200 mg 氯化钠(NaCl),使储备液中 NaCl 含量为 2% w/v。
- 将纤维蛋白原和 NaCl 分批加入含有 PBS、抑肽酶和 CaCl2 的 50 mL 离心管中。切勿搅拌或剧烈振荡,以免导致纤维蛋白原发生凝胶化并形成团块。
- 将装有纤维蛋白原储备液的 50 mL 离心管水平放置于摇床上,以 300 rpm 的低速振荡。
- 待溶液完全溶解后,根据体积选择使用 0.22 µm 注射器滤器或瓶顶滤器进行过滤。重要提示:切勿对纤维蛋白原溶液进行高压灭菌,否则会破坏纤维蛋白原。
注意:该步骤根据储备液体积不同,可能需要 2 至 5 小时,实验设计时应将此时间纳入考虑范围。
2. 在将水凝胶接种到插件上之前,用胶原蛋白包被插件
- 在超净工作台或细胞培养操作台中,使用无菌镊子将小室从培养板中取出,并倒置放置于培养板盖上。
- 配制100 mL 20 mM冰醋酸储备液,通过加入 115 µL 将冰醋酸加入25 mL dH₂O中2O,并用dH₂O定容至100 mL2O. 使用一个滤器过滤溶液 0.22 µm 注射器滤器。储备液可在室温下保存。
- 制备2 mL的 100 µg/mL 通过向5 mg/mL的胶原溶液中添加,制备胶原溶液 40 µL 将5 mg/mL的胶原蛋白溶液加入至1.960 mL在2.2步骤中制备的20 mM冰醋酸储备液中。
- 用以下物质包被插入物 100 µg/mL 2.3 节中通过移液制备的胶原溶液 100 µL 将溶液加入每个插入式培养小室中,置于超净台或组织培养台内晾干2至3小时。
- 插入物干燥后,用 PBS 洗涤每个插入物 3 次。在 12 孔板的每个孔中加入 1 mL PBS,将胶原涂层面向下的插入物放入孔中,移除孔中的 PBS,重复该步骤。将插入物置于超净台中晾干 1 至 2 小时。
注意:乙酸对细胞有毒性,插入物必须用 PBS 充分洗涤。 - 在插入物上方添加一个定制的3D打印垫片,当凝胶悬挂在插入物上时,此垫片可防止凝胶接触孔板底部。图2).
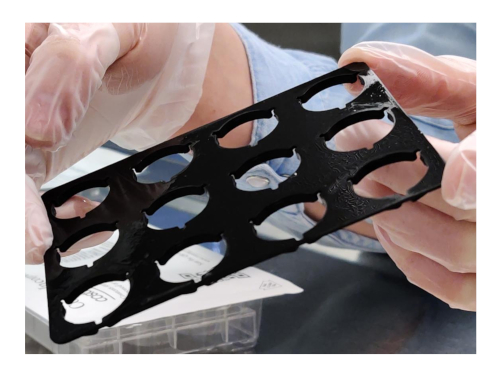
图 2:定制的 3D 打印间隔器 请点击此处查看此图的放大版本。
- 用培养板的底部覆盖倒置的插入物,并将其放入培养箱中,直至细胞嵌入水凝胶中并准备接种。
3. 将包埋在水凝胶中的细胞接种到插入式培养小室上
注意:表1 描述了三种不同纤维蛋白原浓度的配方,这些配方将被制备。配方一对应肝脏在纤维化初期的状态,配方二对应肝硬化,配方三对应肝细胞癌(HCC);每种配方的刚度值均在方案优化过程中通过流变学测定确定。
| 配方 | 最终纤维蛋白原浓度(mg/mL) | 最终胶原蛋白浓度(mg/mL) | 细胞(LX2 + HepG2 共培养 1:1) | 肝脏的分期 | 文献中的肝脏硬度值(kPa) | 流变学测得的模型刚度值(kPa) | 配方 | 需添加的纤维蛋白原(mL) | 需添加的胶原蛋白(mL) | 10 % DMEM (mL) | 凝血酶(µL) | 参考文献s |
| 1 | 10 | 2 | 2 x 10⁶ cells/mL | 纤维化 | ≥2 | 3 | 1 | 1 | 0.8 | 0.2 | 4 | 28; 29; 30 |
| 2 | 30 | 2 | 2 x 10⁶ cells/mL | 肝硬化 | 6 | 2 | 0.75 | 0.8 | 0.45 | 3 | ||
| 3 | 40 | 2 | 2 x 10⁶ cells/mL | 肝细胞癌 | ≥10 | 10 | 3 | 0.25 | 0.8 | 0.95 | 1 | 28; 31; 32 |
表1:将包埋在水凝胶中的细胞接种到插入物上的配方说明
- 通过将 3.99 g NaOH 加入 100 mL dH2O 中配制 1 M 氢氧化钠储备液。然后可使用 0.22 µm 注射器滤器过滤溶液。将储备液在室温下保存。
- 将 5 mg/mL 胶原蛋白和 10 mL 1 M NaOH 置于冰上。
- 将 50 mL PBS、15 mL 胰蛋白酶、70 mL 10% DMEM 以及第 1 节中配制的纤维蛋白原储备液在水浴中预热至 37 °C,持续 20 分钟。
- 制备细胞悬液。
- 用 10 mL PBS 将 T175 培养瓶中的肝星状细胞(LX2)和肝癌细胞(HepG2)各洗涤两次。
- 加入 6 mL 胰蛋白酶,在 37 °C 下消化 4 分钟。
- 加入 6 mL 10% DMEM 终止胰蛋白酶反应。
- 将细胞悬液收集至 15 mL 离心管中,在 300 × g 条件下离心 3 分钟。
- 离心后,吸除上清液,并将每种细胞系重悬于 5 mL 10% DMEM 中。
- 使用自动细胞计数仪进行细胞计数:取 10 µL 每种细胞悬液加入计数板载片,然后将载片插入细胞计数仪。细胞浓度以细胞/mL 显示。
- 根据步骤 3.4.6 的细胞计数结果,将每种细胞系的细胞稀释至 1 × 10⁶ 个细胞/mL,并分装至明确标记的 15 mL 离心管中。在 300 × g 条件下离心 3 分钟。
- 离心后,吸除上清液,并根据 表 1 中提供的数值向每个 15 mL 离心管中加入相应体积的 10% DMEM(表中数值适用于每种配方 2 mL)。
- 用 10 µL/mL 的 NaOH(1 M)中和胶原蛋白量,然后将中和后的胶原蛋白加入细胞悬液中;此时存在的 10% DMEM 会变为黄色,当使用剪口枪头充分吹打混匀后,悬液将变为亮粉色。
- 根据 表 1 向胶原-细胞悬液中加入纤维蛋白原,使用剪口枪头充分混匀。
- 最后向胶原-纤维蛋白原-细胞悬液中加入凝血酶,每 10 mg 纤维蛋白原加入 0.1 KIU 凝血酶。
- 从培养箱中取出第 2 节中预先包被的倒置小室,使用剪口的 200 µL 枪头,将 200 µL 配制好的悬液加至指定的小室上。在超净工作台中静置 15 分钟,使凝胶交联。
- 15 分钟后,轻轻将培养板的底部部分盖在凝胶上,并转移至培养箱中,在 37 °C 下继续交联 45 分钟。
- 凝胶完成交联后,再次将小室倒置,并向每孔底部加入 2 mL 10% DMEM。
4. 接种内皮细胞
- 将25 mL Hanks平衡盐溶液(HBSS)、10 mL 胰蛋白酶、10 mL 胰蛋白酶抑制剂和50 mL 内皮细胞生长培养基置于水浴中,37°C 预热20分钟。
- 制备内皮细胞(HUVEC)悬液。
- 用10 mL HBSS清洗T175培养瓶中的HUVEC细胞两次。
- 加入6 mL胰蛋白酶,在37°C消化4分钟,随后加入6 mL胰蛋白酶抑制剂终止消化。将细胞悬液收集至15 mL离心管中,200 × g 离心3分钟。
- 离心后吸除上清液,用5 mL内皮细胞生长培养基重悬细胞沉淀。
- 使用自动细胞计数仪,按照3.4.6节所述方法进行细胞计数。
- 根据细胞计数结果,用内皮细胞生长培养基调整细胞浓度至1.0 × 10⁴ 个细胞/mL。
- 向插入式培养小室上层的每个孔中加入500 µL HUVEC细胞悬液,使每个小室的最终细胞数量为5.0 × 10³ 个细胞。
5. 维护
- 每隔一天更换一次培养基,从孔板和插入式培养小室中吸除用过的培养基。向含有凝胶的孔板中加入 2 mL 10% DMEM,向含有 HUVEC 细胞的插入式培养小室中加入 0.5 mL 内皮细胞生长培养基。
- 实验前维持模型培养 21 天。
6. 流变学
- 使用流变仪测量凝胶配方的储能模量以表征其刚度值:采用直径为8 mm的平行板不锈钢夹具,在0.1 N的恒定轴向力下,于37°C条件下进行频率扫描(0.1–20 Hz),应变为0.267%。
7. 存活率与药物反应
- 测定二维共培养体系和三维模型中的药物反应性及细胞活力。
- 将 HepG2(5.0 × 10³ 个细胞/mL)和 LX2(5.0 × 10³ 个细胞/mL)细胞以 1:1 的比例接种于黑色透明底 96 孔板中,接种密度为 1.0 × 10⁴ 个细胞/mL,用于构建二维共培养体系。静置过夜,使细胞贴壁。
- 构建模拟肝硬化环境的三维模型,其刚度值为 6 kPa。在给予阿霉素处理前,维持该模型培养 21 天。
- 在阿霉素处理前 2 小时,吸除二维共培养体系和三维模型中的培养基。用 PBS 洗涤两种模型各两次。向二维共培养体系中加入饥饿培养基(含 1% v/v 抗真菌抗生素溶液的 DMEM),每孔 200 µL;向三维模型中加入饥饿培养基(水凝胶所在孔中每孔 2 mL,插入物中每孔 500 µL)。
- 向二维和三维模型中施加阿霉素。给药剂量如下:0.5、1 和 1.5 mM,分别对应 IC25、IC50 和 IC75 值。两种模型均处理 72 小时。
注:阿霉素是一种拓扑异构酶 II 抑制剂,是最早用于肝细胞癌(HCC)治疗的化疗药物之一,也是目前治疗 HCC 最具活性的化疗药物之一33,34。 - 处理 72 小时后,吸除二维和三维模型中的培养基。用 PBS 洗涤两种模型各两次,确保彻底去除残留培养基。
- 按照制造商说明配制 AlamarBlue 溶液,并加入二维和三维模型的各孔中。二维培养每孔加入 150 µL;三维培养每孔(含水凝胶)加入 2 mL,每个插入物加入 500 µL。于 37°C 培养过夜。
- 孵育结束后,将三维模型各孔中的 AlamarBlue 溶液各取 150 µL 转移至黑色透明底 96 孔板中。二维模型的 AlamarBlue 溶液可直接在原板中读取。
- 使用酶标仪检测荧光信号,激发波长为 485 nm,发射波长为 550 nm。
- 使用以下公式计算两种模型中的细胞活力百分比:
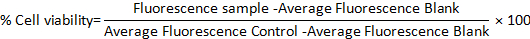
结果
浓度范围与接种体积
根据图3所示的示意图,通过方案优化获得了最终的功能性实验方案。通过文献检索确定了两种具有生理相关性的水凝胶:I型胶原蛋白和纤维蛋白原35,36。首先使用大鼠尾部来源的I型胶原蛋白,在倒置的插入式培养小室上接种一系列不同浓度(4、3、2 和 1 mg/mL),以评估其在再次翻转后能否成功附着于插入小室。该浓度范围内的所有组分均能形成凝胶,但胶原蛋白凝胶呈现扁平状,并因操作和移液过程而包裹了大小不一的气泡,见图4和图5。为了确定可改善胶原凝胶质量的最佳接种体积,进一步在倒置的插入小室上接种不同体积(100、150 和 200 µL)的胶原溶液,见图5。结果表明,接种体积对凝胶外观或内部气泡的形成无显著影响。因此,最终确定200 µL为最佳接种体积,可形成最饱满的凝胶。同时评估了纤维蛋白原形成凝胶的能力,以及该凝胶能否在插入小室上长期稳定附着。配制一系列纤维蛋白原浓度(70、50、40、30、20、10、5、1 mg/mL),均以200 µL体积接种至12孔板的盖子上,见图6。接种后20分钟内,所有浓度均成功形成凝胶。然而,5 mg/mL和1 mg/mL浓度组因所形成的凝胶呈液体样质地,且在37 °C过夜培养后开始从盖子上脱落,故被排除。
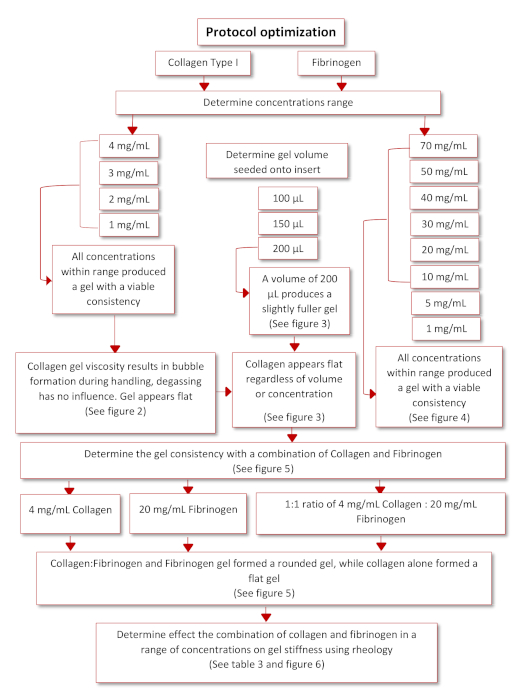
图 3:实验方案优化的示意图。 请点击此处查看该图的放大版本。
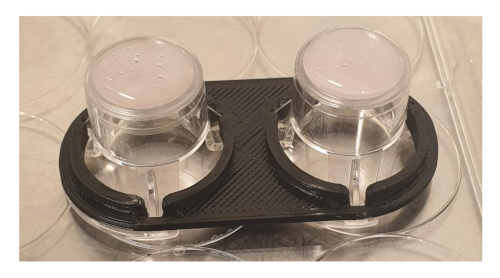
图4:接种于插入式培养小室上的含1.0 × 10⁵ 个细胞/mL的4 mg/mL胶原凝胶,显示凝胶中存在气泡。左侧插入式培养小室在冰上脱气15分钟,而右侧未进行脱气处理。脱气处理对凝胶中存在的气泡无明显影响。请点击此处查看该图的放大版本。
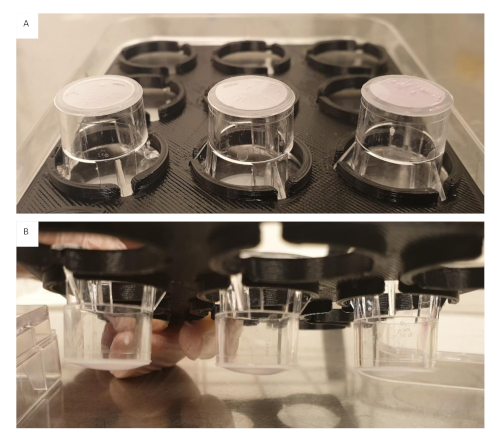
图5:在插入物上接种不同体积的含1.0 × 10⁵ 个细胞/mL的4 mg/mL胶原凝胶。(A)接种后立即观察,左侧插入物为100 µL,中间为150 µL,右侧为200 µL。凝胶中仍存在气泡。(B)交联60分钟后,左侧插入物为200 µL,中间为150 µL,右侧为100 µL。无论体积如何,所有凝胶仍保持平坦。 请点击此处查看该图的放大版本。
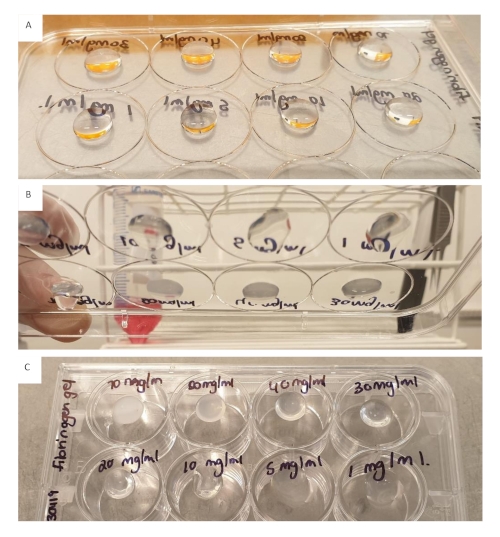
图6:纤维蛋白原(200 µL) 浓度范围为 70 至 1 mg/mL,接种于 12 孔板的盖子上。 (A接种后立即进行凝胶实验。B接种后 20 分钟凝胶。C凝胶放置过夜。所有凝胶均呈现良好的圆润形态,但5 mg/mL和1 mg/mL的凝胶被排除,因其在接种后20分钟呈现较明显的流体状态,且放置过夜后已开始从盖子上脱落。 请点击此处以查看此图的放大版本。
胶原蛋白与纤维蛋白原的联合使用
根据胶原蛋白和纤维蛋白原浓度范围的实验结果,进一步评估了联合使用胶原蛋白和纤维蛋白原的效果。设置了三个插入物,分别为:4 mg/mL 胶原蛋白、20 mg/mL 纤维蛋白原,以及胶原蛋白(4 mg/mL)与纤维蛋白原(20 mg/mL)按1:1比例混合的组合,见图7。细胞接种后立即观察发现,仅含胶原蛋白的插入物仍呈现平坦外观,并伴有凝胶内部气泡的产生;而含有纤维蛋白原的插入物形成了完整且圆润的凝胶,胶原蛋白与纤维蛋白原组合的插入物也表现出相似的形态。在37 °C条件下交联60分钟后,所有凝胶均牢固附着于插入物上,并在37 °C过夜培养后仍保持附着状态。
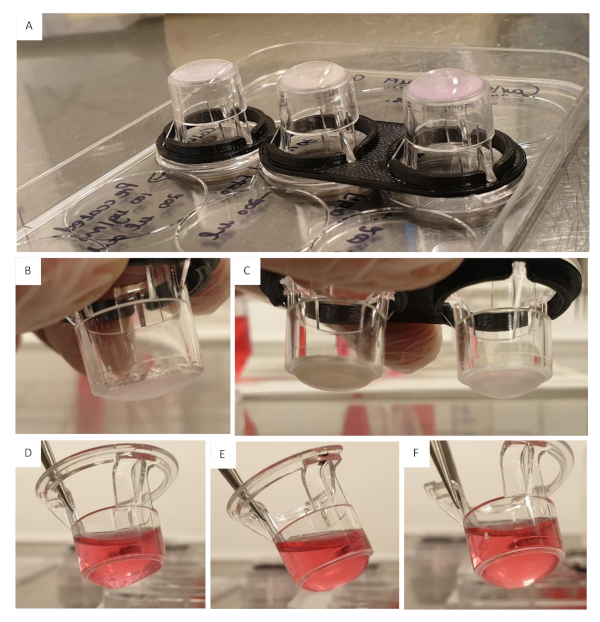
图7:胶原蛋白与纤维蛋白原联合作用的效果。(A)左侧插件上接种4 mg/mL胶原蛋白,中间插件上接种20 mg/mL纤维蛋白原,右侧插件上接种4 mg/mL胶原蛋白与20 mg/mL纤维蛋白原(1:1比例)的混合物。所有凝胶接种体积均为200 µL,含1.0 x 10⁵ 个细胞/mL,所有凝胶均在37 °C下交联60分钟。(B)胶原蛋白4 mg/mL凝胶在交联60分钟后,凝胶表面平坦并含有气泡。(C)左侧插件为20 mg/mL纤维蛋白原凝胶,呈圆形,无气泡;右侧插件为4 mg/mL胶原蛋白与20 mg/mL纤维蛋白原的混合凝胶,形态良好且呈圆形,无气泡。(D)胶原蛋白4 mg/mL凝胶在37 °C下过夜孵育后,仍含有大量气泡,并出现一定程度的溶胀。(E)20 mg/mL纤维蛋白原凝胶在37 °C下过夜孵育。(F)4 mg/mL胶原蛋白与20 mg/mL纤维蛋白原混合凝胶在37 °C下过夜孵育。请点击此处查看该图的放大版本。
确定细胞接种密度
根据以往使用水凝胶的经验,设计了一项实验以确定最佳的细胞接种密度(数据未显示)37。将细胞包埋于胶原蛋白和纤维蛋白原的混合物中,接种浓度范围如下:(7.5 × 10⁵、8.5 × 10⁵、9.5 × 10⁵、1.0 × 10⁶、1.5 × 10⁶ 和 2.0 × 10⁶ 个细胞/mL),结果发现 2.0 × 10⁶ 个细胞/mL 为最佳接种密度。
流变学
通过流变学方法评估了十种不同配比的纤维蛋白原与胶原蛋白水凝胶组合,见表2。目的是确定其中哪些配方能够模拟肝细胞癌(HCC)发展过程中所观察到的肝脏硬度。文献中已报道大鼠、小鼠和人类在纤维化、肝硬化及肝细胞癌阶段的肝脏硬度值,本研究的目标是使所制备水凝胶的硬度尽可能接近这些数值28,29,30,31,32。根据表2列出的十种配方各制备三份重复样品,并使用流变仪测定其储能模量,结果如图8所示。
| 配方 | 纤维蛋白原 (mg/ml) | 胶原蛋白 (mg/ml) |
| 1 | 60 | 2 |
| 2 | 50 | 2 |
| 3 | 40 | 2 |
| 4 | 30 | 2 |
| 5 | 20 | 2 |
| 6 | 10 | 2 |
| 7 | 20 | 5 |
| 8 | 20 | 4 |
| 9 | 20 | 3 |
| 10 | 20 | 1 |
表2:通过流变学评估不同浓度的胶原蛋白和纤维蛋白原组合以确定其刚度值
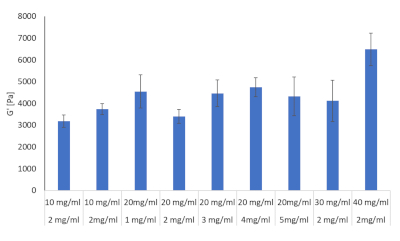
图8:通过流变学评估不同浓度胶原蛋白与纤维蛋白原组合的水凝胶刚度值。储能模量和损耗模量在37 °C和1 Hz条件下使用Discovery HR-2混合流变仪测定(n = 3,误差条 = 标准差)。请点击此处查看该图的放大版本。
从这十种配方中选择了三种进行后续实验。其中包括对应于纤维化初期肝脏硬度值的2 mg/mL I型胶原和10 mg/mL纤维蛋白原,对应于肝硬化的2 mg/mL I型胶原和30 mg/mL纤维蛋白原,以及对应于肝细胞癌(HCC)的2 mg/mL I型胶原和40 mg/mL纤维蛋白原,见图9。
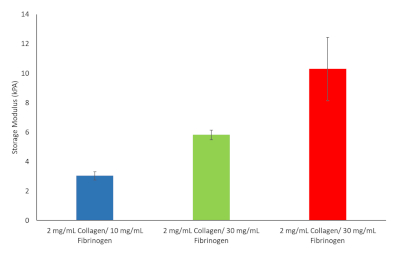
图 9:选定用于后续实验的不同纤维蛋白原/胶原蛋白水凝胶配方的水凝胶刚度值。 储存模量和损耗模量在 37 °C 和 1 Hz 条件下测定(n = 3,误差条 = 标准差)。请点击此处查看该图的放大版本。
细胞活力、药物反应及转移潜能
AlamarBlue 检测结果显示,在二维共培养体系中,细胞活力总体下降,低于根据已知报道的 IC25、50 和 75 值预期的水平,与未处理对照组相比差异明显,见图10。这可能是由于本实验共培养体系中的 LX2 细胞对阿霉素处理更为敏感所致。然而,在三维模型中,我们观察到阿霉素耐药性增加,证实了在三维模型系统中常观察到的化疗效果降低现象。与对照组相比的统计学显著性采用双尾 Student T 检验进行评估,P<0.05 被认为具有显著性差异。
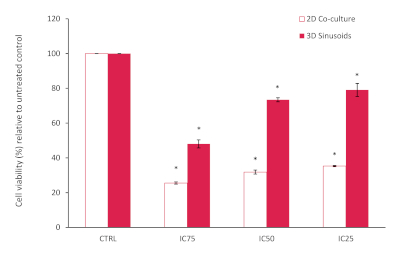
图10:经不同浓度阿霉素处理72小时后,二维共培养模型与三维肝窦模型的细胞活力百分比。结果以未处理对照组为基准进行归一化(n=3,误差条表示标准差)(* = p<0.0001)。请点击此处查看该图的放大版本。
每天使用光学显微镜对凝胶构建体进行肉眼观察,以监测细胞在不同浓度水凝胶中的生长情况。细胞以均匀且致密的方式填充水凝胶,自第7天起,类球体开始在基质中组装。
讨论
本方案描述了一种建立肝细胞癌(HCC)仿生模型的方法。已建立清晰的工作流程,并确定了其中的关键步骤,包括纤维蛋白原储备液的制备、Transwell小室的胶原涂层处理,以及将包埋于水凝胶中的细胞进行接种。在制备纤维蛋白原储备液时,重要的是应以较小增量逐步加入高浓度的纤维蛋白原。这不仅可缩短纤维蛋白原溶解所需时间,还可防止其出现不一致或过早凝胶化,如图11所示。纤维蛋白原凝胶的制备耗时较长,可能影响整体实验的成功率。结果表明,一旦纤维蛋白原凝胶开始出现不均匀凝胶化,最好弃用该凝胶。在接种包埋于水凝胶中的细胞之前,应先用胶原对小室进行涂层处理,再用PBS洗涤,并在超净台内干燥。若未确保小室完全干燥,则会导致水凝胶溢出小室边缘,形成不均匀的凝胶层。凝胶的不均匀性最终将影响涉及扩散因素的实验结果。
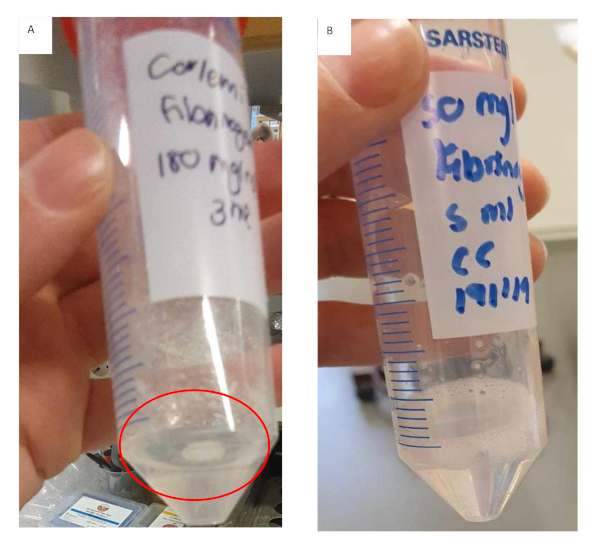
图11:纤维蛋白原凝胶的制备,用于纤维蛋白原/胶原蛋白水凝胶配方。(A)纤维蛋白原凝胶溶液已形成团块,并开始提前凝胶化,未溶解的纤维蛋白原附着在管壁上。(B)纤维蛋白原凝胶溶液已完全溶解,溶液澄清且略微黏稠。请点击此处查看该图的放大版本。
在将水凝胶细胞悬液接种到插入物上时,建议尽可能快速操作,因为加入凝血酶后,纤维蛋白原组分将开始交联。处理较高浓度的凝胶悬液时,应分批准备较小的工作体积,以防止接种过程中凝胶发生交联。后者会影响接种到每个孔中的凝胶分布和用量。添加各组分的顺序至关重要,本方案中提供了一个简化的操作流程,以防止凝胶过早交联。由于水凝胶悬液具有较高黏度,建议在混合和量取过程中使用剪切过的移液器吸头。混合悬液时,应确保快速且均匀,以形成均一的悬液。混合不均将导致凝胶不均一,从而对实验结果产生不利影响,参见图12。
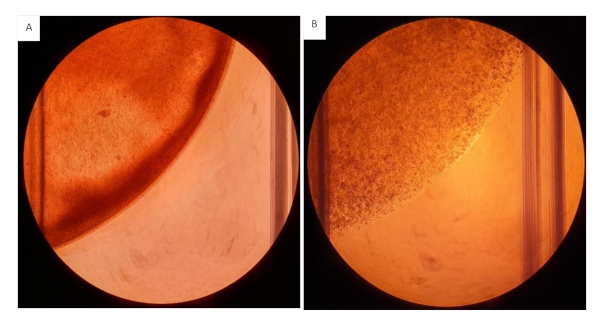
图12:接种于12孔板中的胶原蛋白/纤维蛋白原凝胶。 所有凝胶接种体积均为200 µL,含有2 mg/mL胶原蛋白和20 mg/mL纤维蛋白原,并添加2.0 × 106 个细胞/mL。(A)具有非均一质地的水凝胶,可见水凝胶分布不均。(B)均匀混合的水凝胶。请点击此处查看该图的放大版本。
在完成方案优化后,对模型进行了评估以确定其生物物理特性。流变学数据显示,由生理相关的细胞外基质成分(即 I 型胶原和纤维蛋白原)构成的模型能够模拟纤维化、肝硬化及肝细胞癌(HCC)肝脏的生物物理特性28,29,30,31,32。在 HCC 的三维模型中重现肝脏硬度具有重要意义,但在模型构建过程中常被忽视。肝脏硬度的增加与 HCC 中的化疗耐药性、细胞增殖、迁移以及休眠密切相关38。HCC 中肝星状细胞的活化与细胞外基质刚性的升高有关,且多种与肝星状细胞相关的信号通路表现出力学敏感性39。
在肝细胞癌(HCC)的3D模型构建中,包含肝星状细胞和内皮细胞等基质相关细胞正变得日益重要。研究表明,由肝星状细胞和HCC细胞组成的多细胞球体相较于PXT小鼠模型和人HCC组织样本,能够更好地模拟体内HCC肿瘤的形态,并表现出更强的化疗耐药性和侵袭性迁移能力17。Jung等人于2017年的一项类似研究发现,由肝细胞癌细胞(Huh-7)和内皮细胞(HUVEC)构成的多细胞球体可促进血管化并增强肿瘤侵袭性22。这些球体在阿霉素和索拉非尼处理下表现出显著更高的存活率,相较于Huh-7单细胞培养球体具有更强的耐药性22。本模型在模拟HCC组织刚度并引入基质相关细胞(LX2和HUVEC)的条件下,评估其在阿霉素处理下的存活率和药物反应,结果显示相较于2D共培养模型,其对化疗药物的反应性降低,有效模拟了临床上患者及其他3D HCC模型中常见的药物耐受现象。
由于这是一个模块化系统,可以通过添加其他细胞外基质成分(如层粘连蛋白和透明质酸)来增强该模型。或者,该模型中目前使用的水凝胶可被替换为合成水凝胶,例如海藻酸钠或壳聚糖。对该模型的进一步改进包括将细胞系替换为原代细胞培养物,以构建更具生理相关性的模型,或使用其他肿瘤细胞与间质细胞系的组合。
因此,我们已成功开发出一种具有可调生物物理特性的三维模型,用于研究肝细胞癌(HCC)中的肿瘤-间质相互作用。我们发现,与传统的二维培养相比,该模型在对阿霉素的反应中更能真实反映体内情况。然而,仍有许多工作有待开展,我们希望对该模型进行更全面的表征,并探索其作为潜在转移研究平台的可能性,以回答当前肝细胞癌研究中尚未解决的更复杂且紧迫的问题。
披露
作者无任何利益冲突需要披露。
致谢
本研究由瑞典癌症基金会(Cancerfonden,项目编号:CAN2017/518)、瑞典医学研究学会(SSMF,项目编号:S17-0092)、O.E. och Edla Johanssons 基金会以及 Olga Jönssons 基金会资助。 这些资助方未参与本研究的设计;数据的收集、分析与解释;报告的撰写;以及决定提交本文发表。本实验方案中所使用的定制间隔件的 3D 打印工作由乌普萨拉大学医学与药学学科领域的 3D 打印设施 U-PRINT 完成,联系方式:U-PRINT@mcb.uu.se。我们谨向 Paul O´Callaghan 对本项目提供的宝贵建议表示感谢。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| AlamarBlue(刃天青钠盐) | Sigma | 211-500 | 根据制造商推荐方法配制 |
| 抗生素-抗真菌溶液(100×),稳定型 | Sigma | A5955-100ML | |
| 抑蛋白酶肽蛋白酶抑制剂 | Thermo Fisher Scientific | 78432 | |
| 氯化钙(CaCl₂) | Sigma | C1016-2.5KG | 无水,颗粒状,≤7.0 mm,≥93.0% |
| CO₂培养箱 | Kebo Biomed Sweden | ||
| Corning黑色透明平底96孔板 | Sigma | CLS3904-100EA | |
| Corning HTS Transwell-24孔可渗透支持板 | Sigma | CLS3396-2EA | HTS Transwell-24单元,带0.4 μm孔径聚碳酸酯膜和6.5 mm插入件,组织培养处理,无菌,2/箱 |
| Discovery Hybrid Rheometer 2流变仪 | TA instruments, Sollentuna, Sweden | ||
| DMEM高糖培养基,含GlutaMAX添加剂(用于LX2和HepG2细胞) | Thermo Fisher Scientific | 61965059 | 添加10% v/v胎牛血清和1% v/v抗生素-抗真菌溶液 |
| 内皮细胞生长培养基(500 ml)(用于HUVEC) | Cell Applications, Inc | 211-500 | |
| 胎牛血清,经鉴定,One Shot规格,新西兰来源 | Thermo Fisher Scientific | A3160902 | |
| 牛血浆来源I-S型纤维蛋白原 | Sigma | F8630-10G | |
| FLUOstar Omega酶标仪 | BMG Labtech | ||
| Hanks平衡盐溶液 | Sigma | H9394-500ML | 改良型,含碳酸氢钠,不含氯化钙和硫酸镁 |
| Labogene scanspeed 416离心机 | Labogene, Sweden | ||
| 层流洁净工作台 | Kebo Biomed Sweden | ||
| Mettler Toledo AG245分析天平 | Mettler Toledo | ||
| Nikon TMS光学显微镜 | Nikon, Japan | ||
| 磷酸盐缓冲液片剂 | Sigma | P4417-100TAB | 根据制造商推荐方法配制 |
| 大鼠尾腱I型胶原蛋白,5 mg/mL | Ibidi | 50201 | |
| 氯化钠(NaCl) | Sigma | S7653-1KG | |
| 氢氧化钠(NaOH) | Merck | B619298 | |
| TC20全自动细胞计数仪 | BioRad | ||
| TC20细胞计数仪专用计数载片 | BioRad | ||
| 牛血浆来源凝血酶 | Sigma | T9549 | 粉末,适用于细胞培养,≥1,500 NIH单位/mg蛋白(E1%/280 = 19.5) |
| 胰蛋白酶(2.5%)10x溶液 | Thermo Fisher Scientific | 用PBS稀释至1x | |
| 大豆(Glycine max)来源胰蛋白酶抑制剂 | Sigma | T6414-100ML | 溶液,经无菌过滤 |
参考文献
- Galle, P. R., et al. EASL Clinical practice guidelines: Management of hepatocellular carcinoma. Journal of Hepatology. 69, 182-236 (2018).
- Marquardt, J. U., Andersen, J. B., Thorgeirsson, S. S. Functional and genetic deconstruction of the cellular origin in liver cancer. Nature Reviews Cancer. 15, 653-667 (2015).
- Balogh, J., et al. Hepatocellular Carcinoma: A review. Journal of Hepatocellular Carcinoma. 3, 41-53 (2016).
- Perumpail, R. B., Womg, R. J., Ahmed, A., Harrison, S. A. Hepatocellular carcinoma in the setting of non-cirrhotic non-alcoholic fatty liver disease and the metabolic syndrome: US experience. Digestive Diseases and Science. 60, 3142-3148 (2016).
- Baglieri, J., Brenner, D. A., Kisseleva, T. The role of fibrosis and liver associated fibroblasts in the pathogenesis of hepatocellular carcinoma. International Journal of Molecular Sciences. 20, 1723(2019).
- Arriazu, E., et al. Extracellular matrix and liver disease. Antioxidants & Redox Signaling. 21 (7), 1078-1097 (2014).
- Malarkey, D. E., Johnson, K., Ryan, L., Boorman, G., Maronpot, R. R. New insight into functional aspects of liver morphology. Toxicologic Pathology. 33, 27-34 (2005).
- Moreira, R. K. Hepatic stellate cells and liver fibrosis. Archive of Pathology and Lab Medicine. 131, 1728-1734 (2007).
- Hernandez-Gea, V., Toffanin, S., Friedman, S. L., Llovet, J. M. Role of the microenvironment in the pathogenesis and treatment of hepatocellular carcinoma. Gastroenteroloy. 144, 512-527 (2013).
- Amicone, L., Marchetti, A. Microenvironment and tumor cells: two targets for new molecular therapies of hepatocellular carcinoma. Translational Gastroenterology and Hepatology. 3, 24(2018).
- Rawal, P., et al. Endothelial cell-derived TGF-B promotes epithelial-mesenchymal transition via CD133 in Hbx-Infected Hepatoma cells. Frontiers in Oncology. 9 (308), 1-9 (2019).
- Yoo, J. E., et al. Progressive enrichment of stemness features and tumour stromal alterations in multistep hepatocarcinogenesis. PLoS One. 12 (3), 0170465(2017).
- Landry, B. D., et al. Tumor-stroma interactions differentially alter drug sensitivity based on the origin of stromal cells. Molecular Systems Biology. 14, 8332(2018).
- Le, B. D., et al. Three-dimensional hepatocellular carcinoma/fibroblast model on a nanofibrous membrane mimics tumor cell phenotypic changes and anticancer drug resistance. Nanomaterials. 8 (64), 1-11 (2018).
- Lv, D., Hu, Z., Lu, L., Lu, H., Xu, X. Three-dimensional cell culture: A powerful tool in tumor research and drug discovery (Review). Oncology Letters. 14, 6999-7010 (2017).
- Hoarau-Véchot, J., Rafii, A., Touboul, C., Pasquier, J. Halfway between 2D and animal models: Are 3D cultures the ideal tool to study cancer-microenvironment interactions. International Journal of Molecular Sciences. 19 (181), 1-24 (2018).
- Khawar, I. A., et al. Three Dimensional Mixed-Cell Spheroids Mimic Stroma-Mediated Chemoresistance and Invasive Migration in hepatocellular carcinoma. Neoplasia. 20, 800-812 (2018).
- Elliott, N. T., Yuan, F. A review of three-dimensional in vitro tissue models for drug discovery and transport studies. Journal of Pharmaceutical Sciences. 100 (1), 59-74 (2010).
- Nath, S., Devi, G. R. Three-dimensional culture systems in cancer research: focus on tumor spheroid model. Pharmacology Therapy. 163, 94-108 (2016).
- Zanoni, M., et al. 3D tumor spheroid models for in vitro therapeutic screening: a systematic approach to enhance the biological relevance of data obtained. Scientific Reports. 6, 19103(2016).
- Bell, C. C., et al. Characterization of primary human hepatocyte spheroids as a model system for drug-induced liver injury, liver function and disease. Scientific Reports. 6, 25187(2016).
- Jung, H. R., et al. Cell spheroids with enhanced aggressiveness to mimic human liver cancer in vitro and in vivo. Scientific Reports. 7, 10499(2017).
- Eilenberger, C., Rothbauer, M., Ehmoser, E. -K., Ertl, P., Küpcü, S. Effect of spheroidal age on sorafenib diffusivity and toxicity in a 3D hepg2 spheroid model. Scientific Reports. 9, 4863(2019).
- Wrzesinski, K., Fey, S. J. After trypsinisation, 3D spheroids of C3A hepatocytes need 18 days to re-establish similar levels of key physiological functions to those seen in the liver. Toxicology Research. 2 (2), 123-135 (2013).
- Wrzesinski, K., et al. Human liver spheroids exhibit stable physiological functionality for at least 24 days after recovering from trypsinisation. Toxicology Research. 2 (3), 163-172 (2013).
- Mazza, G., et al. Decellularized human liver as a natural 3D-scaffold of liver bioengineering and transplantation. Scientific Reports. 5, 13079(2015).
- Ma, X., et al. Rapid 3D bioprinting of decellularized extracellular matrix with regionally varied mechanical properties and biomimetic microarchitecture. Biomaterials. 185, 310-321 (2018).
- Mueller, S., Sandrin, L. Liver stiffness: a novel parameter for the diagnosis of liver disease. Hepatic Medicine: Evidence and Research. 2, 49-67 (2010).
- Wang, M. H., et al. In vivo quantification of liver stiffness in a rat model of hepatic fibrosis with acoustic radiation force. Ultrasound in Medicine & Biology. 35 (10), 1709-1721 (2009).
- Georges, P. C., et al. Increased liver stiffness of the rat liver precedes matrix deposition: implications for fibrosis. American Journal of Physiology - Gastrointestinal and Liver Physiology. 293, 1147-1154 (2007).
- Massironi, S., et al. et al. Liver stiffness and hepatocellular carcinoma: is it really useful. Journal of Hepatology. 58, 293(2013).
- Singh, S., et al. Liver stiffness is associated with risk of decompensation, liver cancer, and death in patients with chronic liver diseases: A systematic review. Clinical Gastroenterology and Hepatology. 11, 1573-1584 (2013).
- Yang, T. S., Wang, C. H., Hsieh, R. K., Chen, J. S., Fung, M. C. Gemcitabine and doxorubicin for the treatment of patients with advanced hepatocellular carcinoma: a phase I-II trail. Annals of Oncology. 13, 1771-1778 (2002).
- Le Grazie, M., Biagini, M. R., Tarocchi, M., Polvani, S., Galli, A. Chemotherapy for hepatocellular carcinoma: the present and the future. World Journal of Hepatology. 9 (21), 907-920 (2017).
- Saneyasu, T., Akhtar, R., Sakai, T. Molecular cues guiding matrix stiffness in liver fibrosis. BioMed Research International. 2016, 1-11 (2016).
- Zuliani-Alvarez, L., Midwood, K. S. Fibrinogen-related proteins in tissue repair: how a unique domain with common structure controls diverse aspects of wound healing. Advances in Wound Care. 4 (5), 273-285 (2015).
- Smit, T., et al. Characterization of an alginated encapsulated LS180 spheroid model for anti-colorectal cancer compound screening. ACS Medicinal Chemistry Letters. 11 (5), 1014-1021 (2020).
- Schrader, J., et al. Matrix stiffness modulates proliferation, chemotherapeutic response, and dormancy in hepatocellular carcinoma cells. Hepatology. 53 (4), 1192-1205 (2011).
- Lachowski, D., et al. Matrix stiffness modulates the activity of MMP-9 and TIMP-1 in hepatic stellate cells to perpetuate fibrosis. Scientific Reports. 9, 7299(2018).
重印与许可
