阐明一种新型抗生素的作用机制是药物发现过程中的一项具有挑战性的任务。本文所述方法的目标是应用calScreener进行等温微量热法,用于抗菌谱分析,以进一步揭示药物与微生物相互作用的细节。
方法文章
利用等温微量热法进行代谢谱分析以确定新型天然产物的杀菌或抑菌效应
* These authors contributed equally
本文内容
摘要
摘要
由于全球范围内抗菌耐药性问题日益严重,亟需开发新型抗生素。我们研究黏细菌产生的天然产物作为 此类新化合物的创新来源。该过程中的一个瓶颈通常是阐明其作用模式。我们近期已将等温微量热法纳入常规分析流程。该技术可用于研究抗生素暴露对细菌整体代谢反应的影响,包括与生物量形成无关的代谢过程。重要的是,在测量过程中无需任何人工干预,即可轻松区分抑菌效应与杀菌效应。然而,等温微量热法仍属较新的技术,将其应用于不同细菌种类时,通常需要预先评估合适的测量条件。目前已有部分特定细菌的参考热谱图,可极大促进结果的解读。随着参考数据的持续积累,我们预计该方法未来将产生日益广泛的影响,并有望实现深入的指纹图谱分析,从而区分不同类别的抗生素。
引言
本方法旨在将等温微量热法(IMC)作为中通量筛选手段,用于新型抗菌化合物的作用机制(MoA)分析。该方法可提供化合物对细菌物种活性的相关数据,并揭示化合物本身是具有杀菌作用还是抑菌作用。
新兴抗菌药物耐药性(AMR)的上升是一个全球性问题,导致已知抗生素对常见感染的治疗效果降低1然而,寻找能够替代已知抗生素或与之联合使用的新化合物和药物的研究仍在持续进行,这些研究基于多种不同的方法。天然产物在当前的药物发现工作中发挥着关键作用,尤其在抗感染药物的发现中尤为重要。2然而,为抗生素研发寻找新的先导化合物是一个耗时且资金投入巨大的过程3因此,早期发现阶段极为重要,以便在早期就筛选出最有前景的骨架化合物。天然产物药物发现的初始步骤包括确定化合物的结构以及其活性 体外 以及作用机制(MoA)和靶点鉴定。最有希望进入后续开发阶段的化合物应表现出良好的活性谱(例如,抗菌药物应具有广谱活性),并通过一种新颖的作用机制克服已有的抗菌耐药性(AMR)。随后,通常对有前景的骨架化合物进行次级筛选,包括 体内 生物利用度、毒性和代谢4除了经费问题外,天然产物药物发现还面临与化合物分离和纯化相关的成本及技术难题,这可能导致在发现过程的早期阶段难以获得数百毫克甚至克级的样品量5,6因此,在天然产物研究中,能够使用极少量化合物进行前沿的初筛显得至关重要,以便就是否进一步投入资源将新型天然产物推进至临床前开发阶段做出科学决策。采用成像流式细胞术(IMC)进行抗菌谱分析,与传统方法相比可显著减少所需化合物的用量,同时还能提供有关新药与微生物群落相互作用的更深入信息。7.
等温微量热法(IMC)是一种成熟的技术,用于测量生物系统中所有生物、物理及生化过程与反应所产生的总能量。细菌释放的能量与其总的代谢反应成正比8。在封闭系统(如所使用的微量热仪)中,可在微瓦(µW)量级测量热量,以研究细菌的代谢动力学9,10,11,12。细菌释放的热能(能量)与其细胞代谢相关的各种细胞功能相关,但并不一定与细胞生物量成正比。
最初,由于等温微量热法通量较低且检测所需样品量较大,其在微生物分析中的应用受到限制。然而,所使用的微量热仪具有独特优势,它结合了等温微量热法的优点,同时提高了通量并降低了对化合物的需求量,使其成为药物发现应用中的有力工具10。此外,该仪器相较于其他测定细菌生长动力学的方法(如基于600 nm波长处光密度测量的标准浊度法,即OD<600)也具有更多优势。OD600的测定依赖于“光密度增加等同于微生物生长”的假设,因而忽略了非活细胞的存在。该方法还因无法检测微小菌落变异株和持留细胞而受到批评11。相比之下,等温微量热法(IMC)能够实时监测所有类型的活细胞。即使细胞处于休眠状态,仍具有代谢活性,因此可被IMC检测到,而此类现象在标准浊度法中无法被识别11。IMC的其他优势还包括更短的抗菌药物敏感性测试时间、可在复杂群落中测定药物相互作用,以及采用无需破坏样品的标准分析方法7。
IMC 技术已广泛应用于多种研究领域,涵盖微生物学、产热作用以及癌症生物学13,14,15,16,17。在微生物学方面的应用包括测定化合物对不同细菌菌株的最低抑菌浓度(MIC)。已有多个研究证实,与其它(标准)MIC测定方法相比,利用等温微量热法获得多数细菌物种的MIC数据更为快速,且结果具有一致性12,18,19。IMC 的其他应用还包括观察药物及其联合治疗方案与复杂细菌群落(如生物膜)之间的相互作用11。一项专注于作用机制(MoA)分析的研究表明,微量热仪能够区分第一代与第二代头孢菌素所产生的热谱差异,而具有相同作用机制的不同抗生素则表现出相似的热流曲线18。
本文介绍了利用新型等温微量热仪通过等温微量热法(IMC)对新型天然产物进行作用机制(MoA)分析的方法。该方法可用于确定抗生素的有效浓度,并根据其杀菌或抑菌机制对抗生素特性进行表征。该方法可广泛应用于化合物的作用机制谱型分析,有望替代或至少补充传统的微生物学方法。未来的研究将包括深入的指纹图谱分析,从而能够基于作用靶点机制区分不同的抗生素类别。
方案
注意:仪器温度必须根据所使用的细菌至少提前一天设定,以确保系统的稳定性。此处,Acinetobacter baumannii DSM30008 样品在 30 °C 下运行。
1. 培养物制备
- 将待研究的菌株(此处为 A. baumannii)划线接种于CASO琼脂平板上,在30 °C静置培养箱中过夜培养。
- 挑取单菌落接种于MHB(Mueller-Hinton肉汤)中,制备过夜培养物,并在30 °C、180 rpm振荡培养箱中培养。
2. 样品制备
- 使用 1.5 mL 离心管配制所选药物或化合物的浓度梯度(例如,加入 1.5 µL 以 DMSO 溶解的 100 倍浓缩母液;参见步骤 2.3)。
- 将过夜培养物用 MHB 培养基稀释。
- 使用分光光度计在 600 nm 波长下测定过夜培养物的光密度。
- 将培养物稀释至新鲜 MHB 培养基中,使菌液浓度达到 5 × 10⁵ 菌落形成单位(CFU)/mL。光密度 OD600 为 1 时,约相当于 5 × 10⁸ CFU/mL(例如,Escherichia coli、Staphylococcus aureus、A. baumannii)。
注意:必须针对每种细菌菌株在特定培养条件下校准 OD600 与 CFU/mL 之间的换算系数。
- 向步骤 2.1 中准备好的测试管中加入 150 µL 菌液,确保药物或化合物的终浓度以及细胞终浓度正确。
- 通过涡旋振荡使化合物与菌液充分混匀。
注意:样品板(参见材料表)共有六行,每行八个孔,总计 48 个孔;其中 A 行和 F 行为热力学参比孔,因此不能加入样品,应向这些孔中加入相应的培养基。每次运行最多可检测 32 个测试样品,使用 B 至 E 行的孔位。每个测试样品至少应设置两个重复(本实验中所有样品均设三个重复),并应包含生长对照。
3. 插入物制备
- 从步骤 2.4 制备的混合物中转移 120 µL 至塑料插件中。
注意:在步骤 3.1 中使用反向移液法,以防止液体喷溅到塑料插件的侧壁,否则可能导致信号读数干扰。 - 使用镊子将所有钛瓶放入支架中(参见材料表)。
- 轻柔地将插件转移至支架板中的钛瓶内。
- 将钛盖松松地盖在所有钛瓶上。
4. 加样
- 将带有钛杯的支架转移到样品台,并放置在指定区域。
- 使用扭矩扳手,设定为 40 cNm 力,拧紧所有盖子。
5. 样品的运行
- 在 calView 软件中,启动一个新的实验(补充图 1)。
- 将样品插入臂从仪器中缩回。
- 将杯架放置在“桥”上,第 8 列朝向样品插入口,并轻轻将杯架推入仪器至指定的“位置 1”。等待 10 分钟,使系统稳定。标记实验孔。
- 推动样品插入臂,直至杯架到达指定的“位置 2”。等待 20 分钟,使系统稳定。
- 将样品插入臂推至“位置 3”,然后将样品插入臂缩回至“运行位置”。在软件中高亮所有孔,并选择 反应开始(补充图 4)。
- 运行实验,直至热释放读数稳定地回到零值。
注意:请确保所有孔在此过程中表现出相似的行为。补充图 5 展示了当孔加载正确时应观察到的现象。如果加载不正确,请重复步骤 5.2–5.4。
6. 移除杯托
- 在软件中选择 停止(补充图 6)。软件将提示“您确定吗?”,选择 是(补充图 7),并将实验数据保存至驱动器或桌面以供后续数据分析(补充图 8)。
- 将样品插入臂完全插入仪器中,并启动磁铁以回收杯架。
- 松开瓶盖,取出内衬,将小瓶和瓶盖放入玻璃支架中,在 180 °C 下放置 4 小时,随后将小瓶和瓶盖置于干燥器中,确保小瓶和瓶盖完全干燥。
7. 数据分析
- 打开软件(补充图 9),在左上角选择打开实验(补充图 10)。在弹出窗口中选择目标实验,然后点击打开(补充图 11)。应用程序将以默认的孔位视图打开该实验(补充图 12)。
- 点击全选或按下Ctrl+A(补充图 13)。
- 点击定义基线,此参数将对每个位置的数据进行归一化处理(补充图 14)。在弹出窗口中选择一个位于延滞期、时长>30 分钟的时间段(热流必须较低,介于 0 至 10 µW 之间;补充图 15)。选定基线时间段后,所选基线将在热谱图中以绿色显示。关闭定义基线区间窗口。
- 点击保存或Ctrl+S,然后关闭软件(补充图 16)。
- 打开基于网页的 Symcel 量热分析应用程序(https://symcel.shinyapps.io/symcel_calorimetricgrowth/)。
- 要将文件上传至量热分析应用程序,请点击浏览(补充图 17),选择实验文件后点击打开(补充图 18)。该网络应用程序将自动为 32 个样品计算代谢参数(补充图 19)。
- 为将热流数据拟合至 Gompertz 和/或 Richards 生长模型,请点击生长函数。生长模型的拟合结果将在“累积”部分显示,并在“流速”部分与原始数据进行比较(补充图 20)。
- 要下载所有已计算的参数,请点击下载测量值。选择文件保存位置后点击保存(补充图 21)。文件将被导出至电子表格,以便进行后续计算。
结果
仪器记录到热量信号需要足够数量的产热细菌。如果检测到热流信号的时间出现延迟,则表明细菌尚未产生高于检测限的热量信号。因此,从细菌样品中检测到释放的热量直接反映了细菌活性的增加,包括细菌生长。已知添加抗菌药物会显著影响细菌生长及其他代谢活动。为了确定正在研究的新型天然产物是具有杀菌作用、抑菌作用,还是兼具这两种作用机制(MoAs),我们选择了一组参考药物,并记录了相应的热谱图,用于与天然产物实验所得数据进行比较。根据所选抗生素的效力,选择了一系列接近通过微量肉汤稀释法测定的最低抑菌浓度(MIC)的浓度。
环丙沙星以细菌DNA旋转酶和拓扑异构酶IV为靶点,因此表现出杀菌作用机制(MoA)。然而,环丙沙星诱导的细菌杀灭作用呈浓度依赖性,当给药浓度不足时,也可能产生抑菌效果。21四环素和氯霉素分别作用于核糖体的30S和50S亚基,通过抑制蛋白质合成而发挥抑菌作用。22,23利福平通过抑制依赖DNA的RNA聚合酶发挥作用,其效果可为杀菌性或抑菌性,具体取决于所用剂量。24我们正在研究的天然产物是从黏细菌中分离得到的,其对革兰阴性与革兰阳性病原菌均表现出强效活性。在探究其作用机制(MoA)及分子靶标的过程中,我们关注该新型天然产物是否具有杀菌和/或抑菌作用,以及经处理后的热图谱是否 鲍曼不动杆菌 与上述参考药物处理过的细菌的热图相似。
将A. baumannii DSM-30008 以连续稀释浓度的环丙沙星处理后获得的热图如图1A所示。0.005 µM 至 0.1 µM 浓度范围对A. baumannii的生长和代谢影响较小。然而,使用 0.5 µM 环丙沙星处理细胞会导致滞后期持续时间显著延长,并降低最大热流。这两项变化共同影响了达峰时间(图1C),延长了约6小时。在图1B中,累积释放的热量随时间变化作图。此处可观察到不同浓度的影响,表现为斜率的增加。对热图斜率进行量化,可得到环丙沙星存在条件下A. baumannii的最大代谢速率,如图1D所示,其中可观察到经 0.5 µM 环丙沙星处理的细胞其代谢速率显著下降。经较低浓度处理的细胞其代谢速率变化较小。通过增加覆盖 0.1–1 µM 范围的中间浓度,可进一步优化本实验,以更清晰地观察到无效应浓度与导致滞后期及代谢速率显著延迟的浓度之间的渐进变化。然而,当前的变化趋势支持环丙沙星具有杀菌作用机制(MoA)。
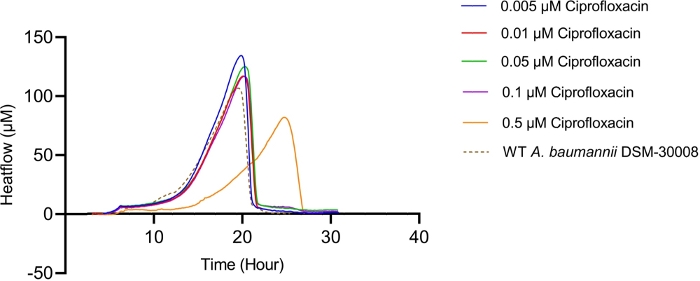
图 1A: 请点击此处查看该图的放大版本。
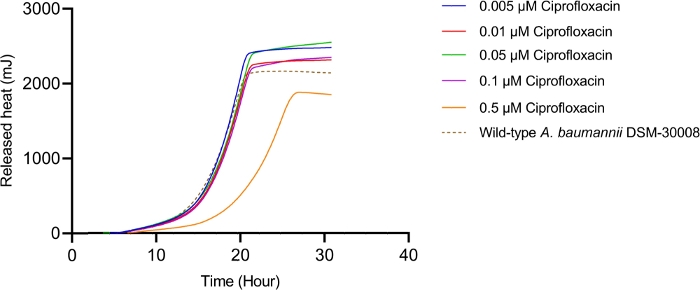
图 1B: 请点击此处查看该图的放大版本。
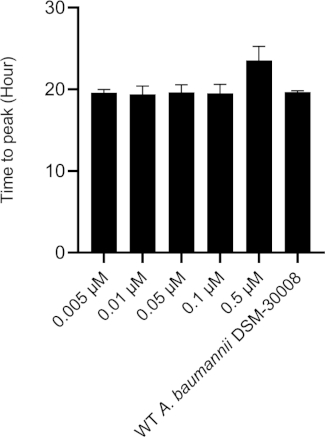
图1C: 请点击此处查看该图的放大版本。
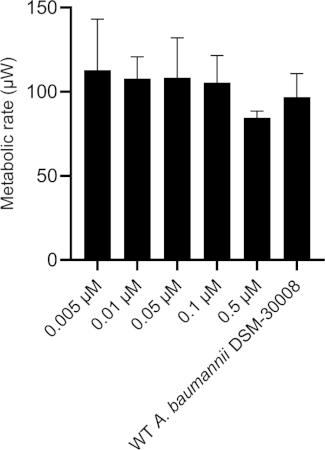
图 1D:环丙沙星对 A. baumannii DSM-30008 生长和代谢的影响。(A)热谱图,显示野生型(WT)A. baumannii DSM-30008 在未处理和暴露于环丙沙星条件下的热流(µW)随时间(h)的变化。(B)累积热量(mJ)随时间(h)的变化。(C)达峰时间(h),误差棒表示标准差。(D)代谢速率(µW),误差棒表示标准差。请点击此处查看该图的放大版本。
对于四环素,在测试的所有浓度下,直到8小时后进入晚期指数生长期之前,我们未观察到热谱图的显著变化(见图2A)。然而,在静止期的热释放中观察到显著变化,经5 µM和10 µM四环素处理的A. baumannii菌株,其热流的第二个峰明显降低。较低浓度也产生一定影响,但程度较轻。该效应还导致达到峰值时间延长,如图2C所示。图2B中的累积放热曲线显示,未经处理与经处理的细胞在整体曲线形状上无显著差异,但总体趋势上,随着四环素浓度升高,曲线斜率有所下降。这一趋势也反映在图2D所示的量化代谢速率中,呈现出浓度依赖性效应(即,随着抗生素浓度增加,代谢速率下降)。这些结果支持四环素具有抑菌作用的观点。
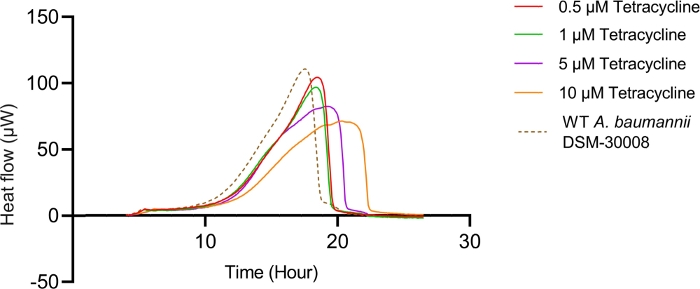
图 2A: 请点击此处查看此图的放大版本。
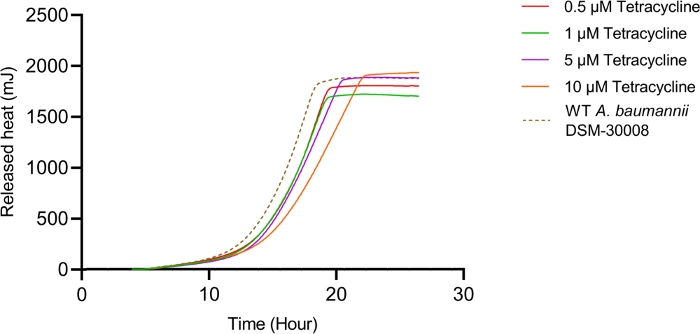
图 2B: 请点击此处查看该图的放大版本。
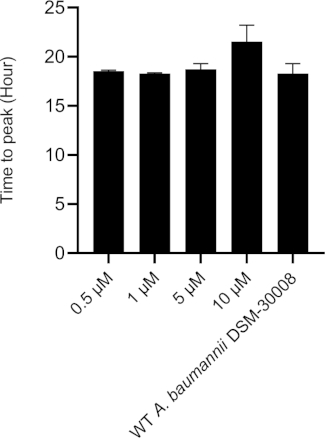
图 2C: 请点击此处查看该图的放大版本。
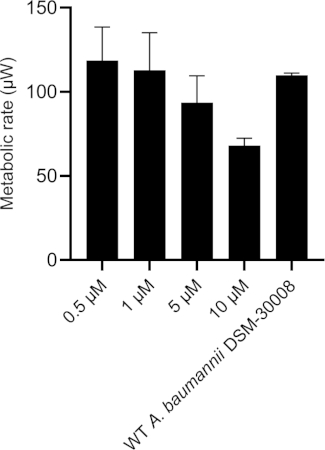
图 2D:四环素对 A. baumannii DSM-30008 生长和代谢的影响。(A)野生型(WT)A. baumannii DSM-30008 在未处理及暴露于四环素条件下的热流曲线,以热流(µW)随时间(h)的变化表示。(B)累积热量(mJ)随时间(h)的变化。(C)达峰时间(h),误差棒表示标准差。(D)代谢速率(µW),误差棒表示标准差。请点击此处查看该图的放大版本。
当使用靶向50S核糖体亚基的蛋白质合成抑制剂氯霉素处理A. baumannii时,可观察到更为显著的效应。随着氯霉素浓度的增加,延迟期延长,且在稳定期的代谢活性发生显著变化(图3A和图3B)。在最低测试浓度下未观察到代谢速率的变化,而所选最高测试浓度(50 µM)则几乎完全抑制了样品的能量释放。在中间测试浓度(5 µM和10 µM)下,达峰时间显著延长,约增加8-9小时(图3C)。同时,处理细胞的代谢速率显著降低,其中50 µM浓度具有致死效应(图3D)。总体而言,在氯霉素浓度不超过10 µM时所观察到的变化,与该类抗生素的抑菌作用一致。
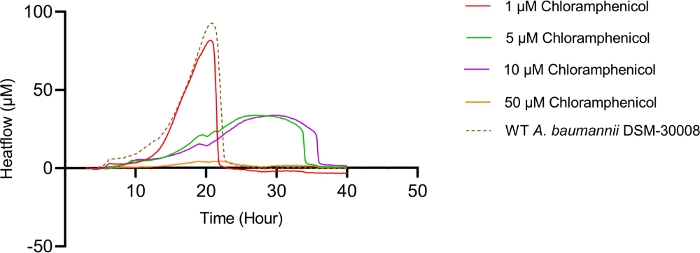
图 3A: 请点击此处查看该图的放大版本。
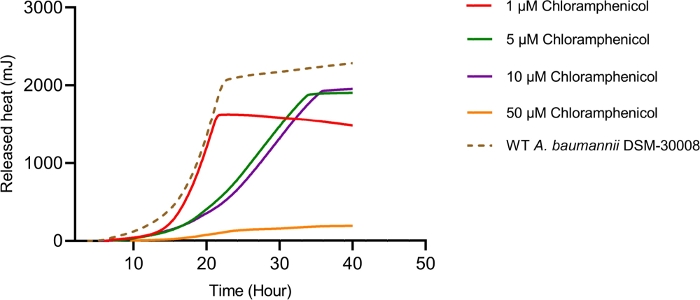
图 3B: 请点击此处查看此图的放大版本。
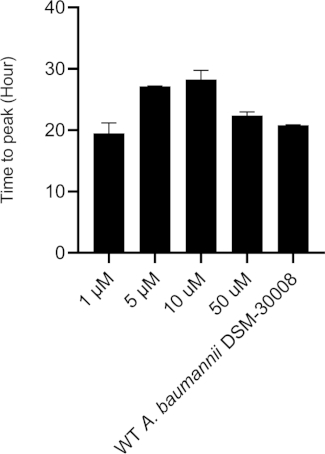
图3C: 请点击此处查看该图的放大版本。
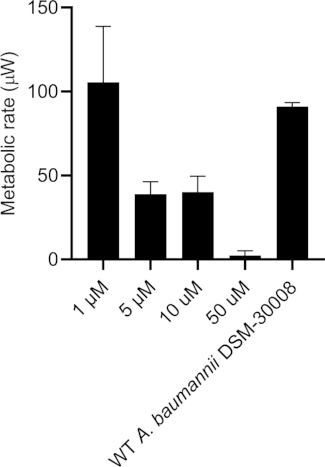
图 3D:<氯霉素对A. baumannii DSM-30008 生长与代谢的影响。(A)野生型(WT)A. baumannii DSM-30008 在未处理及暴露于氯霉素条件下的热流(µW)随时间(h)变化的热谱图。(B)累积热量(mJ)随时间(h)的变化。(C)达峰时间(h),误差线表示标准差。(D)代谢速率(µW),误差线表示标准差。请点击此处查看该图的高清版本。
在所选浓度范围内,利福平处理对 A. baumannii DSM-30008 的热谱图产生显著影响,表现为延迟期持续时间的改变以及对生长至后期稳定期的影响(图4A)。图4B 显示热释放明显减少,这与代谢活性的降低相一致。图4C 和 图4D 描述了延迟期延长以及稳定期代谢活性变化的影响。图4C 显示,所用各浓度下达到峰值的时间均明显增加。图4D 说明,由于各浓度下斜率降低导致代谢速率下降,这一现象通常归因于杀菌作用。由于抗生素诱导细菌细胞死亡,活性细菌数量减少,因此预期代谢活性会降低。所收集的数据与利福平具有杀菌和抑菌双重作用的事实一致,而本文呈现的结果主要支持所选浓度下以杀菌作用为主。
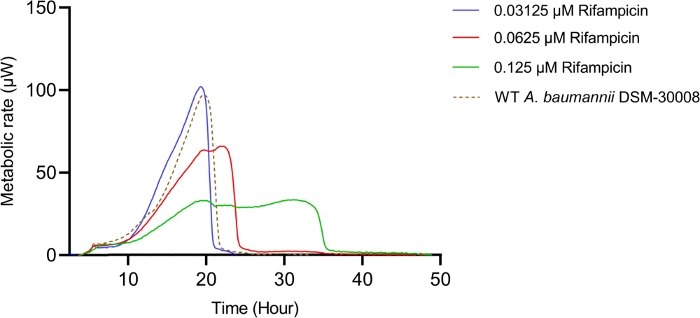
图 4A: 请点击此处查看该图的放大版本。
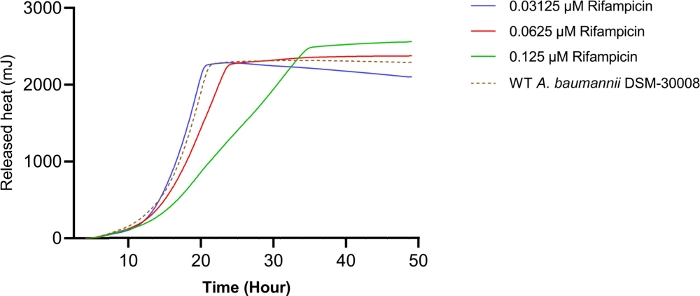
图 4B: 请点击此处查看本图的放大版本。
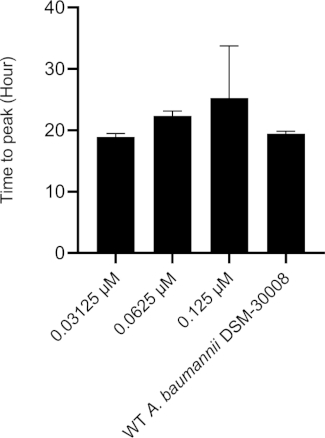
图 4C: 请点击此处查看本图的放大版本。
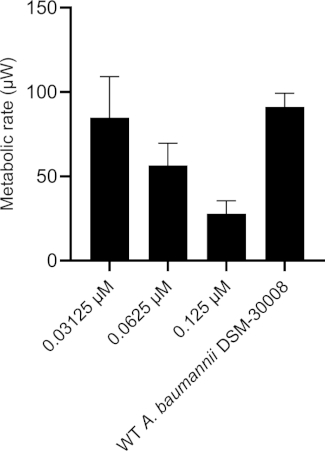
图 4D:<利福平对 A. baumannii DSM-30008 生长和代谢的影响。(A)野生型(WT)A. baumannii DSM-30008 在未处理及暴露于利福平条件下的热谱图,显示热流(µW)随时间(h)的变化。(B)累积热量(mJ)随时间(h)的变化。(C)达峰时间(h),误差棒表示标准差。(D)代谢速率(µW),误差棒表示标准差。请点击此处查看该图的放大版本。
天然产物抗生素的最低测试浓度(0.25 µM)对 A. baumannii DSM-30008 的热谱图无影响或仅有轻微影响。然而,其他测试浓度对延滞期持续时间产生一定影响,并影响生长至后期稳定期(图 5A)。最明显的效果是稳定期热释放的显著减少。图 5B 所示数据清楚表明,所有有效浓度下释放的能量均显著降低,同时斜率也有所下降。这些效应表现为达峰时间缩短(图 5C),更重要的是,观察到代谢速率显著且明显呈剂量依赖性地下降(图 5D)。对新型黏细菌天然产物的研究揭示了其兼具抑菌和杀菌作用。
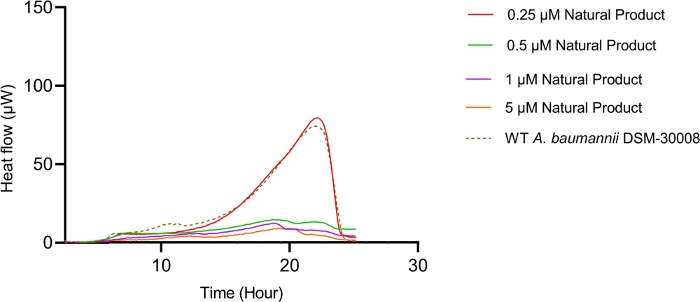
图 5A: 请点击此处查看此图的放大版本。
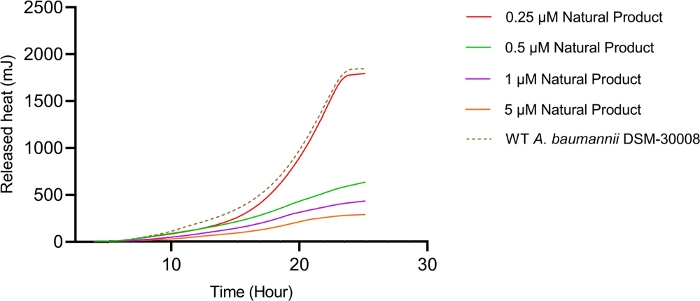
图 5B: 请点击此处查看此图的放大版本。
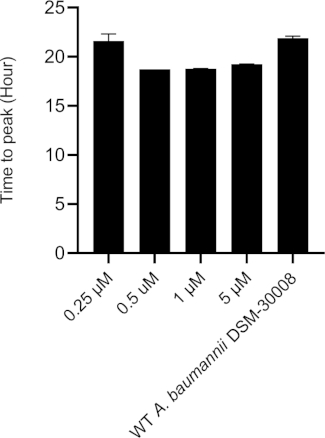
图 5C: 请点击此处查看此图的放大版本。
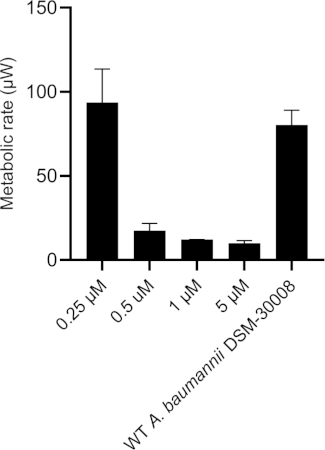
图 5D:<天然抗菌产物对 A. baumannii DSM-30008 生长与代谢的影响。(A)热流图(热流,µW)随时间(h)的变化曲线,显示野生型(WT)A. baumannii DSM-30008 在未处理及暴露于天然产物条件下的情况。(B)累积热量(mJ)随时间(h)的变化。(C)达峰时间(h),误差线表示标准差。(D)代谢率(µW),误差线表示标准差。请点击此处查看该图的放大版本。
补充图1:在软件界面中选择新实验。 红色方框中显示了选择新实验的操作步骤。请点击此处下载该图。
补充图2:在软件界面中为新实验命名。 图中红色方框标示了为新实验命名并确认的步骤。请点击此处下载该图。
补充图3:在软件界面中启动新实验。 红色方框中显示了启动新实验的操作步骤。请点击此处下载该图。
补充图4:软件界面中的孔位选择与反应启动。 所有反应孔均已选中(孔位显示为深蓝色,全选按钮以红色方框标出),并已选择启动反应(以红色方框标出)。请点击此处下载该图。
补充图5:样品杯架的正确加载。 参考孔已选中(深蓝色,红色方框),热图在弹出窗口中显示。当加载操作正确时,我们观察到检测到的热释放信号急剧下降,必须达到平台期,并在此阶段维持约2-3分钟,之后信号回到起始点。当观察到此现象时,表明样品杯架的加载正确。请点击此处下载该图。
补充图6:实验结束。 图中红色标注的是实验中的停止按钮。请点击此处下载该图。
补充图7:实验结束的确认。 图中红色标记为确认实验运行结束的“是”按钮。请点击此处下载该图。
补充图8:保存实验文件。 显示一个带有保存文件选项的弹出窗口,其中以红色标出保存按钮。请点击此处下载该图。
补充图9:软件界面。 请点击此处下载该图。
补充图10:访问已保存的实验。 用红色标出的是打开实验按钮,用于访问已保存的实验。请点击此处下载该图。
补充图11:打开选定的实验文件。 用红色标出的是打开按钮。请点击此处下载该图。
补充图12:默认孔板视图。 所有实验孔及其对应的热变曲线均可见。请点击此处下载该图。
补充图13:选择用于分析的孔。红色标注的按钮为 全选。请点击此处下载该图。
补充图14:定义基线。 以红色标示的是 定义基线 按钮。请点击此处下载该图。
补充图15:选择基线信号。 选择滞后期中至少30分钟的信号(红色框)。请点击此处下载该图。
补充图16:保存实验文件的更改。 以红色标示的是保存按钮。请点击此处下载该图。
补充图17:基于网络的量热分析应用程序。 显示了在线软件界面和文件上传路径。 请点击此处下载该图。
补充图18:选定实验文件的上传。 用红色标出的是 打开 按钮。 请点击此处下载该图。
补充图19:热图分析。 为每个实验孔计算的代谢参数以红色表示。请点击此处下载该图。
补充图20:将实验数据拟合到理论生长模型。 热流数据被拟合至Gompertz或Richard´s生长模型。请点击此处下载该图。
补充图21:导出测量结果。 以红色标示的按钮为 下载测量数据 和 保存。请点击此处下载该图。
讨论
等温微量热法通过测量样品随时间释放的能量,反映所有生物、物理以及(生物)化学过程所产生的能量变化。由于该方法能够连续实时监测代谢活性,因此所测得的热流可用于评估或确定物质的抗菌效果。
为了获得可靠的分析数据,需要针对所使用的每一种或每一株微生物,分别确定其正确的起始菌落形成单位(CFU)。如果CFU数量过低,会导致较长的延滞期,因为系统需要更长时间才能达到产生足够热量以被检测到的生物量临界值。如果CFU数量过高,则延滞期会非常短,且产生的热量可能传递至邻近的传感器细胞(参考孔和实验孔),从而导致热谱图失真。过高的CFU数量还会导致氧气更快耗尽,使体系迅速转入厌氧状态。此外,还需注意,在实验开始的前30分钟内,系统正处于平衡阶段,无法进行数据采集,因此对效应的实际记录会被延迟。另外,CFU测定不准确会导致最低抑菌浓度(MIC)的错误判断,最终影响实验结果及所观察到的变化25。另一个关键点是基线的正确确定。通常,基线信号应在延滞期内选择,此时热流信号为零,理想情况下,用于定义基线的时间范围应>30分钟。然而,这并不总是可行的,因为不同菌株或物种达到热信号检测限所需的时间各不相同。某些菌种或菌株需要超过30分钟才能达到热信号检测限,而另一些则可在前30分钟内即达到。在此情况下,可以选择在实验结束时所有热信号均已回落至零并保持稳定时确定基线信号。或者,也可使用相同细菌菌株在其他实验中获得的基线数据,但这种方法并不推荐。
该系统在实验设计、优化及故障排除方面具有一定的灵活性。使用塑料插件时,所用体积范围为100–300 µL,而使用无塑料插件的钛杯时,体积范围为100–600 µL。制造商推荐的工作体积为120 µL。在建立新的实验系列以及寻找最佳测量条件时,使用不同体积主要影响两个参数。较低的体积可减少所需测试化合物的用量,这对于仅能获得少量的化合物尤为重要。此外,所用体积直接影响测量过程中的氧气供应,较低的体积会增加细菌生长所需的可用氧气量。氧气耗竭是限制实验最长时间的主要因素之一。重要的是,不仅可以使用液体培养基,还可以使用固体培养基。这对于生长缓慢的微生物尤其重要,因为在固体与气相界面处生长可实现更好的氧气供应9。
等温微量量热法(IMC)是一种有用的分析工具,可用于发现物理学、化学和生物学领域中的未知过程。该方法通过测量封闭系统内的热交换,对记录的热交换数据进行分析,从而提供一些常规方法无法获得的额外信息。在微生物学和抗生素研究中,IMC 最大的优势之一是能够区分活细胞、死细胞以及持留细胞或休眠细胞,而这是标准浊度法无法实现的11。此外,IMC 具有高度灵敏性,能够检测低至 104–105 个细胞产生的热释放9。另一个优点是实验装置快速且简便,可实现连续、实时的监测,且几乎无需人工干预。此外,IMC 是一种非破坏性方法,因此可对样品进行后续分析。数据分析可将生物量形成过程与代谢活性分别解耦,直至对数生长后期或稳定期初期,并可独立分析稳定期的代谢活性。
除了上述新颖且令人兴奋的应用特点外,该方法也存在一些不足之处。主要局限在于,等温微量热仪(IMC)测量的是特定系统内产生并释放的总热量,其中也包含非特异性信号。因此,实验设计时必须设置适当的对照,以准确评估通过记录热流所测得的热量信号变化9,20。
在我们看来,等温微量热法(IMC)是研究新型天然产物抗菌效果及确定其有效浓度范围的重要工具。除了能够区分抑菌与杀菌效应外,未来该方法还可用于靶点鉴定研究和作用机制(MoA)的确定。这可以通过将不同抗生素类别的热图谱与新型活性化合物的热图谱进行比较来实现,如本文所示。然而,仍需进一步研究从实验数据中提取的某些可量化参数是否足以支持此类比较,或者是否需要开发基于完整热图谱生成指纹特征的算法。在抗生素研究领域的另一潜在应用是将野生型菌株与耐药克隆株进行比较,并结合全基因组测序,有助于阐明新型抗菌药物的耐药机制(MoR)。由于该方法具有静态特性,可用于研究新型药物对生物膜形成过程或已形成生物膜的影响,从而加深对不同休眠阶段微生物生物学过程及其受干预效应的理解。IMC记录的是以热能形式释放的总能量,因此也适用于研究活性物质在亚抑制浓度下的效应,这些效应可与转录组学数据关联分析。此外,该方法还可应用于临床场景中,用于检测样本污染或生成抗菌谱(antibiogram),以帮助快速确定患者的最终治疗方案11。
披露
该项目由 calScreener 技术的开发公司 Symcel 合作完成。作者声明无利益冲突。
致谢
作者谨向Symcel团队致以感谢,感谢他们富有成效的讨论;同时感谢Ganna Oliynyk和Wilhelm Paulander提供的大力支持。我们还要感谢Daniel Kohnhäuser提供天然产物,以及Stefanie Schmidt提供的娴熟技术协助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Acinetobacter baumannii | DSMZ | DSM-30008 | 本研究中使用的参考菌株 |
| calPlate | Symcel | 1220093 | 用于插入钛杯的48孔板 |
| calScreener | Symcel | 1200001 | 等温微量热仪 |
| calView 软件 | Symcel | 数据采集与分析软件 | |
| calWell | Symcel | 1901004 | 微生物级(非活性)48孔板,含可插入钛杯中的塑料插件 |
| CASO 琼脂 | Carl Roth | X937.1 | 用于微生物的分离与培养 |
| 氯霉素 | Sigma-Aldrich | C0378 | 抗生素 |
| 环丙沙星 | Sigma-Aldrich | 17850 | 抗生素 |
| 比色皿 | Brand | 759015 | 1.5 mL 比色皿 |
| 一次性接种环 | Sarsted | 86.1562.050 | 10 µL 接种环 |
| 二甲基亚砜 (DMSO) | Thermo Fisher Scientific | 85190 | |
| Eppendorf 管 | Eppendorf | 30120086 | 1.5 mL Eppendorf 安全锁扣管 |
| 乙醇 | Thermo Fisher Scientific | 10428671 | |
| Falcon 管 | Sarsted | 62.554.502 | 15 mL Falcon 管 |
| 盐酸 (HCl) | Thermo Fisher Scientific | 10316380 | |
| 甲醇 | Thermo Fisher Scientific | A412-500 | |
| 穆勒-欣顿肉汤 | Sigma-Aldrich | 70192 | 用于抗生素敏感性研究的液体培养基 |
| 阳离子调节型穆勒-欣顿肉汤 II 培养基 | Sigma-Aldrich | 90922 | 阳离子调节至 1.25 mM CaCl2、0.8 mM MgCl2 的穆勒-欣顿肉汤 |
| 培养皿 | LABSOLUTE | 7696404 | |
| 移液器 100 - 1000 µL | Brand | 705880 | |
| 移液器 2 - 20 µL | Brand | 705872 | |
| 移液器 20 - 200 µL | Brand | 705878 | |
| 移液器吸头 100 - 1000 L | Brand | 732032 | |
| 移液器吸头 2 - 200 µL | Brand | 732028 | |
| 硫酸多粘菌素B | Sigma-Aldrich | P0972 | 抗生素 |
| 利福平 | Sigma-Aldrich | R3501 | 抗生素 |
| 血清移液管 | Thermo Fisher Scientific | 170356N | 10 mL Nunc 血清移液管 |
| 分光光度计 | Eppendorf AG | 6135 000.017 | |
| 无菌滤器 | Minisart | 16534----------K | 孔径 0.2 µm 的无菌滤器 |
| 50 mL 注射器 | NORM-JECT | 22778 | |
| 四环素 | Sigma-Aldrich | 87128 | 抗生素 |
| 钛杯 | Symcel | 1220089 | 插入 48 孔钛制 calPlate 中 |
| 钛盖 | Symcel | 1220091 | 拧紧并密封至钛杯上 |
| 甲氧苄啶 | Sigma-Aldrich | T7883 | 抗生素 |
| 镊子 | Symcel | 1900602 |
参考文献
- World Health Organization (WHO). Antibiotic resistance. World Health Organization (WHO). , Available from: https://www.who.int/news-room/fact-sheets/detail/antibiotic-resistance (2018).
- Herrmann, J., Abou Fayad, A., Müller, R. Natural products from myxobacteria: novel metabolites and bioactivities. Natural Product Reports. 34 (2), 135-160 (2017).
- Cassar, S., et al. Use of Zebrafish in Drug Discovery Toxicology. Chemical Research in Toxicology. 33 (1), 95-118 (2020).
- Bhusnure, O. G., et al. Drug Target Screening and its Validation by Zebrafish as a Novel Tool. Pharmaceutica Analytica Acta. 6 (10), 426(2015).
- Kraus, J., Tobin, G., Development, Discovery, Deveopment, and Regulation of Natural Products. Using Old Solutions to New Problems - Natural Drug Discovery in the 21st Century. Kulka, M. , InTech. Rijeka, HR. 4-36 (2013).
- Tabassum, N., Tai, H., Jung, D., Williams, D. R. Fishing for Nature's Hits: Establishment of the Zebrafish as a Model for Screening Antidiabetic Natural Products. Evidence-Based Complementary and Alternative Medicine. 2015 (1), 287847(2015).
- Antimicrobial Development. Symcel. , Available from: https://symcel.com/applications/microbiology/antimicrobials-development (2019).
- Robador, A., LaRowe, D. E., Finkel, S. E., Amend, J. P., Nealson, K. H. Changes in Microbial Energy Metabolism Measured by Nanocalorimetry during Growth Phase Transitions. Frontiers in Microbiology. 2018 (9), 109(2018).
- Braissant, O., Wirz, D., Göpfert, B., Daniels, A. U. Use of isothermal microcalorimetry to monitor microbial activities. FEMS Microbiology Letter. 303 (1), 1-8 (2010).
- Braissant, O., et al. Isothermal microcalorimetry accurately detects bacteria, tumorous microtissues, and parasitic worms in a label-free well-plate assay. Biotechnology Journal. 10 (3), 460-468 (2015).
- Butini, M. E., Abbandonato, G., Di Rienzo, C., Trampuz, J., Di Luca, M. Isothermal microcalorimetry detects the presence of persister cells in a Staphylococcus aureus biofilm after vancomycin treatment. Frontiers in Microbiology. 25 (10), 332(2019).
- Tellapragda, C., et al. Isothermal microcalorimetry minimal inhibitory concentration testing in extensively drug resistant Gram-negative bacilli - A multicenter study. Clinical Microbiology and Infection. , (2020).
- Abdillahi, S., et al. Collagen VI Contains Multiple Host Defense Peptides with Potent In Vivo Activity. The Journal of Immunology. 201 (3), 1007-1020 (2018).
- Astasov-Frauenhoffer, M., et al. Exopolysaccharides regulate calcium flow in cariogenic biofilms. PLoS ONE. 12 (10), 1-14 (2017).
- Gros, S., et al. Personalized Treatment Response Assessment for Rare Childhood Tumors Using Microcalorimetry-Exemplified by Use of Carbonic Anhydrase IX and Aquaporin 1 Inhibitors. International Journal of Molecular Sciences. 20 (20), 4984(2019).
- Kriszt, R., et al. Optical visualisation of thermogenesis in stimulated single-cell brown adipocytes. Scientific Reports. 7 (1), 1-14 (2017).
- Wadsö, I., et al. A well-plate format isothermal multi-channel microcalorimeter for monitoring the activity of living cells and tissues. Thermochimica Acta. 652 (1), 141-149 (2017).
- von Ah, U., Wirz, D., Daniels, A. U. Isothermal micro calorimetry - a new method for MIC determinations: results for 12 antibiotics and reference strains of E. coli and S. aureus. BMC Microbiology. 9 (106), (2009).
- Howell, M., Wirz, D., Daniels, A. U., Braissant, O. Application of a Microcalorimetric Method for Determining Drug Susceptibility in Mycobacterium Species. Journal of Clinical Microbiology. 50 (1), (2012).
- Wadsö, I. Isothermal Microcalorimetry: Current problems and prospects. Journal of Thermal Analysis and Calorimetry. 64 (2001), 75-84 (2001).
- LeBel, M. Ciprofloxacin: chemistry, mechanism of action, resistance, antimicrobial spectrum, pharmacokinetics, clinical trials, and adverse reactions. Pharmacotherapy. 8 (1), 3-33 (1988).
- Chopra, I., Roberts, M. Tetracycline antibiotics: mode of action, applications, molecular biology, and epidemiology of bacterial resistance. Microbiology and Molecular Biology Reviews. 65 (2), 232-260 (2001).
- Allison, J. L., et al. Mode of action of chloramphenicol. VII. Growth and multiplication of Escherichia coli in the presence of chloramphenicol. Journal of Bacteriology. 83 (3), 609-615 (1962).
- Wehrli, W. Rifampin: mechanisms of action and resistance. Reviews of Infectious Diseases. 5, Suppl 3 407-411 (1983).
- Hancock, R. E. W., et al. Agar and broth methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nature Protocols. 3 (2), 163-175 (2008).
重印与许可
