本方案提供了一种研究结核分枝杆菌(Mycobacterium tuberculosis)感染人M1型或M2型极化巨噬细胞的方法,该方法基于将外周血单核细胞分化为类巨噬细胞,随后用表达绿色荧光蛋白(GFP)的强毒株H37Rv感染这些细胞,并利用包含10种荧光标记的流式细胞术检测方案对选定的M1/M2标志物表达情况进行分析。
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
人类巨噬细胞是胞内寄生的结核分枝杆菌(Mycobacterium tuberculosis,Mtb)感染的主要宿主细胞,因此在结核病(TB)的免疫控制中发挥核心作用。我们建立了一种实验方案,通过使用10色流式细胞术检测面板,对骨髓来源细胞向M1型(经典活化)或M2型(替代活化)巨噬细胞样细胞的免疫极化过程进行追踪,该方法可实现对不同巨噬细胞亚群中绿色荧光蛋白(GFP)标记的Mtb的可视化和深度表征。从健康献血者获取的单核细胞,通过粒细胞-巨噬细胞集落刺激因子(GM-CSF)或巨噬细胞集落刺激因子(M-CSF)诱导分化,并分别联合干扰素-γ(IFN-γ)与脂多糖(LPS)或白细胞介素-4(IL-4)进行极化,从而获得M1或M2型细胞。完全极化的M1和M2细胞与Mtb-GFP共孵育4小时后,在感染后4小时或24小时收集脱落的Mtb感染巨噬细胞,并进行流式细胞术染色。样本采集通过流式细胞仪完成,数据分析使用流式细胞术分析软件进行。分析过程包括人工设门,以及采用均匀流形近似与投影(Uniform Manifold Approximation and Projection, UMAP)进行降维分析和Phenograph聚类分析。该方案可有效实现M1/M2极化:未感染的M1细胞表现出CD64、CD86、TLR2、HLA-DR和CCR7表达水平显著升高,而未感染的M2细胞则显著上调M2表型标志物CD163、CD200R、CD206和CD80。通常情况下,M1极化细胞内的细菌数量少于M2极化细胞。Mtb感染后,多个M1/M2标志物表达下调,提示Mtb可能具有调控巨噬细胞极化的能力。此外,在感染后24小时,共鉴定出24个大小不同的细胞簇,这些细胞簇在未感染与Mtb感染的M1和M2细胞中呈现独特分布。该M1/M2流式细胞术方案可作为Mtb-巨噬细胞研究的基础框架,并可根据不同研究领域的特殊需求进行调整应用。
引言
巨噬细胞是一类在组织稳态调节、炎症反应及疾病病理过程中发挥重要作用的免疫细胞。作为先天免疫系统的关键组成部分,单核细胞-巨噬细胞谱系能够根据微环境变化的信号刺激表现出异质性的表型,体现出其在不同解剖结构和免疫微环境中的可塑性与适应能力1。根据微环境中存在的生长因子、细胞因子及其他介质的不同,巨噬细胞通常被分为两类主要的、可逆的细胞群体,它们在细菌控制与清除过程中发挥不同的作用2:一类是促炎性的、经典活化的M1极化巨噬细胞,另一类是抗炎性的、替代性活化的M2极化巨噬细胞,后者最初命名时借鉴了辅助性T细胞(Th细胞)的命名体系3。这种将巨噬细胞按免疫极化状态分类的方式常被认为过于简化,因为巨噬细胞的活化与分化并非线性过程,更准确的描述应为一个连续谱系,其中不同细胞群体在疾病发生与进展过程中具有各异的特征和功能作用4,5,6,7。尽管如此,M1/M2巨噬细胞模型在多个研究领域中仍具有广泛的实验应用优势。
Mycobacterium tuberculosis(Mtb)是结核病(TB)的致病菌,据估计每秒就有一人被感染,被认为是全球致死率最高的单一传染性病原体(《全球结核病报告2019》)。由于呼吸道是Mtb感染的主要途径,肺泡巨噬细胞是其首选的宿主细胞,既是肺部抵抗Mtb感染的第一道屏障,也是Mtb在肺内的感染储存库。多年来,巨噬细胞在不同刺激下的极化现象已被广泛研究7。在大多数已发表的研究中,体外单核细胞培养物的M1型极化通常由粒细胞-巨噬细胞集落刺激因子(GM-CSF)联合IFN-γ和LPS诱导8,9,而M2型极化则通过巨噬细胞集落刺激因子(M-CSF)和IL-4诱导10,11。M1型巨噬细胞是强大的效应细胞,可介导针对胞内病原体的抗菌反应,并在抗肿瘤免疫中发挥关键作用12。相反,M2型巨噬细胞具有抗炎功能,吞噬能力较强,主要参与伤口愈合、组织修复以及寄生虫感染过程12。因此,与M2型巨噬细胞相比,M1型巨噬细胞被认为在控制Mtb胞内感染方面更为有效13。然而,Mtb细菌也具有调控巨噬细胞极化的能力,以逃避先天免疫的清除14,15,16,17。
尽管通常通过外周血单核细胞分化来获得巨噬细胞18,但巨噬细胞也可来源于诱导性多能干细胞(iPSCs)19,或来源于小鼠骨髓来源的巨噬细胞20,21。这些方法均可用于研究由单核/巨噬细胞前体细胞分化而来的原代巨噬细胞,这些前体细胞可增殖并分化为一群表型均一的成熟巨噬样细胞。然而,这些实验方案很少能深入揭示所获得细胞的表型与功能特征,也未能充分反映体内获得的巨噬细胞所具有的天然异质性。由于结核分枝杆菌(Mtb)是一种严格的人类病原体,因此在人源化模型系统中研究Mtb具有明显优势。流式细胞术是一种强大的技术,能够在悬浮状态下对单个细胞的多种表型和功能特征进行分析22,而这一点在贴壁细胞(如已知具有自发荧光特性的巨噬细胞)中实现则较为困难23,24。除了需要化学方法解离牢固贴壁的巨噬细胞外,Mtb感染本身可能对细胞造成显著的应激,从而进一步增加了对Mtb感染巨噬细胞进行流式细胞术分析的复杂性。
在本实验方案中,我们采用了一种已建立的人巨噬细胞感染模型,该模型基于由外周血单核细胞分化而来的巨噬细胞,经免疫极化后感染毒力较强的结核分枝杆菌实验室菌株H37Rv,并使用包含选定M1和M2标志物表达的10色流式细胞术 panel 进行分析25。该方案提供了一种高效且可重复的方法,用于研究M1或M2极化单核细胞来源巨噬细胞对结核分枝杆菌(Mtb)感染的反应。此外,对贴壁生长的Mtb感染巨噬细胞进行流式细胞术分析,使我们能够研究与经典M1和M2巨噬细胞相关的多种表面标志物及其在Mtb感染过程中的纵向反应。重要的是,该方案可轻松适用于其他病原体感染的研究、抗肿瘤研究、炎症状态研究、药物筛选等,也可用于人临床样本中M1/M2巨噬细胞极化状态的评估。
方案
健康匿名献血者的外周血来自瑞典于丁厄的卡罗林斯卡大学医院血库(伦理批准编号 Dnr 2010/603-31/4)。所有涉及活体毒力结核分枝杆菌(Mtb)的实验操作均在瑞典索尔纳的瑞典公共卫生局(FOHM)生物安全三级(BSL-3)实验室进行。
1. 培养基、缓冲液和细菌培养物的制备
注意:所有试剂和耗材的详细信息均在材料表中提供。
- RPMI 完全培养基:在 RPMI 1640 培养基中添加 1 mM 丙酮酸钠、2 mM L-谷氨酰胺、10 mM HEPES 和 10% 热灭活胎牛血清(FBS)。在进行结核分枝杆菌(Mtb)感染实验时,避免在细胞培养基中使用抗生素。
- 无血清 RPMI 培养基:在 RPMI 1640 培养基中添加 1 mM 丙酮酸钠、2 mM L-谷氨酰胺和 10 mM HEPES。
- 洗涤缓冲液:配制含 0.05%(v/v)Tween-80 的磷酸盐缓冲液(PBS)。
- FACS 缓冲液:配制含 2.5%(v/v)FBS 和 0.5 mM EDTA 的 PBS 。
- 固定缓冲液:配制含 4% 甲醛的 PBS 缓冲液。使用前需新鲜配制,例如从 37% 甲醛的储存液稀释获得。
- 通透缓冲液:向去离子水中加入 0.1% 柠檬酸钠和 0.1% Triton X-100。
- 免疫荧光洗涤缓冲液:配制含 0.1% BSA 和 0.1% Tween-20 的 PBS 缓冲液。
- 封闭缓冲液:在 PBS 中添加 0.1% BSA 和 10% 正常山羊血清(NGS)配制而成。
- 染色缓冲液(用于免疫荧光):在 PBS 中添加 0.1% BSA 配制而成。
- TB 完全培养基:在 Middle Brook 7H9 肉汤中添加 0.05%(v/v)Tween-80、0.5%(v/v)甘油、卡那霉素(20 µg/mL)、10%(v/v)Middlebrook 油酸、白蛋白、葡萄糖和过氧化氢酶添加剂(Middlebrook OADC 添加剂)。
- 细菌培养物:使用稳定表达绿色荧光蛋白(GFP)的标准毒力型结核分枝杆菌(Mtb)实验室菌株 H37Rv 感染单核细胞来源的细胞。该 Mtb 菌株携带 pFPV2 质粒,其中包含编码 GFP 的基因以及卡那霉素抗性基因。抗生素抗性使得在含卡那霉素的培养基中可持续筛选表达该质粒的细菌。将细菌保存于 TB 完全培养基与 70% 甘油(1:1 稀释)中,置于 -80 °C 保存。
2. 从血沉棕黄层中分离外周血单个核细胞
注意:所有涉及人血(可能具有传染性)的操作均须在II级生物安全柜内进行。丢弃前,需用消毒剂处理残留血液制品至少15分钟以使其失活。本实验所用血液来自健康志愿者。本体外巨噬细胞分化实验方案设定每孔每名供体使用10 × 106个分离的外周血单个核细胞(PBMCs)。每名供体的一管血沉棕黄层(buffy coat)通常含有约50 mL由全血制备的浓缩白细胞悬液,一般可获得500–800 × 106个PBMCs,其中约10%(即50–80 × 106个)为单核细胞。
- 在50 mL离心管中,将15 mL血沉棕黄层加至预先准备好的15 mL密度梯度介质上方。将移液管管尖靠在管壁上,缓慢地将血液叠加在密度梯度层上。
- 在室温(RT)下以600 x g离心25分钟,加速度和减速度均设为0。
注意:离心前应小心关闭管盖,并始终在离心后检查离心管套管是否有溢出。 - 用无菌巴斯德吸管移除上层血浆层,随后用无菌巴斯德吸管小心收集单个核细胞层至新的50 mL离心管中。加入无血清RPMI培养基至PBMC沉淀中,使最终体积达到50 mL。轻轻颠倒混匀数次后,在室温下以500 x g离心5分钟。
- 小心弃去上清液,并通过在手指间轻弹管底重悬细胞沉淀。
- 为去除PBMC中的密度梯度介质残留,用无血清RPMI洗涤细胞2–3次,每次终体积为50 mL。在室温下以500 x g离心5分钟。反复洗涤直至细胞上清液变得透明。
- 弃去上清液,将细胞重悬于20 mL无血清RPMI培养基中。
- 通过台盼蓝染色法计数细胞,可使用血细胞计数板手动计数或使用自动细胞计数仪。将细胞悬液与台盼蓝按1:2或1:10比例稀释,例如在96孔板中混合50 µL细胞悬液与50 µL台盼蓝(用于血细胞计数板计数),或10 µL与10 µL(用于自动细胞计数),然后计数以获得每毫升活细胞数量。
警告:台盼蓝具有毒性,必须作为化学废弃物单独处理。
3. 单核细胞来源细胞的分化与极化
注意:单核细胞来源细胞的分化与极化采用我们先前建立的方案进行,该方案适用于M0、M1样和M2样细胞,以及完全极化的M1和M2型细胞25。为简化描述,此处仅介绍完全极化的M1和M2型巨噬细胞。
- 采用塑料贴壁法分离单核细胞。简言之,将 freshly isolated PBMCs 以适当浓度(例如,每孔 10 × 106 个 PBMCs)接种于 6 孔培养板中,每孔加入 2 mL 无血清 RPMI 培养基,于 37 °C、5% CO2 条件下孵育。
- 孵育 2–3 小时后,用移液器移除非贴壁细胞,并用 1 mL 无血清培养基洗涤各孔 3 次。贴壁细胞即为单核细胞,约占接种至每孔的总 PBMCs 的 10%,即每孔加入 10 × 106 个 PBMCs 可获得约 106 个单核细胞。
- 为诱导巨噬细胞分化,分别配制含 50 ng/mL GM-CSF(用于 M1 极化)或 M-CSF(用于 M2 极化)的工作液,每孔加入 2 mL RPMI 完全培养基。将细胞置于 37 °C、5% CO2 培养箱中培养 3 天。
- 第 3 天,小心从每孔上层移除 1 mL 培养基,并向每孔补充 1 mL 新鲜 RPMI 完全培养基,其中含有双倍浓度的 M-CSF 或 GM-CSF,以使孔内终浓度为 50 ng/mL。生长因子应以预先配制的 100 ng/mL/孔工作液形式添加。
- 第 6 天,在细胞分化的最后 18–20 小时加入不同刺激物,以获得完全极化且成熟的 M1 型(干扰素-γ;IFN-γ 和脂多糖;LPS(大肠杆菌 O55:B5))或 M2 型(白细胞介素 4;IL-4)巨噬细胞。对于 M1 极化,将 IFN-γ 和 LPS 溶于 RPMI 完全培养基中,每孔加入 50 µL,使细胞培养物中终浓度分别为 50 ng/mL IFN-γ 和 10 ng/mL LPS。对于 M2 极化,将 IL-4 溶于 RPMI 完全培养基中,每孔加入 50 µL,使细胞培养物中终浓度为 20 ng/mL。
- 为获得 M0 极化巨噬细胞的分化,仅使用 M-CSF 刺激细胞,不添加其他细胞因子(呈现类似 M2 的表型)25。
- 定期使用光学显微镜观察单核细胞来源的细胞培养物形态,以确认较小的单核细胞已分化为较大的巨噬细胞样细胞。同时监测 M1 与 M2 极化细胞之间可能存在的形态学差异,即 M1 细胞呈伸长和拉伸状,而 M2 细胞则更趋于圆形25。
- 第 7 天,将含有单核细胞来源细胞的培养板转移至 BSL-3 实验室,用于接种毒力 Mtb。
4. 结核分枝杆菌培养物的制备
注意:以下步骤必须在三级生物安全实验室(BSL-3)中进行。所有涉及毒力结核分枝杆菌(Mtb)的操作,均需穿戴防护服、呼吸防护装备以及耐乙醇手套。
- 解冻一支含有1 mL细菌等分试样的冻存管,并将其与9 mL TB完全培养基(1:10稀释)混合于一支50 mL带滤膜盖的离心管中。将悬浮液置于37 °C、5% CO2的培养箱中培养。
- 24小时后,在2,300 x g条件下离心细菌悬浮液10分钟,小心倾去上清液。将细菌沉淀用15–20 mL新鲜TB完全培养基重悬于一支新的50 mL带滤膜盖培养管中,并在37 °C、5% CO2条件下继续培养。每隔2–3天轻轻混匀管中沉降的细菌,以确保所有细菌细胞获得均匀的营养供应。
- 7–10天后,在转移至50 mL螺旋盖管前,通过反复吹吸充分混匀细菌悬浮液。
- 向50 mL管中加入35–40 mL无菌洗涤缓冲液,在2,300 x g条件下离心10分钟。重复洗涤一次。用移液器吸取1 mL无血清RPMI培养基将细菌沉淀重悬。
- 再加入9 mL无血清RPMI培养基,并在II级生物安全柜内于37 °C条件下超声处理细菌悬浮液5分钟,以破坏细菌团块。将离心管反复浸入水浴超声仪中3–4次,确保最大程度地分散细菌团块。使用置于生物安全柜内的分光光度计,在600 nm波长下测定1 mL细菌悬浮液的光密度(OD)。以无血清RPMI培养基作为空白对照进行调零。
- 使用以下公式计算菌落形成单位(CFU)数量:(OD + 0.155) / 0.161 = Y,然后 Y × 107 = Y × 106 CFU/mL。例如,当OD值为0.32时,细菌浓度为 (0.32 + 0.155) / 0.161 = 2.95,即 2.95 × 107 = 29.5 × 10⁶ CFU/mL。
5. 结核分枝杆菌感染单核细胞来源的细胞
注意:以下步骤必须在三级生物安全实验室(BSL-3)设施中进行。
- 在新的无菌50 mL离心管中,用无血清RPMI培养基重悬细菌沉淀,并调整细菌终浓度至约5 x 10⁶ CFU/mL
- 移除细胞培养基 含有单核细胞来源细胞的6孔板。每孔加入1 mL无血清RPMI培养基。每孔加入1 mL细菌悬液,使感染复数(MOI)为5:1,即5 × 10⁶ 每 10 个菌落形成单位(CFU)6 巨噬细胞以每孔2 mL接种,并在37 °C、5% CO₂条件下孵育4小时2.
- 感染后,用 1 mL 无菌洗涤缓冲液洗涤细胞 3 次,以去除细胞外细菌。倾斜培养板,从角落小心吸去全部洗涤缓冲液。重悬 将结核分枝杆菌感染的单核细胞来源细胞置于2 mL不含抗生素的RPMI完全培养基中,随后进行流式细胞术染色,或在流式细胞术检测前继续培养24小时(或其他时间点)。
6. 结核分枝杆菌感染的单核细胞来源细胞的流式细胞术染色
注意:以下步骤必须在三级生物安全实验室(BSL-3)中进行。流式细胞术染色可在96孔板中进行,而非离心管中。
- 通过在 37 °C 和 5% CO2 条件下,每孔加入 1 mL FACS 缓冲液孵育至少 30 分钟,使 6 孔板中的结核分枝杆菌(Mtb)感染细胞(及未感染的对照细胞)从孔壁上脱离。
- 轻轻吹打数次,确保细胞完全脱落。如有可能,通过显微镜确认细胞脱落情况。将每孔的细胞悬液转移至带螺旋盖的微量离心管中,在 200 x g 条件下离心 5 分钟。小心用移液器吸弃上清液。
- 用 FACS 缓冲液将每管中的细胞沉淀洗涤两次,每次在 200 x g 条件下离心 5 分钟。
- 将细胞(每管约 0.5 × 10⁶ 至 1 × 10⁶ 个细胞)与约 50 µL 荧光染料标记的抗人抗体混合物(包括 TLR2 (AF647)、CD206 (APC-Cy7)、CD163 (BV605)、CD80 (BV650)、CCR7 (BV711)、CD86 (BV786)、CD200R (PE)、CD64 (PE-Dazzle 594)、HLA-DR (PE-Cy5)(表 1))以及活力染料 Zombie-UV 混合,在 4 °C(冰箱中)避光孵育 30 分钟。
- 用 400 µL FACS 缓冲液将染色后的细胞洗涤两次,每次在 200 x g 条件下离心 5 分钟。
- 用 200 µL 固定缓冲液(现配)在室温避光条件下固定染色细胞 30 分钟,以确保分枝杆菌完全失活。
- 用 400 µL FACS 缓冲液将细胞洗涤两次,每次在 200 x g 条件下离心 5 分钟,以去除多余的固定液。
- 将固定后的细胞重悬于 400 µL FACS 缓冲液中,转移至新的 1 mL 微量离心管中,然后移出 BSL-3 实验室,在 BSL-2 条件下进行流式细胞术检测。样品采集前将染色细胞保存于 +4 ˚C。
注意:在将样品管移出 BSL-3 实验室前,需用 70% 乙醇喷洒管体。甲醛具有毒性(致癌性),必须在 II 级生物安全柜中操作。甲醛废液应作为单独的化学废物处理。
7. 结核分枝杆菌感染的单核细胞来源细胞的流式细胞术数据采集与分析
注意:步骤 7.1–7.2 应在上述流式细胞术染色之前完成,以避免细胞聚团以及串联染料解离的问题。 细胞固定后,对结核分枝杆菌感染和未感染细胞的样本采集应在一抗孵育后的4-10小时内进行。
- 在进行上述流式细胞术染色之前,使用补偿微珠(包括阳性和阴性)对染色方案中所列的每种荧光素偶联抗体(表1)的荧光信号进行补偿。
- 滴定抗体稀释度以优化人巨噬细胞染色,获得每种荧光素的最佳信号。
- 使用未染色细胞确定背景荧光水平,以便设定阴性细胞群的设门范围,从而能够观察到染色细胞(巨噬细胞具有较强的自发荧光)。
- 使用推荐的数据采集软件,在流式细胞仪上每样本至少采集50,000个细胞。
- 将以流式细胞术标准(FCS)3.1格式导出流式细胞仪的采集文件。
- 使用流式细胞术分析软件分析FCS文件。
- 根据前向散射光和侧向散射光(FSC和SSC)特征设门圈定巨噬细胞,并利用Zombie-UV活力染料通过活/死细胞设门排除死细胞。
- 在FITC通道中观察H37Rv-GFP感染的巨噬细胞。
- 确定所有标记物阳性染色细胞的频率以及几何平均荧光强度(MFI) (表1)。
8. 结核分枝杆菌感染的单核细胞来源细胞的免疫荧光染色
注意:结核分枝杆菌感染实验必须在三级生物安全实验室(BSL-3)中进行。
- 进行免疫染色时,将 2 × 10⁵ 个 PBMCs/孔接种于 500 μL 无血清 RPMI 培养基中,加入 8 孔板培养腔内,以获得每孔 2 × 10⁴ 个单核细胞。在单核细胞分化及 M1/M2 极化后,按上述方法进行结核分枝杆菌(Mtb)感染。Mtb 感染 24 小时后,使用固定液固定 30 分钟。固定后的玻片保存于 -20 ˚C 冰箱中,直至进一步分析。
- 用 200 µL PBS 洗涤单核细胞来源的细胞两次,每次 10 分钟。
- 在室温下用 200 µL 通透缓冲液处理细胞 5 分钟以进行细胞通透。
- 用 200 µL PBS 洗涤细胞三次,每次 5 分钟。
- 用 200 µL 洗涤缓冲液洗涤细胞两次,每次 5 分钟。
- 在室温下用 200 µL 封闭缓冲液封闭非特异性结合位点 30 分钟。
- 将一抗按 1:100 比例用染色缓冲液稀释,M1 细胞使用未标记的 CD64 抗体(克隆号:10.1),M2 细胞使用未标记的 CD163 抗体(多克隆抗体),室温孵育 2 小时。
- 随后用 200 µL 洗涤 缓冲液洗涤细胞三次,每次 10 分钟。
- 将荧光标记的二抗按 1:1,000 比例用染色缓冲液 稀释,M1 细胞使用抗小鼠 IgG-Alexa Fluor 594,M2 细胞使用抗兔 IgG-Alexa Fluor 594,室温避光孵育 1 小时。
- 用 200 µL 洗涤缓冲液洗涤细胞三次,每次 10 分钟。
- 移除腔室,每孔加入 约 20 μL DAPI 封片剂,并在每张玻片上加盖 1.5 mm 盖玻片。
- 用指甲油密封盖玻片边缘。
- 使用共聚焦显微镜成像,分别采用 486 nm 激光激发 GFP(绿色通道),402 nm 激光激发 DAPI(蓝色通道),560 nm 激光激发二抗(红色通道)。
结果
用于诱导单核细胞来源细胞极化为 M0(M2 样细胞)、M1(完全极化的 M1 细胞)和 M2(完全极化的 M2 细胞)的细胞因子刺激方案示意图如下所示 图1A,而M0、M1和M2细胞培养的代表性图像以及第0、3和7天的M1培养图像如图所示 图1B未感染的M0细胞用于演示基本的设门策略(图 2A)。首先,根据细胞的前向散射(FSC)和侧向散射(SSC)特性对髓系细胞(约85%)设门,包括体积较大且颗粒度较高的细胞,排除位于点图左下角、FSC和SSC信号均较低的小型碎片。在第二张图中,双联体(即细胞团块)被定义为面积增大但高度与单细胞相似的事件,并从后续分析中排除。因此,仅将FSC-面积与FSC-高度成比例的细胞(单细胞)纳入倾斜形状门内。接着,使用Zombie-UV活力染料标记死细胞胞质蛋白,以排除死细胞。如预期所示,未感染的活M0细胞在FITC通道中未显示Mtb-GFP表达。
接下来,我们将相同的设门策略应用于感染后4小时的未感染以及结核分枝杆菌(Mtb)感染的M1和M2型巨噬细胞(图2B,C)。在未感染的M1极化巨噬细胞的FSC/SSC设门中检测到两个亚群:一群细胞体积较小(FSC)但颗粒度较高(SSC),另一群则体积较大而颗粒度较低(图2B);而未感染的M2细胞主要设门区域则表现出更高的均一性(图2C)。M1和M2来源的单核细胞在感染Mtb后均出现向更高颗粒度和更小细胞体积的垂直偏移,这可能反映了因吞噬胞内Mtb细菌而导致细胞内部结构复杂性增加(图2B,C)。此外,活率染色显示,在感染复数(MOI)为5的条件下,Mtb感染的M1和M2细胞中细胞死亡率升高(17–22%),相比之下,未感染的M0细胞死亡率仅为99%(图2A-C),未感染的M1和M2细胞死亡率也较低(数据未显示)。代表性数据表明,在感染4小时后,M2细胞中Mtb-GFP表达(即Mtb感染率)显著高于M1细胞(M2为77% GFP阳性细胞,M1为19% GFP阳性细胞)(图2B,C)。在感染24小时后,M1和M2细胞中的Mtb-GFP表达率分别为43%和85%,提示M1细胞在感染Mtb后4至24小时期间GFP表达的增幅相对更高,M1与M2细胞在此期间GFP表达增幅分别为126%和10.4%。
为表征未感染的单核细胞来源细胞中M1/M2极化的效率,采用点图分析鉴定共表达CD64和CD86的M1细胞(CD64双阳性)+CD86+)以及对CD163和CD200R双阳性(CD163+CD200R+; 图3A,B)。M1/M2标志物的选择主要基于我们先前研究的结果25 而且来自其他研究26,27,28,29使用未染色的M1/M2细胞对应的设门来确定染色细胞的象限图3A)。这些标志物并非由M1或M2细胞专一性表达,但阳性细胞的比例以及表面表达强度存在差异。这一点在M1染色中尤为明显,其中约95%的M1细胞和79%的M2细胞为CD64阳性+CD86+,但 M1 亚群中的染色强度显著更高(图 3A)。27%的M1型细胞对M2型标志物CD200R呈阳性,仅有1%对CD163呈阳性,CD163双阳性细胞占0.5%+CD200R+ M1细胞与63% CD163+CD200R+ M2 细胞(图3A)。在结核分枝杆菌感染4小时后,CD200R阳性细胞的频率增加+ 在Mtb-GFP阳性M1极化细胞中观察到16%的细胞,而M2细胞中CD163的表达降低(图 3B)。热图显示 CD163 中 GFP 表达强度较高+CD200R+ M2细胞,以及CD64+CD86+ M2 亚群与相应的 M1 细胞亚群相比(图3B)。总体而言,相应M1和M2标志物表达水平的变化也在直方图中得以呈现 图 3C此外,还在CD64中观察到了Mtb-GFP细菌的荧光信号。+ M1 细胞和 CD163+ 通过共聚焦显微镜观察M2细胞,结果支持结核分枝杆菌在M2细胞内的摄取和/或生长较M1细胞增强(图3D).
为验证人工设门的结果,我们采用均匀流形近似与投影(Uniform Manifold Approximation and Projection, UMAP)进行降维分析。UMAP 分析显示,结核分枝杆菌感染 4 小时尚不足以影响巨噬细胞的极化状态,而感染 24 小时后则明显出现 M1 和 M2 型未感染细胞与感染细胞的独立聚类图4A). 未感染的M1巨噬细胞相较于M2巨噬细胞表现出更高水平的CD64、CD86、TLR2、HLA-DR和CCR7表达,而未感染的M2细胞则显著上调M2表型标志物CD163、CD200R、CD206和CD80图4B,C)。与人工设门结果一致,感染结核分枝杆菌24小时后,M2型细胞上的CD163、CD200R和CD206明显下调,而M1型细胞上的CD86和HLA-DR明显上调(图4B,C),这表明结核分枝杆菌(Mtb)能够调节巨噬细胞的极化。随后的Phenograph分析(图4D-F) 鉴定出24个大小不同的独特簇群,这些簇群在M1和M2未感染细胞以及结核分枝杆菌(Mtb)感染细胞中具有特异性分布,如UMAP图所示(图4D),饼图(图4E)和热图(图4F总之,这些结果表明,该方案在体外生成表型和功能多样化的M1和M2极化细胞方面具有良好的效率,且结核分枝杆菌感染可进一步调节这些细胞。
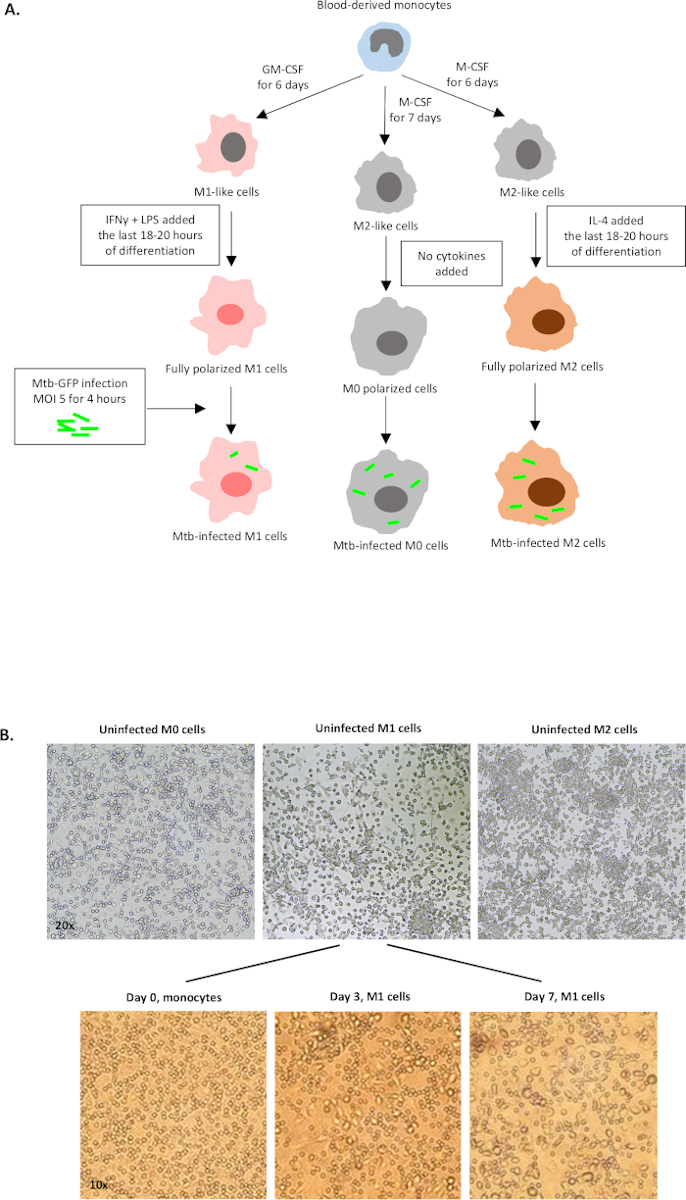
图1:人源髓系细胞体外分化与极化的示意图。(A)图中显示M0(类似M2)、M1(经典活化)和M2(替代性活化)细胞。从健康献血者获得的单核细胞根据实验方案使用不同细胞因子进行极化,并在分析前用GFP标记的结核分枝杆菌H37Rv菌株感染4小时,随后通过10色流式细胞术进行分析。通常情况下,M1极化细胞中的细菌数量少于M2极化细胞。(B)第7天时完全极化且未感染的M0、M1和M2细胞在6孔板中的显微图像,以及单核细胞向M1细胞分化的代表性图像(第0、3、7天)。放大倍数为20倍(上图)和10倍(下图)。注意,与更圆润的M0和M2细胞相比,M1细胞形态更细长、伸展(上图)。请点击此处查看该图的放大版本。

图 2:不同极化状态的髓系来源细胞的设门策略。代表性散点图显示(A)未感染 M0 巨噬细胞的前向散射光(FSC)与侧向散射光(SSC)特性。FSC-A/FSC-H 图显示根据面积和高度对手动设门的单细胞进行筛选。活细胞门排除了Zombie-UV(活力染料)阳性的细胞。活细胞内结核分枝杆菌(Mtb)通过FITC通道中观察到的GFP表达进行检测。(B)M1 巨噬细胞与(C)M2 巨噬细胞的设门结果,显示未感染细胞及感染后 4 小时和 24 小时的 Mtb 感染细胞的 FSC/SSC 散点图。请点击此处查看该图的高清版本。

图3:体外M1/M2极化方案的有效性。代表性点图及象限设门显示使用CD64和CD86(M1)或CD163和CD200R(M2)标记的M1和M2极化细胞亚群频率,分别在(A)未染色与染色的未感染细胞以及(B)结核分枝杆菌(Mtb)感染后4小时的染色细胞中进行分析。(B)中的点图展示了来自不同子门控的M1和M2极化巨噬细胞中GFP表达的荧光强度(热图)。(C) 显示一名代表性供体在Mtb感染4小时后的几何平均荧光强度(MFI)直方图。上图显示未感染的M1细胞(浅蓝色)和M2细胞(浅紫色)的MFI值,下图显示Mtb感染后的M1细胞(深蓝色)和M2细胞(深紫色)的MFI值。(D)展示未感染及Mtb感染的M1和M2极化细胞的代表性共聚焦图像。M1和M2细胞分别通过免疫荧光染色检测CD64和CD163的表达。阳性表面染色显示为红色,表达GFP的胞内细菌显示为绿色,DAPI染色的细胞核显示为蓝色。比例尺——10 µm。右侧图像的放大倍数为350倍。请点击此处查看此图的高清版本。
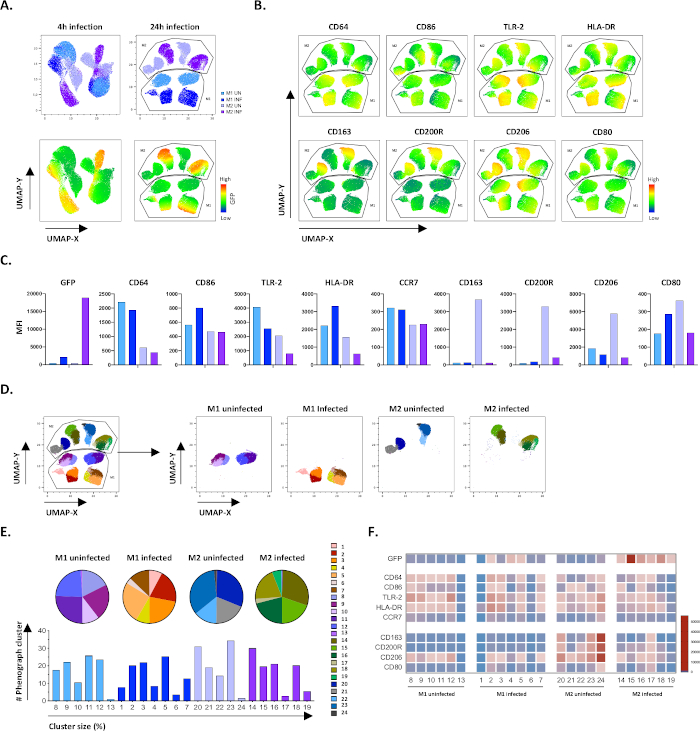
图4:通过均匀流形近似与投影(UMAP)进行降维分析,以及未感染和结核分枝杆菌(Mtb)感染的M1与M2细胞的Phenograph分析。(A)UMAP图通过合并来自两名代表性血液供体的未感染及Mtb感染M1与M2细胞培养物中4小时(左图)或24小时(右图)后共11000个活细胞生成。热图显示GFP表达情况(下层面板),用于区分未感染与Mtb感染细胞。(B-C)Mtb感染后24小时,未感染与Mtb感染M1及M2细胞中各标志物的平均荧光强度(MFI),以(B)热图或(C)柱状图形式展示。(D-F)Phenograph分析共识别出24个聚类,其在未感染与Mtb感染的M1及M2细胞培养物中分布不同。聚类8–13仅存在于未感染M1细胞中,聚类1–7仅存在于Mtb感染M1细胞中,聚类20–24仅存在于未感染M2细胞中,聚类14–19仅存在于Mtb感染M2细胞中。各Phenograph聚类中每个标志物的MFI显示于(F)。数据以未感染M1细胞(浅蓝色)和M2细胞(浅紫色),以及Mtb感染M1细胞(深蓝色)和M2细胞(深紫色)表示。请点击此处查看该图的放大版本。
表1:用于流式细胞术的抗体列表。
| 激光 | 滤光片 | 荧光染料 | 表型 | 功能 | 克隆 | 货号 | 公司 |
| 639 | 670/30 | AF647 | TLR2 | 病原体识别受体 | TL2.1 | 309714 | BioLegend |
| 639 | 780/60 | APC-Cy7 | CD206 | 甘露糖受体 | 15-2 | 321120 | BioLegend |
| 405 | 610/20 | BV605 | CD163 | 清道夫受体 | GHI/61 | 333616 | BioLegend |
| 405 | 670/30 | BV650 | CD80 | 共刺激分子 | 2D10 | 305227 | BioLegend |
| 405 | 710/50 | BV711 | CCR7 | 趋化因子受体 | G043H7 | 353228 | BioLegend |
| 405 | 780/60 | BV785 | CD86 | 共刺激分子 | IT2.2 | 305442 | BioLegend |
| 488 | 530/30 | GFP | Mtb | 胞内细菌 | |||
| 561 | 586/15 | PE | CD200R | 抑制性受体 | OX-108 | 329306 | BioLegend |
| 561 | 620/14 | PE/DAZZLE 594 | CD64 | IgG 的 Fc gamma 受体-I | 10.1 | 305032 | BioLegend |
| 561 | 661/20 | PE-Cy5 (PC5) | HLA-DR | MHC II 类分子 | L243 | 307608 | BioLegend |
| 355 | 450/50 | BUV395 | 活力染料 | 活/死细胞标记物 | Zombie UV | 423108 | Invitrogen |
讨论
本实验方案描述了将髓系来源细胞有效极化为M1或M2表型的方法,包括使用10色流式细胞术检测 panel 对GFP标记的结核分枝杆菌(Mtb)在不同巨噬细胞亚群中的可视化和深度表征。尽管结核病是一种古老的人类疾病,但目前尚无研究Mtb与巨噬细胞相互作用的金标准模型,且与淋巴细胞反应分析相比,巨噬细胞的多色流式细胞术分析可能更为复杂。目前可用于体外将人单核细胞分化为巨噬细胞的实验方案较少,且对所生成巨噬细胞类型的深入认知有限。建立一种基于稳定标志物组合的巨噬细胞极化基本方案及流式细胞术评估巨噬细胞活化状态的方法,有望促进此类表征,并为探索在不同条件下处理的极化细胞的其他特性提供机会。该方法适用于体外培养细胞的分析,也适用于临床样本中体内细胞的分析,即外周血单个核细胞(PBMC)以及来自体液(如支气管肺泡灌洗液)或匀浆组织的单细胞悬液。因此,从患者获得的单核细胞和巨噬细胞的分化和/或活化状态可与疾病转归相关联。已有报道显示,肺结核患者外周血中CD16+CD163+单核细胞数量扩增30。在特应性皮炎患者的炎症皮肤中也检测到CD163+细胞频率升高31。类似地,CD206+ M2样巨噬细胞被证明可抑制脂肪细胞组织微环境中细胞的增殖与分化32,并在急性髓系白血病(AML)患者的骨髓样本中富集29。在骨关节炎患者全血中,CD64(M1)与CD163(M2)细胞的比值升高与疾病严重程度相关33。另一项研究利用CD86(M1)和CD163(M2)表明,组织中高水平的M1表达与恶性脑肿瘤亚组患者的预后较差相关34。
该实验性M1/M2流式细胞术方案具有多个显著优势。该模型为研究对毒力型结核分枝杆菌(Mtb)感染的固有免疫应答提供了机会,并可通过在混合淋巴细胞反应(MLRs)中加入自体T细胞与M1或M2型巨噬细胞,进一步拓展用于适应性免疫应答的研究。该方案同样适用于药物筛选以及不同免疫调节剂和抗菌化合物的测试。此前,我们已利用该模型研究了维生素D和组蛋白去乙酰化酶抑制剂苯丁酸(phenylbutyrate)在Mtb感染后对髓系来源细胞的作用25,35。M1/M2流式细胞术还可用于评估经细胞培养上清液或患者血浆处理后巨噬细胞的活化状态。尽管在体内研究结核病与HIV或蠕虫感染的共病情况,或结核病与糖尿病共病情况可能存在挑战,但相对简单的M1/M2模型可能有助于在体外开展共病机制的研究。同样,该方案也可用于传播相关研究,以检测细胞中Mtb的感染能力,或评估单个M1/M2细胞的吞噬功能及抗原呈递能力。M1/M2流式细胞术在生物标志物研究和疫苗研究中也具有吸引力,可用于监测治疗过程中的疾病预后,以及评估靶向髓系来源细胞的治疗方法。重要的是,可将多种不同方法与流式细胞术平行应用,以同时评估巨噬细胞极化表型和功能应答,例如共聚焦显微镜(图3D)、实时PCR、蛋白质印迹(western blot)、多重检测、培养上清液中可溶性因子的ELISA检测,以及通过GFP表达(流式细胞术和共聚焦显微镜)和菌落形成单位(CFU)评估细胞内细菌的感染性和生长情况。使用Mtb-GFP菌株感染M1或M2细胞,还可实现从同一样本中分选出未感染细胞与Mtb感染细胞,用于单细胞RNA测序分析。
本方案 也存在一些局限性,包括技术和科学层面的缺点。使用来自人血供体的单核细胞来源巨噬细胞的不足之处在于,供体间的变异性通常较高,且这些细胞并非在人体组织的生理环境中极化。不同供体之间在M1/M2极化效率或结核分枝杆菌(Mtb)感染性方面可能存在较大差异,这可能导致实验内和实验间变异问题、统计效能降低,并需要纳入较多供体才能获得可靠结果。此外,外周血单个核细胞(PBMCs)中单核细胞的塑料培养板贴壁过程会导致每孔细胞数量因供体而异,最终可能造成任意的感染复数(MOI),从而影响巨噬细胞极化状态及Mtb感染后的细胞活力。方案中的关键步骤包括充分洗涤,以防止其他类型细胞污染培养体系,进而影响巨噬细胞极化。虽然过低的MOI可能模拟潜伏性结核感染,但过高的MOI则会导致细胞死亡,因此选择适当的MOI至关重要。此外,在细胞解离时,牢固贴壁的细胞可能难以完全回收,可能导致用于流式细胞术分析的特定巨噬细胞亚群出现偏差。流式细胞术分析中的一个关键步骤是正确使用微球补偿矩阵以及阴性对照,例如未染色细胞或FMO(Fluorescence Minus One,少一荧光)对照,以确保手动设门的准确性。
另一个局限性在于,单核细胞来源于血液而非局部组织微环境。人类结核病的特征是在结核分枝杆菌(Mtb)感染的组织中形成肉芽肿,因此结核病的免疫病理学应优先在局部组织部位进行研究。然而,在炎症或感染发生时,单核细胞会从外周血募集至肺部,并在炎症性细胞因子(如GM-CSF12)存在的情况下分化为巨噬细胞。重要的是,在体内组织的生理环境中,巨噬细胞极化状态可能具有高度异质性,包含多种M1样和M2样巨噬细胞群体的混合物及其不同比例,这些因素共同影响结核感染的结局36。我们此前已建立一种人源类器官肺组织模型,可用于在三维条件下研究巨噬细胞介导的结核病肉芽肿形成过程37。将现有的M1/M2极化方案与该肺组织模型相结合,可能有助于进一步研究实验性组织中结核肉芽肿的形成过程、效应功能以及M1/M2比例的变化。
该M1/M2流式细胞术方案可轻松扩展,以包含一组更全面的髓系标记物,用于评估与抑制性及炎症反应相关的特征。目前对抑制性免疫检查点分子(如PD-1、SIRP-α、IDO和精氨酸酶)具有广泛的研究兴趣,这些分子可调节巨噬细胞的反应38。在此背景下,髓系细胞的极化也可能涉及其他刺激因素,从而促进免疫调节性巨噬细胞(Mreg)或髓源性抑制细胞(MDSC)的形成,后者已被证明参与包括结核病在内的多种疾病过程38。更高级的M1/M2/Mreg巨噬细胞亚群流式细胞术检测方案还可包括细胞内细胞因子/趋化因子(如IL-1β、TNF-α、IL-10和MCP-1)或其他可溶性因子或效应分子(如诱导型一氧化氮合酶(iNOS)和抗菌肽)的染色。这将有助于研究多功能性巨噬细胞反应,类似于T细胞中已有大量报道的研究模式39。
目前,流式细胞术染色方案可包含多达30至40种颜色,能够同时对多种细胞亚群和分子进行免疫表型分析。本M1/M2流式细胞术方案的基本实验设计可作为通用框架,适用于大多数新旧流式细胞仪,并可根据个体需求进行扩展和调整,包括在BSL-3环境中操作高致病性结核分枝杆菌(Mtb)所带来的挑战。如今,新版流式细胞术软件中已提供UMAP等降维分析技术,可对单细胞研究中产生的大量参数进行分析,这对于高维数据的可视化和解读至关重要40。未来几年,流式细胞术技术有望持续进步,包括多参数表型分析与现代细胞分选技术的结合,本方案在多种基于巨噬细胞的结核分枝杆菌感染实验中均可能具有重要应用价值。
披露
作者无任何利益冲突需要披露。
致谢
感谢瑞典公共卫生局的同事Matilda Svensson和Solomon Ghebremichael在BSL-3实验室中提供的协助。
本工作获得了瑞典心脏与肺基金会(HLF)(SB 获资助编号 2019-0299 和 2019-0302)、瑞典研究理事会(VR)(SB 获资助编号 2014-02592、2019-01744 和 2019-04720)、预防抗生素耐药性基金会(Resist)、卡罗林斯卡 Institutet 基金会以及 KID 项目(为 Marco Loreti 提供博士教育部分经费)的资助。ML 获得了瑞典儿童癌症基金会(TJ2018-0128 和 PR2019-0100)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 8孔板载玻片 | Lab-Tek | 154534 | |
| BD Comp bead plus | BD | 560497 | |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | |
| DAPI封片剂 | Vector Laboratories | H-1200-10 | |
| EDTA (0.5 M) | 卡罗林斯卡大学医院,胡丁厄 | N/A | |
| Falcon 6孔平底培养板 | Corning Life Sciences | 353046 | |
| 胎牛血清 (FBS) | Sigma-Aldrich | F7524 | |
| 甲醛 | Sigma-Aldrich | F8775 | |
| 甘油 (70%) | 卡罗林斯卡大学医院,胡丁厄 | N/A | |
| GM-CSF | Peprotech | 300-03 | |
| 山羊抗小鼠IgG Alexa Fluor 594二抗 | Invitrogen | R37121 | CD64二抗 |
| 山羊抗兔IgG Alexa Fluor 594二抗 | Invitrogen | A-11037 | CD163二抗 |
| HEPES | GE Healthcare Life Sciences | SH30237.01 | |
| IFN-γ | Peprotech | 300-02 | |
| IL-4 | Peprotech | 200-04 | |
| L-谷氨酰胺 | GE Healthcare Life Sciences | SH30034.01 | |
| LPS (大肠杆菌 O55:B5) | Sigma-Aldrich | L6529 | |
| Lymphoprep | Alere Technologies AS | 11508545 | |
| M-CSF | Peprotech | 300-25 | |
| Middle Brook 7H10 琼脂平板 | 卡罗林斯卡大学医院,胡丁厄 | N/A | |
| Middle Brook 7H9 培养基 | 卡罗林斯卡大学医院,胡丁厄 | N/A | |
| 小鼠抗人CD64一抗 | Bio-Rad | MCA756G | 克隆号:10.1 |
| 丙酮酸钠 | GE Healthcare Life Sciences | SH300239.01 | |
| 正常山羊血清 | Jackson ImmunoResearch | 005-000-121 | |
| 兔抗人CD163一抗 | GeneTex | GTX81526 | 多克隆 |
| RPMI 1640 | Life Technologies Corporation | SH30096.01 | |
| Triton X-100 | Sigma-Aldrich | X-100 | |
| TubeSpin生物反应器管 | TPP Techno Plastic Products AG | 87050 | |
| Tween-20 | Sigma-Aldrich | P9416 | |
| Tween-80 | Sigma-Aldrich | P4780 |
参考文献
- Sica, A., Mantovani, A. Macrophage plasticity and polarization: in vivo veritas. Journal of Clinical Investigation. 122 (3), 787-795 (2012).
- Cassetta, L., Cassol, E., Poli, G. Macrophage polarization in health and disease. Scientific World Journal. 11, 2391-2402 (2011).
- Mills, C. D., Kincaid, K., Alt, J. M., Heilman, M. J., Hill, A. M. M-1/M-2 macrophages and the Th1/Th2 paradigm. Journal of Immunology. 164 (12), 6166-6173 (2000).
- Martinez, F. O., Gordon, S. The M1 and M2 paradigm of macrophage activation: time for reassessment. F1000 Prime Reports. 6, 13(2014).
- Atri, C., Guerfali, F. Z., Laouini, D. Role of human macrophage polarization in inflammation during infectious diseases. International Journal of Molecular Sciences. 19 (6), (2018).
- Flynn, J. L., Gideon, H. P., Mattila, J. T., Lin, P. L. Immunology studies in non-human primate models of tuberculosis. Immunological Reviews. 264 (1), 60-73 (2015).
- Mosser, D. M., Edwards, J. P. Exploring the full spectrum of macrophage activation. Nature Reviews Immunology. 8 (12), 958-969 (2008).
- Fleetwood, A. J., Lawrence, T., Hamilton, J. A., Cook, A. D. Granulocyte-macrophage colony-stimulating factor (CSF) and macrophage CSF-dependent macrophage phenotypes display differences in cytokine profiles and transcription factor activities: implications for CSF blockade in inflammation. Journal of Immunology. 178 (8), 5245-5252 (2007).
- Nathan, C. F., Murray, H. W., Wiebe, M. E., Rubin, B. Y. Identification of interferon-gamma as the lymphokine that activates human macrophage oxidative metabolism and antimicrobial activity. Journal of Experimental Medicine. 158 (3), 670-689 (1983).
- Leidi, M., et al. M2 macrophages phagocytose rituximab-opsonized leukemic targets more efficiently than m1 cells in vitro. Journal of Immunology. 182 (7), 4415-4422 (2009).
- Stein, M., Keshav, S., Harris, N., Gordon, S. Interleukin 4 potently enhances murine macrophage mannose receptor activity: a marker of alternative immunologic macrophage activation. Journal of Experimental Medicine. 176 (1), 287-292 (1992).
- Italiani, P., Boraschi, D. From Monocytes to M1/M2 macrophages: Phenotypical vs. functional differentiation. Frontiers in Immunology. 5, 514(2014).
- Verreck, F. A., et al. Human IL-23-producing type 1 macrophages promote but IL-10-producing type 2 macrophages subvert immunity to (myco)bacteria. Proceedings of the National Academy of Sciences. 101 (13), 4560-4565 (2004).
- Redente, E. F., et al. Differential polarization of alveolar macrophages and bone marrow-derived monocytes following chemically and pathogen-induced chronic lung inflammation. Journal of Leukocyte Biology. 88 (1), 159-168 (2010).
- Refai, A., Gritli, S., Barbouche, M. R., Essafi, M. Mycobacterium tuberculosis virulent factor ESAT-6 drives macrophage differentiation toward the pro-inflammatory M1 phenotype and subsequently switches it to the anti-inflammatory M2 phenotype. Frontiers in Cellular and Infection Microbiology. 8, 327(2018).
- Kahnert, A., et al. Alternative activation deprives macrophages of a coordinated defense program to Mycobacterium tuberculosis. European Journal of Immunology. 36 (3), 631-647 (2006).
- Marino, S., et al. Macrophage polarization drives granuloma outcome during Mycobacterium tuberculosis infection. Infection and Immunity. 83 (1), 324-338 (2015).
- Erbel, C., et al. An in vitro model to study heterogeneity of human macrophage differentiation and polarization. Journal of Visualized Experiments. (76), e50332(2013).
- Lee, C. Z. W., Kozaki, T., Ginhoux, F. Publisher Correction: Studying tissue macrophages in vitro: are iPSC-derived cells the answer. Nature Reviews Immunology. 18 (11), 726(2018).
- Ying, W., Cheruku, P. S., Bazer, F. W., Safe, S. H., Zhou, B. Investigation of macrophage polarization using bone marrow derived macrophages. Journal of Visualized Experiments. (76), e50323(2013).
- Van den Bossche, J., Baardman, J., de Winther, M. P. Metabolic characterization of polarized M1 and M2 bone marrow-derived macrophages using real-time extracellular flux analysis. Journal of Visualized Experiments. (105), e53424(2015).
- McKinnon, K. M. Flow Cytometry: An Overview. Current Protocols in Immunology. 120, 1-11 (2018).
- Njoroge, J. M., et al. Characterization of viable autofluorescent macrophages among cultured peripheral blood mononuclear cells. Cytometry. 44 (1), 38-44 (2001).
- Li, F., et al. Autofluorescence contributes to false-positive intracellular Foxp3 staining in macrophages: a lesson learned from flow cytometry. Journal of Immunological Methods. 386 (1-2), 101-107 (2012).
- Rao Muvva, J., Parasa, V. R., Lerm, M., Svensson, M., Brighenti, S. Polarization of human monocyte-derived cells with vitamin D promotes control of Mycobacterium tuberculosis infection. Frontiers in Immunology. 10, 3157(2019).
- Tarique, A. A., et al. functional, and plasticity features of classical and alternatively activated human macrophages. American Journal of Respiratory Cell and Molecular Biology. 53 (5), 676-688 (2015).
- Hristodorov, D., et al. Targeting CD64 mediates elimination of M1 but not M2 macrophages in vitro and in cutaneous inflammation in mice and patient biopsies. MAbs. 7 (5), 853-862 (2015).
- Jaguin, M., Houlbert, N., Fardel, O., Lecureur, V. Polarization profiles of human M-CSF-generated macrophages and comparison of M1-markers in classically activated macrophages from GM-CSF and M-CSF origin. Cellular Immunology. 281 (1), 51-61 (2013).
- Xu, Z. J., et al. The M2 macrophage marker CD206: a novel prognostic indicator for acute myeloid leukemia. Oncoimmunology. 9 (1), 1683347(2020).
- Liu, Q., et al. Differential expression and predictive value of monocyte scavenger receptor CD163 in populations with different tuberculosis infection statuses. BMC Infectious Diseases. 19 (1), 1006(2019).
- Sugaya, M., et al. Association of the numbers of CD163(+) cells in lesional skin and serum levels of soluble CD163 with disease progression of cutaneous T cell lymphoma. Journal of Dermatological Science. 68 (1), 45-51 (2012).
- Nawaz, A., et al. CD206(+) M2-like macrophages regulate systemic glucose metabolism by inhibiting proliferation of adipocyte progenitors. Nature Communications. 8 (1), 286(2017).
- Liu, B., Zhang, M., Zhao, J., Zheng, M., Yang, H. Imbalance of M1/M2 macrophages is linked to severity level of knee osteoarthritis. Experimental and Therapeutic Medicine. 16 (6), 5009-5014 (2018).
- Lee, C., et al. M1 macrophage recruitment correlates with worse outcome in SHH Medulloblastomas. BMC Cancer. 18 (1), 535(2018).
- Rekha, R. S., et al. Phenylbutyrate induces LL-37-dependent autophagy and intracellular killing of Mycobacterium tuberculosis in human macrophages. Autophagy. 11 (9), 1688-1699 (2015).
- Mattila, J. T., et al. Microenvironments in tuberculous granulomas are delineated by distinct populations of macrophage subsets and expression of nitric oxide synthase and arginase isoforms. Journal of Immunology. 191 (2), 773-784 (2013).
- Braian, C., Svensson, M., Brighenti, S., Lerm, M., Parasa, V. R. A 3D Human Lung Tissue Model for Functional Studies on Mycobacterium tuberculosis Infection. Journal of Visualized Experiments. (104), e53084(2015).
- Brighenti, S., Joosten, S. A. Friends and foes of tuberculosis: modulation of protective immunity. Journal of Internal Medicine. , 12778(2018).
- Chattopadhyay, P. K., Roederer, M. Good cell, bad cell: flow cytometry reveals T-cell subsets important in HIV disease. Cytometry Part A. 77 (7), 614-622 (2010).
- Becht, E., et al. Dimensionality reduction for visualizing single-cell data using UMAP. Nature Biotechnology. 37, 38-44 (2019).
重印与许可
勘误
Formal Correction: Erratum: Polarization of M1 and M2 Human Monocyte-Derived Cells and Analysis with Flow Cytometry upon Mycobacterium tuberculosis Infection
Posted by JoVE Editors on 10/14/2020. Citeable Link.
An erratum was issued for: Polarization of M1 and M2 Human Monocyte-Derived Cells and Analysis with Flow Cytometry upon Mycobacterium tuberculosis Infection. Author and affiliation information was updated.
The author and affiliation information was updated from:
Akhirunnesa Mily1, Sadaf Kalsum1, Marco Giulio Loreti1, Rokeya Sultana Rekha2, Jagadeeswara Rao Muvva1, Magda Lourda1,3, Susanna Brighenti1
1Center for Infectious Medicine (CIM), Department of Medicine Huddinge, ANA Futura, Karolinska Institutet
2Clinical Microbiology, Department of Laboratory Medicine (Labmed), ANA Futura, Karolinska Institutet
3Childhood Cancer Research Unit, Department of Women's and Children's Health, Karolinska Institutet
to:
Akhirunnesa Mily1,2, Sadaf Kalsum1, Marco Giulio Loreti1, Rokeya Sultana Rekha3, Jagadeeswara Rao Muvva1, Magda Lourda1,4, Susanna Brighenti1
1Center for Infectious Medicine (CIM), Department of Medicine Huddinge, ANA Futura, Karolinska Institutet
2Infectious Diseases Division, International Centre for Diarrhoeal Disease Research, Bangladesh
3Clinical Microbiology, Department of Laboratory Medicine (Labmed), ANA Futura, Karolinska Institutet
4Childhood Cancer Research Unit, Department of Women's and Children's Health, Karolinska Institutet
