本文介绍了一种荧光成像方法的实验方案,即多重免疫荧光细胞检测法检测DNA、RNA和蛋白质(MICDDRP),该方法能够同时在单细胞水平上以荧光方式可视化不同种类和链型的病毒蛋白及其核酸。该方法可广泛应用于多种研究体系。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
单细胞多重荧光成像技术用于可视化病毒核酸与蛋白质并监测HIV、HTLV、HBV、HCV、寨卡病毒和流感病毒感染
* These authors contributed equally
本文内容
摘要
摘要
由于缺乏能够灵敏且同时标记病毒核酸和蛋白质的稳健原位杂交(ISH)技术,病毒动态复制与组装过程的捕捉一直受到阻碍。传统的DNA荧光原位杂交(FISH)方法通常无法与免疫染色兼容。因此,我们开发了一种成像方法——MICDDRP(multiplex immunofluorescent cell-based detection of DNA, RNA and protein,基于细胞的多重免疫荧光检测DNA、RNA和蛋白质),可实现DNA、RNA和蛋白质在单细胞水平上的同时可视化。与传统的DNA FISH相比,MICDDRP采用分支DNA(bDNA)ISH技术,显著提高了寡核苷酸探针的灵敏度和检测能力。对MICDDRP进行少量改进后,即可在检测不同链型(RNA或DNA)病毒核酸的同时,对病毒蛋白进行成像。我们已将这些方案应用于研究多种病毒病原体的生命周期,包括人类免疫缺陷病毒(HIV)-1、人类T细胞白血病病毒(HTLV)-1、乙型肝炎病毒(HBV)、丙型肝炎病毒(HCV)、寨卡病毒(ZKV)和甲型流感病毒(IAV)。我们证明了该方法能够高效地标记多种不同病毒的核酸和蛋白质。这些研究有助于加深对多种病毒系统机制的理解,同时为在广泛的细胞系统中开展DNA、RNA和蛋白质的多重荧光成像提供了可借鉴的模板。
引言
尽管已有数千种商用抗体可用于通过传统的免疫染色方法特异性地标记蛋白质,且可通过基因工程将融合蛋白与光优化的荧光标签结合,以在样品中同时追踪多种蛋白质1,但蛋白质的显微成像通常难以与传统的DNA荧光原位杂交(FISH)兼容2。由于基于荧光的方法在同时可视化DNA、RNA和蛋白质方面存在技术局限性,阻碍了对病毒复制过程的深入理解。在感染过程中同时追踪病毒核酸和蛋白质,可使病毒学家直观观察病毒复制与组装背后的基本生物学过程3,4,5,6。
我们开发了一种成像方法,即基于细胞的多重免疫荧光DNA、RNA和蛋白质检测法(multiplex immunofluorescent cell-based detection of DNA, RNA, and Protein, MICDDRP)3,该方法利用支链DNA(bDNA)原位技术以提高核酸检测的灵敏度7,8,9。此外,该方法采用成对探针以增强特异性。bDNA序列特异性探针通过支链预扩增子和扩增子DNA产生强而局部化的信号,相较于以往依赖靶向DNA重复区域的杂交方法具有明显改进9。在临床背景下,受感染的细胞通常不含大量病毒遗传物质,因此亟需一种在诊断环境中可灵敏检测荧光标记核酸的方法。通过RNAscope7和ViewRNA10等技术实现的bDNA商业化已填补了这一空白。bDNA荧光成像的高灵敏度在细胞生物学中也具有重要应用价值,可实现对细胞培养模型中稀有核酸种类的检测。灵敏度的极大提升使基于bDNA的成像方法适用于病毒研究。然而,这些方法的一个潜在局限在于其主要聚焦于RNA或RNA与蛋白质的可视化。所有正在复制的细胞以及许多病毒均具有DNA基因组,或在其复制周期中形成DNA,因此能够同时成像RNA、DNA及蛋白质的方法尤为理想。
在MICDDRP方案中,我们采用经改进的RNAscope方法进行分支DNA荧光原位杂交(bDNA FISH),以检测病毒核酸7。该方案的主要改进之一是在化学固定后优化蛋白酶处理步骤。蛋白酶处理有助于去除与核酸结合的蛋白质,从而提高探针的杂交效率。蛋白酶处理后,样品与分支寡核苷酸探针进行孵育。应用bDNA探针后,样品经过洗涤,随后与信号预扩增器和扩增DNA进行孵育。多重原位杂交(ISH),即对多个基因靶标进行标记,需要使用不同荧光通道的靶标探针以实现光谱区分7。在与DNA扩增器孵育后,接着进行免疫荧光(IF)染色。
bDNA ISH 通过扩增靶标特异性信号来提高信噪比,同时降低非特异性杂交事件引起的背景噪声7,11。靶标探针的设计使用公开可用的软件程序,这些程序可预测非特异性杂交事件的概率,并计算熔解温度(Tm探针-靶标的杂交量7,11靶探针包含一段18至25个碱基、与靶DNA/RNA序列互补的区域,一个间隔序列,以及一段14个碱基的尾部序列。一对靶探针各自带有不同的尾部序列,可杂交至目标区域(跨度约50个碱基)。这两个尾部序列共同形成预扩增探针的杂交位点;预扩增探针含有20个结合位点用于结合扩增探针,而扩增探针 additionally 含有20个结合位点用于结合标记探针。例如,在核酸分子上一个一干碱基(kb)的区域由20对探针靶向,从而形成一个分子支架,用于依次与预扩增探针、扩增探针和标记探针进行杂交。因此,每条核酸分子理论上可产生8000个荧光标记信号,实现单分子检测,并显著优于传统的FISH方法 靶探针,预扩增探针,扩增探针,标记探针,荧光原位杂交,FISH,单分子检测,核酸杂交,信号放大,探针设计7 (参见 图1A (有关bDNA信号扩增的示意图)。为建立多重ISH探针体系,每种靶向探针必须位于不同的颜色通道(C1、C2或C3)。这些具有不同颜色通道的靶向探针对应不同的14碱基尾部序列。这些尾部序列可结合携带不同荧光探针的特异性信号放大器,从而实现多个靶标的便捷光谱区分。在本实验方案中, 表4 在 步骤9, 提供了有关荧光标记靶向探针的进一步信息。此外, 图2 和 图3 提供我们选择合适扩增子4-FL(A、B或C)(荧光探针)的示例 & 最终杂交步骤)以实现对HIV-1和HTLV-1感染后多种病毒核酸靶标的特异性荧光标记。
我们已展示了同时荧光可视化RNA、DNA和蛋白质的多种应用,以高时空分辨率观察病毒复制的关键阶段3,4,5。例如,对单个细胞中病毒RNA、细胞质和细胞核DNA以及蛋白质的同时可视化,使我们能够观察HIV-1感染过程中的关键事件,包括在前病毒DNA进入细胞核并整合之前,追踪含有RNA的核心在细胞质中的动态3。此外,我们已将MICDDRP技术应用于表征宿主因子和药物处理对病毒感染与复制的影响4,5。在Ukah等人的研究中,我们追踪了不同潜伏期逆转剂处理的潜伏细胞模型中HIV-1转录的再激活过程,以实现对HIV转录及潜伏逆转的可视化4。此外,MICDDRP还可用于可视化由小分子处理或宿主因子限制所引起的抗病毒抑制相关的表型变化。为验证本方法的稳健性和广泛适用性,我们已证明可通过修改实验方案,高效标记病毒核酸,不仅可用于追踪人类免疫缺陷病毒(HIV)-1的感染,还可用于人类T细胞白血病病毒(HTLV)-1、乙型肝炎病毒(HBV)、丙型肝炎病毒(HCV)、寨卡病毒(ZIKV)和甲型流感病毒(IAV)的感染。由于HIV-1生命周期中包含病毒DNA和RNA两种核酸形式,我们主要基于HIV-1的复制动力学对MICDDRP进行了优化。然而,我们还进一步证明,该方法可用于追踪ZIKV、IAV、HBV和HCV等病毒中正义(+)链和/或反义(-)链病毒RNA转录本的合成,从而监测病毒的转录与复制过程3,4,5,6。这些研究旨在加深对多种病毒过程机制的理解,并为在广泛的细胞模型中应用该荧光成像技术提供指导。
访问受限。请登录或开始试用以查看此内容。
方案
1. 种子细胞(悬浮) 与 贴壁细胞)置于盖玻片或腔室载玻片上(本方案采用盖玻片)。
- 悬浮细胞的接种
- 通过以下步骤制备多聚赖氨酸(PDL)包被的盖玻片(有助于悬浮细胞贴附于盖玻片):首先将盖玻片在乙醇(EtOH)中孵育5分钟(以灭菌并去除残留物),然后在磷酸盐缓冲液(PBS)中洗涤2次,再将盖玻片在PDL(20 µg/mL)中室温(RT)孵育30分钟(min)。
- 去除PDL溶液,并用PBS洗涤2次。收集细胞(根据所需成像条件预先感染或处理过的细胞),离心沉淀后重悬于50 µL PBS中,细胞密度为106个/50 µL。将50 µL细胞悬液滴加至玻璃盖玻片(PDL包被)上,室温孵育30 min。
- 贴壁细胞的接种
- 将细胞培养于置于6孔板中的无菌盖玻片上,并用病毒颗粒感染细胞或加入目标化合物处理。在进行成像实验样品制备前,使细胞生长至50–70%融合度。
2. 细胞固定:用于在荧光成像研究中保存细胞形态
注意:细胞固定前,将 4% PFA 和 PBS 置于室温下至少 30 分钟。
- 吸弃细胞培养基,用 PBS 洗涤盖玻片上的细胞 3 次,然后用 4% 多聚甲醛(PFA)固定细胞 30 分钟。吸弃 PFA,再用 PBS 洗涤细胞 2 次。
注意:若实验人员希望在另一天继续实验,此时可将细胞脱水并储存。固定后的细胞可在储存前用乙醇(EtOH)进行脱水处理。- 细胞固定后,吸除 PBS,加入 500 µL 50% 乙醇(v/v,溶于水)。室温孵育 5 分钟。
- 吸除 50% 乙醇,加入 500 µL 70% 乙醇。室温孵育 5 分钟。
- 吸除 70% 乙醇,加入 500 µL 100% 乙醇。室温孵育 5 分钟。
- 吸除 100% 乙醇,更换为新鲜的 100% 乙醇。
注意:脱水后的细胞可在 -20 °C 下保存长达 6 个月。储存前需用封口膜或 Parafilm 密封培养板,以防止乙醇挥发。 - 将细胞重新水化,以便进行多重荧光标记(细胞/病毒)。
- 吸除 100% 乙醇,加入 500 µL 70% 乙醇。室温孵育 2 分钟。
注意:切勿让细胞在任何时刻干燥。始终使用足量溶液以完全浸没所有细胞。 - 吸除 70% 乙醇,加入 500 µL 50% 乙醇。室温孵育 2 分钟。
- 吸除 50% 乙醇,加入 1× PBS。
注意:在进行蛋白酶处理(步骤 4)和靶标探针应用(步骤 5)之前,应提前配制好蛋白酶稀释液、杂交探针和洗涤缓冲液。各试剂的详细配制说明将在相应步骤开始时提供。
| 试剂 | 其他说明 |
| 蛋白酶溶液 | 用1X PBS配制 |
| 靶标寡核苷酸探针 | 用杂交缓冲液稀释 |
| 洗涤缓冲液 | 靶标杂交步骤后的洗涤 |
| 杂交缓冲液 | 配方见表3 |
表1:MICDDRP方案中的主要试剂。
3. 细胞通透化:增加大分子(抗体、核酸杂交探针)进入细胞及细胞器的通路
- 去除细胞固定或复水后的一次性 PBS,加入 500 µL 含 0.1% (v/v) Tween-20 的 1× PBS。室温孵育 10 分钟。逐次更换。用 500 µL 1× PBS 洗涤一次,然后加入新鲜的 1× PBS。
4. 盖玻片固定 置于载玻片上 蛋白酶处理 去除固定后的病毒/细胞核酸中的核酸结合蛋白,以提高杂交效率
注意:在细胞通透化过程中配制稀释的蛋白酶III(试剂具体信息见材料表)溶液。在通透化前,将蛋白酶置于室温平衡10分钟。
- 在已灭菌的载玻片上滴加少量指甲油。待其背面(无细胞层一侧)干燥后,将盖玻片边缘置于指甲油液滴上,使附着有细胞的一侧朝上。在固定好的盖玻片上滴加数滴 PBS,以防止干燥。
- 使用疏水屏障笔(可防止试剂扩散、使试剂局限于细胞区域的防水笔)在盖玻片边缘周围画一圈(距离盖玻片约 3 mm),标记出已粘附于载玻片上的盖玻片轮廓。
- 用 1× PBS 稀释蛋白酶 III(每张盖玻片 100 µL)。
注意:蛋白酶的浓度可能需要根据细胞类型、探针或靶核酸的不同,通过经验性优化进行调整(参见讨论部分)。在多种病毒系统中实现最高效的 RNA/DNA 标记时,我们发现下表表 2中列出的稀释比例效果良好,稀释范围为(1 至 2)–(1 至 15)(蛋白酶 : 1× PBS)。
| 探针靶标 | 蛋白酶在1X PBS中的稀释比例(蛋白酶III : 1X PBS) |
| HIV-1 DNA/RNA | 1 至 5 |
| HTLV-1 DNA/RNA | 1 至 5 |
| HBV pgRNA 和总 HBV RNA | 1 至 15 |
| IAV RNA | 1 至 15 |
| ZIKV RNA | 1 至 2 |
表2:病毒核酸杂交用PBS中蛋白酶III的稀释液。
- 固定后倾去盖玻片上的1× PBS,并加入稀释的蛋白酶III。
- 在加湿的烘箱中40 °C孵育15分钟。
- 倾去蛋白酶溶液,将切片浸入1× PBS中,在室温下用摇床振荡洗涤2分钟。用新的1× PBS重复洗涤一次。
- 对于仅检测DNA的样本,用无核酸酶水洗涤三次,每次2分钟,随后在37 °C下用PBS稀释的5 mg/mL RNase A溶液孵育30分钟。
- 倾去RNase A溶液,用超纯水洗涤三次,每次2分钟。继续进行目标探针的原位杂交(ISH)。
注意:杂交缓冲液可提高病毒DNA(vDNA)的检测效果,且不影响本文所示结果中病毒RNA(vRNA)的染色效率(代表性结果)。将DNA通道1(C1)探针与杂交探针按1:1比例稀释。将RNA通道2(C2)和通道3(C3)探针用杂交缓冲液稀释。本成像研究中使用的C2和C3探针为50倍浓缩液(1:50;探针与杂交缓冲液的比例)。
- 按照以下逐步操作,在无核酸酶水中配制杂交缓冲液:
- 在15 mL离心管中加入700 µL无核酸酶水、300 µL 50%(质量/体积(w/v))硫酸葡聚糖、300 µL 5 M NaCl、125 µL 200 mM柠檬酸钠(pH 6.2)和375 mg(粉末)碳酸亚乙酯。
- 使用涡旋振荡器充分混匀,使碳酸亚乙酯完全溶解(确保所有粉末溶解,溶液澄清)。
- 加入25 µL 10%(体积/体积(v/v))Tween-20,并用无核酸酶水补足至2.5 mL(2×溶液)。
注意:本处提供的杂交缓冲液配方详见下方表3。该溶液可稳定保存一周。确保Tween-20去垢剂充分混匀,同时注意避免产生气泡。
| 试剂 | 储存浓度 | 附加说明 |
| 无核酸酶水 | NA | |
| 硫酸葡聚糖 | 50% (w/v) | 非常黏稠 |
| 氯化钠 | 5 M | |
| 柠檬酸钠 (pH 6.2) | 200 mM | 4 °C 保存 |
| 碳酸乙烯酯 | NA | 粉末 |
| 吐温-20 | 10% (v/v) |
表3:杂交缓冲液试剂列表。
5. 与DNA/RNA靶标杂交探针孵育:靶标寡核苷酸探针结合至目的区域,形成分子支架,供预扩增子、扩增子及荧光探针结合。
注意:若未包含 RNase 处理步骤,在细胞通透化期间将 DNA/RNA 探针于 40 °C 预热 10 分钟,随后冷却至室温至少 10 分钟。若在目标探针杂交前需要进行 RNase 处理或其他样品处理,则相应地预热探针。探针加热后,对 C2 和 C3 探针进行短暂离心,并用杂交缓冲液稀释。稀释后的 C2 和 C3 探针可短暂预热。将 50x 洗涤缓冲液(详见材料表)于 40 °C 加热 10–20 分钟,并用分子生物学级水稀释至 1x。
- 在加入杂交探针之前,将200 µL杂交缓冲液于67 °C孵育10分钟。用杂交缓冲液(配方见表2)稀释探针,每盖玻片加入50 µL。
- 在湿润的烘箱中40 °C孵育2小时(h)。倾去探针溶液,将载玻片浸入1×洗涤缓冲液中,在室温下轻轻摇动培养皿洗涤2分钟。更换新的1×洗涤缓冲液重复洗涤一次。
6. 扩增子(Amp)1-FL 杂交:加入与目标 DNA/RNA 探针尾部序列互补的预扩增子(步骤 5)
注意:使用前扩增子应置于室温。使用前30分钟将各扩增子从冰箱中取出,置于室温台面上。
- 从1×洗涤缓冲液中取出载玻片,轻敲或吸去多余液体。
- 在盖玻片上加入一滴Amp 1-FL,于40 °C湿化烘箱中孵育30分钟。
- 倾去Amp 1-FL,将载玻片浸入1×洗涤缓冲液中,在室温下轻轻摇动孵育2分钟。更换新的1×洗涤缓冲液重复洗涤一次。
7. Amp 2-FL 杂交:与带有与预扩增子(Amp 1-FL)互补识别序列的信号扩增剂共同孵育
- 从1×洗涤缓冲液中取出载玻片,轻敲或吸干以去除多余液体。
- 在盖玻片上加入1滴Amp 2-FL,于40 °C湿化烘箱中孵育15分钟。
- 倾去Amp 2-FL,将载玻片浸入1×洗涤缓冲液中,在室温下轻轻摇动孵育2分钟。更换新的1×洗涤缓冲液重复洗涤一次。
8. Amp 3-FL 杂交:与第二信号放大剂孵育
- 从1×洗涤缓冲液中取出载玻片,轻敲或吸去多余液体。
- 在盖玻片上加入一滴Amp 3-FL,于40 °C湿化烘箱中孵育30分钟。
- 倾去Amp 3-FL,将载玻片浸入1×洗涤缓冲液中,在室温下轻轻摇动孵育2分钟。更换新的1×洗涤缓冲液重复洗涤一次。
9. Amp 4-FL 杂交:荧光标记与最终杂交步骤
注意:首先,请参见表4,根据目标探针的通道选择合适的Amp 4(A、B或C)-FL。评估标记目标DNA/RNA所需的Amp 4-FL。下表提供了一个示例:
| A | B | C | |
| DNA 通道 1 (C1) | 488 | 550 | 550 |
| DNA/RNA 通道 2 (C2) | 550 | 488 | 647 |
| RNA 通道 3 (C3) | 647 | 647 | 488 |
表4:多重原位杂交中Amp 4(A、B或C)-FL荧光探针的选择。
注意:对于多重荧光原位杂交(多个靶标),选择正确的 Amp 4(A、B 或 C)-FL 对于正确标记目标靶标至关重要。靶标探针(步骤 5)具有不同的颜色通道(C1、C2 或 C3),其对应的荧光标记物(Alexa 488、Atto 550 或 Alexa 647)取决于所选的 Amp 4-FL。多重成像中荧光染料组合的选择示例见图 2和图 3的图注。例如,选择 Amp 4B-FL 可特异性地使用 Atto 550 标记 DNA C1 探针,并使用 Alexa 647 标记 RNA C3 探针。
- 从1×洗涤缓冲液中取出载玻片,轻敲或吸干以去除多余液体。
- 在盖玻片上加入1滴Amp 4-FL。在40 °C的湿化烘箱中孵育15分钟。
注意:在完成步骤9.2后,需将样品保持覆盖状态,并避光保存。 - 倾去Amp 4-FL,将样品浸入1×洗涤缓冲液中。在室温下轻轻摇动孵育2分钟。更换新的1×洗涤缓冲液重复洗涤一次。再用1× PBS洗涤(2分钟),随后将样品保存在PBS中。
10. 蛋白质免疫染色:标记目标蛋白质
- 吸去 PBS,向盖玻片中加入 200 µL 封闭缓冲液(含 1% w/v BSA、10% v/v FBS 和 0.1% v/v Tween-20 的 PBS 缓冲液(PBST)),室温孵育 1 小时。
- 吸去封闭缓冲液,加入 200 µL 用 PBST + 1% w/v BSA 稀释的一抗溶液,室温孵育 1 小时。
- 在室温下轻轻振荡,用 PBST 洗涤载玻片两次,每次 10 分钟。
- 加入适量的二抗溶液,用 PBST + 1% w/v BSA 配制,室温孵育 1 小时。
- 在室温下轻轻振荡,用 PBST 洗涤载玻片 10 分钟。
11. 细胞核染色:免疫染色后对细胞核进行复染
- 倒掉 PBST,加入 DAPI 或其他选择的核染料,在室温下孵育 1 分钟。
- 在室温下轻轻振荡,用 PBS 洗涤载玻片两次,每次 10 分钟。
12. 封片
- 在新的无菌玻璃载玻片上滴加一滴抗荧光淬灭封片液(例如 Prolong Gold)(首先用乙醇清洁载玻片并晾干,以确保玻璃表面无残留物)。使用同一枪头将抗荧光淬灭封片液滴展开,使其覆盖面积大约与盖玻片相当。
注意:抗荧光淬灭封片液黏度较高,可能难以移液。在移液前剪去 200 µL 枪头的尖端可缓解此问题。 - 用镊子和 PBS 将带有细胞样品的盖玻片从载玻片上取下,并浸入 PBS 中,以去除背面残留的指甲油。用无尘纸擦干镊子和盖玻片背面。
- 将盖玻片轻轻嵌入抗荧光淬灭封片液液滴中,使样品面(即带有细胞层的一面)朝下接触液滴。
- 让样品在室温下避光干燥过夜。
13. 成像
- 使用落射荧光显微镜成像。
访问受限。请登录或开始试用以查看此内容。
结果
MICDDRP 的示意图如图1所示。在对 DNA 和 RNA 进行标记后,进行免疫染色。使用分支放大器可增强信号,从而实现对单个核酸分子的检测。
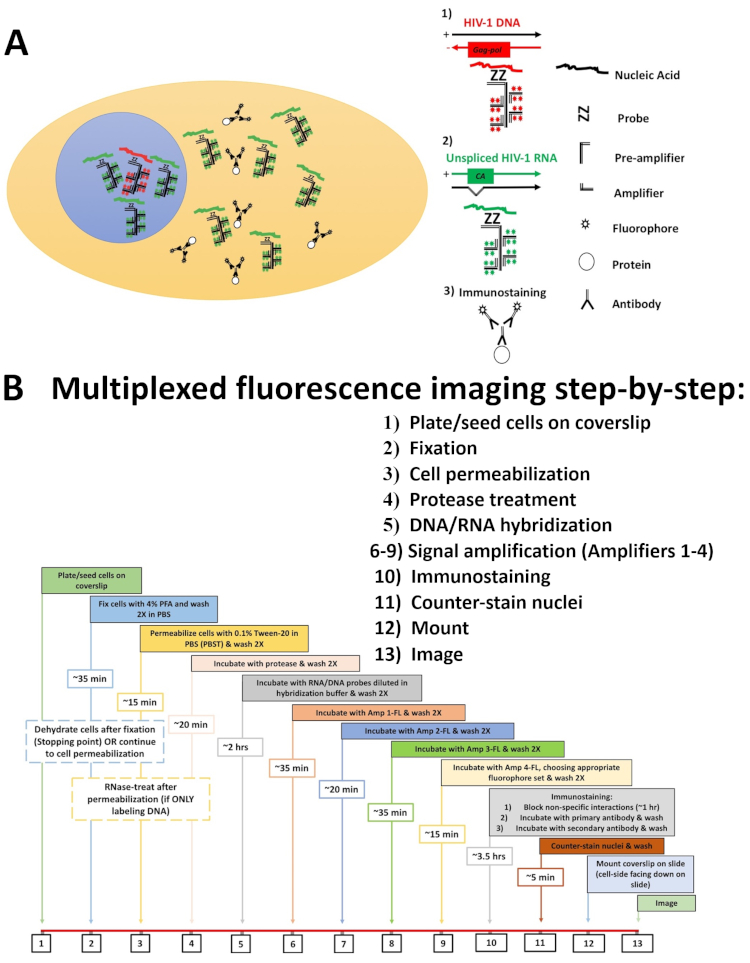
图1:MICDDRP 示意图及逐步工作流程。 (A) bDNA 信号被扩增 通过 分支预扩增和扩增DNA以增强病毒DNA(1)和RNA种类(2)的检测。寡核苷酸探针成对杂交(示意图中为ZZ)至目标序列,形成预扩增子(Amp 1-FL, 步骤 6 在 方案),放大器...
访问受限。请登录或开始试用以查看此内容。
讨论
同时可视化 RNA、DNA 和蛋白质通常需要进行大量优化。两种常用的方法是 5-乙炔基-2'-脱氧尿苷(EdU)标记和 DNA FISH。EdU 标记已被用于同时可视化病毒 DNA 和蛋白质,因为 EdU 可掺入新生 DNA 中,并通过点击化学反应与含叠氮基的荧光染料进行后续标记。via 因此,EdU 标记可用于监测 DNA 病毒或具有 DNA 复制模板的病毒的天然复制动力学12。然而,EdU 标记的一个缺点是,在分裂细胞中,复制的基因组会掺入 EdU,导致背景信号升高,干扰图像分析。DNA FISH 可通过将核酸探针直接杂交至相应靶标来规避这些问题,且不受细胞周期影响。然而,传统的 FISH 通常依赖高温以实现高效的探针杂交,从而阻碍了免疫染色甚至同时进行的 RNA 染色13。MICDDRP 有可能克服这些问题,可在多种细胞系统中实现 DNA、RNA 和蛋白质的稳定同步荧光标记。
尽管我们已证明可以使用MICDDRP方案同时标记蛋白质和核酸,但仍需在不同系统中进行优化...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作全部或部分由美国国立卫生研究院(R01 AI121315、R01 AI146017、R01 AI148382、R01 AI120860、R37 AI076119 和 U54 AI150472)资助。我们感谢 Raymond F. Schinazi 博士和 Sadie Amichai 提供感染甲型流感病毒的细胞。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 4% PFA | |||
| 50% 硫酸葡聚糖 | Amreso | 198 | 用于DNA杂交缓冲液 |
| 50X 洗涤缓冲液 | ACD Bio | 320058 | |
| 6孔板 | |||
| 扩增剂 1-FL | ACD Bio | ||
| 扩增剂 2-FL | ACD Bio | ||
| 扩增剂 3-FL | ACD Bio | ||
| 扩增剂 4-FL | ACD Bio | 参见方案中的Amp-4表格 | |
| 抗HCV NS5a抗体 | Abcam | ab13833 | 小鼠单克隆抗体;适用于HCV基因型1a、1b、3和4 |
| 抗HIV-1 p24单克隆抗体 | NIH AIDS试剂项目 | 3537 | |
| 抗Mov10抗体 | Abcam | ab80613 | 兔多克隆抗体 |
| 抗PB1抗体 | GeneTex | GTX125923 | 流感病毒蛋白抗体 |
| 牛血清白蛋白 | 免疫染色封闭试剂 | ||
| 含补充物的细胞培养基 | 适用于细胞模型的培养基 | ||
| 盖玻片 | |||
| DAPI | ACD Bio | 细胞核染料(来自ACD Bio的RNAscope试剂盒) | |
| 杜氏磷酸盐缓冲液(1X PBS) | Gibco | 14190250 | 不含钙和镁 |
| 碳酸乙烯酯 | Sigma | E26258 | |
| 胎牛血清(FBS) | 根据二抗所用血清来源选择相应的FBS(例如山羊FBS) | ||
| Fisherbrand Colorfrost Plus显微镜载玻片 | Fisher Scientific | 12-550-17/18/19 | 预清洁 |
| HCV-GT2a-sense-C2探针 | ACD Bio | 441371 | HCV(+)正义RNA探针 |
| HIV-gagpol-C1 | ACD Bio | 317701 | HIV-1 cDNA探针 |
| HIV-nongagpol-C3 | ACD Bio | 317711-C | HIV-1 RNA探针 |
| HybEZ杂交炉 | ACD Bio | 321710/321720 | |
| ImmEdge疏水屏障笔 | Vector Laboratories | H-4000 | |
| 指甲油 | 用于蛋白酶处理前将盖玻片固定于载玻片 | ||
| 无核酸酶水 | Ambion | AM9937 | |
| 聚-D-赖氨酸(PDL) | 用20 µg/mL PDL包被盖玻片30分钟 | ||
| 探针稀释液 | ACD Bio | 300041 | 用于稀释RNA C2或C3探针 |
| Prolong Gold抗荧光淬灭封片剂 | Invitrogen | P36930 | |
| 蛋白酶III | ACD Bio | 322337 | |
| RNAscope® 探针- V-Influenza-H1N1-H5N1-NP | ACD Bio | 436221 | |
| RNase A | Qiagen | ||
| 二抗 | |||
| 载玻片 | |||
| 氯化钠 | 用于DNA杂交缓冲液 | ||
| 柠檬酸钠,pH 6.2 | 用于DNA杂交缓冲液 | ||
| Tween-20 | 用于DNA杂交缓冲液和PBS-T | ||
| V-HBV-GTD | ACD Bio | 441351 | 总HBV RNA |
| V-HBV-GTD-01-C2 | ACD Bio | 465531-C2 | HBV pgRNA探针 |
| V-HCV-GT2a探针 | ACD Bio | 441361 | HCV(-)正义RNA探针 |
| V-HTLV-HBZ-sense-C3 | ACD Bio | 495071-C3 | 靶向HBZ的HTLV-1 (-)正义RNA探针 |
| V-HTLV1-GAG-C2 | ACD Bio | 495051-C2 | HTLV-1 DNA探针 |
| V-HTLV1-GAG-POL-sense | ACD Bio | 495061 | HTLV-1 (+)正义RNA探针 |
| V-Influenza-H1N1-H5N1-NP | ACD Bio | 436221 | IAV RNA探针 |
| V-ZIKA-pp-O2 | ACD Bio | 464531 | 寨卡病毒(+)正义RNA探针 |
| V-ZIKA-pp-O2-sense-C2 | ACD Bio | 478731-C2 | 寨卡病毒(-)正义RNA探针 |
参考文献
- Zheng, Q., Lavis, L. D. Development of photostable fluorophores for molecular imaging. Current Opinion in Chemical Biology. 39, 32-38 (2017).
- Marini, B., et al. Nuclear architecture dictates HIV-1 integration site selection. Nature. 521 (7551), 227-231 (2015).
- Puray-Chavez, M., et al. Multiplex single-cell visualization of nucleic acids and protein during HIV infection. Nature Communications. 8 (1), 1882(2017).
- Ukah, O. B., et al. Visualization of HIV-1 RNA Transcription from Integrated HIV-1 DNA in Reactivated Latently Infected Cells. Viruses. 10 (10), (2018).
- Liu, D., et al. Visualization of Positive and Negative Sense Viral RNA for Probing the Mechanism of Direct-Acting Antivirals against Hepatitis C Virus. Viruses. 11 (11), (2019).
- Achuthan, V., et al. Capsid-CPSF6 Interaction Licenses Nuclear HIV-1 Trafficking to Sites of Viral DNA Integration. Cell Host & Microbe. 24 (3), 392-404 (2018).
- Wang, F., et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. Journal of Molecular Diagnostics. 14 (1), 22-29 (2012).
- Xia, C., Babcock, H. P., Moffitt, J. R., Zhuang, X. Multiplexed detection of RNA using MERFISH and branched DNA amplification. Scientific Reports. 9 (1), 7721(2019).
- Player, A. N., Shen, L. P., Kenny, D., Antao, V. P., Kolberg, J. A. Single-copy gene detection using branched DNA (bDNA) in situ hybridization. Journal of Histochemistry and Cytochemistry. 49 (5), 603-612 (2001).
- Battich, N., Stoeger, T., Pelkmans, L. Image-based transcriptomics in thousands of single human cells at single-molecule resolution. Nature Methods. 10 (11), 1127-1133 (2013).
- Bushnell, S., et al. ProbeDesigner: for the design of probesets for branched DNA (bDNA) signal amplification assays. Bioinformatics. 15 (5), 348-355 (1999).
- Stultz, R. D., Cenker, J. J., McDonald, D. Imaging HIV-1 Genomic DNA from Entry through Productive Infection. Journal of Virology. 91 (9), (2017).
- Brown, K. Visualizing nuclear proteins together with transcribed and inactive genes in structurally preserved cells. Methods. 26 (1), 10-18 (2002).
- Francis, A. C., et al. HIV-1 replication complexes accumulate in nuclear speckles and integrate into speckle-associated genomic domains. Nature Communications. 11 (1), 3505(2020).
- Dharan, A., Bachmann, N., Talley, S., Zwikelmaier, V., Campbell, E. M. Nuclear pore blockade reveals that HIV-1 completes reverse transcription and uncoating in the nucleus. Nature Microbiology. 5 (9), 1088-1095 (2020).
访问受限。请登录或开始试用以查看此内容。
重印与许可
