本方法描述了通过流式细胞术从小鼠股骨、胫骨和骨盆骨中纯化巨核细胞-红细胞祖细胞(MEP)和巨核细胞祖细胞(MKp)。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
骨髓巨核细胞是大型多倍体细胞,负责血小板的生成。它们通过巨核细胞生成过程由造血干细胞发育而来。该过程的最后阶段较为复杂,通常涉及双潜能巨核-红系祖细胞(MEP)和单潜能巨核细胞祖细胞(MKp)。这些细胞群体出现在 真正有效的 巨核细胞,因此对其分离和表征有助于对巨核细胞形成进行稳健且无偏倚的分析。本方案详细介绍了从小鼠骨髓中收集造血细胞、通过磁性耗竭法富集造血祖细胞,以及最终获得高度纯化的MEP和MKp细胞群体的细胞分选策略。首先,从小鼠股骨、胫骨以及髂嵴中收集骨髓细胞,其中髂嵴含有较高数量的造血祖细胞。使用髂嵴可显著提高每只小鼠获得的总细胞数,从而更符合动物实验的伦理要求。本研究优化了使用450 nm磁珠进行的磁性谱系耗竭法,可实现高效流式细胞分选。最后,本方案介绍了对两种高度纯化的巨核细胞祖细胞群体——MEP(Lin-Sca-1-c-Kit+CD16/32-CD150+CD9暗淡)和 MKp(Lin- Sca-1-c-Kit+CD16/32-CD150+CD9明亮的)。该技术易于实施,可提供充足的细胞材料用于:i)进行分子表征,以更深入地了解其身份和生物学特性;ii) 体外 分化实验,将有助于更深入地理解巨核细胞成熟机制,或 iii) 体外 与微环境相互作用的模型。
引言
血小板由巨核细胞产生。这些大型多倍体细胞位于骨髓中,与其他所有血细胞一样,均起源于造血干细胞(HSC)1。骨髓中巨核细胞的经典生成途径始于HSC,涉及一系列不同祖细胞的生成,这些祖细胞逐步限制其分化潜能2。首个标志向巨核细胞谱系定向分化的祖细胞是巨核-红系祖细胞(MEP),这是一种双能祖细胞,可同时生成红系细胞和巨核细胞3,4,5。随后,MEP产生一种单能祖细胞/前体细胞(MKp),进一步分化为成熟的巨核细胞,进而生成血小板。这些祖细胞的生成机制,以及它们向巨核细胞分化和成熟的过程十分复杂,目前仅部分阐明。此外,MEP群体在分化潜能方面的异质性及其细胞内在的定向分化程度仍不明确。为了深入解析这些过程,获得(或能够获取)高纯度的MEP和MKp细胞群体,以进行精细的分子水平和单细胞分析,显得至关重要。
多项研究已证实,小鼠中特定的细胞表面标志物组合可用于鉴定巨核细胞系定向的前体细胞6,7,8。基于这些发现,我们建立了一种从小鼠中分离纯化MEP和MKp的方法。该方法经过优化,可获得足够数量和质量的细胞,适用于多种检测。出于伦理考虑,并为尽量减少实验所用动物数量,我们选择采集股骨、胫骨以及髂嵴的骨髓。其中,髂嵴含有较高频率和数量的造血前体细胞,且在长骨取材过程中通常会被破坏。本文介绍了一种可靠采集该部位骨骼的详细方法。
优化的第二个标准是获得高纯度的细胞群体。为了获取目标细胞的纯化群体,荧光激活细胞分选(FACS)是首选方法。然而,当目标细胞群体极为稀少时,所得产量往往较低。因此,有必要进行富集步骤。在本方案中,采用基于磁珠的阴性筛选方法进行富集。
访问受限。请登录或开始试用以查看此内容。
方案
涉及动物的实验方案均依照斯特拉斯堡大学动物实验伦理区域委员会(Comité Régional d'Ethique en Matière d'Expérimentation Animale Strasbourg,批准号:E67-482-10)的伦理规范执行。
1. 小鼠骨骼采集
- 根据机构指南对动物实施安乐死。
注意:本论文中展示的数据来自8至12周龄的C57Bl/6小鼠。所获得的细胞数量以及所述细胞群体的频率可能因小鼠年龄和品系而异。 - 用70%乙醇喷洒小鼠尸体。
- 使用剪刀在皮肤上垂直于脊柱方向做0.5–1 cm的切口,并将皮肤向身体四周撕开。向下拉脱下肢部位的皮肤,彻底去除皮肤。
- 将动物腹面朝下放置于解剖垫上。用手指沿暴露的脊柱从上至下滑动,以定位骨盆。为找到髂嵴,需在后肢附近的腰部区域(骨盆骨的前上部)识别出一个小突起。图1A、B展示了小鼠解剖结构的示意图。

图1:小鼠解剖结构。(A)显示后肢骨骼的小鼠X光图像。注意骨盆骨与脊柱之间的间隙(黄色箭头),此处为剪刀插入位置,以正确分离小鼠后肢与躯干(黄色虚线)。(B)富含骨髓的目标骨骼示意图。骨盆骨以红色表示,股骨以紫色表示,胫骨以绿色表示。(C)小鼠骨盆骨的示意图。髂骨对应骨盆骨中富含骨髓的部分,以红色突出显示。请点击此处查看该图的放大版本。
- 将剪刀平行于脊柱,紧贴椎骨并靠近髂嵴隆起处,沿椎骨向尾部方向滑动剪刀,切开骨盆上方脊柱侧边的肌肉。
注意:此第一步的肌肉分离也可使用手术刀片完成。 - 将剪刀保持与脊柱平行,沿椎骨与髂嵴之间进行剪切,具体位置如图1A中黄色虚线所示。操作时应尽可能贴近椎骨,切断剩余肌肉,使肢体与躯体分离。
注意:此处操作应几乎无阻力。 - 在另一侧重复上述操作,以分离第二条肢体。
- 将分离的肢体转移至洁净表面,其余组织应按照机构规定妥善处理。
- 使用镊子和手术刀尽可能去除周围组织,暴露骨盆、股骨和胫骨。
- 用镊子夹住股骨远端,同时用手术刀轻轻切开关节周围的肌肉,小心将股骨头从骨盆中脱位。可轻轻晃动骨骼以促进脱位。
- 刮除骨盆骨上残留的肌肉,并在原先容纳股骨头的空腔中部用手术刀切开。保留富含造血祖细胞的髂骨部分,丢弃骨上三角形的极薄侧缘,如图1C所示。
- 用手术刀清除髂骨周围的残余组织,将清理后的骨骼置于含2%新生牛血清的无菌PBS缓冲液(PBS-2%NBCS)中。
- 使用剪刀在踝关节处剪除足部。
- 用镊子夹住胫骨下段,向上朝膝关节方向刮除肌肉。弃去腓骨,并用手术刀横切胫骨平台。将胫骨放入无菌PBS-2%NBCS中。
- 用手术刀去除股骨周围的残余组织。
- 用镊子夹住股骨上端,将手术刀片置于髌骨基部,沿股骨方向对髌骨施加推力,直至髌骨脱落。将股骨放入无菌PBS-2%NBCS中。去除髌骨可为骨髓冲洗时针头插入提供清晰通路。
2. 磁珠法去除谱系阳性细胞
- 在超净工作台中,将骨骼转移至盛有无菌 PBS-2%NBCS 的无菌培养皿中。
- 用手术刀切除股骨的头部。
- 用无菌 PBS-2%NBCS 填充 1 mL 注射器,并在出口处连接一根 21 G 针头。
- 用2 mL无菌PBS-2%NBCS填充一个5 mL聚丙烯管。
- 用镊子夹住股骨;将针头轻轻插入移除髌骨后留下的沟槽中。插入针头时施加旋转动作,以避免针头堵塞。确保针头完全插入骨内,直至斜面完全进入。
- 将骨组织连同针头转移至含有2 mL PBS-2%NBCS的离心管中。用注射器反复吹打PBS-2%NBCS溶液,直至骨组织透明。
- 移除股骨上的针头,将其插入对侧股骨头所在位置的孔中。再次注入并抽吸缓冲液,随后弃去骨骼。
- 对于髂嵴和胫骨,用镊子夹住骨骼,从开口侧轻轻插入针头。插入时对针头施加旋转动作,以避免针头堵塞。确保针头完全插入骨骼,直至斜面端完全进入。将带针头的骨骼转移至含有 2 mL PBS-2%NBCS 的离心管中。反复从注射器中排出并吸入 PBS-2%NBCS,直至骨骼变得透明。弃去骨骼。
注意:最多可将三只小鼠的骨骼冲洗至同一管中。合并细胞悬液。 - 将混合的细胞悬液通过一个 40 µm 将细胞筛网盖置于无菌的5 mL聚苯乙烯管上。
- 继续进行细胞计数。
注意:细胞计数可使用任何血细胞计数板,通过台盼蓝染色评估细胞活力,或使用任何自动细胞计数仪进行。一只小鼠通常可获得 105 ± 7 x 10⁶ 细胞 - 放置一旁 100 µL 将细胞悬液作为总骨髓,加入 500 µL 加入PBS-2%NBCS,置于冰上保存,用于染色步骤。
- 通过400 x g离心使过滤后的悬液沉淀 g 5 分钟 4 °C 弃去上清液。
注意:可通过将沉淀重悬于新配制的裂解液(1/10)中裂解红细胞th 在dH2O中)。孵育5分钟,直至悬液变为澄清且呈亮红色,然后加入10倍体积的无菌PBS。随后通过400 × g离心,用含2%NBCS的PBS洗涤细胞 g 5 分钟 4 °C. 吸除上清液时需小心,因为细胞沉淀非常松散。用 PBS-2%NBCS 以 400 × g 离心 5 分钟,进行第二次洗涤。 4 °C 并继续进行步骤 2.13。 - 将细胞沉淀重悬于新鲜配制的一抗混合液中,比例为 100 µL 每 1 × 10⁷ 细胞。冰上孵育30-45分钟。
| 抗体 | 稀释倍数 |
| Gr-1-biotin | 1:500 |
| B220-biotin | 1:500 |
| Mac-1-biotin | 1:500 |
| CD3-biotin | 1:500 |
| CD4-biotin | 1:500 |
| CD5-biotin | 1:500 |
| CD8-biotin | 1:500 |
| TER119-biotin | 1:1000 |
| CD127-biotin | 1:500 |
表1.
- 取10 µL细胞悬液置于已标记为Lin-Pos组分的无菌5 mL聚苯乙烯管中。加入90 µL PBS-2%NBCS,冰上保存以用于染色步骤。
- 用无菌PBS-2%NBCS对细胞进行两次洗涤,每次在4 °C下以400 ×g离心5分钟。确保最后一次洗涤在无菌5 mL聚丙烯管中进行。
- 在洗涤过程中,准备用于磁性去除的磁珠。
- 通过充分涡旋振荡30秒,重悬小瓶中的磁珠。
- 将相当于每靶细胞两个磁珠体积的磁珠转移至一个5 mL聚丙烯管中。
- 用PBS-2%NBCS洗涤磁珠两次:将管置于磁铁上,使用无菌玻璃巴斯德吸管移除洗涤液。
- 将磁珠重悬于500 µL无菌PBS-2%NBCS中。
- 将标记细胞的沉淀重悬于250 µL磁珠溶液中,在冰上轻轻混匀5分钟。加入2 mL无菌PBS-2%NBCS并轻轻混匀。切勿震荡试管。
- 将试管置于磁铁上静置2分钟。
- 使用无菌玻璃巴斯德吸管收集非磁性组分,并将其加入剩余的250 µL磁珠中。用封口膜密封试管。
- 将试管置于滚轴混合仪上,在4 °C孵育20分钟。
- 加入2 mL无菌PBS-2%NBCS并轻轻混匀。切勿震荡试管。
- 将试管置于磁铁上静置2分钟。
- 使用无菌玻璃巴斯德吸管将非磁性组分转移至已标记为Lin-Neg组分的无菌5 mL聚丙烯管中。
- 在4 °C下以400 × g离心5分钟收集细胞沉淀,并弃去上清液。
- 将非磁性细胞重悬于500 µL无菌PBS-2%NBCS中。
- 进行细胞计数。
注:一只小鼠通常可获得3.9 ± 1.1 × 10⁶个细胞。典型的去除非靶细胞前后谱系染色结果见图2B。
3. 通过流式细胞术对巨核细胞前体进行细胞分选
- 取标记为“总骨髓”、“Lin-阳性组分”和“Lin-阴性组分”的试管。
- 将“总骨髓”试管中的内容物等分为六份,分别加入六个无菌的5 mL聚苯乙烯试管中。用数字1-6标记这些试管。
- 将“Lin-阳性组分”试管标记为数字7。
- 按以下方式分配“Lin-阴性组分”试管中的内容物。
- 取50 µL加入含有250 µL无菌PBS-2%NBCS的无菌5 mL聚苯乙烯试管中,然后将其中的内容物等分为三份,分别转移至三个无菌的5 mL聚苯乙烯试管中。用数字8-10标记这些试管。
- 剩余的450 µL Lin-阴性组分细胞悬液对应编号为11的试管。
- 按照表2中所述向各试管中加入抗体。
| 试管 | 标签 | 抗体混合液 |
| 总骨髓细胞 | ||
| 1 | 未染色对照 | |
| 2 | 单染对照 | CD45-FITC (1/200) |
| 3 | 单染对照 | CD45-PE (1/200) |
| 4 | 单染对照 | TER119-APC (1/200) |
| 5 | 单染对照 | CD45-PECy7 (1/200) |
| 6 | 单染对照 | CD45-APC-Cy7 biotin (1/200) |
| Lin-阳性组分 | ||
| 7 | 单染对照 | 单染对照。Streptavidin-APC-Cy7 (1/500) |
| Lin-阴性组分 | ||
| 8 | FMO FITC 对照 | c-kit-APC (1/200) + Sca-1-PE (1/200) + CD16/32-PE (1/200) + CD150-PECy7 (1/200) + Streptavidin-APC-Cy7 (1/500) |
| 9 | FMO PE 对照 | CD9-FITC (1/200) + c-kit-APC (1/200) + CD150-PECy7 (1/200) + Streptavidin-APC-Cy7 (1/500) |
| 10 | FMO PECy7 对照 | CD9-FITC (1/200) + c-kit-APC (1/200) + Sca-1-PE (1/200) + CD16/32-PE (1/200) + Streptavidin-APC-Cy7 (1/500) |
| 11 | 分选用阳性管 | CD9-FITC (1/200) + c-kit-APC (1/200) + Sca-1-PE (1/200) + CD16/32-PE (1/200) + CD150-PECy7 (1/200) + Streptavidin-APC-Cy7 (1/500) |
表2.
- 在冰上避光孵育30-45分钟。
- 用含2%NBCS的无菌PBS通过400 x g离心洗涤细胞 g 5 分钟 4 °C.
- 按下述方法重悬细胞沉淀。
- 对于第1至第10号管,将沉淀重悬于 300 µL 含7AAD的无菌PBS-2%NBCS2.5 µg/mL 终末) (PBS-7AAD)。
警告:7AAD 是一种DNA嵌入剂,因此必须佩戴适当的个人防护装备(手套)进行操作。 - 对于第11管,将沉淀重悬于无菌PBS-7AAD中,最大浓度为5 x 10⁶ 每毫升细胞数及最小体积为1 mL。
- 对于第1至第10号管,将沉淀重悬于 300 µL 含7AAD的无菌PBS-2%NBCS2.5 µg/mL 终末) (PBS-7AAD)。
- 准备两个聚丙烯收集管,分别标记为 MEP 和 MKp,每管中加入 2 mL PBS-2%NBCS。
注意:根据分选后细胞的后续应用,也可将细胞收集至培养基或细胞裂解缓冲液中。不建议使用聚苯乙烯试管,因其可能干扰含有目标细胞的带电液滴。 - 将所有试管置于冰上并避光保存。
- 进入细胞分选仪设置步骤。
- 使用第1-7管进行电压和补偿调节,第7-10管用于确定目标细胞群体的分选门,第11管用于细胞分选。
- 门控策略的初始步骤旨在排除双联体和死细胞,以免其影响分析,具体方法如前所述。 图3. 鉴定单个活细胞,并展示SSC与Lin-APC-Cy7点图以确认谱系耗竭效率。从Lin- 细胞设门以选择c-kit阳性、Sca-1和CD16/32阴性或弱表达的细胞。对所选细胞进行CD9与CD150表达的散点图分析,可鉴定出四个细胞群。
注意:MEP 和 MKp 细胞均表达 CD150。CD9 的表达可分为三个水平(阴性、弱阳性及强阳性)。MKp 高表达 CD9,而 MEP 的 CD9 表达水平为中等荧光强度。MEP 群体对应于 Lin⁻- c-Kit+ Sca-1-CD16/32-/dim CD150+ CD9暗淡 且MKp群体对应于Lin- c-Kit+ Sca-1-CD16/32-/dim CD150+ CD9明亮根据CD150阴性细胞群中CD9表达的最高水平,设定CD150阳性细胞中CD9高表达与CD9弱表达群体的区分阈值。一只小鼠通常可获得5.3 ± 0.6 x 10³ MKp 和 27.2 ± 2.4 x 10³ 运动诱发电位
访问受限。请登录或开始试用以查看此内容。
结果
通过流式细胞术对鉴定为MEP和MKp的细胞进行表型分析。使用与CD41a和CD42c结合的荧光抗体对细胞进行标记,CD41a和CD42c是巨核细胞系和血小板谱系的经典标志物。MKp细胞群体表达这两种标志物,而MEP细胞群体表面尚未检测到这些标志物的表达(图4Ai,4Aii)。多倍体是巨核细胞的特征之一。对分选后的细胞群体进行DNA含量分析,结果显示MEP细胞群体主要为2N,MKp细胞中有少量为4N,但这些细胞群体中未显著检测到更高倍性的细胞(图4Aiii)。
为了确认分选后细胞群体的身份,进行了多项分化实验,以评估其向巨核细胞系和红系分化的能力。首先,通过半固体集落形成实验定量分析巨核系祖细胞(CFU-MK)和红系祖细胞(BFU-E)。CFU-MK在MEP和MKp细胞群中均被检测到,但在其他测试的细胞群中未检测到(图4B)。BFU-E在MKp细胞群中未检测到,但在MEP细...
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述方法可用于提取和纯化小鼠MEP和MKp。在优化该实验方案时,一个重要的参数是获得足够数量的细胞,以适用于大多数基于分子和细胞的检测。通常用于提取造血细胞的小鼠骨骼采集方法,一般包括获取每只小鼠的股骨和胫骨。而骨盆骨作为另一重要的造血组织来源,却常常被忽视。未采集髂嵴的主要原因在于人们对小鼠骨骼内部解剖结构了解不足,以及常规操作中通常通过横切或紧靠股骨头上方切断后肢进行采集。此外,人们通常认为由于髂嵴骨内存在骨小梁,骨髓细胞难以有效冲洗出来,而胫骨和股骨中央部分则无此结构。本方案针对上述两个问题进行了改进,提出了一种标准化、可靠且高效的实验方法,可对包括骨盆骨在内的每根后肢骨进行充分冲洗。特别是,使用髂骨可获得每只小鼠105 ± 7 × 10⁶个细胞,而传统方法通常仅获得42 ± 5 × 10⁶个细胞。该方法的主要优势在于,为获得特定数量的目标细胞所需的小鼠数量显著减少,从而提供了更具伦理性和成本效益的实验条件。因此,该方法也适用于任何需要骨髓细胞悬液的研究,例如造血干细胞的分离10,或在半固体条件下分析造血祖细胞行为
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在竞争性财务利益。
致谢
作者谨此感谢Monique Freund、Catherine Ziessel和Ketty提供的技术协助。本工作由ARMESA(医学与公共卫生研究与发展协会)以及授予Henri.de la.Salle的ANR-17-CE14-0001-01号基金资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 21号针头 | BD Microlance | 301155 | |
| 7AAD | Sigma-Aldrich | A9400 | |
| Gr-1-biotin抗体 | eBioscience | 13-5931-85 | 磁珠耗竭 |
| B220-biotin抗体 | eBioscience | 13-0452-85 | 磁珠耗竭 |
| Mac-1-biotin抗体 | eBioscience | 13-0112-85 | 磁珠耗竭 |
| CD3e-biotin抗体 | eBioscience | 13-0031-85 | 磁珠耗竭 |
| CD4-biotin抗体 | eBioscience | 13-9766-82 | 磁珠耗竭 |
| CD5-biotin抗体 | eBioscience | 13-0051-85 | 磁珠耗竭 |
| CD8a-biotin抗体 | eBioscience | 13-0081-85 | 磁珠耗竭 |
| TER119-biotin抗体 | eBioscience | 13-5921-85 | 磁珠耗竭 |
| CD127-biotin抗体 | eBioscience | 13-1271-85 | 磁珠耗竭 |
| CD45-FITC抗体 | eBioscience | 11-0451-85 | 细胞分选 |
| CD45-PE抗体 | eBioscience | 12-0451-83 | 细胞分选 |
| TER119-APC抗体 | eBioscience | 17-5921-83 | 细胞分选 |
| CD45-PECy7抗体 | eBioscience | 25-0451-82 | 细胞分选 |
| CD45-biotin抗体 | eBioscience | 13-0451-85 | 细胞分选 |
| CD9-FITC抗体 | eBioscience | 11-0091-82 | 细胞分选 |
| 抗体 c-kit-APC | eBioscience | 17-1171-83 | 细胞分选 |
| Sca-1-PE抗体 | eBioscience | 12-5981-83 | 细胞分选 |
| CD16/32-PE抗体 | eBioscience | 12-0161-83 | 细胞分选 |
| CD150-PECy7抗体 | eBioscience | 25-1502-82 | 细胞分选 |
| 培养基 StemSpan-SFEM | Stemcell technologies | #09650 | |
| 解剖垫 | Fisher Scientific | 10452395 | |
| DPBS | Life Technologies | 14190-094 | |
| 乙醇 | vWR Chemicals | 83813.360 | |
| 镊子 | Euronexia | P-120-AS | |
| 玻璃巴斯德移液管 | Dutscher | 42011 | |
| 磁铁: DynaMag-5 | Thermo Fisher Scientific | 12303D | |
| 磁珠:Dynabeads 羊抗大鼠IgG | Thermo Fisher Scientific | 11035 | |
| Megacult | Stemcell technologies | #04970 | |
| MethoCult SF M3436 | Stemcell technologies | #03436 | |
| 新生小牛血清 | Dutscher | 50750-500 | |
| 红细胞裂解液 | BD Bioscience | 555899 | |
| 手术刀 | Fisher Scientific | 12308009 | |
| 剪刀 | Euronexia | C-165-ASB | |
| 无菌1 mL注射器 | BD Bioscience | 303172 | |
| 无菌15 mL离心管 | Sarstedt | 62.554.502 | |
| 无菌5 mL聚丙烯管 | Falcon | 352063 | |
| 无菌5 mL聚苯乙烯管 | Falcon | 352054 | |
| 带70µm细胞筛网盖的无菌管 | Falcon | 352235 | |
| 无菌培养皿 | Falcon | 353003 | |
| 链霉亲和素-APC-Cy7 | BD Biosciences | 554063 | 细胞分选 |
| 试管滚轴混合器 | Benchmark Scientific | R3005 |
参考文献
- Kaushansky, K. Historical review: megakaryopoiesis and thrombopoiesis. Blood. 111 (3), 981-986 (2008).
- Akashi, K., Traver, D., Miyamoto, T., Weissman, I. L. A clonogenic common myeloid progenitor that gives rise to all myeloid lineages. Nature. 404 (6774), 193-197 (2000).
- Debili, N., et al. Characterization of a bipotent erythro-megakaryocytic progenitor in human bone marrow. Blood. 88 (4), 1284-1296 (1996).
- Forsberg, E. C., Serwold, T., Kogan, S., Weissman, I. L., Passegué, E. New evidence supporting megakaryocyte-erythrocyte potential of flk2/flt3+ multipotent hematopoietic progenitors. Cell. 126 (2), 415-426 (2006).
- Vannucchi, A. M., et al. Identification and characterization of a bipotent (erythroid and megakaryocytic) cell precursor from the spleen of phenylhydrazine-treated mice. Blood. 95 (8), 2559-2568 (2000).
- Pronk, C. J., et al. Elucidation of the phenotypic, functional, and molecular topography of a myeloerythroid progenitor cell hierarchy. Cell Stem Cell. 1 (4), 428-442 (2007).
- Nakorn, T. N., Miyamoto, T., Weissman, I. L. Characterization of mouse clonogenic megakaryocyte progenitors. Proceedings of the National Academy of Sciences of the United States of America. 100 (1), 205-210 (2003).
- Ng, A. P., et al. Characterization of thrombopoietin (TPO)-responsive progenitor cells in adult mouse bone marrow with in vivo megakaryocyte and erythroid potential. Proceedings of the National Academy of Sciences of the United States of America. 109 (7), 2364-2369 (2012).
- Strassel, C., et al. Hirudin and heparin enable efficient megakaryocyte differentiation of mouse bone marrow progenitors. Experimental Cell Research. 318 (1), 25-32 (2012).
- Brouard, N., et al. A unique microenvironment in the developing liver supports the expansion of megakaryocyte progenitors. Blood Advances. 1 (21), 1854-1866 (2017).
- Boscher, J., Gachet, C., Lanza, F., Léon, C. Megakaryocyte culture in 3D methylcellulose-based hydrogel to improve cell maturation and study the impact of stiffness and confinement. Journal of Visualized Experiments:JOVE. , (2021).
- Sanjuan-Pla, A., et al. Platelet-biased stem cells reside at the apex of the haematopoietic stem-cell hierarchy. Nature. 502 (7470), 232-236 (2013).
- Haas, S., et al. Inflammation-driven fast-track differentiation of HSCs into the megakaryocytic lineage. Experimental Hematology. 42 (8), 14(2014).
- Shin, J. Y., Hu, W., Naramura, M., Park, C. Y. High c-Kit expression identifies hematopoietic stem cells with impaired self-renewal and megakaryocytic bias. The Journal of Experimental Medicine. 211 (2), 217-231 (2014).
访问受限。请登录或开始试用以查看此内容。
重印与许可
勘误
Formal Correction: Erratum: Isolation of Mouse Megakaryocyte Progenitors
Posted by JoVE Editors on 7/28/2021. Citeable Link.
An erratum was issued for: Isolation of Mouse Megakaryocyte Progenitors. A figure was updated.
Figure 2 was updated from:
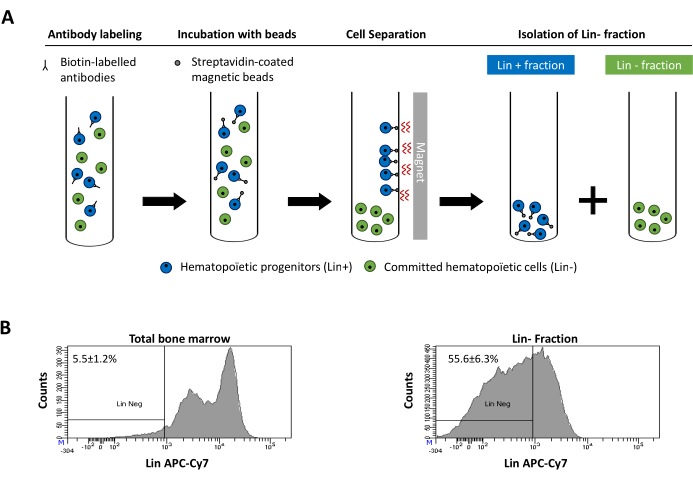
Figure 2: Magnetic depletion of lineage committed (Lin) cells. (A) Schematic representation of the magnetic depletion protocol. First, unsorted bone marrow cells are labeled with the biotin-conjugated rat anti-mouse antibody cocktail. Cells are then incubated with anti-rat Ig coated magnetic beads and subsequently subjected to the magnetic depletion using a strong magnet. The magnet will retain the labeled magnetic Lin+ fraction against the tube walls, while the unlabeled non-magnetic Lin- negative fraction will be collected in a new tube. (B) Lineage committed cells can be identified using fluorescent conjugated streptavidin. Typical analysis of the lineage expression in cells prior to magnetic depletion (total bone marrow) and after magnetic depletion (Lin- Fraction) N = 21. Please click here to view a larger version of this figure.
to:
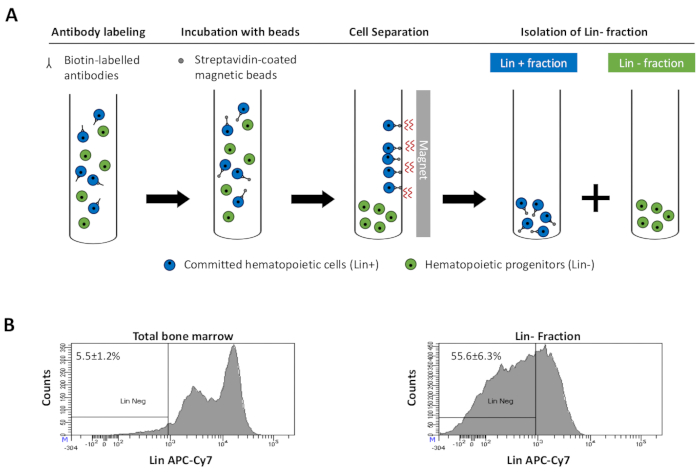
Figure 2: Magnetic depletion of lineage committed (Lin) cells. (A) Schematic representation of the magnetic depletion protocol. First, unsorted bone marrow cells are labeled with the biotin-conjugated rat anti-mouse antibody cocktail. Cells are then incubated with anti-rat Ig coated magnetic beads and subsequently subjected to the magnetic depletion using a strong magnet. The magnet will retain the labeled magnetic Lin+ fraction against the tube walls, while the unlabeled non-magnetic Lin- negative fraction will be collected in a new tube. (B) Lineage committed cells can be identified using fluorescent conjugated streptavidin. Typical analysis of the lineage expression in cells prior to magnetic depletion (total bone marrow) and after magnetic depletion (Lin- Fraction) N = 21. Please click here to view a larger version of this figure.
标签
