利用成像衍生的均方位移(iMSD)分析来研究巨胞饮泡,以突出其在结构和动态特性方面随时间演变的内在特性。随后将巨胞饮泡与胰岛素分泌颗粒(ISGs)进行比较,后者作为具有时间不变平均结构/动态特性的亚细胞结构的参照。
本文内容
摘要
摘要
成像衍生的均方位移(iMSD)用于研究细胞内纳米结构的结构与动态特性,例如参与溶质和生物分子胞吞/胞吐运输的囊泡。iMSD依赖于标准的时间序列成像,适用于任何光学系统,且无需对单个对象进行长时间追踪以提取运动轨迹。从每条iMSD曲线中可计算出一组独特的平均结构与动态参数(即尺寸、局部扩散系数、反常扩散系数),并整合形成所研究纳米结构的“iMSD特征”。
本研究以大胞饮体为例,证明了该方法的有效性。这些囊泡随着时间推移而演变,在从细胞内运输的早期阶段过渡到晚期阶段时,其平均大小、数量以及动态特性均会发生变化。作为对照,胰岛素分泌颗粒(ISGs)被用作处于稳态的亚细胞结构的参考模型,这类结构的整体群体在时间上保持恒定的平均结构和动态特性。iMSD分析定量地揭示了这些独特特征,并为在生理和病理状态下开展类似的亚细胞水平研究奠定了基础。
引言
亚细胞纳米结构(如内吞/分泌囊泡、细胞器)在细胞信号转导调控中发挥关键作用1. 其结构的恰当调控 (例如大小)和/或动态特性(例如扩散性)决定了细胞对内部或外部刺激的响应方式2,3,4基于这些证据,许多病理状态下出现这些特性的改变也就不足为奇了。例如,内吞作用失调在癌症中的作用2,3在2型糖尿病条件下暴露的β细胞中,ISGs水平发生的结构与动态改变5异染性脑白质营养不良或半乳糖基神经酰胺脂质沉积症中溶酶体结构与转运特性的失调6以及神经退行性疾病(如阿尔茨海默病)中内体-溶酶体通路的功能障碍7.
在此背景下,研究人员最近证实,通过合理调节空间和时间采样分辨率,可以提升标准光学显微镜方法的性能8。这反过来可能为相关生物学过程提供更深入的见解。在实际操作中,这一目标可通过一种时空波动分析算法实现,该算法能够直接从标准的光学显微镜图像序列中同时提取扩散物体的平均结构特性和动力学特性,而无需事先了解目标生物对象的具体信息,也无需提取单个物体的运动轨迹。所有这些信息均包含在该方法的一个输出结果中:即一条iMSD曲线9(有关iMSD曲线的推导与分析细节详见补充文件1)。
该实验方案包含若干步骤。首先,以高时间分辨率对感兴趣区域进行成像。随后,从图像序列中计算平均时空相关函数。最后,通过对一系列相关函数进行高斯拟合,直接从成像数据中获得平均“扩散规律”,并据此分析以识别物体的扩散模式。该方法的潜力已在多种生物对象中得到验证,涵盖分子、纳米颗粒乃至完整的亚细胞器/结构9,10,11,12,13,14,15。
本文报道了iMSD方法在巨胞饮泡研究中的应用,以突出其在整体群体水平上的平均结构和动态特性方面固有的、不可逆的时间演化特征。此外,这些内吞囊泡被与分泌颗粒(ISGs)进行比较,后者作为处于“稳态”的亚细胞结构的参照,即在整个颗粒群体的平均结构/动态特性在任何时间点均保持恒定的状态。巨胞饮作用定义为一系列由质膜广泛重组(或起皱)而启动的事件,形成外部的巨胞饮结构,随后该结构被内化16。形成的早期巨胞饮泡与吞噬体非常相似,但同时因其特有的较大尺寸、形态异质性以及缺乏蛋白包被结构,可与其他类型的内吞囊泡相区分。
生化分析表明,巨胞饮小体在内化后,会逐渐富集其他内吞途径的蛋白质标志物,这表明其特性在运输过程中持续发生变化17。通过使用针对已知内体途径标志物的抗体,研究证实巨胞饮小体逐步获得典型的内体特征:其体积减小,发育为晚期内吞结构(如溶酶体),或最终通过膜介导的特定分子标志物回收(如分选连接蛋白)而丧失其原有特性18,19。总体而言,细胞内每一个巨胞饮小体在从质膜运输至最终细胞内归宿的过程中,其结构、动态及分子特性均发生不可逆的改变。因此,整个巨胞饮小体群体的结构、动态和分子特性也沿着相同的时序路径不断变化。由于iMSD方法本质上对所观察对象整体的平均特性具有敏感性,因此可通过量化关键的平均参数——即局部扩散系数和反常指数(动态特性)以及巨胞饮小体的平均尺寸(结构特性)——来定量描述其“演化特性”。
作为对比,在β细胞模型中,对一种已知的细胞内膜包被结构——分泌颗粒(ISG)——进行了类似的测量。与巨胞饮泡类似,从反式高尔基网络(TGN)生成到在质膜上胞吐,ISG结构与动态特性的调控对其功能的正常执行至关重要20。然而,与巨胞饮泡不同的是,ISG处于一种“稳态”,即在任意时刻,ISG生命周期中的所有功能/结构/分子阶段均同时存在于细胞内,并且每个阶段均由特定的ISG亚群所代表。这意味着,尽管单个颗粒从生成到分泌的过程是不可逆的,但整个颗粒群体的平均结构/动态特性在任何时间点都应保持恒定(除非稳态条件发生改变,例如受到葡萄糖、胆固醇和细胞因子等外部刺激的影响13)。这一结论已通过iMSD分析得到证实。
方案
1. 样品制备
- 在显微镜实验前,将细胞传代培养于适用于显微镜观察的培养皿中。
- 用 0.01 M 1× PBS 洗涤一个汇合的 10 cm 组织培养处理培养皿(HeLa 或 INS-1E(胰岛瘤样 β 细胞))两次,加入 1 mL 0.05% 胰蛋白酶-EDTA(1×),置于 37 °C、湿润、含 5% CO2 的培养箱中孵育 5 分钟。
- 通过加入 9 mL 完全 DMEM(用于 HeLa 细胞)或 RPMI 1640(用于 INS-1E 细胞)培养基重悬脱落的细胞,并将最终 10 mL 收集至离心管中。
- 在每个 35 mm × 10 mm 培养皿中接种约 2 × 10⁵ 个细胞,终体积为 1 mL 培养基。将细胞在 37 °C 和 5% CO2 条件下孵育 24 小时。
- 为荧光标记溶酶体,使用 LysoTracker Red DND-99。
- 将储存液稀释于 1 mL 预热的培养基中,使染料终浓度为 70 nM。
- 用新鲜含 LysoTracker 的培养基替换培养皿中的原有培养基。将细胞在含 LysoTracker 的培养基中于 37 °C、5% CO2 环境下孵育 20 分钟,实验前用新鲜培养基洗涤两次。
- 为荧光标记巨胞饮体,使用 70-kDa 异硫氰酸荧光素-葡聚糖。用 0.01 M 1× 磷酸盐缓冲盐水(PBS)洗涤传代后的细胞三次,更换为含葡聚糖的培养基(1 mg/mL),于 37 °C 孵育 30 分钟。在进行显微镜实验前,用新鲜培养基洗涤细胞三次。
- 为荧光标记 INS-1E 细胞中的胰岛素分泌颗粒(ISGs),使用转染试剂(见材料表)和 C-肽增强型绿色荧光蛋白(EGFP)质粒13,按照制造商说明书进行细胞转染,并在实验前于 37 °C、5% CO2 环境中孵育 24 小时。
2. 数据采集
- 为使显微镜达到所需的温度和气氛平衡,应在实验开始前至少2小时开启显微镜培养箱控制系统。
注意:每次采集均为延时成像序列。 - 使用配备60倍、1.2数值孔径(NA)水浸物镜的倒置共聚焦显微镜采集图像。
- 采用488 nm氩离子激光器激发EGFP(转染细胞)和荧光素标记的巨胞饮体,使用标准光电倍增管检测器收集500至600 nm之间的荧光发射信号。
- 使用543 nm氦氖激光器激发Lysotracker,并收集其555至655 nm之间的荧光发射信号。
- 将检测针孔直径设置为1个艾里单位(Airy unit)。每次采集时,连续获取1000帧图像序列。将像素驻留时间设为2 µs/像素,对应帧时间为129 ms。
注意:每帧图像由256 × 256像素组成(16位/像素),物理尺寸为69 nm/像素,对应成像区域约为17 µm × 17 µm。
3. iMSD 计算
注意:为正确执行计算,需使用具备数值计算和脚本编程功能的软件。特定脚本(例如“iMSD.m”脚本文件,参见支持文件1)必须与待处理的图像序列位于同一目录中。序列中的每幅图像必须保存为独立的“.tif”文件。
- 为正确初始化用于数据采集的仪器参数,请使用软件文本编辑器打开 iMSD.m 文件,并按以下方式修改其第一部分:
- 设置 N 为时间序列中的帧数(例如,本方案中为 1000)。
- 设置 px_size:像素尺寸,以 µm 为单位(例如,本方案中为 0,069)。
- 设置 f:每帧的时间分辨率,以秒为单位(例如,本方案中为 0,129)。
- 设置 Filter:背景校正的二进制输入,设为 '0' 表示处理原始图像,或设为 '1' 表示执行基于阈值的背景扣除。
- 设置 av_toll:背景校正的阈值;若 Filter=1,则强度低于该值的所有像素将被设为 0。
- 设置 bit 为表示强度采样精度的整数(例如,8 bit、16 bit)。
- 保存并运行编辑后的 iMSD.m 脚本文件。
- 检查脚本执行情况。
注:可在命令窗口中查看计算处理状态;若发生严重问题,进程将被中断,并显示警告信息以说明错误类型及相关代码行。否则,请继续执行步骤 3.3.1–3.3.3。- 导入图像堆栈并根据需要扣除背景。
- 使用傅里叶方法计算时空相关函数 G(ξ,η,τ)。
- 用二维高斯函数拟合时空相关函数。
注:处理结束后,命令窗口将显示 σ2(τ) 拟合过程的输出值:报告平均值、误差以及相应的拟合优度(R2)。
- 检查图形输出。
注:iMSD 曲线及相应的拟合曲线在三个独立面板中显示,每个面板对应一种不同类型的拟合方程:布朗扩散、异常扩散或受限扩散。每条曲线的 R2 值均在图例中注明。 - 检查文本输出。
注:处理结束后,将生成一个与原始延时 '.tif' 文件同名的 '.xls' 文件。 第一个工作表包含针对每个时间延迟计算出的 ξ、η、τ 和 σ2 值。第二个工作表报告输入参数及主要计算输出值,即扩散系数、异常系数和 y 轴截距 σ20。
结果
该方法的总体工作流程如图1所示。它重现了方案部分中描述的主要步骤,从样品制备(图1A)到细胞内纳米结构的时间推移成像(图1B),再到涨落分析以计算一系列时空关联函数(图1C),最后通过拟合获得所研究对象的平均结构/动态特性(图1D)。
一个关键参数是成像目标亚细胞结构所采用的时间分辨率。该实验值将设定一个时间阈值,在此阈值下可测量目标物体的最小平均位移。然而,理想条件是设置成像时间分辨率,使得目标物体在捕获的帧内呈现“静止”状态,即其特征尺寸在平均意义上不会因成像速度而发生形变。如果目标物体为膜包被的亚细胞结构或细胞器(如此处所述),则技术上可实现该条件。通常,亚细胞结构表现出的局部扩散系数(D,µm2/s,参见表1)比细胞质中游离单分子的扩散系数低数个数量级(例如,GFP21)。可通过人为固定目标细胞器(例如,通过化学固定法)来验证此条件。实际上,该条件可作为参考,用于确定在所用实验条件下(例如,激发波长、像素尺寸、物镜)目标细胞器的实际尺寸。
此处,尽管该实验以溶酶体作为测试细胞器,但所得结果与靶向结构无关。 图 2A 显示一个固定(即静止不动)溶酶体的图像,以及在活细胞上以适当的时间分辨率(即通常低于100毫秒/帧;例如,示例中为65毫秒/帧)进行的成像结果 图2B)并以极低时间分辨率(例如,示例中为 10 s/帧)进行采集 图2C)。对于每种条件,通过以下步骤提取扩散物体的尺寸:i)使用 ImageJ 软件中的线工具获取斑点的强度分布曲线;ii)将该强度分布曲线拟合为高斯函数,计算其半高全宽(FWHM)值,并以此作为斑点直径的估算值图 2D)。如预期所示,图中显示 图 2E,以极高的时间分辨率(即 65 ms/帧)进行采集时,所得结构的平均尺寸接近于使用上述标准工具或通过提取固定样品中结构所获得的尺寸 iMSD y轴截距。相反,在低速采集时,由于成像过程中结构的自然动态变化,会导致所观测结构的表观尺寸增大。在次优实验条件下,所提取的结构/动态信息无法真实反映被研究对象的内在特性。
选定主要实验参数后,即可针对目标细胞内结构生成数据集。对于大胞饮囊泡,将细胞与70 kDa葡聚糖共同孵育20分钟后,在处理后的不同时间点(从30分钟至约180分钟)采集标记的细胞内结构的时间序列图像。有趣的是,在运输过程中可检测到大胞饮囊泡的结构和动态特性发生渐进性变化(图3;左侧图中显示了大胞饮囊泡的σ02、Dm、α和N的分布情况)。在运输过程中,大胞饮囊泡的局部扩散系数(Dm)未表现出明显变化,而其特征尺寸(σ02)和整体运动模式(α)均随时间发生演变。
值得注意的是,在运输过程中可观察到巨胞饮体的平均尺寸减小图 3A,左侧),同时其运动的亚扩散特性增强(即表现为 α 值降低, 图 3C,左侧面板)。此外,从每次采集数据中提取巨胞饮体的数量:结果如图所示 图 3D左侧面板清晰地显示出大胞饮泡数量随时间增加。所有这些结果均与预期高度一致,因为标记了葡聚糖的大胞饮泡应在质膜处起源于孤立的、较大的膜包被囊泡(这些囊泡也具备沿细胞骨架组分移动的能力),但随后会逐渐与由大量较小且随机扩散的结构组成的内体-溶酶体通路发生融合。
如上所述,大胞饮泡的结果与在胰岛素分泌颗粒(ISG)上进行的类似测量结果形成鲜明对比(图3,右列)。在与大胞饮泡相同的观察时间窗口内,胰岛素分泌颗粒未表现出由iMSD推导出的结构/动力学参数(以及细胞内颗粒的平均数量)随时间演变的趋势。此外,σ02、Dm 和 α 的特征值与作为参照的溶酶体存在显著差异。该结果进一步证实了上文所预期的观点,即胰岛素分泌颗粒处于一种“稳态”被探测,在此状态下,任何时刻整个ISG群体的平均结构/动力学特性均保持不变(即,除非稳态条件发生改变,例如受到外界刺激,否则这些特性保持恒定)。
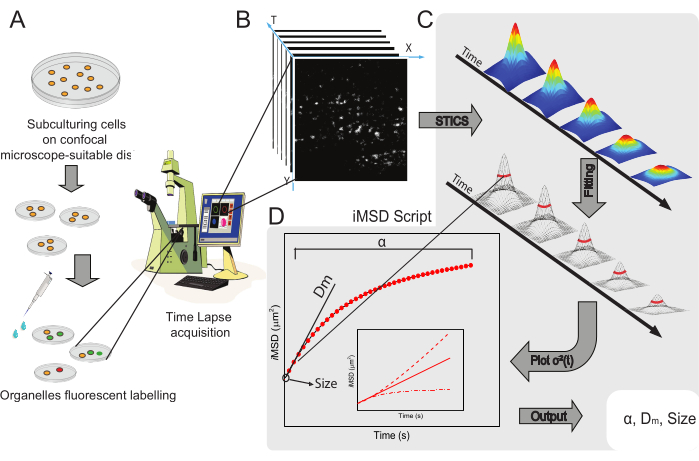
图1:实验流程。(A)在进行共聚焦实验前24小时(转染实验为48小时),将细胞接种至适用于显微镜观察的细胞培养皿中。随后根据标记方法对细胞进行相应处理(见实验方案),以标记目标细胞质细胞器。(B)典型的共聚焦图像采集包括一系列活细胞胞质区域的图像序列(时间推移),用于描述标记细胞器动态随时间变化的过程。(C)利用定制的Matlab脚本对时间推移视频进行分析,首先计算时空图像相关函数,并通过高斯拟合绘制iMSD曲线(D),并提取拟合参数,用以描述成像细胞器的结构动态参数。缩写:iMSD = 成像衍生的均方位移;STICS = 时空图像相关光谱;α = 异常扩散系数;Dm = 局部扩散率;σ2(τ) = 方差。请点击此处查看该图的高清版本。
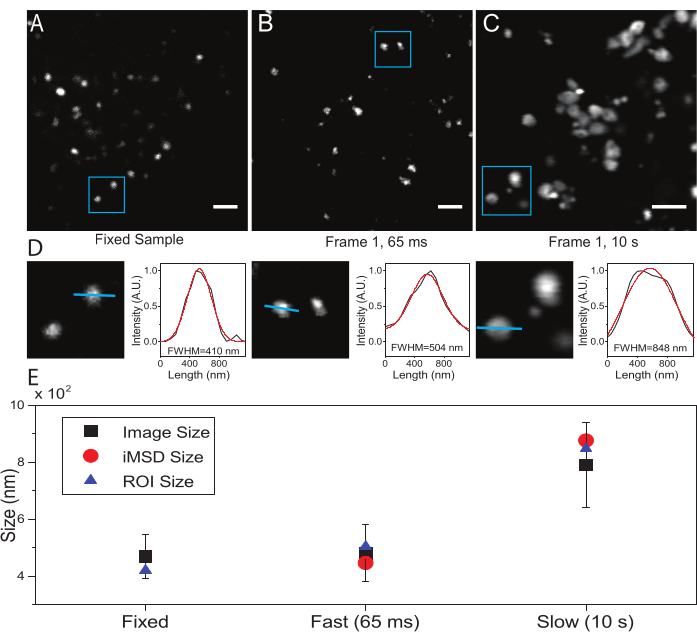
图 2:合适的实验参数。(A)固定样品中染色溶酶体的典型图像。比例尺 = 2 µm。(B)在活细胞中使用适当参数获取的染色溶酶体图像堆栈的第一帧。时间分辨率:65 ms/帧。比例尺 = 2 µm。(C)在活细胞中以低速获取的染色溶酶体图像堆栈的第一帧:成像过程中由于细胞器运动导致的溶酶体表观尺寸的人为形变可见。时间分辨率:10 s/帧。比例尺 = 2 µm。(D)对(A)、(B)和(C)中蓝色感兴趣区域(ROI)内成像溶酶体的尺寸计算示例。沿蓝色线的强度分布通过高斯函数拟合,以获得半高全宽(FWHM),即斑点尺寸的估计值。每个拟合的 FWHM 值均已标出。(E)通过(D)中所述图像分析获得的所有成像溶酶体(黑色方块,均值与标准差)、蓝色 ROI 内的溶酶体(蓝色三角形)以及通过成像衍生均方位移(iMSD)分析获得的尺寸值的图示。本图来自22。缩写:ROI = 感兴趣区域;FWHM = 半高全宽;iMSD = 成像衍生均方位移。请点击此处查看此图的放大版本。
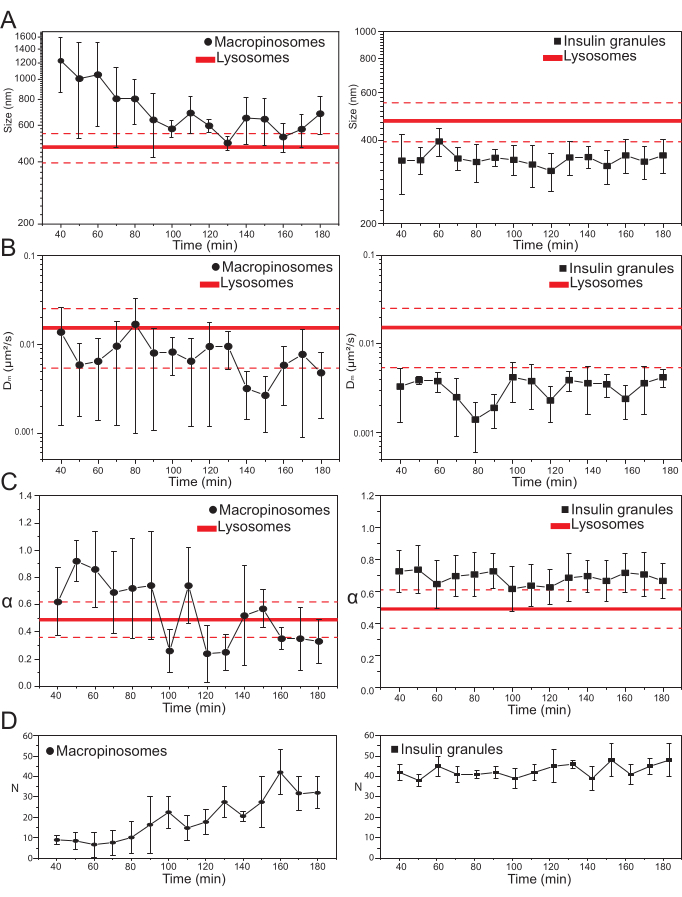
图 3:标记细胞器的时间演化。(A)iMSD 提取的尺寸值随时间变化的曲线,表示在10分钟时间窗口内连续采集数据的测量值均值。左侧显示巨胞饮泡平均尺寸的逐步减小(黑色圆圈),右侧显示胰岛素分泌颗粒的尺寸不随时间变化(黑色方块),并与溶酶体进行比较(粗红线表示平均尺寸值,± 标准差以红色虚线表示)。(B)和(C)通过 iMSD 分析提取的巨胞饮泡(左)和胰岛素颗粒(右)的 Dm 和 α 系数随时间的变化。(D)在每次采集的时间序列视频的第一帧中测得的标记巨胞饮泡和胰岛素颗粒数量的时间演化。缩写:iMSD = 成像衍生的均方位移;α = 异常扩散系数;Dm = 局部扩散率,N = 数量。请点击此处查看该图的放大版本。
| 细胞器 | 标记方法 | 细胞系 | 大小 (nm) | Dm ( × 10-3 μm2/s) | α | N | 参考文献 | ||
| 早期内体 (EE) | CellLight Early Endosome GFP | HeLa | 395±74 | 3.0±2.4 | 1.02±0.20 | 40 | 10 | ||
| 晚期内体 (LE) | CellLight Late Endosome GFP | HeLa | 693±102 | 15.4±10.6 | 0.57±0.16 | 58 | 10 | ||
| 溶酶体 (LY) | LysoTracker DND-99 | HeLa | 471±76 | 15.3±9.0 | 0.49±0.13 | 143 | 10, 14 | ||
| 小窝 (CAV) | Caveolin-EGFP | HeLa | 405±49 | 3.1±1.8 | 1.00±0.22 | 15 | 10 | ||
| 网格蛋白包被小泡 (CCV) | Transferrin-Alexa 488 | HeLa | 513±62 | 16.2±9.9 | 0.48±0.17 | 33 | 10 | ||
| 胰岛素颗粒 (IG) | C-peptide-EGFP | INS-1E | 335±56 | 3.0±1.7 | 0.70±0.14 | 107 | 11 | ||
| 早期内吞体 (EMCR) | Fluorescein-Dextran 70 kDa | HeLa | 979±423 | 8.3±9 | 0.79±0.27 | 36 | 10 | ||
| 中间期内吞体 (IMCR) | Fluorescein-Dextran 70 kDa | HeLa | 702±180 | 13.7±19.9 | 0.60±0.38 | 29 | 10 | ||
| 晚期内吞体 (LMCR) | Fluorescein-Dextran 70 kDa | HeLa | 592±127 | 5.8±4.7 | 0.39±0.21 | 21 | 10 | ||
表1:结构与动态 iMSD 提取的参数 该表格显示了尺寸、D 的数值m,以及针对不同细胞器测得的α系数,注明标记策略、所用细胞系及分析的采集次数。数值以均值 ± 标准差表示。缩写:iMSD = 成像获得的均方位移;α = 异常扩散系数;Dm = 局部扩散率,N = 数量;GFP = 绿色荧光蛋白;EGFP = 增强型绿色荧光蛋白。
补充文件 1:iMSD 轨迹推导与分析的详细信息。 请点击此处下载该文件。
支持文件 1: 请点击此处下载该文件。
讨论
与获取类似信息的现有技术相比,iMSD 的特性和优势十分明显。对于结构信息,首选方法是透射电子显微镜(TEM)分析。通过该方法,可以获得分子分辨率甚至更高水平的超微结构细节,即使对于亚细胞纳米结构也是如此。然而,TEM 所特有的空间分辨率是以牺牲时间维度上的信息为代价的,而本研究关注的正是时间维度的信息。为了弥补这一不足,近年来活细胞成像技术的进步尤其值得关注。这些进展包括性能更优的新型荧光标记物(例如亮度更高、光稳定性更强)、优化的标记流程以及更灵敏的探测器。此外,已有分析工具可用于获取亚细胞尺度上的结构参数(例如,基于相量分析的局部图像相关光谱法(PLICS23)测定“尺寸”,或通过数量与亮度分析(Number&Brightness analysis)24 判断聚集/寡聚化状态)和动态参数(例如,通过单颗粒追踪(single-particle tracking),即 (SPT)25,26,27,28 确定扩散规律)。SPT 方法可直接获得目标颗粒的运动轨迹及其均方位移(MSD)。但其缺点是需要探针密度较低、标记物非常明亮,并且必须测量大量单个目标的轨迹以满足统计学要求。在测量时间分辨率方面,无机的光稳定探针(例如量子点或金属纳米颗粒)可提高 SPT 的性能,但其制备和标记过程更为复杂。
与这些标准相比,本文所述的iMSD方法具有一些关键优势。首先,该方法可与相对较弱的荧光标记联用,例如基因编码的荧光蛋白(如应用于干扰素刺激基因产物ISGs)。因此,与单粒子追踪(SPT)相比,在使用相同标记的情况下,由于所需光子数更少,可实现更高的时间分辨率8。其次,iMSD方法仅受限于时间分辨率,而不受衍射极限的限制。事实上,尽管使用的是受衍射限制的光学系统,仍可测量出低于衍射极限的平均分子位移,这一点此前已通过STICS技术在分子流动研究中得到证实29。位移测量的实际分辨率取决于相关函数测量的准确性(以信噪比衡量),这解释了其为何不受衍射极限限制。因此,显然可测量的最小位移取决于目标分子的扩散系数以及成像系统的时间分辨率。
在这方面,需要考虑的是,使用激光扫描显微镜对亚细胞纳米结构(如大胞饮体或胰岛素颗粒)进行成像时效果最佳:现有的扫描速度显著高于目标对象的动态变化速度。在这种情况下,成像过程中对象的移动可以忽略不计,相关函数可近似为高斯函数。最后,iMSD 方法可轻松应用于基于光栅扫描或宽场相机成像的多种商用光学显微镜系统,且无需系统校准(仅当需要精确估算粒子尺寸时才需校准)。该方法有效运行的一个重要参数是适当的空间采样。一般而言,为实现拟合算法的满意收敛,成像兴趣区域的最小尺寸应至少为所关注最大位移的3倍。
总之,iMSD 方法仅需要配备快速采集功能的显微镜即可实现。所关注的结构可标记任意遗传编码或有机荧光染料,从而实现多通道成像。预计在不久的将来,交叉 iMSD 分析将被用于筛选细胞内纳米结构的亚群,并揭示它们在细胞内的相互作用及共扩散行为,后者是细胞生物物理学中的热点课题。如果 iMSD 分析过程中丢失了任何细节,这必然与动态亚细胞纳米结构中大量分子信息有关。由于时间分辨率有限,这些信息在测量过程中不可避免地被平均化。然而从理论上讲,只要能够达到足够的成像速度,就不存在提取分子信息的技术限制8。随着探测器速度/灵敏度及成像技术的持续进步,预计未来将能够从单个数据集中提取出关于整个亚细胞区室及其分子组分的完整信息。
披露
作者声明无利益冲突。
致谢
本工作获得了欧洲研究理事会(ERC)在欧盟“地平线2020”研究与创新计划(资助协议编号866127,项目CAPTUR3D)下的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 100倍青霉素-链霉素-谷氨酰胺 | Gibco | 10378-016 | 细胞培养基添加剂 |
| C肽-EGFP | 质粒 | ||
| DMEM高糖培养基 | Gibco | 31053028 | 细胞培养基(HeLa) |
| 胎牛血清 | Gibco | 10082147 | 细胞培养基添加剂 |
| 异硫氰酸荧光素标记的葡聚糖(70 kDa) | Sigma Aldrich | 46945-100MG-F | 试剂 |
| HeLa细胞系 | ATCC | CCL-61 | 细胞系 |
| Lipofectamine 2000 | TermoFisher | 11668019 | 转染试剂 |
| Lysotracker Red DND-99 | Gibco | L7528 | 试剂 |
| Matlab | MathWork | 软件 | |
| 适用于显微镜的细胞培养皿 | Willco | GWSt-3522 | 培养皿 |
| Olympus FV1000 | Olympus Japan | 共聚焦显微镜 | |
| RPMI 1640 | Gibco | 11835063 | 细胞培养基(INS-1E) |
参考文献
- Murphy, J. E., Padilla, B. E., Hasdemir, B., Cottrell, G. S., Bunnett, N. W. Endosomes: a legitimate platform for the signaling train. Proceedings of the National Academy of Sciences of the United States of America. 106 (42), 17615-17622 (2009).
- Mosesson, Y., Mills, G. B., Yarden, Y. Derailed endocytosis: an emerging feature of cancer. Nature Reviews Cancer. 8 (11), 835-850 (2008).
- Mellman, I., Yarden, Y. Endocytosis and cancer. Cold Spring Harbor Perspectives in Biology. 5 (12), 016949(2013).
- Di Fiore, P. P. Endocytosis, signaling and cancer, much more than meets the eye. Preface. Molecular Oncology. 3 (4), 273-279 (2009).
- Bogan, J. S., Xu, Y., Hao, M. Cholesterol accumulation increases insulin granule size and impairs membrane trafficking. Traffic. 13 (11), 1466-1480 (2012).
- Ballabio, A., Gieselmann, V. Lysosomal disorders: From storage to cellular damage. Biochimica et Biophysica Acta. 1793 (4), 684-696 (2009).
- Hu, Y. -B., Dammer, E. B., Ren, R. -J., Wang, G. The endosomal-lysosomal system: from acidification and cargo sorting to neurodegeneration. Translational Neurodegeneration. 4, 18(2015).
- Di Rienzo, C., Gratton, E., Beltram, F., Cardarelli, F. Spatiotemporal fluctuation analysis: a powerful tool for the future nanoscopy of molecular processes. Biophysical Journal. 111 (4), 679-685 (2016).
- Di Rienzo, C., Gratton, E., Beltram, F., Cardarelli, F. Fast spatiotemporal correlation spectroscopy to determine protein lateral diffusion laws in live cell membranes. Proceedings of the National Academy of Sciences of the United States of America. 110 (30), 12307-12312 (2013).
- Di Rienzo, C., Gratton, E., Beltram, F., Cardarelli, F. From fast fluorescence imaging to molecular diffusion law on live cell membranes in a commercial microscope. Journal of Visualized Experiments: JoVE. (92), e51994(2014).
- Digiacomo, L., et al. Dynamic fingerprinting of sub-cellular nanostructures by image mean square displacement analysis. Scientific Reports. 7 (1), 14836(2017).
- Durso, W., et al. Lysosome dynamic properties during neuronal stem cell differentiation studied by spatiotemporal fluctuation spectroscopy and organelle tracking. International Journal of Molecular Sciences. 21 (9), 3397(2020).
- Ferri, G., et al. Insulin secretory granules labelled with phogrin-fluorescent proteins show alterations in size, mobility and responsiveness to glucose stimulation in living β-cells. Scientific Reports. 9 (1), 2890(2019).
- Durso, W., D'Autilia, F., Amodeo, R., Marchetti, L., Cardarelli, F. Probing labeling-induced lysosome alterations in living cells by imaging-derived mean squared displacement analysis. Biochemical and Biophysical Research Communications. 503 (4), 2704-2709 (2018).
- Digiacomo, L., Digman, M. A., Gratton, E., Caracciolo, G. Development of an image Mean Square Displacement (iMSD)-based method as a novel approach to study the intracellular trafficking of nanoparticles. Acta Biomaterialia. 42, 189-198 (2016).
- Swanson, J. A., Watts, C. Macropinocytosis. Trends in Cell Biology. 5 (11), 424-428 (1995).
- Jones, A. T. Macropinocytosis: searching for an endocytic identity and role in the uptake of cell penetrating peptides. Journal of Cellular and Molecular Medicine. 11 (4), 670-684 (2007).
- Falcone, S., et al. Macropinocytosis: regulated coordination of endocytic and exocytic membrane traffic events. Journal of Cell Science. 119, Pt 22 4758-4769 (2006).
- Kerr, M. C., et al. Visualisation of macropinosome maturation by the recruitment of sorting nexins. Journal of Cell Science. 119, Pt 19 3967-3980 (2006).
- Rorsman, P., Renstrom, E. Insulin granule dynamics in pancreatic beta cells. Diabetologia. 46 (8), 1029-1045 (2003).
- Di Rienzo, C., Piazza, V., Gratton, E., Beltram, F., Cardarelli, F. Probing short-range protein Brownian motion in the cytoplasm of living cells. Nature Communications. 5 (1), 5891(2014).
- Ferri, G., et al. Time-lapse confocal imaging datasets to assess structural and dynamic properties of subcellular nanostructures. Scientific Data. 5 (1), 180191(2018).
- Scipioni, L., Gratton, E., Diaspro, A., Lanzanò, L. Phasor analysis of local ICS detects heterogeneity in size and number of intracellular vesicles. Biophysical Journal. 111 (3), 619-629 (2016).
- Digman, M. A., Dalal, R., Horwitz, A. F., Gratton, E. Mapping the number of molecules and brightness in the laser scanning microscope. Biophysical Journal. 94 (6), 2320-2332 (2008).
- Li, C. H., Bai, L., Li, D. D., Xia, S., Xu, T. Dynamic tracking and mobility analysis of single GLUT4 storage vesicle in live 3T3-L1 cells. Cell Research. 14 (6), 480-486 (2004).
- Donovan, K. W., Bretscher, A. Tracking individual secretory vesicles during exocytosis reveals an ordered and regulated process. Journal of Cell Biology. 210 (2), 181-189 (2015).
- Westphal, V., et al. Video-rate far-field optical nanoscopy dissects synaptic vesicle movement. Science. 320 (5873), 246-249 (2008).
- Tabei, S. M. A., et al. Intracellular transport of insulin granules is a subordinated random walk. Proceedings of the National Academy of Sciences of the United States of America. 110 (13), 4911-4916 (2013).
- Hebert, B., Costantino, S., Wiseman, P. W. Spatiotemporal image correlation spectroscopy (STICS) theory, verification, and application to protein velocity mapping in living CHO cells. Biophysical Journal. 88 (5), 3601-3614 (2005).
重印与许可
