本方案描述了在非小细胞肺癌患者来源类器官模型中,对靶向信号通路抑制剂的药物敏感性进行标准化评估的方法。
本文内容
摘要
摘要
源自临床患者样本的新型三维癌症类器官培养体系,是评估肿瘤内异质性及癌症靶向抑制剂治疗反应的重要模型系统。在胃肠道和胰腺癌领域的开创性研究已凸显出患者来源类器官(PDOs)作为贴近患者的培养系统的潜力,并已有越来越多的模型被建立。类似地,其他癌症类型的研究也聚焦于建立类器官模型并优化培养方案。值得注意的是,三维癌症类器官模型能够维持原始肿瘤样本的遗传复杂性,从而在实验环境中将肿瘤来源的测序数据转化为基于遗传信息指导的靶向治疗。此外,PDOs未来可能有助于评估合理的联合治疗方案,以克服肿瘤耐药相关的适应性变化。其中,非小细胞肺癌(NSCLC)是当前研究的重点领域,因为耐药性的产生最终限制了靶向抑制剂的治疗效果。利用NSCLC来源的PDOs对可靶向治疗机制进行早期评估,有助于指导合理的联合治疗策略。本文描述了一种标准化的实验方案,用于在基于细胞培养板的体系中评估NSCLC来源三维PDOs对靶向抑制剂的药物敏感性,该方案亦可拓展应用于联合治疗及其他治疗模式的研究。
引言
针对致癌驱动因素的个体化治疗已彻底改变了癌症治疗方式,显著提高了患者的生存率,并减少了治疗相关的副作用1。分子诊断和测序技术的最新进展揭示了人类肿瘤的复杂性,其中空间和时间上的异质性影响着治疗反应2。长期以来,在细胞培养模型中重现这些亚克隆差异仅限于在遗传背景均一的细胞系中研究特定的基因改变。近年来新开发的源自肿瘤活检或手术切除肿瘤组织的三维患者来源类器官(PDO)模型,能够更真实地反映患者来源肿瘤组织中的细胞复杂性和信号通路间的交互作用3。因此,已成功建立源自胃肠道和胰腺癌的肿瘤类器官,并有效模拟了其遗传多样性及治疗反应的决定因素4,5,6。在非小细胞肺癌(NSCLC)中,类器官的建立仍面临挑战,未来需进一步优化培养技术及选择性培养基成分,以推动NSCLC PDO模型更广泛和系统化的应用7,8。
开发针对初始药物治疗后残留肿瘤细胞的联合疗法,对于抑制耐药性的产生并最终提高患者生存率至关重要9。鉴于类器官培养体系的结构复杂性,需要优化传统的药物反应参数,以实现对药物敏感性的准确且可重复的检测。目前已有多种方法可用于描绘患者来源类器官(PDO)模型中的药物反应,包括基于成像的检测指标10,11,以及通过检测细胞内ATP含量来评估细胞活力的传统检测方法6,12等。本文中,我们建立并描述了一种标准化的实验流程,用于评估非小细胞肺癌(NSCLC)患者来源类器官模型对靶向已知临床驱动因子的靶向治疗药物的敏感性。
方案
在人体受试者研究中,已获得知情同意,并根据加州大学旧金山分校(UCSF)机构审查委员会批准的方案(IRB,方案编号:#13-12492,或 CC#17-23309)进行组织采集。类器官培养物的建立是与研究合作伙伴协作,依据先前已发表的方法13,14,15,16,利用去标识化的临床样本完成的。用于维持培养和药物剂量递增实验的类器官培养物均取自第三代或更晚代次。以下所有实验均在无菌条件下,于哺乳动物组织培养实验室环境中进行。
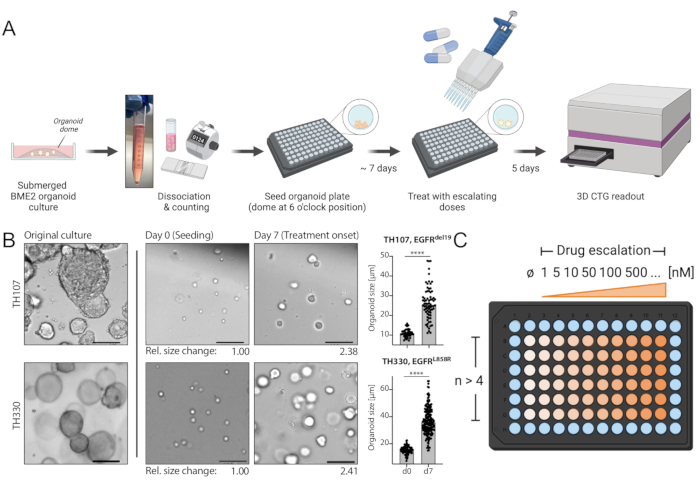
图1: 技术流程图及关键步骤示意图. (A实验流程包括在96孔板中接种类器官,接种后第7天进行药物剂量递增处理,并在处理后第5天使用ELISA酶标仪通过化学发光法检测细胞存活率。B) EGFR 的一个示例图像del19-阳性 TH107 和 EGFRL858R阳性TH330 NSCLC类器官培养物。图中显示了原始培养物、接种时的细胞(第0天)以及接种后7天开始处理时的类器官(第7天)。比例尺 = 100 µm在最初的7天培养期间,类器官直径的变化被量化并表明 >类器官尺寸增加2倍。下图代表性图像下方展示了第7天相对于第0天平均尺寸的相对倍数变化。对于TH107,7天内的倍数变化为2.38,表明其倍增时间为5.88天(141.12 h)。对于TH330,7天内的倍数变化为2.41,表明其倍增时间为5.81天(139.42 h)。类器官尺寸变化的量化分析及统计学评估结果如右图所示。统计学显著性通过非配对t检验计算得出, p < 0.0001. (C类器官96孔板中药物剂量递增处理布局。图中显示了技术重复次数及示例性给药剂量,包括阴性对照。示意图使用基于网络的绘图工具BioRender绘制。 请点击此处查看此图的放大版本。
1. 实验准备
- 按先前报道的方法制备生长培养基(GM)15:使用含L-丙氨酰-L-谷氨酰胺的Dulbecco改良Eagle培养基/Ham's F12营养混合物(DMEM/F-12),添加100 U/mL青霉素/链霉素、10 mM HEPES、25 nM hRspondin、1× B27、5 mM烟酰胺、1.25 mM N-乙酰半胱氨酸、500 nM A-8301、500 nM SB202190、50 µg/mL Primocin、100 ng/mL hNoggin、100 ng/mL hFGF-10、25 ng/mL hFGF-7(参见材料表)。
注意:轻轻混匀以避免起泡,并通过0.22 µm滤器过滤。使用前1小时内将培养基预热至37 °C。 - 按先前报道的方法制备低生长因子培养基(LGM)16,不添加表皮生长因子(EGF):使用Advanced Dulbecco改良Eagle培养基/Ham's F12营养混合物(DMEM/F-12),添加1 mM HEPES、1× L-丙氨酰-L-谷氨酰胺、1×青霉素-链霉素-谷氨酰胺、10 mM烟酰胺、1 mM N-乙酰半胱氨酸、1× B27、500 nM A-8301、100 ng/mL hNoggin。
注意:轻轻混匀以避免起泡,并通过0.22 µm滤器过滤。使用前1小时内将培养基预热至37 °C。 - 将BME2(低生长因子基底膜提取物,2型,参见材料表)置于冰上或4 °C过夜解冻。
2. 制备单细胞悬液及细胞接种
- 按照以下步骤(2.1.1–2.1.6)对浸没培养的BME2类器官进行解离。
- 小心吸去培养板中的培养基,避免触碰浸没在液体中的BME2类器官培养物。
注意:培养基吸取可根据研究人员的偏好进行,例如使用基础液体吸取系统或移液器。避免接触嵌入BME2中的类器官,以免造成类器官生物量的损失。 - 用合适的重组酶对浸没培养的 BME2 类器官进行胰蛋白酶消化处理(参见 材料表)。在6孔板中,每孔加入2 mL。通过反复吹打机械性破碎BME2。将培养板置于 37 °C 在细胞培养孵箱中孵育 5 min。
- 将悬液转移至15 mL离心管中,在600 x g条件下离心 g 室温下孵育5分钟。
- 小心吸除重组酶,避免接触类器官沉淀。
注意:可能存在残留的BME2。如有需要,可重复酶消化步骤。 - 将类器官沉淀重悬于GM中(步骤1.1)。加入DNase I至终浓度100 U/mL,室温孵育5分钟(参见 材料表).
- 以 600 x 离心 g 室温孵育3分钟。小心吸弃上清液,勿触碰类器官沉淀,弃去。用新鲜的GM重悬。
- 小心吸去培养板中的培养基,避免触碰浸没在液体中的BME2类器官培养物。
- 类器官单细胞悬液的接种
- 预热一个新的黑色透明底96孔板于 37 °C 在细胞培养孵育箱中孵育10分钟。
注意:使用透明底板对于监测类器官生长和药物反应至关重要。 - 用于计数时,用 PBS 将细胞悬液稀释至 1:5(总体积: 500 µL)并使用细胞分析仪对细胞悬液进行计数(参见 材料列表).
注意:务必乘以稀释倍数(×5)以获得最终的细胞浓度。也可使用其他计数方法,例如血细胞计数板。应通过活率染色检测(如台盼蓝染色)监测细胞活力。17)。使用细胞分析仪自动评估细胞活力。经细胞分析仪检测,类器官单细胞悬液的活力应≥95%(补充图1). - 计算实验所需接种的细胞悬液体积。
注意:接种浓度为1500 个细胞/µL BME2,具有 5 µL 每孔所需 BME2(总数量:7500 个细胞/孔)。一张 96 孔板需要 6 x 10E5 个细胞,包括接种 60 个含有类器官穹顶的孔(4.5 x 10E5)以及实验冗余量(按总计 80 孔计算)。 - 若实验中包含多个96孔板,为每个拟接种的96孔板准备一份细胞悬液,分装至1.5 mL微量离心管中。
注意:由于操作 BME2 会增加实验偏差,因此需要为每个接种的 96 孔板准备额外的实验用量和独立的分装 aliquot。 - 根据步骤 2.2.3 的计算结果,通过上下吹打充分重悬单细胞悬液后,分装细胞。在 600 x g 室温孵育5 min。使用P200移液器小心吸除上清液,避免接触细胞沉淀。将细胞沉淀短暂置于冰上(约1 min),随后在BME2中重悬细胞沉淀。
注意:残留的培养基可能影响BME2的结构和硬度。小心吸出所有培养基。将细胞短暂置于冰上,使细胞沉淀适应低温环境,以便在BME2中重悬时不易形成团块。BME2须始终保持在冰上,以维持其液态。对于一块96孔板, 400 µL BME2 是重悬细胞沉淀所必需的。请小心重悬细胞沉淀,避免产生气泡。 - 将预热的黑色透明底96孔板向您方向倾斜。使用以下方法铺板细胞: 5 µL 每孔细胞悬液量及在每孔的6点钟位置接种细胞穹隆图1A)。将细胞接种到剩余的内圈孔中(96孔板的第2-10列以及B-G行)。
注:反向移液18 处理 BME2 时建议采取此项措施。 - 不要移动96孔板,将新接种细胞的培养板置于细胞培养超净工作台中,在室温下孵育5分钟。然后将培养板转移至细胞培养孵箱中,在37°C、5% CO₂条件下孵育10分钟 37 °C.
- 小心地添加 100 µL 每孔加入 GM 培养基至所有含类器官的孔中(96 孔板的第 2–10 列以及 B–G 行)。添加 100 µL 向培养板边缘外侧孔中加入 PBS。
- 在GM培养基中培养BME2包埋的类器官 37 °C 在细胞培养箱中共同培养总共 7 天。定期在光学显微镜下观察类器官的生长情况。
注意:请参阅 图1B 和 补充表1 从接种到给药当天的预期生长进程示例。 - 培养 3-4 天后更换一次培养基:将培养板顺时针旋转 180° (类器官现位于12点钟位置),如有条件,使用多通道移液装置从类器官圆顶的对侧位置小心吸除生长培养基,然后加入新鲜生长培养基。
- 预热一个新的黑色透明底96孔板于 37 °C 在细胞培养孵育箱中孵育10分钟。
3. 药物处理
- 为所选药物(例如 osimertinib)在 LGM 中配制系列药物稀释液,用于处理 EGFR 突变型 NSCLC 类器官。设置阴性对照组(LGM 培养基 + 0.1% DMSO)。根据接种孔数及实验冗余量,准备足量的各浓度药物分装液。
注意:对于靶向抑制剂,建议采用包含 ≥8 个浓度梯度、范围在 1 nM–10 µM 之间的稀释系列。 - 将类器官培养板顺时针旋转 180°(此时类器官位于 12 点钟位置)。优先使用多通道移液器小心吸除 GM 培养基。
注意:吸除 GM 时避免接触类器官穹顶结构,以防类器官生物量损失并影响实验结果。 - 每孔加入 100 µL 对照溶液(如 LGM 培养基 + 0.1% DMSO)或药物溶液。
注意:请参见 图 1C 查看以 96 孔板格式进行的药物剂量递增处理示意图。 - 将处理后的类器官置于细胞培养孵箱中,在 37 °C 下孵育 5 天。
4. 基于发光法的存活率检测读数
- 收获与存活率检测
- 按照参考文献19进行存活率检测。
- 将试剂(见材料表)在 4 °C 条件下过夜解冻。使用前在室温水浴中平衡 30 分钟,并通过倒置混匀。
- 向每孔加入等体积的试剂(每孔 100 µL)。将移液枪尖置于类器官穹顶位置,上下吹打充分混匀。在室温避光条件下孵育 5 分钟。
- 使用多通道移液器,将约 75%(150 µL)的裂解液(步骤 4.1.1.2)转移至新的白色、不透明底 96 孔板。
注:将 75% 的裂解液转移至新板可确保后续检测中无气泡产生,同时不影响检测的灵敏度。 - 在室温避光条件下继续孵育 25 分钟。
- 使用 ELISA 酶标仪(积分时间 0.25–1 秒/孔)记录发光值(见材料表)。
- 以适当格式保存数据,例如包含所有原始读数、板布局及所用药物的数据表格。
- 按照参考文献19进行存活率检测。
- 使用统计分析软件进行数据分析(见材料表)
- 创建一个新的 XY 表格,并以 XY 格式插入数据:行(X)为阴性对照及递增的药物浓度,浓度以摩尔浓度下的 log [抑制剂] 表示;列(Y)为检测读数,包括按列堆叠的重复数据。
注:阴性对照的浓度应标记为最小值(由于对数刻度下不能为 0),例如 log [抑制剂], M = -10。 - 选择分析 > 归一化,并设置以下参数:对每个子列分别归一化,Y = 0 定义为 0%,以“每个子列中的最后一个值(或第一个值,取较大者)”定义为 100%,结果以百分比表示,并绘制结果图。
- 选择分析 > XY 分析 > 非线性回归 > 剂量反应 - 抑制 > log (抑制剂) vs. 归一化反应 -- 变量斜率,对归一化数据拟合非线性回归曲线。
- 以非线性回归分析输出的 IC50 值表格形式报告结果,并绘制包含归一化数据点(均值 ± 标准差)及拟合回归曲线的响应曲线图。
- 创建一个新的 XY 表格,并以 XY 格式插入数据:行(X)为阴性对照及递增的药物浓度,浓度以摩尔浓度下的 log [抑制剂] 表示;列(Y)为检测读数,包括按列堆叠的重复数据。
结果
在建立非小细胞肺癌(NSCLC)类器官方面已观察到相当大的挑战7。因此,近期成功建立肺癌类器官并将其用于药物处理检测的研究令人振奋20,21,22。EGFR突变占NSCLC病例的11.3%23。针对EGFR突变型NSCLC,使用EGFR抑制剂进行靶向治疗是一线治疗方案,可改善患者的总体生存率并提高治疗安全性24。本研究测定了FDA批准的EGFR酪氨酸激酶抑制剂奥希替尼(osimertinib)对EGFR突变型NSCLC类器官的敏感性24,25。EGFR突变型NSCLC类器官来源于NSCLC患者的手术切除组织或肿瘤活检样本,并通过DNA测序确认携带指定的致癌性突变。如上所述,EGFR突变型NSCLC类器官模型接受递增剂量的奥希替尼处理,并在给药开始后第5天通过基于发光法的细胞存活读数评估PDO的活力。结果显示,EGFR突变(EGFRdel19)阳性的TH107类器官对奥希替尼敏感,其半数最大抑制浓度(IC50)为56 nM(图2A);而EGFR突变(EGFRL858R)阳性的TH116类器官则对奥希替尼耐药,其IC50大于1 µM(图2B)。EGFRdel19阳性TH107 NSCLC类器官的药物敏感性伴随显著的转录组变化,包括细胞周期相关基因特征表达下调以及凋亡相关基因特征表达上调(补充图2A,B)。作为对照,本文展示了对奥希替尼敏感的EGFRdel19阳性NSCLC细胞系PC9的响应数据(图3A,B)。该对照数据包括通过二维发光法存活检测分析PC9细胞在递增浓度奥希替尼下的存活情况(图3A),以及通过Western blot检测EGFR-MAPK信号通路水平上的信号抑制情况(图3B)。总体而言,这些数据突显了本实验方案在评估药物反应、区分敏感型与耐药型NSCLC PDO模型方面的准确性。未来还需对EGFRL858R阳性TH116类器官及可获取的临床样本进行进一步分析,以明确可能与耐药相关的分子改变。
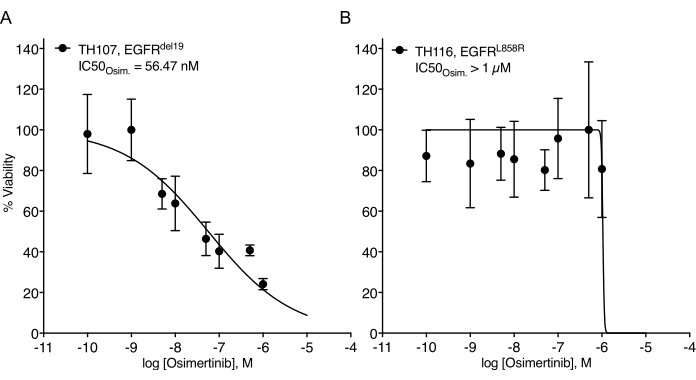
图2EGFR突变型非小细胞肺癌类器官模型对奥希替尼剂量递增的治疗反应曲线 (A) 敏感型EGFR对奥希替尼的响应del19阳性 TH107 NSCLC 类器官模型。 (B) 耐药性EGFR对奥希替尼的反应L858R阳性TH116非小细胞肺癌类器官模型。数据点以均值±标准差的归一化值表示,并通过数据拟合非线性回归曲线。TH107, n 每个数据点设 6 次技术重复。TH116, n 每个数据点设 4 次技术重复。 请点击此处以查看此图的放大版本。
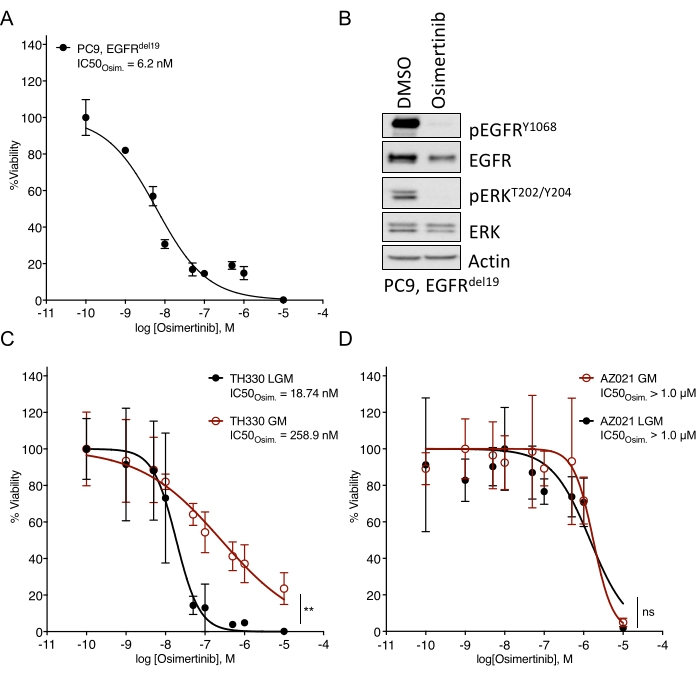
图3:不同培养基中培养的对EGFR突变敏感的非小细胞肺癌细胞系及类器官模型对奥希替尼治疗反应的比较数据。 (A) 敏感型EGFR对奥希替尼的响应del19阳性NSCLC细胞系PC9,通过标准2D-CTG检测法确定。B) PC9细胞经奥希替尼处理两天后的信号抑制2 µM). (C) 敏感型EGFR中奥希替尼的应答L858R阳性TH330 NSCLC类器官模型在LGM和GM培养基中的培养。D) Osimertinib在LGM和GM培养基中对耐药性AZ021非小细胞肺癌类器官模型的响应。致癌性EGFR的验证L858R AZ021中的突变失败,可能是导致对奥希替尼无响应的原因。对于A和C-D,数据点以标准化值表示,显示均值±标准差,并通过数据拟合非线性回归曲线。PC9, n 每个数据点设 3 次技术重复。TH330, n 每个数据点设 5 次技术重复。AZ021, n 每个数据点设 6 个技术重复。对归一化数据进行 Wilcoxon 秩和检验以确定统计学显著性。对于 TH330(C,LGM 与 GM, ** p = 0.0078。对于 AZ021(D,LGM 与. GM,无显著性 p = 0.0742. 请点击此处以查看此图的放大版本。
补充图1:EGFR突变型类器官模型计数与活力评估的代表性细胞分析仪结果。 TH107和TH107BC指不同的类器官模型,A和B指生物学重复。针对每个模型和生物学重复,均进行了三次技术重复计数;所有样本的活力均≥95%。右侧展示了细胞计数过程中的代表性图像,显示细胞活力良好且已充分解离为单细胞。请点击此处下载该文件。
补充图 2:利用获得的 EGFR 突变型 TH107 非小细胞肺癌类器官的批量 RNA 测序数据进行基因集富集分析(GSEA),比较未处理对照组(DMSO)与经奥希替尼处理 3 天的细胞(OSI_D3)。(A-B)在靶向治疗下,敏感细胞将发生细胞周期 G1 期阻滞并停止活跃增殖。由于 G2M 期细胞周期基因的表达与活跃增殖相关,因此预期在未处理对照组(DMSO)中出现名义上的富集。而对于凋亡相关基因,则预期在经处理的细胞(OSI_D3)中出现名义上的富集。上述两点均已在经奥希替尼处理的 EGFR 突变型 TH107 非小细胞肺癌类器官模型中得到验证:(A)Hallmark G2M 表达特征的 GSEA 分析(左图)显示 DMSO 处理组细胞中存在富集。名义富集评分(NES):+1.708,FDR < 0.0001。(B)Hallmark 凋亡表达特征的 GSEA 分析(右图)显示奥希替尼处理组细胞中存在富集。NES:-1.075,FDR:ns,0.3275。 请点击此处下载该文件。
补充图3:在EGFR突变型TH330类器官模型中,联合药物处理在奥希替尼剂量递增的同时联用第二种固定浓度的附加抑制剂。 针对EGFR突变型非小细胞肺癌(NSCLC)中与耐药相关的改变,即SRC和AXL的激活26,27,28,采用SRC抑制剂塞拉替尼(Saracatinib,100 nM)或AXL抑制剂R428(500 nM)进行联合药物干预,每个数据点包含 n = 6 个技术重复。两种联合治疗均增强了治疗反应,其中奥希替尼联合SRC抑制剂塞拉替尼的效果具有统计学显著性。采用Wilcoxon秩和检验评估统计学显著性:奥希替尼 vs. 奥希替尼 + 塞拉替尼,*p = 0.0195;奥希替尼 vs. 奥希替尼 + R428,无显著性(ns),p = 0.2500。请点击此处下载该文件。
补充表 1:类器官从接种(d0)到处理后第 7 天(d7)的尺寸变化。(A)EGFRdel19 阳性非小细胞肺癌类器官 TH107 的生长发育情况。(B)EGFRL858R 阳性非小细胞肺癌类器官 TH330 的生长发育情况。请点击此处下载该表格。
讨论
本论文建立并描述了一种用于评估非小细胞肺癌(NSCLC)来源的三维患者来源类器官(PDO)模型中药物敏感性的标准化方案。除了药物敏感性研究外,还需对现有的类器官模型进行进一步表征,以确定药物敏感性差异的潜在原因。这可能包括对类器官和患者样本进行基因谱型分析,以及其他适用于类器官的分析方法,如针对分化标志物和一般细胞信号通路生物标志物及生理特性的免疫组织化学染色13,29。
实验方案中的关键步骤
本文所述方案提供了一种标准化的工作流程,只要严格遵循,即可实现准确且可重复的药物敏感性分析。以下步骤需特别注意:在制备单细胞悬液过程中使用TrypLE和DNAse I进行消化、将单细胞悬液接种至BME2基质胶中、从接种到给药期间对类器官生长的监测、培养基更换,以及在基于发光法检测细胞存活率时对嵌入BME2的类器官进行充分解离与裂解。(1) 尽管在常规传代培养中,类器官经TrypLE解离后额外添加DNAse I消化并非必需,但在进行药物梯度实验接种时不应省略DNAse I消化步骤,因其有助于将类器官簇更有效地分离为单细胞悬液,从而实现更准确的细胞计数。(2) 将单细胞悬液接种至BME2是关键步骤,因为BME2在室温下会迅速凝固。因此,每次最多接种1–2行,其余待接种样品应置于冰上,直至前一批完成接种。值得注意的是,在继续接种过程中需反复吹打细胞,以维持细胞悬液的均一性。(3) 从接种到给药前的7天扩增期间,必须密切监测类器官的生长情况。图1B和补充表1展示了预期的发育过程。值得注意的是,如图1B所示,通过明场显微镜观察并结合图像分析评估类器官大小的变化,可精确判断类器官生长速率及倍增时间的差异。倍增时间可能影响药物反应,这一点已在近期文献中有所讨论30。若类器官生长速度显著快于示例情况,可考虑缩短接种至给药之间的扩增时间以及药物处理时间。(4) 此外,更换培养基时需格外小心,避免吸走类器官。将嵌入BME2的类器官接种于孔板6点钟位置,可在更换培养基时将孔板顺时针旋转180°,使吸液操作在类器官相对位置进行,从而安全移除培养基。(5) 最后,在基于发光法的存活检测中,必须彻底裂解嵌入BME2的类器官,以确保结果准确。根据试剂说明书要求,应反复吹打样品,理想情况下使用无滤芯枪头,以促进充分裂解,并严格按照说明控制孵育时间。此外,在最终使用酶标仪读数前,将75%的裂解液(而非全部体积)转移至白色不透明底的96孔板,有助于获得可靠结果,因该操作可保证每孔体积一致,并避免因剧烈吹打引入气泡。
值得注意的是,在BME2包埋的类器官培养中进行药物反应谱分析时,其标准差可能高于常规细胞系培养中观察到的结果(图2,图3A)。这种较高的标准差源于多种因素,包括使用BME2时在接种过程中更易出现微小差异,以及在初始7天生长期内不同孔中单个类器官生长速率的差异。因此,每种药物浓度应至少接种四次或更多技术重复。
最重要的是,必须仔细评估恶性细胞中是否存在致癌驱动突变,以及正常气道上皮细胞的污染是否有限。在非小细胞肺癌(NSCLC)类器官建立过程中,正常气道上皮细胞过度生长可能构成挑战7。通过拷贝数分析,或基于PCR和测序的方法来确认致癌驱动突变的存在,是确保NSCLC类器官培养质量的首选方法。
方法的改进与故障排除
基础培养基中添加的培养成分及相应的生长因子会显著影响靶向抑制剂的药物反应。这些成分可激活旁路受体和信号通路,从而影响并限制药物的疗效(例如 FGF、HGF、EGF)。26尽管富含生长因子且成分优化的培养基可能更有利于类器官培养的扩增,但如上所述,药物剂量递增和敏感性评估应在降低生长因子含量的培养基中进行。该建议基于内部对不同培养基配方与药物反应数据的比较经验。图3C)。虽然培养基溶液可能影响细胞对某些药物处理的敏感程度,并可能导致IC50 数值显示,无论培养基配方如何,敏感性或抗性的表型均明显且稳定图3C,D此外,建议在类器官培养中保持培养基配方和药物反应谱的一致性,每个浓度至少需要接种四个或更多技术重复。这对于确定敏感性范围的基准尤为重要。 与. 所关注抑制剂的抗性。
方法的局限性
本文所述方案描述了在培养患者来源的癌细胞时,非小细胞肺癌(NSCLC)三维癌类器官模型对靶向抑制剂的敏感性。然而,要对药物耐药性和敏感性进行详细表征,还需开展其他实验,包括通路抑制相关的药效动力学分析,以及驱动癌基因和继发性突变存在的测序分析。此外,肿瘤微环境中非癌旁观细胞通过相互作用或分泌因子产生的微环境刺激等旁观者因素未被纳入考虑,当尝试建立与免疫细胞或基质细胞共培养的类器官模型时,需要开发新的实验方案。近期研究已强调利用类器官模型模拟肿瘤微环境相互作用,并分析对免疫检查点抑制剂(如抗PD-L1治疗)的响应13,31。
该方法相对于现有/替代方法的意义
三维癌症类器官模型能够重现原始肿瘤中存在的遗传多样性及治疗反应的决定因素4,5,6。值得注意的是,空间和时间上的异质性可促进肿瘤的进化,导致肿瘤亚克隆的平行出现和相继发展32,33。瘤内异质性在治疗压力下筛选出更具抗性的肿瘤细胞方面具有重要意义9,34,35。本文提供的方案可实现对患者来源样本中靶向抑制剂治疗敏感性的快速评估。因此,类器官模型相较于缺乏遗传多样性的传统均质细胞系模型,或相较于使用细胞系或患者来源异种移植模型的长期研究,具有明显优势。此外,本方案可在成本和分析能力限制较小的情况下,扩展为多组治疗方案及联合治疗策略的研究。例如,在主要靶向抑制剂剂量递增的同时加入第二种感兴趣的药物,并与单独递增主要靶向抑制剂进行比较,可高效评估潜在的联合治疗效应,且仅需极少的额外生物材料(补充图3)。与用于监测类器官发育和药物反应的成像学评估方法相比,本文所述基于荧光素酶的细胞存活检测法具有相似的灵敏度,且所需设备和培训更为简单。
该方法在特定研究领域中的重要性及潜在应用
建立一种标准化流程,用于从患者样本中构建癌症类器官模型,并进一步开展药物敏感性分析,具有重要的临床应用潜力。ex vivo 药理学分析已被广泛认可,可用于检测肿瘤中的脆弱位点及与耐药相关的特征,并与患者的治疗反应相关联36,37。尤为重要的是,ex vivo 药物敏感性分析可辅助临床治疗方案的选择,并为针对耐药机制设计合理的联合治疗策略提供依据。总体而言,该方法有助于推动分子靶向治疗或联合治疗方案的个体化策略优化。后者可能有助于早期干预药物耐受性和耐药机制,增强临床治疗反应,从而在未来改善患者的预后。
披露
T.G.B. 担任 Array Biopharma、Revolution Medicines、Novartis、AstraZeneca、Takeda、Springworks、Jazz Pharmaceuticals、Relay Therapeutics、Rain Therapeutics、Engine Biosciences 的顾问,并从 Novartis、Strategia、Kinnate 和 Revolution Medicines 获得研究经费。
致谢
我们感谢加州大学旧金山分校(UCSF)Jeroen P Roose 实验室和斯坦福大学 Calvin J Kuo 实验室在类器官培养及方案开发方面提供的建议。我们进一步感谢加州大学旧金山分校 Roose 实验室的 Oghenekevwe M. Gbenedio 提供实验方案和样本建立方面的指导。本研究项目得到了美国国立卫生研究院(NIH)[U54CA224081] 的资助支持。F. Haderk 获得了德国癌症援助基金会(German Cancer Aid)颁发的 Mildred Scheel 博士后奖学金支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | |||
| 15 mL 离心管 | |||
| 500 mL 真空过滤/储存瓶系统,0.2 µm 孔径,33.2 cm2 尼龙膜 | Corning | 430773 | 适用于两种培养基 |
| 96 孔细胞培养处理、平底透明黑色微孔板 | Corning | 3904 | |
| 96 孔细胞培养处理、白色实底平底微孔板 | Corning | 3917 | |
| A-8301 | Tocris Bioscience | 293910 | 适用于两种培养基 |
| Advanced DMEM/F-12 | Gibco | 12634010 | 用于 LGM |
| B27 | Life Technologies | 12587010 | 适用于两种培养基 |
| BioRender 2021 | https://biorender.com/ | 在线科学绘图软件 | |
| BME2(Cultrex RGF 基底膜提取物,2 型) | R&D Systems | 353301002 | |
| 细胞培养箱(37 °C,5% CO2) | |||
| CellTiter-Glo 3D 细胞活力检测试剂盒 | Promega | G9682 | 3D-CTG 检测读数试剂 |
| 可容纳 15 mL 离心管的离心机 | |||
| 脱氧核糖核酸酶 I(DNAse I) | ThermoFisher Scientific | 18047019 | |
| 杜氏磷酸盐缓冲盐溶液 | Corning | MT21031CV | |
| DMEM/F-12,含 GlutaMAX 补充剂 | Gibco | 10565018 | 用于 GM |
| GlutaMax | Gibco | 35050061 | 用于 LGM |
| GraphPad Prism 软件(版本 9.2.0) | GraphPad | 统计分析软件 | |
| HEPES | Gibco | 15630080 | 适用于两种培养基 |
| hFGF-10 | PeproTech | 100-26-100ug | 用于 GM |
| hFGF-7 | PeproTech | 100-19-50ug | 用于 GM |
| hNoggin | PeproTech | 120-10C-100ug | 适用于两种培养基 |
| hRspondin | PeproTech | 120-38-100ug | 用于 GM |
| 低吸附移液器吸头,20 µL(P20) | ThermoFisher Scientific | 2149P-05-HR | |
| 低吸附移液器吸头,200 µL(P200) | ThermoFisher Scientific | 2069-05-HR | |
| 常规长度移液器吸头,1000 µL(P1000) | ThermoFisher Scientific | 2179-HR | |
| 多通道移液器 | |||
| N-乙酰半胱氨酸 | Fisher Scientific | 50-424-777 | 适用于两种培养基 |
| 烟酰胺 | Sigma Aldrich | N0636-100G | 适用于两种培养基 |
| 奥希替尼 | Selleck Chem | S7297 | |
| 青霉素-链霉素-谷氨酰胺 | Gibco | 10378016 | 用于 LGM |
| 青霉素/链霉素 | Cytiva HyClone | SV30010 | 用于 GM |
| 移液器(不同规格) | |||
| 酶标仪 | Molecular Devices | SpectraMax M5 | 设备,可使用其他型号酶标仪替代 |
| Primocin | Invivogen | ant-pm-1 | 用于 GM |
| SB202190 | Selleck Chem | S1077 | 用于 GM |
| TrypLE Express 酶 | Gibco | 12604021 | |
| 真空泵及连接管路 | |||
| Vi-CELL XR 细胞分析仪 | Beckman Coulter | Vi-CELL XR | 细胞分析仪/计数器 |
参考文献
- de Bono, J. S., Ashworth, A. Translating cancer research into targeted therapeutics. Nature. 467 (7315), 543-549 (2010).
- Dagogo-Jack, I., Shaw, A. T. Tumour heterogeneity and resistance to cancer therapies. Nature Reviews Clinical Oncology. 15 (2), 81-94 (2018).
- Drost, J., Clevers, H. Organoids in cancer research. Nature Reviews Cancer. 18 (7), 407-418 (2018).
- Tiriac, H., et al. Organoid profiling identifies common responders to chemotherapy in pancreatic cancer. Cancer Discovery. 8 (9), 1112-1129 (2018).
- Ooft, S. N., et al. Patient-derived organoids can predict response to chemotherapy in metastatic colorectal cancer patients. Science Translational Medicine. 11 (513), (2019).
- Vlachogiannis, G., et al. Patient-derived organoids model treatment response of metastatic gastrointestinal cancers. Science. 359 (6378), 920-926 (2018).
- Dijkstra, K. K., et al. Challenges in establishing pure lung cancer organoids limit their utility for personalized medicine. Cell Reports. 31 (5), 107588(2020).
- Lo, Y. -H., Karlsson, K., Kuo, C. J. Applications of organoids for cancer biology and precision medicine. Nature Cancer. 1 (8), 761-773 (2020).
- Bivona, T. G., Doebele, R. C. A framework for understanding and targeting residual disease in oncogene-driven solid cancers. Nature Medicine. 22 (5), 472-478 (2016).
- Jabs, J., et al. Screening drug effects in patient-derived cancer cells links organoid responses to genome alterations. Molecular Systems Biology. 13 (11), 955(2017).
- Tashiro, T., et al. In vivo and ex vivo cetuximab sensitivity assay using three-dimensional primary culture system to stratify KRAS mutant colorectal cancer. PLoS One. 12 (3), 0174151(2017).
- van de Wetering, M., et al. Prospective derivation of a living organoid biobank of colorectal cancer patients. Cell. 161 (4), 933-945 (2015).
- Neal, J. T., et al. Organoid Modeling of the Tumor Immune Microenvironment. Cell. 175 (7), 1972-1988 (2018).
- Hysenaj, L., et al. SARS-CoV-2 infection studies in lung organoids identify TSPAN8 as novel mediator. bioRxiv. , (2021).
- Sachs, N., et al. Long-term expanding human airway organoids for disease modeling. The EMBO Journal. 38 (4), 100300(2019).
- Salahudeen, A. A., et al. Progenitor identification and SARS-CoV-2 infection in human distal lung organoids. Nature. 588 (7839), 670-675 (2020).
- Strober, W. Trypan blue exclusion test of cell viability. Current Protocol in Immunology. , Appendix 3, Appendix 3B (2001).
- Pushparaj, P. N. Revisiting the micropipetting techniques in biomedical sciences: A fundamental prerequisite in good laboratory practice. Bioinformation. 16 (1), 8-12 (2020).
- Promega Corporation. CellTiter-Glo 3D Cell Viability Assay. Promega Corporation. , (2021).
- Kim, M., et al. Patient-derived lung cancer organoids as in vitro cancer models for therapeutic screening. Nature Communication. 10 (1), 3991(2019).
- Hu, Y., et al. Lung cancer organoids analyzed on microwell arrays predict drug responses of patients within a week. Nature Communication. 12 (1), 2581(2021).
- Shi, R., et al. Organoid cultures as preclinical models of non-small cell lung cancer. Clinical Cancer Research. 26 (5), 1162-1174 (2020).
- Collisson, E. A., et al. Comprehensive molecular profiling of lung adenocarcinoma. Nature. 511 (7511), 543-550 (2014).
- Ramalingam, S. S., et al. Overall Survival with Osimertinib in untreated, EGFR-mutated advanced NSCLC. New England Journal of Medicine. 382 (1), 41-50 (2019).
- Soria, J. -C., et al. Osimertinib in untreated EGFR-mutated advanced non-small-cell lung cancer. New England Journal of Medicine. 378 (2), 113-125 (2017).
- Rotow, J., Bivona, T. G. Understanding and targeting resistance mechanisms in NSCLC. Nature Reviews Cancer. 17 (11), 637-658 (2017).
- Zhang, Z., et al. Activation of the AXL kinase causes resistance to EGFR-targeted therapy in lung cancer. Nature Genetics. 44 (8), 852-860 (2012).
- Kanda, R., et al. Erlotinib resistance in lung cancer cells mediated by integrin β1/Src/Akt-driven bypass signaling. Cancer Research. 73 (20), 6243-6253 (2013).
- Bruun, J., et al. Patient-derived organoids from multiple colorectal cancer liver metastases reveal moderate intra-patient pharmacotranscriptomic heterogeneity. Clinical Cancer Research. 26 (15), 4107-4119 (2020).
- Hafner, M., Niepel, M., Chung, M., Sorger, P. K. Growth rate inhibition metrics correct for confounders in measuring sensitivity to cancer drugs. Nature methods. 13 (6), 521-527 (2016).
- Yuki, K., Cheng, N., Nakano, M., Kuo, C. J. Organoid models of tumor immunology. Trends in Immunology. 41 (8), 652-664 (2020).
- Gerlinger, M., et al. Intratumor heterogeneity and branched evolution revealed by multiregion sequencing. New England Journal of Medicine. 366 (10), 883-892 (2012).
- McGranahan, N., Swanton, C. Biological and therapeutic impact of intratumor heterogeneity in cancer evolution. Cancer Cell. 27 (1), 15-26 (2015).
- Rambow, F., et al. Toward minimal residual disease-directed therapy in melanoma. Cell. 174 (4), 843-855 (2018).
- Marine, J. C., Dawson, S. J., Dawson, M. A. Non-genetic mechanisms of therapeutic resistance in cancer. Nature Reviews Cancer. 20 (12), 743-756 (2020).
- Frismantas, V., et al. Ex vivo drug response profiling detects recurrent sensitivity patterns in drug-resistant acute lymphoblastic leukemia. Blood. 129 (11), 26-37 (2017).
- Drusbosky, L. M., et al. Predicting response to BET inhibitors using computational modeling: A BEAT AML project study. Leukemia Research. 77, 42-50 (2019).
重印与许可
标签
