本方案描述了在锥虫感染期间生成代谢物分布三维模型的步骤,包括样品采集、代谢物提取、液相色谱-串联质谱数据采集概述、三维模型构建以及最终的数据可视化。
本文内容
摘要
摘要
病原体趋向性与疾病趋向性是指病原体选择性定植或损伤的组织部位,从而导致局部化的疾病症状。感染人类的锥虫科寄生虫包括引起恰加斯病的Trypanosoma cruzi、引起昏睡病的Trypanosoma brucei ,以及引起利什曼病的Leishmania物种。这些寄生虫共同影响全球约2000万人。这些寄生虫表现出特定的趋向性:T. cruzi主要靶向心脏、食管和结肠;T. brucei则累及脂肪组织、胰腺、皮肤、循环系统和中枢神经系统;皮肤型Leishmania菌株主要感染皮肤,而内脏型Leishmania菌株则主要侵犯肝脏、脾脏和骨髓。因此,从空间视角研究锥虫科疾病发病机制至关重要。化学图谱技术通过液相色谱-质谱法(LC-MS)对小分子丰度进行检测,并结合微生物学和免疫学参数,生成三维可视化图像。本实验方案展示了如何应用化学图谱技术研究锥虫科寄生虫感染过程中的致病机制,具体步骤包括系统性的组织取样与代谢物提取、液相色谱-串联质谱(LC-MS/MS)数据采集,最终生成代谢物分布的三维图谱。该方法可用于多个研究方向,例如T. cruzi、T. brucei或Leishmania在组织定植过程中的营养需求、感染部位的免疫代谢调控,以及局部组织代谢紊乱与临床疾病症状之间的关系,从而全面揭示锥虫科疾病的发病机制。
引言
Leishmania 属、非洲锥虫(Trypanosoma brucei)和美洲锥虫(Trypanosoma cruzi)均属于锥虫科寄生虫。Leishmania 原虫引起利什曼病,其临床表现包括可自愈或局限于皮肤的皮肤利什曼病、累及口腔、鼻腔和咽喉黏膜组织并造成损害的黏膜皮肤利什曼病,以及具有内脏嗜性的内脏利什曼病,后者可导致发热和肝脾肿大1,2。T. brucei 引起人类非洲锥虫病(HAT),也称为昏睡病,主要见于非洲国家3。在寄生虫定位于血液和淋巴系统的血淋巴期,患者临床表现包括肝脾肿大、发热、头痛、肌肉骨骼疼痛、淋巴结病和贫血;随后进入脑膜脑炎期,寄生虫侵入中枢神经系统,导致睡眠障碍、行为改变,最终发展为致命性昏迷4。T. cruzi 引起恰加斯病,流行于美洲地区。感染者通常经历一个初始的急性期,此期常无症状,但寄生虫具有广泛的组织嗜性。约有10%–30%的感染者在感染数十年后进入慢性期,表现为食管扩张、结肠扩张以及心血管并发症5,6。
代谢组学研究小分子物质(50–1,500 Da),包括来自初级或次级代谢的生物化合物,以及外源性化合物,如药物或食物来源的分子。在宿主-病原体相互作用的研究背景下,代谢组学可用于探索感染对宿主代谢物环境的影响,这对于评估病原体对宿主的作用至关重要。此外,它还可用于评估病原体对宿主营养和免疫环境的适应性7,8,9。质谱(MS)和核磁共振(NMR)波谱法是代谢组学中常用的工具,用于鉴定、定量和表征代谢物。这种"组学"方法也可应用于生物标志物的发现和药物开发10,11。
鉴于锥虫科寄生虫具有特定的组织嗜性,空间代谢组学分析可为理解其所致疾病的发病机制提供重要见解。通过绘制代谢物的空间分布图谱,研究人员揭示了慢性 Trypanosoma cruzi 感染在小鼠心脏组织中以及急性和长期 Trypanosoma cruzi 感染在小鼠胃肠道中局部影响的代谢物6,12,13。具体而言,三维化学图谱显示,在慢性 Trypanosoma cruzi 感染小鼠的心脏组织中,寄生虫的持续存在与代谢改变之间存在脱节现象。代谢紊乱最显著的区域位于心脏的下部和心尖段,这与恰加斯病的症状部位(心尖部动脉瘤)相吻合。在特定心脏部位受感染影响并与疾病严重程度相关的代谢物家族包括酰基肉碱和甘油磷酰胆碱12,13,14。在胃肠道中,持续的代谢改变与恰加斯病症状部位(食管和结肠)一致;相比之下,在无恰加斯病症状表现的部位(如小肠),代谢状态则恢复至正常水平。胃肠道中受感染局部影响的代谢物包括酰基肉碱、甘油磷酰胆碱、犬尿氨酸、色氨酸和胆酸。此外,这些分析还揭示了一种新的恰加斯病代谢耐受机制6。将这些方法应用于皮肤利什曼病的研究发现,病灶部位存在显著的代谢紊乱,同时在病灶邻近的宏观上看似健康的组织中也观察到特定的代谢变化。例如,病灶部位谷氨酰胺水平降低,而质荷比(m/z)为 200–299、400–499、500–599 和 600–699 范围内的甘油磷酰胆碱显著升高。PC (O-34:1) 仅在病灶邻近区域升高15。
本论文的目的是展示生成代谢物分布三维模型("化学图谱")所需的关键步骤,并将其应用于锥虫动质体寄生虫感染模型(图1)。该方法建立在代谢组学及代谢组学数据处理领域的多项关键进展基础之上,特别是开发了“ili”软件,可便捷地将代谢组学数据映射到三维模型上16。
方案
所有所述动物实验均已获得俄克拉荷马大学或加州大学圣地亚哥分校机构动物护理和使用委员会的批准。所有处理感染性材料的步骤均在生物安全柜(II级,A2型)内进行,并遵循当地法规。
1. 组织采集
- 感染适当的利什曼原虫感染动物模型,通常为小鼠或仓鼠。
注意:根据期望产生的症状、疾病进展速度、疾病严重程度等因素,存在多种不同的小鼠模型用于利什曼原虫感染研究。使用者可根据需要自行选择。- 对于皮肤利什曼病感染模型,通过足垫皮下或耳部皮内途径接种15。
- 对于内脏利什曼病感染模型,通过静脉注射途径接种1,17。
- 对于恰加斯病和昏睡病感染模型,通过腹腔注射途径接种6,12,18,19。根据寄生虫菌株及计划的时间点确定所用寄生虫剂量。
- 规划组织切片位置。
- 计划每份切片至少含有10 mg组织,最佳范围为30–50 mg。
- 对于恰加斯病感染模型,应系统性采集心脏和胃肠道组织片段。
- 对于皮肤利什曼病感染模型,采集病灶组织及邻近病灶的组织样本。
- 对于内脏利什曼病感染模型,计划采集脾脏和多个肝叶组织。此外,脂肪组织等其他组织部位也可能具有采集价值。
警告:感染动物的样本必须在机构批准的相应生物安全规程下操作。通常需佩戴个人防护装备(PPE),并在生物安全柜(II级,A2型)内开启管盖和采集样本。
- 标记并称量用于匀浆的离心管。
- 根据所用匀浆系统的类型选择合适的离心管。若使用TissueLyser系统,应选用2 mL微量离心管。
- 根据机构IACUC批准或IACUC认可的方案,采用异氟烷过量麻醉法处死小鼠。
- 按照预先规划系统性地进行组织切片,每管放置一份组织样本。
- 注意在不同样本之间使用提取溶剂(本方案中为50%甲醇)清洗样本采集工具。
- 保持离心管盖打开状态,立即将样本在液氮中快速冷冻。
警告:在液氮完全蒸发前不得关闭管盖,以防氮气膨胀导致离心管爆炸。采取充分措施确保皮肤不接触液氮(使用低温手套和镊子夹持离心管)。佩戴安全面罩。 - 将离心管置于干冰上保存,直至完成所有目标样本的采集。
- 暂停点:将样本储存在-80 °C条件下,直至准备进行提取操作。
- 称量离心管以确定组织样本重量,并记录于电子表格中。
- 称重过程中保持样本处于冷冻状态:将离心管置于干冰上,迅速称重后立即放回干冰。称重期间不得让样本解冻。
2. 代谢物提取
注意:整个过程中必须使用液相色谱-质谱联用级的液体和试剂。本方法改编自参考文献20。
- 准备所有提取溶剂(LC-MS级H2O,色谱纯甲醇,添加有 4 µM 磺胺氯哒嗪,LC-MS级二氯甲烷:甲醇加标 2 µM 使用专用玻璃器皿,将磺氯吡啶(sulfachlorpyridazine)置于1 L玻璃瓶中。
注意:应根据样品重量计算需准备的体积,考虑 500 µL 每50 mg样品加入水 500 µL 甲醇加标样品中的 4 µM 每50 mg样品含磺胺氯哒嗪 1,000 µL 预冷的二氯甲烷:甲醇(添加了 spiked) 2 µM 每50 mg样品中含磺氯吡啶,计算体积时增加10%以补偿移液误差。提取溶剂应储存于 4 °C 至少静置过夜以预冷。 - 按照下述步骤对组织样本进行基于水的匀浆处理。
- 加入一个5 mm的不锈钢珠(参见 材料表) 使用珠子分配器向每个含有组织样本的2 mL 微离心管中加入。将试管保持在冰上。
- 准备一个含有LC-MS级H的空白管2O,该步骤将经历全部流程并作为空白提取对照。使用平均H2从样品提取物中获取 O 体积。加入预冷的液相色谱-质谱级 H2O 至冷冻的组织样本。
- 根据组织重量,通过添加水来标准化水体积 500 µL 水/50 mg 样品,使用步骤 1.7 中计算的样品重量。
警告:若处理生物危害性样本,须继续遵循经机构批准的相应生物安全规程。通常包括穿戴个人防护装备(PPE),且仅在生物安全柜(II级,A2型)内打开管子。
- 根据组织重量,通过添加水来标准化水体积 500 µL 水/50 mg 样品,使用步骤 1.7 中计算的样品重量。
- 使用组织匀浆器以 25 Hz 速度匀浆样品 3 min(参见 材料表).
- 盖紧管盖,以防止处理过程中试剂溢出。
- 收集约十分之一的匀浆体积,用于DNA提取、qPCR、基于蛋白质的分析或其他分析(如需要)。根据所收集的体积,储存于微量离心管或96孔板中,在-80 °C下可保存长达6个月。80 °C,如果DNA提取实验需在另一天进行。更长的保存时间可能可行,但尚未经过测试。
- 使用任何标准的市售哺乳动物DNA提取试剂盒进行DNA提取(参见 材料表) 从组织中提取的方法如参考文献所述13. 定量测定DNA产量,并将提取的DNA在-20 °C即使在3年之后,qPCR仍可获得可接受的DNA数量和质量。
注意:此步骤可在代谢物提取后的另一天对冷冻匀浆进行。 - 按照参考文献所述进行 qPCR13,使用 180 ng 提取的 DNA。
注意:此步骤可使用先前采集并保存在 -20 °C 的 DNA 样本进行20 °C.- 在进行研究时 T. cruzi 感染,使用以下引物:ASTCGGCTGATCGTTTTCGA 和 AATTCCTCCAAGCAGCGGATA 来定量寄生虫水平21 以及以下引物用于标准化宿主DNA水平:TCCCTCTCATCAGTTCTATGGCCCA 和 CAGCAAGCATCTATGCACTTAGACCCC22 参见 材料表).
注意:推荐的 qPCR 循环参数如下:变性温度为 95 °C 10分钟;进行40个循环 95 °C 30秒,然后 58 °C 60 秒,最后 72 °C 60秒。根据所用的实时荧光定量PCR仪,进行熔解曲线分析。使用ΔΔCt法处理数据。23 通过将样本的ΔΔCt值与标准曲线进行比较,可获得采样点之间的相对寄生虫载量。绝对定量可通过将样本衍生的ΔΔCt值与已知数量的寄生虫加入未感染组织样本后生成的标准曲线进行比较获得,这些标准样本需按照步骤2.2至2.2.4.1进行处理和提取。
- 在进行研究时 T. cruzi 感染,使用以下引物:ASTCGGCTGATCGTTTTCGA 和 AATTCCTCCAAGCAGCGGATA 来定量寄生虫水平21 以及以下引物用于标准化宿主DNA水平:TCCCTCTCATCAGTTCTATGGCCCA 和 CAGCAAGCATCTATGCACTTAGACCCC22 参见 材料表).
- 使用多重细胞因子试剂盒或标准商用 ELISA 试剂盒对免疫应答进行基于蛋白质的表征(参见 材料表如参考文献所述13 在储存的匀浆上。
- 使用任何标准的市售哺乳动物DNA提取试剂盒进行DNA提取(参见 材料表) 从组织中提取的方法如参考文献所述13. 定量测定DNA产量,并将提取的DNA在-20 °C即使在3年之后,qPCR仍可获得可接受的DNA数量和质量。
- 至少保存一半的 500 µL 用于代谢物提取的匀浆体积。
- 进行水相代谢物提取。
注意:溶剂的选择可根据目标代谢物的化学性质进行调整。- 加入预冷的液相色谱-质谱级甲醇,其中添加有 4 µM 将磺胺氯哒嗪加入匀浆液中,以达到甲醇终浓度为50%的条件 2 µM 水中磺胺氯哒嗪的检测
警告:甲醇易燃且具有危害性。应采取适当的安全措施,包括在通风橱或生物安全柜内操作。 - 在组织匀浆器中以25 Hz的频率匀浆样品3分钟。将样品在16,000 x g 在 4 °C 10 分钟。
- 将等体积的上清液收集到96孔板中。所选体积应与所有样品中甲醇和水总体积的最小值相匹配。此为水相组分。
- 将剩余的水相匀浆上清液置于 -80 °C 作为备用。
- 将固体残留物置于冰上保存,同时收集上清液。
- 干燥水相提取上清液至完全干燥(约3小时或过夜)。使用最大转速,不加热。
- 将干燥的96孔板在-80 °C下冷冻80 °C.
- 加入预冷的液相色谱-质谱级甲醇,其中添加有 4 µM 将磺胺氯哒嗪加入匀浆液中,以达到甲醇终浓度为50%的条件 2 µM 水中磺胺氯哒嗪的检测
- 进行有机代谢物提取。
注意:溶剂的选择可根据目标代谢物的化学性质进行调整。- 添加 1,000 µL 每50 mg预冷的二氯甲烷样品:甲醇中添加的 2 µM 将磺胺氯哒嗪加入步骤2.3.4的固体残留物中。
警告:处理溶剂时应采用适当的安全操作规程,包括在通风良好且气流速率合适的通风橱内进行操作。 - 在组织匀浆器中以25 Hz的频率匀浆样品5分钟。将样品在16,000 x g 在 4 °C 10 分钟
- 取等体积的上清液加入96孔板中。所选体积应与所有样品中二氯甲烷:甲醇的最小体积相匹配。此为有机相。
- 将沉淀物保存在 -80 °C 作为备用。将剩余的有机提取物储存在 -80 °C 作为备用。在通风橱中将有机相提取物过夜风干。
- 将干燥的96孔板在-80℃下冷冻80 °C.
- 添加 1,000 µL 每50 mg预冷的二氯甲烷样品:甲醇中添加的 2 µM 将磺胺氯哒嗪加入步骤2.3.4的固体残留物中。
3. 液相色谱-质谱数据采集
- 将水相和有机相提取物分别重悬于60 µL的50%甲醇 + 2 µM磺胺二甲氧嘧啶中,然后混合。超声处理10分钟;随后离心10分钟,将上清液转移至洁净的96孔板中。使用无交叉污染的板封膜密封,并将板置于LC自动进样器中。
警告:处理溶剂时应采取适当的安全措施,包括在通风良好且气流速率合适的通风橱内操作。 - 将合适的流动相连接至LC系统(参见材料表)。
备注:对于正相反相LC,作者推荐使用LC-MS级H2O + 0.1%甲酸作为流动相A,LC-MS级乙腈 + 0.1%甲酸作为流动相B,流速为0.5 mL/min,并采用7.5分钟的LC梯度。推荐的梯度程序如参考文献6中所述:0–1分钟,2% B;1–2.5分钟,线性增加至98% B;2.5–4.5分钟,保持98% B;4.5–5.5分钟,线性降低至2% B;5.5–7.5分钟,保持2% B。 - 确保仪器清洁。在正负两种模式下对质谱进行校准。
- 根据仪器要求进行质谱性能评估。
- 创建质谱运行序列。
- 首先运行2个空白样、2个标准品(6种混合物)和5个按稀释系列排列的混合质量控制样(QC),起始进样体积为2 µL,逐步增加至30 µL。
- 随机化样品顺序。
- 每运行12个样品后,运行一个空白样,然后运行一个混合QC样。
- 连接C8 LC色谱柱(粒径1.7 µm,孔径100 Å,尺寸50 × 2.1 mm 长 × 内径),监测是否泄漏或背压过高。根据仪器的标准操作程序解决任何问题。
- 启动质谱运行序列,采集数据依赖型LC-MS/MS数据。
备注:对于Q-Exactive Plus质谱仪,在正离子模式下使用加热电喷雾电离(HESI)和数据依赖型二级质谱采集(前5个离子),MS1分辨率为70,000,MS2分辨率为17,500;MS1自动增益控制(AGC)目标值为1E6,MS2为2E5;MS1和MS2的最大离子时间(IT)均为100 ms;MS1扫描范围为100–1500 m/z;MS2隔离窗口为1 m/z。设定鞘气流速为35,辅助气体流速为10,吹扫气体流速为0,喷雾电压为3.8 kV,毛细管温度为320 °C,S透镜射频(RF)水平为50,辅助气体温度为350 °C。- 验证数据质量:检查初始空白样(确认无显著峰)、标准品(确认存在预期峰且峰形对称)以及质量控制样(确认存在预期峰、峰形良好及预期峰强度)。
- 在运行过程中定期监控质谱运行状态。
- 运行结束后,检查数据是否存在漏进样或其他错误。
- 按照制造商建议保存LC色谱柱。取出样品并储存于-80 °C。
- 将原始数据上传至数据存储库。
备注:推荐使用MassIVE(massive.ucsd.edu),以便后续链接至分子网络进行代谢物注释24,25。
4. 液相色谱-质谱数据处理
- 使用 MSConvert26 将原始文件转换为开放格式(.mzXML 或 .mzML)。
- 将原始数据以及 mzXML 或 mzML 数据上传至数据存储库。
- 生成特征峰表格。有多种工具可用于此步骤(MZmine、MS-DIAL、openMS、XCMS 等27,28,29,30)。
注意:推荐使用 MZmine,因为它免费、开源,能够在 MSConvert 后直接导入 mzXML 文件,提供图形用户界面选项用于数据处理和监控参数选择的影响,并可直接导出至 GNPS 进行分子网络分析24。
注意:请遵循相应工具的文档说明,并根据所用仪器选择合适的参数。更多详细信息可参见参考文献31。- 以 .csv 格式导出特征峰表格。
5. 3D 模型生成
- 根据下述步骤,按比例手绘三维模型。
- 拍摄目标器官的照片。
- 在 SketchUp 软件中执行以下操作(见材料表):
- 删除软件启动时默认显示的人物图像。
- 点击文件 > 导入,导入目标器官的图片。
- 点击线条工具,选择手绘选项。使用铅笔工具描出目标器官的轮廓。确保线条最终回到起点以闭合轮廓。一旦线条成功闭合,所绘制区域将自动显示为阴影填充。
- 选择推/拉工具,向上拉伸阴影区域,将二维图形转换为三维模型。
- 删除器官图片:选择橡皮擦按钮,右键点击图片并选择擦除。
- 以 .dae 格式导出文件:文件 > 导出 > 3D 模型。
- 根据下述步骤提升模型的真实感:
- 将模型导入 MeshLab 软件(见材料表):打开 MeshLab,选择文件 > 导入网格。选择上一步生成的 .dae 模型。将弹出预打开选项菜单,选择确定。
- 在顶部菜单中选择线框模式,然后依次选择:滤镜 > 重网格化、简化与重建 > 细分曲面:中点。所有参数保持默认,连续点击应用两次。目视检查模型的线框视图,确保其网格足够精细。关闭弹出窗口。
- 以 .stl 格式导出模型:文件 > 另存为导出网格,在文件类型下拉菜单中选择STL 文件格式 (*.stl),点击保存,在下一个弹出窗口中选择确定。
- 打开Meshmixer软件(见材料表),点击导入 (+)按钮,选择上一步生成的.stl文件。使用雕刻 > 笔刷 > 拖动和雕刻 > 笔刷 > 膨胀工具,拉出需要圆润处理的模型表面。
- 当模型达到理想外观后,以 .stl 格式保存:文件 > 导出。为文件命名,并在“保存类型”下拉菜单中选择 STL 二进制格式 (*.stl),点击保存。若弹出窗口出现,点击继续。
6. 'ili 图谱生成
- 获取与3D模型中采样位点相对应的位置坐标。
- 在 MeshLab 软件中打开第5.1.3.5步生成的3D模型:文件 > 导入网格。选择第5.1.3.5步生成的模型。在打开后处理弹出窗口中点击确定。
- 获取每个采样点的x、y和z坐标:选择拾取点工具,然后在3D模型表面按规则间隔右键单击。当所有所需坐标被选中后,点击表单弹出窗口中最上方的保存按钮。
注意:这将导出为.pp文件格式。该文件可在电子表格软件中打开。 - 在电子表格软件中:打开第6.1.2步生成的.pp文件。使用数据 > 分列 > 分隔符号调整数据显示。点击下一步,选择空格,然后点击完成。
- 通过选择开始 > 查找与替换 > 替换,重新格式化数据,使电子表格单元格中仅保留数值。在“查找内容”框中输入:y=",将“替换为”框留空,点击全部替换,然后点击确定。对x=""、z=""以及" />重复上述操作。数值现已准备就绪,可用于第6.2步。
- 创建'ili特征表格。本方法改编自参考文献16。
- 在电子表格软件中构建特征表格。每一行对应一个位置,每一列对应一项数据。
注意:前几列必须依次为位置名称(样本名称)、以及第6.1.2步获得的采样点x、y、z坐标(列标题为x、y、z)。第五列必须命名为“radius”(半径)。 - 在后续的电子表格列中粘贴相应的元数据和代谢物特征丰度。
- 在“radius”列中输入希望在模型上可视化显示的采样点大小。通过经验确定半径值:默认输入1,然后评估是否需要在第6.3步中调整半径或坐标。将文件保存为.csv格式(文件 > 另存为),在下拉菜单中选择CSV(逗号分隔)(*.csv),按需命名文件,点击保存。
- 在电子表格软件中构建特征表格。每一行对应一个位置,每一列对应一项数据。
- 在'ili中打开数据(由16开发的软件)。
- 打开'ili网站(ili.embl.de),选择表面。将生成的3D模型拖放到浏览器窗口中。将生成的特征表格也拖放到同一浏览器窗口中。
- 使用右下角的图例,将所需的数据列投影到3D模型上。确保第6.2.1步中选择的点和半径与采样位点一致。如有必要,在特征表格中调整数值,或在MeshLab中选择额外坐标(见第6.1.2步)。
注意:也可通过选择点 > 边框透明度并将滑块调至最大值来改善可视化效果。 - 依次选择每个数据列,以评估该代谢物特征在3D模型上的分布情况。
注意:此方法也可用于仅可视化特定感兴趣的代谢物特征,例如,在外部统计分析工具中确定的p < 0.05或感染与未感染样本之间具有特定倍数变化的特征。也可通过随机森林等机器学习方法在'ili之外选择待可视化的特征。
- 按照以下步骤进行线性/对数数据可视化。
- 使用页面右上方的映射选项卡,在尺度下拉菜单中选择线性或对数。
- 若可视化多个特征,请为所有图表设置相同的尺度。
注意:网站会自动为每列数据选择最小值和最大值进行显示。 - 若需手动设置尺度,取消勾选自动最小/最大选项,并输入所需的缩放范围。所有数据将在此统一尺度下显示。
- 更改数据的颜色标尺(灰度、蓝-白-红等)。
- 在映射菜单中,使用颜色图下拉菜单将颜色标尺更改为所需配色方案。确保所选配色方案对色盲友好。
- 使用3D菜单下的颜色和背景选项更改3D模型或背景颜色。
- 通过取消勾选3D菜单下的显示原点框来隐藏3D坐标轴。
- 通过截图、使用剪取工具,或在Windows或Linux系统中使用快捷键Ctrl + S,或在OS X系统中使用
 + S保存图像。
结果
获得的代谢物特征数量取决于所分析的组织类型及数据处理参数。例如,本方案已用于分析空间影响 T. cruzi 感染对小鼠模型胃肠道代谢组的影响 T. cruzi 感染。在先前的研究中,雄性C3H/HeJ小鼠通过腹腔注射1,000 CL + luc T. cruzi 寄生虫32,6动物在感染后12天或89天被实施安乐死,并按照本方案所述方法对胃肠道13个连续节段进行化学图谱分析。该分析生成了一个包含5,502个特征的特征表,并通过本方案所述步骤将其可视化为三维图像。该方法能够可视化单个动物体内寄生虫负荷较高部位的代谢物特征(如犬尿氨酸)。 图 2B 与寄生虫负荷相比, 图 2A),以及在组织区域间分布存在差异的代谢物(谷氨酰胺, 图2C)以及在小肠和大肠中含量相近的代谢物特征(LPE 16:0 图 2D)。选择犬尿氨酸进行可视化,是因为其与炎症存在已知关联,且已有文献报道犬尿氨酸衍生的代谢物具有调控作用 T. cruzi 加载33基于随机森林的机器学习模型此前已揭示犬尿氨酸水平与感染状态之间存在关联6谷氨酰胺被选为可视化对象,依据是先前发表的研究证明了其与特定关系之间的关联 体外 谷氨酰胺可用性与 T. cruzi 药物敏感性34. 使用逻辑回归确认了差异分布,p < 0.05。通过目视检查数据,选择在不同组织位点间水平相近的代谢物特征,确定LPE 16:0。
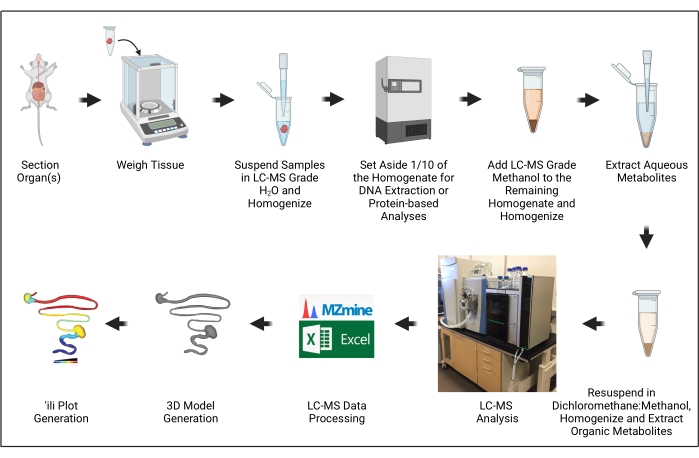
图1:实验方案概览。 该示意图使用BioRender.com绘制。 请点击此处查看此图的放大版本。
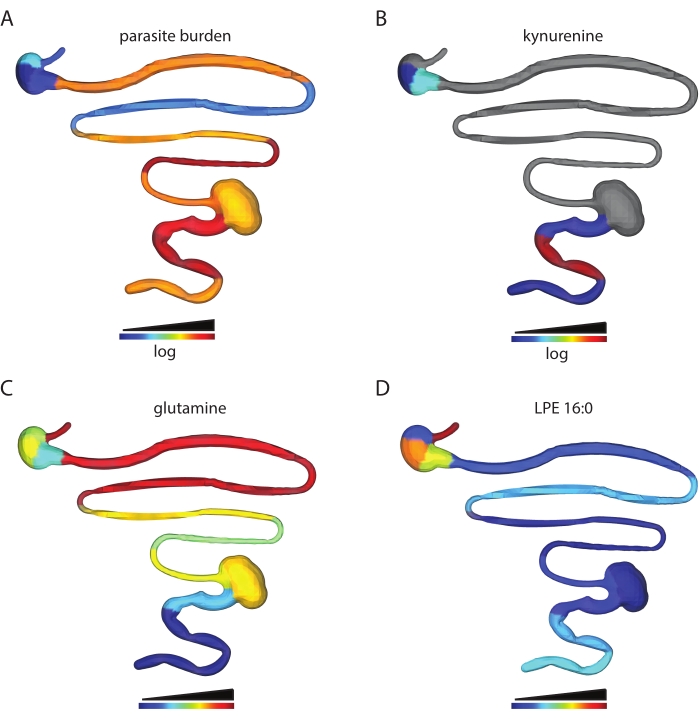
图 2:化学空间分布分析。雄性 C3H/HeJ 小鼠通过腹腔注射接种 1,000 个 CL+luc T. cruzi 寄生虫32。动物在感染后第 12 天或第 89 天被实施安乐死,系统性采集胃肠道组织并进行切片(步骤 1)6。按照步骤 2 提取代谢物,并通过液相色谱-串联质谱(LC-MS/MS)进行分析。使用 SketchUp 软件生成三维模型(步骤 5),数据按步骤 6 进行三维可视化展示。(A)某一只特定小鼠在感染后第 12 天的寄生虫分布情况。(B)同一只小鼠在感染后第 12 天的犬尿氨酸代谢物分布情况。(C)感染小鼠在感染后第 89 天谷氨酰胺分布的平均值。(D)在与(A)和(B)相同的小鼠中,小肠和结肠内保留时间为 2.929 分钟、质荷比 m/z 454.292 的物质水平相当,该物质被注释为 2-十六酰基-甘油-3-磷酸乙醇胺(LPE 16:0)。样品与数据来源见文献6。请点击此处查看该图的高清版本。
讨论
了解锥虫动质体感染对于指导新药开发和治疗策略至关重要。这种化学图谱方法能够独特地提供有关代谢与锥虫动质体疾病发病机制之间关系的可操作见解,从而满足这一转化医学需求。
在代谢物提取和质谱分析过程中,建议仅使用液相色谱-质谱级溶剂,以减少背景污染。应尽可能避免聚合物污染35,此类污染通常来源于石蜡膜和/或其他塑料材料36,37,38,。尤其禁止使用石蜡膜。这些因素至关重要,因为液相色谱-质谱数据的质量取决于样品制备和代谢物提取过程中所用材料。在生成“ili图”之前,应确保数据质量。此外,生成这些全面的空间代谢组学图谱需要收集所有相邻的组织样本,并对所有采集的样本进行代谢物提取,以避免图谱中出现空白区域。因此,应充分考虑并妥善规划样本采集流程、代谢物提取与液相色谱-质谱分析的物流安排以及相关成本。
本方案可通过多种方式修改以满足用户需求。例如,代谢物提取过程中所用溶剂的极性和溶解性将影响可检测到的代谢物种类39。为了在非靶向化学图谱分析中最大程度地检测到多样化的代谢物特征,建议结合使用多种提取步骤和溶剂。例如,本方法采用二氯甲烷、甲醇和水作为提取溶剂,因为它们能够准确检测非极性和极性分子20,40。然而,这些溶剂并非适用于所有质谱实验,研究人员应根据项目目标选择合适的提取溶剂。同样,也可采用不同的液相色谱-串联质谱(LC-MS/MS)条件,例如用正相色谱替代反相色谱。在反相数据采集过程中,也可使用其他类型的色谱柱替代C8色谱柱,但从经验上看,C8色谱柱对组织脂质的耐受性更强,且堵塞频率较低。从概念上讲,这些方案也可应用于其他质谱方法,如气相色谱-质谱联用技术(gas chromatography-mass spectrometry)等。
另一种方法是质谱成像。事实上,与质谱成像方法不同,液相色谱-质谱联用技术本身并不保留空间信息10。化学制图方法通过在项目设计初期、样本元数据记录以及数据处理步骤中纳入采样位置,弥补了这一不足。与质谱成像相比,这种化学制图方法的一个优势在于能够提供高置信度的代谢物注释(符合代谢组学标准倡议的1级或2级注释置信度41),而质谱成像的大多数应用仅依赖精确质量进行注释。质谱成像能够实现精细的空间映射,有时甚至达到单细胞水平,例如42,43。相比之下,化学制图方法能够在无需高度专业化的全动物冷冻切片技术的情况下,实现大范围跨器官的代谢物分布图谱绘制。化学制图可为当前正在发展的多种空间转录组学方法提供互补证据,例如44,其优势在于聚焦于最接近表型的“组学”层面45。用于寄生虫负荷定量的其他方法包括在样本采集时测量生物发光信号6。此外,也可采集细小组织片段,用于共聚焦显微镜或电子显微镜观察,以评估局部寄生虫负荷及组织损伤情况。本方案及先前研究中用于细胞因子定量的水相匀浆液13,也可用于定量基于蛋白质的组织损伤标志物。
获取适用于绘制LC-MS数据结果的3D模型也有多种方法。除本文建议的方法外,还可从多个在线供应商处购买预制好的模型。请确保其使用条款与预期用途相符,特别是涉及发表时。大型器官的模型可根据扫描仪说明,使用3D扫描仪从头生成。存在诸如MATLAB等替代工具可用于化学图谱的3D模型构建与可视化46,但这些工具主要在'ili16开发之前实现。MATLAB是一套数据处理与编程工具集,广泛应用于多个领域。然而,MATLAB既非免费软件,也非开源软件,且需要熟悉其操作界面,尤其考虑到MATLAB并非专为质谱数据处理而设计。本方法的替代方案,即SketchUp、Meshlab和'ili,均为免费获取、易于使用,并在化学图谱应用方面提供与MATLAB类似的功能。
该方法在样品制备和代谢物提取方面具有较强的稳健性。通常最需要进行故障排查的环节是液相色谱-质谱(LC-MS)数据采集步骤,但这超出了本文的范围。读者可参考有关LC-MS数据采集故障排查的优秀文献20,47。同样,代谢物注释的复杂性也不在本方法聚焦于三维模型构建的讨论范围内。有关该主题的有用参考文献包括24,25,48,49。
尽管该方法能有效探索疾病发病机制,但此方法存在一些局限性,其中部分局限性在任何代谢组学实验中均较为常见。其一为液相色谱-质谱(LC-MS)特征峰的注释率较低50,这取决于参考谱图数据库的可获得性与质量。另一局限性在于,由于RNA保存试剂(如RNAlater)与LC-MS/MS分析不兼容,本方案无法保存mRNA。然而,所获得的蛋白质质量足以满足下游分析需求,因此可替代基于mRNA的分析方法。
一种化学图谱方法可直接反映细菌、病毒或寄生虫感染在器官系统中的发展过程以及局部疾病的发生机制。通过分析这些区域性的子样本并构建三维模型,最终能够揭示代谢物在三维空间中的功能,从而阐明分子生物学中此前未被认识的空间维度。例如,利用本方案,可将代谢物的定位与Trypanosoma cruzi寄生虫载量进行比较。结果阐明了病原体与宿主组织之间的关系,同时揭示了恰加斯病(Chagas disease)症状进展过程中的代谢动态6。化学图谱方法还已被应用于多个研究领域,例如人类居住环境的相互作用51,52,53、人体皮肤46和肺部54等器官系统的化学组成,以及植物代谢与环境之间的相互作用55。未来的研究可进一步拓展至评估局部疾病的耐受性与恢复力,或在锥虫感染模型之外,研究局部代谢物水平、病原体趋向性与疾病趋向性之间的关系。该方法还具有广泛的应用前景,可用于扩展当前的药代动力学研究方案,以评估局部组织药物浓度与药物代谢之间的关系,以及整体代谢背景、组织损伤和病原体清除之间的关联。总体而言,化学图谱技术使得研究人员能够在多种样本类型中独特地探索代谢物的分布情况,其应用 包括疾病发病机制、人类健康、人与环境的相互作用以及微生物动态等。
披露
无利益冲突需要申报。
致谢
劳拉-伊莎贝尔·麦克卡尔(Laura-Isobel McCall)博士担任研究员 感谢伯勒斯威康基金会(Burroughs Wellcome Fund)授予的传染病发病机制奖。作者还希望感谢美国国立卫生研究院(NIH)资助号R21AI148886、俄克拉荷马呼吸与传染病中心(Oklahoma Center for Respiratory and Infectious Diseases, OCRID)在NIH资助号P20GM103648支持下提供的试点资助,以及俄克拉荷马大学(University of Oklahoma)提供的启动资金(资助对象:LIM)。本内容的准确性由作者全权负责,不代表资助方的官方观点。作者同时感谢本实验方案中所使用工具的开发者。所有相关文献已在适用处予以引用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | NA | NA | 任意品牌,视供应情况而定 |
| 1 L 玻璃瓶,耐热玻璃材质 | NA | NA | 任意品牌,视供应情况而定 |
| 1 L 量筒,耐热玻璃材质 | NA | NA | 任意品牌,视供应情况而定 |
| 2 mL SafeLock 离心管 | VWR | 20901-540 | 根据可用的组织匀浆器选择合适的管型 |
| 3D 模型(根据实验步骤从头生成,或购买获得) | NA | NA | 根据所研究系统的需要选择 |
| 5 mm 不锈钢研磨珠 | Qiagen | 69989 | |
| 96 孔板 | Fisher | 3252449 | |
| AATTCCTCCAAGCAGCGGATA 引物 | NA | NA | 任意品牌,视供应情况而定;发表于 Piron, M. 等人。用于血液样本中 Trypanosoma cruzi 检测的实时 PCR 检测方法的开发。Acta tropica. 103 (3), 195–200 (2007)。 |
| 分析天平 | NA | NA | 任意品牌,视供应情况而定 |
| ASTCGGCTGATCGTTTTCGA 引物 | NA | NA | 任意品牌,视供应情况而定;发表于 Piron, M. 等人。用于血液样本中 Trypanosoma cruzi 检测的实时 PCR 检测方法的开发。Acta tropica. 103 (3), 195–200 (2007)。 |
| 台式离心机,配备微量离心转子、Falcon 管及 96 孔板转子 | NA | NA | 任意品牌,视供应情况而定 |
| 生物安全柜 | NA | NA | II 级,A2 型;任意品牌,视供应情况而定 |
| CAGCAAGCATCTATGCACTTAG ACCCC 引物 | NA | NA | 任意品牌,视供应情况而定;发表于 Cummings, K.L., Tarleton, R.L. 利用实时 PCR 快速定量宿主组织中的 Trypanosoma cruzi 。Molecular and biochemical parasitology. 129 (1), 53–59 (2003)。 |
| 相机 | NA | NA | 任意品牌,视供应情况而定。本实验方案使用手机摄像头即可满足要求 |
| 化学发光成像系统 | NA | NA | 任意系统,视供应情况而定 |
| 棉球 | NA | NA | 任意品牌,视供应情况而定 |
| 防冻手套 | VWR | 97008-208 | 可替换为任意品牌,视供应情况而定 |
| 解剖剪刀 | NA | NA | 任意品牌,视供应情况而定 |
| 干冰 | NA | NA | 任意品牌,视供应情况而定 |
| 加长型镊子 | NA | NA | 任意品牌,视供应情况而定 |
| 易燃品专用冰箱 | NA | NA | 任意品牌,视供应情况而定 |
| 用于微量离心管的冷冻储存盒 | NA | NA | 任意品牌,视供应情况而定 |
| 通风橱 | NA | NA | 任意品牌,视供应情况而定 |
| 高分辨质谱仪 | NA | NA | 任意品牌,视供应情况而定,例如 ThermoFisher Q-Exactive Plus(货号 0726030) |
| 冰桶 | NA | NA | 任意品牌,视供应情况而定 |
| ili 软件 | ili.embl.de | NA | |
| 异氟烷 | Covetrus | 29405 | |
| 大号密封盒 | NA | NA | 任意品牌,视供应情况而定;尺寸需足够容纳小鼠和棉球 |
| LC-MS 级乙腈 | Fisher Optima | A955-4 | |
| LC-MS 级二氯甲烷 | Fisher Optima | D151-4 | |
| LC-MS 级甲酸 | Fisher Optima | A11750 | |
| LC-MS 级甲醇 | Fisher Optima | A456-4 | |
| LC-MS 级水 | Fisher Optima | W64 | |
| 液相色谱柱 | Phenomenex | 00B-4499-AN | 可根据目标代谢物更换为其他品牌和型号 |
| 液相色谱柱保护柱 | Phenomenex | AJ0-8784 | 可根据目标代谢物更换为其他品牌和型号 |
| 液相色谱柱保护柱套 | Phenomenex | AJ0-9000 | 可根据目标代谢物更换为其他品牌和型号 |
| 液氮 | NA | NA | 任意品牌,视供应情况而定 |
| 荧光素 | Goldbio | LUCK-1G | |
| MeshLab 软件 | https://www.meshlab.net/ | NA | |
| Meshmixer 软件 | https://www.meshmixer.com/ | NA | |
| 质谱校准物 | NA | NA | 根据可用仪器选择合适的校准物 |
| 质谱数据处理软件 | NA | NA | 有多种可选方案;作者推荐使用 MZmine |
| MSConvert 软件 | http://proteowizard.sourceforge.net/ | NA | |
| Nanodrop | ThermoFisher | ND-ONE-W | 其他型号的 Nanodrop 同样适用 |
| p1000 移液器吸头 | NA | NA | 选择与可用移液器匹配的合适品牌 |
| p1000 移液器 | NA | NA | 任意品牌,视供应情况而定 |
| p20 移液器吸头 | NA | NA | 选择与可用移液器匹配的合适品牌 |
| p20 移液器 | NA | NA | 任意品牌,视供应情况而定 |
| p200 移液器吸头 | NA | NA | 选择与可用移液器匹配的合适品牌 |
| p200 移液器 | NA | NA | 任意品牌,视供应情况而定 |
| 个人防护装备(手套、实验服、护目镜/安全眼镜;面罩) | NA | NA | 任意品牌,视供应情况而定 |
| Q-Plex 小鼠细胞因子筛查试剂盒(16 重) | Quansys biosciences | 110949MS | 可替换为其他基于蛋白的细胞因子检测方法,如其他商业化的细胞因子 ELISA 试剂盒 |
| Quick-DNA Miniprep Plus 试剂盒(200 次) | Zymo | D4069 | 可替换为任意品牌的哺乳动物 DNA 提取试剂盒,视供应情况而定 |
| 实时荧光定量 PCR 仪 | NA | NA | 任意品牌,视供应情况而定 |
| 盐瓶或茶叶过滤器 | NA | NA | 任意品牌;用于盛放浸有异氟烷的棉球,防止其与小鼠皮肤直接接触 |
| SketchUp 软件 | https://www.sketchup.com/ | NA | |
| 标本镊 | NA | NA | 任意品牌,视供应情况而定 |
| 真空离心浓缩仪,配备微量离心管和 96 孔板转子 | NA | NA | 任意品牌,视供应情况而定 |
| 电子表格软件 | https://www.microsoft.com/en-us/microsoft-365/excel | NA | 可根据需要替换为其他电子表格管理软件 |
| 磺胺氯哒嗪 | Sigma | S9882-100G | |
| 磺胺二甲氧嘧啶 | Sigma | S7007-10G | |
| Sybr Green qPCR 反应混合液 | Fisher | A25780 | 可根据需要替换为其他 Sybr Green qPCR 反应混合液 |
| TCCCTCTCATCAGTTCTAT GGCCCA 引物 | NA | NA | 任意品牌,视供应情况而定;发表于 Cummings, K.L., Tarleton, R.L. 利用实时 PCR 快速定量宿主组织中的 Trypanosoma cruzi 。Molecular and biochemical parasitology. 129 (1), 53–59 (2003)。 |
| 组织匀浆器 | NA | NA | 任意品牌,视供应情况而定;例如 Qiagen TissueLyser II(货号 85300),配备 TissueLyser 适配器组(2 x 24)(货号 69982) |
| 组织样本 | NA | NA | 来自合适的感染模型 |
| TissueLyser 单珠分配器 | Qiagen | 69965 | |
| 超高效液相色谱仪(UHPLC) | NA | NA | 任意品牌,视供应情况而定,例如 ThermoFisher Vanquish(货号 IQLAAAGABHFAPUMBHV) |
| 超低温冰箱(-80°C) | NA | NA | 任意品牌,视供应情况而定 |
| 超声波清洗仪 | NA | NA | 任意系统,视供应情况而定 |
| 湿冰 | NA | NA | 任意品牌,视供应情况而定 |
| 无区域密封膜 | VWR | 490007-390 |
参考文献
- McCall, L. -I., et al. Adaptation of Leishmania donovani to and visceral environments: in vivo selection and proteomic analysis. Journal of Proteome Research. 14 (2), 1033-1059 (2015).
- McCall, L. -I., Zhang, W. -W., Matlashewski, G. Determinants for the development of visceral leishmaniasis disease. PLoS Pathogens. 9 (1), 1003053(2013).
- de Castro Neto, A. L., da Silveira, J. F., Mortara, R. A. Comparative analysis of virulence mechanisms of trypanosomatids pathogenic to humans. Frontiers in Cellular and Infection Microbiology. 11, 669079(2021).
- Franco, J. R., Simarro, P. P., Diarra, A., Jannin, J. G. Epidemiology of human African trypanosomiasis. Clinical Epidemiology. 6, 257-275 (2014).
- Ottilie, S., et al. Rapid chagas disease drug target discovery using directed evolution in drug-sensitive yeast. ACS Chemical Biology. 12 (2), 422-434 (2017).
- Hossain, E., et al. Mapping of host-parasite-microbiome interactions reveals metabolic determinants of tropism and tolerance in Chagas disease. Science Advances. 6 (30), (2020).
- Parab, A. R., McCall, L. -I. Tryp-ing up metabolism: Role of metabolic adaptations in kinetoplastid disease pathogenesis. Infection and Immunity. 89 (4), (2021).
- Lewis, C. M., McCall, L. -I., Sharp, R. R., Spicer, P. G. Ethical priority of the most actionable system of biomolecules: the metabolome. American Journal of Physical Anthropology. 171 (2), 177-181 (2020).
- Liu, Z., Ulrich vonBargen, R., McCall, L. I. Central role of metabolism in Trypanosoma cruzi tropism and Chagas disease pathogenesis. Current Opinion in Microbiology. 63, 204-209 (2021).
- Newsom, S. N., McCall, L. -I. Metabolomics: Eavesdropping on silent conversations between hosts and their unwelcome guests. PLoS Pathogens. 14 (4), 1006926(2018).
- Wishart, D. S., et al. HMDB: the Human Metabolome Database. Nucleic Acids Research. 35, Database issue 521-526 (2007).
- Dean, D. A., et al. Spatial metabolomics identifies localized chemical changes in heart tissue during chronic cardiac Chagas disease. PLoS Neglected Tropical Diseases. 15 (10), 0009819(2021).
- McCall, L. -I., et al. Mass spectrometry-based chemical cartography of a cardiac parasitic infection. Analytical Chemistry. 89 (19), 10414-10421 (2017).
- Hoffman, K., et al. Alterations to the cardiac metabolome induced by chronic infection relate to the degree of cardiac pathology. ACS Infectious Diseases. 7 (6), 1638-1649 (2021).
- Parab, A. R., et al. Dysregulation of glycerophosphocholines in the cutaneous lesion caused by Leishmania major in experimental murine models. Pathogens. 10 (5), 593(2021).
- Protsyuk, I., et al. 3D molecular cartography using LC-MS facilitated by Optimus and 'ili software. Nature Protocols. 13 (1), 134-154 (2018).
- McCall, L. -I., et al. Targeting ergosterol biosynthesis in Leishmania donovani: Essentiality of Sterol 14alpha-demethylase. PLOS Neglected Tropical Diseases. 9 (3), 0003588(2015).
- Tear, W. F., et al. Selectivity and physicochemical optimization of repurposed Pyrazolo[1,5-]pyridazines for the treatment of human African trypanosomiasis. Journal of Medicinal Chemistry. 63 (2), 756-783 (2020).
- Klug, D. M., et al. Hit-to-lead optimization of benzoxazepinoindazoles as human African trypanosomiasis therapeutics. Journal of Medicinal Chemistry. 63 (5), 2527-2546 (2020).
- Want, E. J., et al. Global metabolic profiling of animal and human tissues via UPLC-MS. Nature Protocols. 8 (1), 17-32 (2013).
- Piron, M., et al. Development of a real-time PCR assay for Trypanosoma cruzi detection in blood samples. Acta Tropica. 103 (3), 195-200 (2007).
- Cummings, K. L., Tarleton, R. L. Rapid quantitation of Trypanosoma cruzi in host tissue by real-time PCR. Molecular and Biochemical Parasitology. 129 (1), 53-59 (2003).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 25 (4), 402-408 (2001).
- Nothias, L. -F., et al. Feature-based molecular networking in the GNPS analysis environment. Nature Methods. 17 (9), 905-908 (2020).
- Wang, M., et al. Sharing and community curation of mass spectrometry data with global natural products social molecular networking. Nature Biotechnology. 34 (8), 828-837 (2016).
- Chambers, M. C., et al. A cross-platform toolkit for mass spectrometry and proteomics. Nature Biotechnology. 30 (10), 918-920 (2012).
- Tsugawa, H., et al. MS-DIAL: data-independent MS/MS deconvolution for comprehensive metabolome analysis. Nature Methods. 12 (6), 523-526 (2015).
- Sturm, M., et al. OpenMS - an open-source software framework for mass spectrometry. BMC Bioinformatics. 9, 163(2008).
- Pluskal, T., Castillo, S., Villar-Briones, A., Oresic, M. MZmine 2: modular framework for processing, visualizing, and analyzing mass spectrometry-based molecular profile data. BMC Bioinformatics. 11, 395(2010).
- Smith, C. A., Want, E. J., O'Maille, G., Abagyan, R., Siuzdak, G. XCMS: processing mass spectrometry data for metabolite profiling using nonlinear peak alignment, matching, and identification. Analytical Chemistry. 78 (3), 779-787 (2006).
- FBMN with MZmine. , Available from: https://ccms-ucsd.github.io/GNPSDocumentation/featurebasedmolecularnetworking-with-mzmine2/ (2021).
- Lewis, M. D., et al. Bioluminescence imaging of chronic Trypanosoma cruzi infections reveals tissue-specific parasite dynamics and heart disease in the absence of locally persistent infection. Cellular Microbiology. 16 (9), 1285-1300 (2014).
- Knubel, C. P., et al. 3-Hydroxy kynurenine treatment controls T. cruzi replication and the inflammatory pathology preventing the clinical symptoms of chronic Chagas disease. PloS One. 6 (10), 26550(2011).
- Dumoulin, P. C., Vollrath, J., Tomko, S. S., Wang, J. X., Burleigh, B. Glutamine metabolism modulates azole susceptibility in amastigotes. eLife. 9, (2020).
- Keller, B. O., Sui, J., Young, A. B., Whittal, R. M. Interferences and contaminants encountered in modern mass spectrometry. Analytica Chimica Acta. 627 (1), 71-81 (2008).
- Weaver, R., Riley, R. J. Identification and reduction of ion suppression effects on pharmacokinetic parameters by polyethylene glycol 400. Rapid Communications in Mass Spectrometry: RCM. 20 (17), 2559-2564 (2006).
- Larger, P. J., Breda, M., Fraier, D., Hughes, H., James, C. A. Ion-suppression effects in liquid chromatography-tandem mass spectrometry due to a formulation agent, a case study in drug discovery bioanalysis. Journal of Pharmaceutical and Biomedical Analysis. 39 (1-2), 206-216 (2005).
- Furey, A., Moriarty, M., Bane, V., Kinsella, B., Lehane, M. Ion suppression; a critical review on causes, evaluation, prevention and applications. Talanta. 115, 104-122 (2013).
- Lu, W., et al. Metabolite measurement: Pitfalls to avoid and practices to follow. Annual Review of Biochemistry. 86, 277-304 (2017).
- Masson, P., Alves, A. C., Ebbels, T. M. D., Nicholson, J. K., Want, E. J. Optimization and evaluation of metabolite extraction protocols for untargeted metabolic profiling of liver samples by UPLC-MS. Analytical Chemistry. 82 (18), 7779-7786 (2010).
- Sumner, L. W., et al. Proposed minimum reporting standards for chemical analysis. Metabolomics. 3 (3), 211-221 (2007).
- Rappez, L., et al. SpaceM reveals metabolic states of single cells. Nature Methods. 18 (7), 799-805 (2021).
- Yang, B., Tsui, T., Caprioli, R. M., Norris, J. L. Sample preparation and analysis of single cells using high performance MALDI FTICR mass spectrometry. Methods in Molecular Biology. 2064, 125-134 (2020).
- Longo, S. K., Guo, M. G., Ji, A. L., Khavari, P. A. Integrating single-cell and spatial transcriptomics to elucidate intercellular tissue dynamics. Nature Reviews. Genetics. 22 (10), 627-644 (2021).
- Patti, G. J., Yanes, O., Siuzdak, G. Innovation: Metabolomics: the apogee of the omics trilogy. Nature Reviews. Molecular Cell Biology. 13 (4), 263-269 (2012).
- Bouslimani, A., et al. Molecular cartography of the human skin surface in 3D. Proceedings of the National Academy of Sciences of the United States of America. 112 (17), 2120-2129 (2015).
- Dudzik, D., Barbas-Bernardos, C., García, A., Barbas, C. Quality assurance procedures for mass spectrometry untargeted metabolomics. A review. Journal of Pharmaceutical and Biomedical Analysis. 147, 149-173 (2018).
- Alseekh, S., et al. Mass spectrometry-based metabolomics: a guide for annotation, quantification and best reporting practices. Nature Methods. 18 (7), 747-756 (2021).
- Chaleckis, R., Meister, I., Zhang, P., Wheelock, C. E. Challenges, progress and promises of metabolite annotation for LC-MS-based metabolomics. Current Opinion in Biotechnology. 55, 44-50 (2019).
- Viant, M. R., Kurland, I. J., Jones, M. R., Dunn, W. B. How close are we to complete annotation of metabolomes. Current Opinion in Chemical Biology. 36, 64-69 (2017).
- Kapono, C. A., et al. Creating a 3D microbial and chemical snapshot of a human habitat. Scientific Reports. 8 (1), 3669(2018).
- Petras, D., et al. Mass spectrometry-based visualization of molecules associated with human habitats. Analytical Chemistry. 88 (22), 10775-10784 (2016).
- McCall, L. -I., et al. Analysis of university workplace building surfaces reveals usage-specific chemical signatures. Building and Environment. 162, 106289(2019).
- Garg, N., et al. Three-dimensional microbiome and metabolome cartography of a diseased human lung. Cell Host & Microbe. 22 (5), 705-716 (2017).
- Floros, D. J., et al. Mass spectrometry based molecular 3D-cartography of plant metabolites. Frontiers in Plant Science. 8, 429(2017).
重印与许可
