光谱迭代漂白扩展多重性(IBEX)在基础IBEX技术的基础上,增加了肝素阻断以最大限度减少非特异性结合,并利用光谱检测结合计算解混技术来抑制自发荧光。该方法可加快图像采集速度,同时降低背景信号来源,从而实现稳健的多轮、高参数空间蛋白质组分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
利用光谱共聚焦显微镜进行高重成像以最小化非特异性组织自发荧光
* These authors contributed equally
本文内容
摘要
摘要
高度多重成像技术能够在原生组织环境中研究功能多样的细胞及其微环境。迭代漂白扩展多重性(Iterative Bleaching Extends Multiplexity, IBEX)是一种循环免疫标记与荧光团失活技术,可在同一组织切片上实现多个标志物的可视化。所获取的图像可进一步分析,以获得单细胞数据,用于定义细胞簇、其空间定位及邻近的细胞类型。对这些数据的解读依赖于区分真实标志物表达与荧光显微镜固有背景信号的能力。光谱IBEX(Spectral IBEX)是IBEX方案的一种改进,结合了光谱共聚焦检测与计算解混技术,并引入肝素阻断以减少基于电荷的非靶向结合。该组合可提高信噪比,抑制组织自发荧光,降低串色干扰,同时相较于传统的多通道共聚焦成像缩短了采集时间。在人鼻息肉组织(一种以高嗜酸性粒细胞含量和强自发荧光为特征的模型)中的应用表明,在六轮成像中可稳定检测26个标志物,涵盖结构、免疫及细胞状态等多个层面。该工作流程生成高维度、空间分辨的蛋白质组学信息,能够捕捉复杂的组织结构和细胞微环境。综上,这一优化策略为多重成像提供了一种稳健且广泛适用的方法,特别适用于自发荧光和非特异性染色限制传统方法应用的组织样本。
引言
组织由多种具有特定功能的细胞组成,这些细胞有序地形成三维结构,并通过相互作用协调维持生命所必需的生物学过程。当细胞组成或组织结构受到破坏,干扰了这些相互作用并损害组织稳态时,便会导致病理状态的发生1。要理解人类健康与疾病背后的生物学机制,必须了解众多特化细胞类型在组织内的定位方式及其相互作用规律。
在转录组、表观基因组和蛋白质组水平上,单细胞分析技术的进步揭示了高度多样化的特化细胞类型。2,3 单细胞RNA测序和光谱流式细胞术等技术能够检测用于表征这些异质性细胞群体所需的大量参数。然而,这些方法缺乏空间信息,因为细胞必须从其原始组织环境中解离成单细胞悬液4,5。因此,尽管已鉴定出与多种疾病状态相关的细胞类型,但它们在组织内的相互作用及其在疾病持续发展中的作用仍不明确。
为解决其中一些局限性,已开发出多种空间组学技术,可在捕获组织内细胞异质性的同时,保留每个细胞的空间位置信息6。例如,基因转录可通过在组织切片上以光栅化点阵形式扩增RNA(如Visium)来检测,或通过使用靶向特定基因组合的RNA杂交探针,并在单细胞分辨率下成像(如Xenium)来实现7,8。这些方法在追踪组织内的转录模式和调控机制方面具有较好效果。然而,转录谱通常与蛋白质表达的相关性较差,而蛋白质表达更能直接反映细胞的功能能力9。蛋白质表达可通过与荧光染料偶联的特异性抗体进行识别,并利用荧光显微镜检测10,11。传统荧光显微镜最多可实现六种以上此类抗体-荧光染料偶联物的独立成像。然而,这些荧光染料的激发和发射光谱存在重叠,导致难以确定任一成像通道中荧光信号的确切来源12。
迭代漂白扩展多重性(Iterative Bleaching Extends multipleXity,IBEX)是一种高通量成像方法,旨在克服荧光显微镜的这一局限性13,14,15。IBEX 使用硼氢化锂(LiBH4)在成像后化学失活荧光染料,从而使同一组织样本可在重新成像前再次使用偶联荧光染料的抗体进行染色。IBEX 能够保持组织完整性,允许多轮成像,理论上可在同一组织切片上可视化无限数量的标记物。通过对获取的图像进行计算对齐,可在单细胞分辨率下实现组学水平的表征,同时保留空间信息以揭示细胞微环境。这些数据还可提示潜在的细胞间相互作用,但需通过其他技术手段加以验证16。IBEX 是一种开源方法,兼容市售的荧光染料,并得到一个国际研究者社区的支持,该社区已验证相关试剂并公开共享数据,以促进方法的可及性、快速推广和高质量数据的生成17,18。
在本研究中,我们设计了一种改进的IBEX方案,旨在克服该技术的两个主要挑战:组织自发荧光和荧光素偶联抗体探针的非特异性结合(统称为背景信号)。当组织内源性荧光分子在激发后发射的光与抗体偶联荧光素所产生的目标信号发生重叠时,即产生自发荧光19,20。荧光素偶联抗体的脱靶或非特异性结合会导致不表达目标蛋白的细胞或结构产生荧光信号21,22。这些假象可能导致错误地判断某细胞表达了某种标志物,而实际上并未表达,从而干扰计算分析和细胞类型鉴定的准确性。通过结合基于肝素的电荷中和脱靶信号方法、全光谱采集以及计算解混,光谱IBEX显著减少了信号串扰,提高了信噪比(SBR),并将每轮成像时间缩短了一半。
访问受限。请登录或开始试用以查看此内容。
方案
本研究中使用的鼻息肉组织是在汉密尔顿健康科学中心(Hamilton Health Sciences)经汉密尔顿整合研究伦理委员会批准的鼻窦手术期间采集的。所有参与者均签署了知情同意书。
1. 样品采集
- 在对慢性鼻窦炎患者进行常规息肉切除术时获取样本。手术切除后立即将样本放入含有生理盐水并置于冰上的小瓶中进行运输,并立即处理用于成像,以保持组织完整性。
2. 试剂准备
- 通过将获得的固定和透化溶液按1:4比例用PBS稀释,制备固定和透化溶液。用PBS配制含30%蔗糖的冷冻保护溶液。用PBS配制含0.1% v/v Triton X-100的稀释缓冲液。
- 用稀释缓冲液配制含1% w/v牛血清白蛋白的BSA封闭试剂。将1 mL PBS中加入10KU肝素钠盐制备肝素封闭试剂。将肝素封闭试剂(1:50)与Fc封闭试剂(1:100)加入BSA封闭试剂中,混合制备封闭缓冲液。
- 将抗体用封闭缓冲液按适当稀释比例配制,制备染色混合液。在10 mL超纯水中加入10 mg LiBH4,配制漂白溶液。
3. 组织处理与大体检查
- 在解剖显微镜下检查组织(通常放大倍数约为15倍,但可根据样本和显微镜类型有所调整),使用镊子和手术刀去除脂肪和骨骼。为最大程度保护组织,请使用洁净的器械,在低温湿润的表面上操作,并尽量缩短处理时间。
- 用手术刀将厚度 > 0.5 cm 的大块组织切成 4–5 mm 的薄片23。将组织片浸入固定和通透溶液中,在 °C 下旋转孵育 16 h。
注意:此步骤及后续步骤3.3中所用溶液的体积应约为样本体积的20倍,并使用适当大小的离心管。 - 将组织转移至PBS中,冲洗5分钟。随后将组织浸入冷冻保护溶液中,在 °C 下孵育16小时。此步骤后切勿洗涤,以免重新引入水分至组织中。
4. 组织冷冻
- 在6孔板的每个孔上方标注实验和样品信息,并将其放入-20 °C冰箱中冷却至少20分钟。
- 用适当大小的冷冻模具盛装最佳切割温度(OCT)包埋剂。避免在OCT中产生气泡。若出现大气泡,可用针头或移液器吸头将其推至冷冻模具边缘。
注意:可用铝箔包裹小的平底小瓶或试管自制冷冻模具。 - 从冷冻保存液中取出组织,用无绒擦拭纸轻轻吸去表面多余液体,以免影响冷冻效果。
- 在通风橱内,向250 mL烧杯中加入约100–150 mL异戊烷,并将烧杯置于部分装有液氮的泡沫盒或冷藏箱中。
注意:异戊烷若暴露在空气中超过2小时会蒸发,因此开瓶后应立即使用。异戊烷有助于组织均匀且快速地冷冻。异戊烷可能随时间缓慢冻结,若完全凝固,需将烧杯从液氮中取出,待其自然融化。异戊烷可倒入带盖玻璃瓶中,最多重复使用5次。异戊烷液面应高于液氮液面,以防止烧杯漂浮或倾倒。 - 在解剖显微镜下,根据需要调整组织在OCT中的方向。
注意:对于鼻息肉组织,通常沿其长轴方向定位,以获得对称切片并最大程度地展现横截面积。有关特定组织的最佳包埋方向,请参考组织学手册。 - 将冷冻模具底部浸入异戊烷中,当组织中心完全变为白色且不透明时,立即将模具从异戊烷中取出。避免将模具完全浸没,否则包埋块可能开裂,影响切片质量。
- 通过轻压模具背面,小心将组织块从模具中推出,放入已预冷至-20 °C的6孔板中。所有样品冷冻完成后,将6孔板转移至-80 °C冰箱进行长期保存。
注意:此处可暂停操作。组织可在-80 °C条件下保存数年。
5. 载玻片制备与冷冻切片
- 用移液器吸取10-1 µL重铬酸钾明胶粘附剂滴加到载玻片上,均匀铺开,室温晾干15 min。为获得最佳粘附效果,对带孔盖玻片需涂布2-3次重铬酸钾明胶粘附剂,每次加入5 µL(共15 µL)。
- 干燥后,将载玻片置于80 °C烘箱中1 h,以确保完全干燥。若使用带孔盖玻片,则应在37 °C过夜干燥,以防塑料在80 °C下熔化。
注意:载玻片涂覆并干燥后,可在室温下存放数天,直至使用。应加盖以防止灰尘污染。 - 将组织从−80 °C转移至−20 °C(或直接放入切片温度下的冷冻切片机中)进行平衡,并在切片前预冷1 h。在冷冻切片机上切取10-2 µm厚的切片24。
- 若将切片转移至带孔盖玻片中,抬起防卷板后,用镊子轻轻夹起切片,用画笔将其平整地铺在孔内的玻片表面。用拇指在盖玻片底部样品下方轻压,使切片融化并贴附于玻片上。
- 将载玻片在3 °C下干燥1 h,或在室温下干燥24 h。
注意:若载玻片立即使用,可暂时存放在玻片盒中,置于室温以防止灰尘污染,同时进行染色前准备。但如果不能立即使用,应将其储存在-80°C以保持组织完整性。此为暂停点。若载玻片存于-80 °C,可在本步骤暂停实验流程。
6. 封闭与抗体免疫标记
- 使用PAP笔在玻片上的组织周围画一个圆圈,以形成疏水屏障,防止染色或其他步骤中的液体扩散。不要在OCT包埋剂上绘制,因为当OCT溶解时,疏水性墨水会被洗掉。
注意:对于带腔室的盖玻片,此步骤不需要,因为腔室壁可将液体保留在孔内。 - 向每份组织中加入约100 µL PBS,在室温下孵育约2分钟,以重新水化组织并去除OCT。对于带腔室的盖玻片,使用约1 mL PBS。
注意:为避免组织从玻片上翘起,切勿将液体直接滴加到样本上。 - 吸除PBS,加入100 µL封闭缓冲液。在加盖的湿盒中室温孵育1小时。对于带腔室的盖玻片,使用约400 µL封闭缓冲液。
- 吸除封闭缓冲液,加入100 µL染色混合液。将样本置于加盖湿盒中,放入冰箱(4 °C)过夜孵育。对于带腔室的盖玻片,使用约400 µL染色混合液。准备仅使用面板中单一荧光染料染色的切片,以及不加任何染料的阴性对照,以确定各荧光染料的光谱特征及组织的自发荧光背景。
注意:抗体稀释比例应通过实验优化,可进行1:50、1:100和1:200或其他所需梯度稀释。选择能产生最佳信号的最低抗体用量。尽量使面板中所有抗体的信号强度大致相等,以最大化光谱解混效果。从本步骤起,需保护样本避光,以减少荧光染料的光漂白。 - 吸除染色混合液,用PBS洗涤3次(每次10 µL,2分钟),每次洗涤之间吸除液体。对于带腔室的盖玻片,每次使用约1 mL PBS。
- 向每张切片加入约10 µL封片剂。缓慢移液以避免产生气泡,气泡会导致成像时出现光学畸变。若形成气泡,可用移液器小心吸除。对于带腔室的盖玻片,向每个孔中加入1 mL封片剂。
注意:以下步骤6.7和6.8不适用于带腔室的盖玻片。 - 将22 mm × 50 mm、No. 1规格的盖玻片轻轻覆盖在样本上。
注意:可通过将盖玻片一端紧压在封片剂上,然后让其自然下落覆盖样本,使封片剂均匀铺展,从而减少气泡产生。盖玻片厚度应与物镜镜头规格匹配(例如,大多数高数值孔径物镜需使用#1.5盖玻片)。若物镜带有校正环,应将其调整至对应的盖玻片厚度。使用错误的盖玻片厚度或未正确调整校正环可能导致球面像差,造成图像模糊或失真。 - 将载玻片翻转过来,轻轻压在无尘纸上,以挤出多余的封片剂。
注意:避免对载玻片施加过大压力。过度按压可能损伤或变形组织,影响多轮成像之间的对齐效果。
7. 显微镜设置与成像
注意:本实验方案特指 ZEISS LSM980 及其他 ZEISS 系统。在其他系统上,这些步骤可能有所不同。本文详细介绍了两种工作流程:传统共聚焦 + 光谱解混(多通道采集后通过计算进行光谱解混),该方法适用于无光谱探测器的情况,但采集时间较长且存在一定程度的荧光串色;全光谱检测(单次扫描、34 通道光谱采集),这是我们首选的方法,因其可提供最佳的信噪比(SBR)、近乎零串扰以及最快的成像速度。
- 传统共聚焦显微镜
- 在成像前约30分钟开启显微镜系统(包括激光器、探测器和计算机)。
- 通过点击 显微镜 > 物镜 进入显微镜控制界面,选择合适的物镜(例如,20倍,数值孔径0.8),如有需要,使用对镜头安全的擦拭纸清洁物镜。
- 将样品牢固地安装在载物台上。尽量将玻璃片或盖玻片腔室对准载物片夹的同一角落/端部,以便于连续轮次之间的X-Y方向对齐。具体操作取决于所安装的夹具类型。
- 使用目镜在GFP、YFP或RFP照明下对样品进行调焦,然后切换到计算机屏幕上的“采集”选项卡。
注意:使用目镜调焦时,请勿使用DAPI滤光片,因为将DAPI染料暴露于紫外光(使用DAPI滤光片组)会导致其光转化为一种绿色荧光分子(补充图1A)。 - 设置成像通道,以最小化信号重叠和激光间的交叉激发(补充表1、补充表2列出了本文所示传统共聚焦显微镜实验的采集参数)。
注意:理想的组合应具有明显不同的激发和发射峰,例如DAPI或AF488与AF594、AF647或AF700联用。- 为每个通道分配最优的激发激光。将每个通道的针孔大小调整为1 AU(艾里单位),以获得最佳光学切片效果。
- 根据各通道所用的荧光染料,分别调整该通道中每个可调探测器的采集波长范围。
- 调节激光功率和探测器增益设置,以最大化信背比(SBR)。确保极少或没有像素达到最大强度。
注意:为避免光漂白和/或探测器过曝,应尽可能降低激光功率。优化抗体稀释度,使信号明显高于背景。
- 按下连续扫描模式按钮,预览样品并设置扫描参数(扫描速度、分辨率,必要时设置平均次数)。
注意:对于小图像拼接区域并为最小化背景,建议驻留时间为0.2–0.3 µs,平均1–2次。为在保持细胞分割和单细胞分辨率的同时最大化扫描速度,建议使用最快扫描速度、不进行平均,像素大小为0.2–0.3 µm/像素。例如,使用20倍/0.80 NA物镜,以每块2048 × 2048像素进行成像,可获得0.20 µm/像素的分辨率,覆盖424.26 × 424.2 µm2的视野。 - 对每个通道执行测试扫描,以检查是否存在串扰或信号渗漏。
- 在已用所有标记染色的玻片上,以连续扫描模式,从低激光功率开始,逐步提高至标记清晰可见但未饱和的程度(使用LUT/饱和指示器)。
注意:如有可能,建议在成像实验样品前,使用重复样品或非目标区域优化显微镜设置。这一点在使用DAPI染色(避免光转化风险)或易快速光漂白的荧光染料(如PE)时尤为重要。 - 切换至该荧光染料的单染对照样本,调节激光功率和探测器增益,使信号明亮且未饱和。
- 在同一单染玻片上,扫描所有其他检测通道。若非目标通道的信号强度超过背景,则缩小检测窗口和/或降低激发功率/增益。
- 对每种荧光染料重复步骤7.1.7.1–7.1.7.2。每次调整后,简要检查先前已优化的染色,以保持信号强度可比性,特别是对共定位的标记。
- 在已用所有标记染色的玻片上,以连续扫描模式,从低激光功率开始,逐步提高至标记清晰可见但未饱和的程度(使用LUT/饱和指示器)。
- 启用“拼图”功能,并定义图像采集区域。
- 在组织中心区域优化拼图采集区域的焦距。寻找一个独特特征(如特定排列的一组细胞),作为后续轮次对齐的参考。
- 启用Z轴堆栈功能,进入Z轴堆栈选项卡,点击“中心”选项卡。将Z轴堆栈的切片数设置为至少6层,层间间隔至少1 µm。然后点击中心按钮,将当前焦点位置(由步骤6.1.8.1确定)设为堆栈的中间切片。
- 点击开始实验按钮以开始图像采集。通过右键单击图像缩略图并选择另存为,保存采集参数并备份图像数据。然后选择文件保存位置并命名图像。
- 使用与拼图区域采集相同的优化参数进行图像解混,从每种单染对照样本中采集一张快照,以获取真实信号光谱,并从未染色对照样本中获取背景/自发荧光信号,这些对照样本已在步骤6.4中制备。
- 这些图像用于光谱解混;请勿从多重染色样本中选择真实信号。首先确认在未染色对照中信号强度/形态缺失或等同于背景,然后比对预期的标记定位(如膜定位、核定位、胞质定位或分泌模式),以确保所选区域真实代表目标信号。
- 打开快照图像,点击解混选项卡。在“解混工具”选项卡下使用任一区域选择工具,在阳性信号周围绘制感兴趣区域(该区域的光谱将显示)。对每种荧光染料的每张快照图像重复此操作,以建立解混所需的参考光谱。
- 将该光谱与荧光染料的理论光谱进行比对,确保所选区域能代表真实信号。根据每种荧光染料命名光谱,并保存至光谱数据库。
注意:可识别自发荧光的光谱,并将其视为独立的荧光染料进行解混。在完成整个染料组合优化后,只要使用相同的实验方案和组织类型,便无需为新样本重新采集参考光谱。
- 将该光谱与荧光染料的理论光谱进行比对,确保所选区域能代表真实信号。根据每种荧光染料命名光谱,并保存至光谱数据库。
- 加载拼图图像并进入解混工具。使用+按钮将每种荧光染料的参考光谱添加至解混列表,然后点击线性解混按钮。
- 保存解混后的图像以供后续分析。
注意:输出结果为一个多拼图图像,每个标记对应一个通道。实验可在此暂停,之后继续。 - 采集明暗场校正图像
- 使用与样本成像完全相同的设置,采集一张DAPI校准玻片的图像。保存图像后,仅提取DAPI通道作为明暗场校正参考。输出结果为一张平场图像(补充图1B)。
注意:并非每个样本都需采集参考图像。只要使用相同仪器和相同设置,参考图像应保持一致。若所采集图像无明暗场伪影(如补充图1C所示),则无需此参考图像。
- 使用与样本成像完全相同的设置,采集一张DAPI校准玻片的图像。保存图像后,仅提取DAPI通道作为明暗场校正参考。输出结果为一张平场图像(补充图1B)。
- 光谱共聚焦显微镜
- 开启显微镜系统(包括激光器、探测器和计算机)。选择合适的物镜(例如,20倍,数值孔径0.8,或其他物镜),必要时进行清洁。
- 将样品牢固地安装在载物台上。确保盖玻片朝向物镜。
- 使用明场或微分干涉差(DIC)对样品进行调焦,然后切换至荧光模式。配置光谱采集参数。补充表3列出了本文所示光谱共聚焦显微镜实验的采集设置。
- 分配正确的激光器。
注意:某些激光器可激发多种荧光染料,因此并非每种荧光染料都需要独立的激光器。 - 选择适用于所用激光波长的分束器。启用所有探测器以尽可能捕获完整的光谱。将针孔大小调整为1 AU,以获得最佳光学切片效果。
- 分配正确的激光器。
- 优化激光设置
- 使用已用所有标记染色的切片,以低激光功率启动连续扫描模式。调节每种激光的强度,直至各标记在良好的信背比下可被识别。
注意:虽然此方法无法对光谱重叠的荧光染料进行精确调节,但有助于减少在显微镜上切换单染玻片的次数。 - 使用单染切片精细调节每种荧光染料的激光强度。在单染切片与全标记切片之间反复切换,直至每种标记的信号均可见且未过饱和。
注意:每次调整激光强度或增益设置后,需重新检查先前已优化的单染切片,以确保信号仍处于最佳状态。为实现最优解混,各标记间的信号强度应尽可能接近,尤其是共定位的标记。如有可能,建议在成像实验样本前,使用重复样品或非目标区域优化显微镜设置。这一点在使用DAPI染色(避免光转化风险)或易快速光漂白的荧光染料(如PE)时尤为重要。
- 使用已用所有标记染色的切片,以低激光功率启动连续扫描模式。调节每种激光的强度,直至各标记在良好的信背比下可被识别。
- 执行步骤7.1.8–7.1.14。
8. 移除盖玻片(仅适用于载玻片,不适用于带盖玻片的培养小室)
- 将载玻片浸入 PBS 中,使盖玻片自然脱落。切勿强行取下盖玻片,以免导致组织变形,从而在后续成像轮次中引起对位问题,或造成组织完全从载玻片上脱落。使用足够大的容器以容纳载玻片,并确保其可完全浸没于 PBS 中。
9. 荧光团淬灭与循环
- 仅适用于带腔室的盖玻片:使用移液器尽可能吸出封片介质,注意不要损伤组织。
注意:将腔室倾斜有助于吸出封片介质。 - 用约 1 mL(带腔室盖玻片)或约 100 µL(载玻片)的 PBS 洗涤 3 次,每次 2 分钟,直至完全去除封片介质。
- 在通风橱中配制漂白液。使用微型药匙将 10 mg LiBH4 直接称量至干燥烧杯中。小心地将 10 mL 超纯水直接加入含有 LiBH4 的烧杯中,搅拌至完全溶解,制成漂白液。
注意:为获得最大反应活性,应在使用前立即配制。
警告:LiBH4 极易燃,因此此步骤需格外小心——确保正确使用通风橱(即调节窗板至适当高度,穿戴合适的个人防护装备等),且每次操作仅使用 <10 mg 的 LiBH4。加入 LiBH4 前务必确保烧杯完全干燥,否则可能引发火灾。 - 使用玻璃巴斯德移液管向每份组织切片中加入约 100 µL 漂白液,在通风橱中室温孵育 15 分钟。对于腔室载玻片,使用 2 mL 漂白液。
- 若需漂白 BV 荧光染料(例如 BV421、BV510 等),请小心将腔室转移至落射荧光显微镜。选择 DAPI 滤光片,对样本进行聚焦,并以全功率照射。
- 使用 5 倍物镜以获得更大的照明视野。将载物台尽可能降低,以防止损坏物镜及外壳。
- 使用玻璃巴斯德移液管将 LiBH4 溶液从腔室中倾出,并倒回 LiBH4 溶液的烧杯中。
注意:此时该溶液已成为废液 LiBH4,不可储存用于后续使用。 - 用稀释缓冲液洗涤载玻片 3 次,每次孵育约 3 分钟。腔室载玻片的总体积为 2 mL。
- 加入抗体混合液,并按照常规实验流程进行染色(步骤 6.3–6.8)。
- 在通风橱中,将 2N H2SO4 逐滴加入废弃的 LiBH4 溶液中,同时定期搅拌。
警告:LiBH4 会剧烈起泡。这些气泡是 LiBH4 释放出的 H2 气体;氢气极易燃,因此此步骤需格外小心,并缓慢滴加 H2SO4。 - 当溶液不再产生气泡时,将其倒入吸水垫中。用超纯水冲洗烧杯,并将冲洗液也倒入吸水垫中。
警告:将吸水垫放入化学/生物危害袋中,密封后根据当地化学危险品处理规范进行处置。
10. 图像采集后的处理
- 在 Zen 软件中通过点击 文件 > 打开 > 选择参考图像 来打开参考图像(来自步骤 7.1.14)。
注意:图像采集后的处理步骤也可在开源软件包中进行(例如 ImageJ)。 - 通过点击 处理 > 强度 > 对比度拉伸 > 自动 > 应用 调整亮度和对比度,以优化动态范围。
- 通过点击 处理 > 图像 > 转换像素类型 > 32 位(浮点) 将像素类型更改为 32 位。
- 通过点击 处理 > 强度 > 归一化(饱和像素 = 0%)> 应用 对参考图像进行归一化。
- 通过点击 处理 > 平滑 > 高斯 > 输入半径(例如 2–5 px)> 应用 对参考图像进行平滑处理(补充图 1B)。
注意:通过尝试不同的值来优化高斯模糊半径。为确定合适的值,可使用(处理 > 图像计算器)将原始参考图像除以处理后的图像,所得图像应具有均匀的强度(所有像素值大致相同)。 - 通过点击 文件 > 打开 > 选择多图块图像 打开需要校正的多图块图像。
- 使用已处理的参考图像,通过点击 处理 > 拼接 并设置以下参数,应用拼接和阴影校正。
- 勾选融合框。勾选正确的阴影校正框,并从下拉菜单中选择已处理的参考图像(步骤 10.5)。保持所有其他参数不变。
注意:可能需要调整参数以获得最佳结果。 - 在输入/输出菜单中,选择多图块图像作为输入,阴影参考作为参考图像。
- 点击顶部的 应用 按钮,将生成一幅经过拼接和阴影校正的新图像(补充图 1D)。
注意:拼接校正(补充图 1I–J)对于确保后续图像配准的准确性是必要的。 - 通过点击 文件 > 保存 > 选择文件夹 保存校正后的图像。
- 勾选融合框。勾选正确的阴影校正框,并从下拉菜单中选择已处理的参考图像(步骤 10.5)。保持所有其他参数不变。
11. 图像对齐
- 使用 Imaris 文件转换工具将处理后的图像(无论其原始格式为何,如 .czs、.tif 等)转换为 Imaris 格式。
注意:可通过访问以下网站(https://imaris.oxinst.com/microscopy-imaging-software-free-trial#file-converter)并按照说明下载和安装该工具。 - 启动 Imaris 扩展注册工具,将所有轮次的图像注册(对齐)为一个包含所有通道的单一图像。
注意:要安装该工具并成功对齐图像,请遵循以下网站上的说明(https://github.com/niaid/imaris_extensions)。 - 点击 Imaris Extensions 按钮,选择 SimpleITK Utilities > Export Channel Settings to CSV。
- 点击 Browse,浏览至某一轮次的 .ims 图像文件,选中该文件后点击 Open。
- 点击 Export ,选择保存 CSV 文件的位置,输入文件名后点击 Save。
- 打开已保存的 CSV 文件,确认通道名称正确无误;如有需要,请进行编辑。
- 若进行了编辑,请进入 Imaris Extensions > SimpleITK Utilities > Batch Configure Channel Settings。
注意:如果上一步未进行任何编辑,则此步骤无需执行。 - 点击 Browse,导航至该 CSV 文件,选中后点击 Open。点击 Next,然后再次点击 Browse 选择相同的 .ims 图像文件,并点击 Open。
- 点击 Configure 以应用更改。对来自不同轮次的所有图像重复步骤 11.3–11.8。
- 当通道名称正确设置后,进入 Imaris Extensions > SimpleITK Algorithms > Affine Registration of Z-Stacks Using a Common Channel。
- 点击 Browse,导航至包含所有轮次图像的文件夹,选中所有图像文件后点击 Open。
- 点击 Next,选择用于配准的通道(即定位标记通道)。在本实验方案中,使用的是 DAPI 通道。随后选择固定图像。
注意:应选择在各轮次之间保持恒定且不易受化学或光漂白影响的通道/标记(例如 DAPI 等细胞核染料),然后选择固定图像。 - 点击 Advanced Registration Settings,除 Auto Mask 外勾选所有选项,并将高斯平滑 sigma 值设为 5.0。
- 点击 Done,然后点击 Register 开始执行图像对齐。完成注册后,点击 Resample 和 Save Combined Image 保存结果。
- 重采样完成后,选择定位标记通道并点击 Calculate Correlation。输出文件包括一个对齐后的 output.ims 图像、两份 PDF 文件(分别显示注册前后的对齐质量)、一个包含注册所用设置的 JSON 文件,以及记录整个流程的日志 TXT 文件。
12. 图像配准
- 使用 CellPose (v2.5)25 对细胞/对象进行分割
- 针对每个单染数据集,利用标记物自身的检测通道生成一个分割掩膜(示例:对于 CD20 单染,从 AF488 检测通道(CD20 的目标通道)生成掩膜)
- 将步骤 2 中生成的分割掩膜应用于同一数据集中的所有通道(在 CD20 示例中,将源自 AF488 的掩膜应用于 AF488 以测量真实信号,并应用于所有其他检测通道以测量串扰信号)
- 使用 Python 中的 scikit-image (regionprops_table) 和 NumPy 提取每个对象的强度值和面积
- 信噪比(SBR)
- 计算标记物目标检测通道中所有已分割 ROI 的平均对象强度。
- 将背景强度定义为同一视野中所有 ROI 外像素的平均强度,排除零值填充像素或越界像素。
SBR 计算公式为:
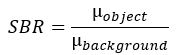
- 使用小提琴图可视化 SBR 分布,以点形式显示每个对象的值(或在指定情况下显示每个视野的值)。
- 串扰量化
- 针对每个非目标通道,使用步骤 12.2 中掩膜获得的相同 ROI 计算串扰百分比(%):
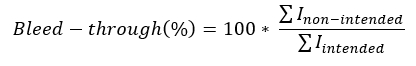
- 注意:对角线上的值等于 100%,因为在单染图像的目标通道中,分子与分母相同(在自身通道中测量的真实标记物信号)。
- 针对每个非目标通道,使用步骤 12.2 中掩膜获得的相同 ROI 计算串扰百分比(%):
访问受限。请登录或开始试用以查看此内容。
结果
免疫荧光成像技术面临的两个基本挑战是荧光素偶联抗体探针的非特异性结合以及组织自发荧光。本方案旨在帮助区分真实信号与背景信号,以优化多重免疫荧光技术。
肝素封闭可减少非特异性荧光团结合,同时保留信号
粒细胞因其高强度的非靶向荧光而臭名昭著,这种荧光并不符合标记物预期的形态学分布26,27。例如,在慢性鼻窦炎患者的鼻息肉组织中,使用膜淋巴细胞标记物CD3、CD4和CD20进行染色后,所有检测通道均显示出强烈的信号,并呈现出意料之外的颗粒状形态(图1A,黄色箭头)。鼻息肉组织富含嗜酸性粒细胞,这些荧光细胞中典型的双叶核结构表明嗜酸...
访问受限。请登录或开始试用以查看此内容。
讨论
Spectral IBEX 是 IBEX 方案的一种改进,成功解决了免疫荧光成像中的两个关键问题:非特异性结合和自发荧光。通过对嗜酸性极强的组织使用肝素处理,并结合光谱解混技术以消除自发荧光及通道间的光谱重叠,显著提高了真实信号相对于背景的检出率。单次扫描即可捕获所有标记物,缩短了采集时间,可能提高 IBEX 循环的速率。尽管在缺乏光谱检测器的情况下可采用传统共聚焦采集结合计算解混方法,但仍推荐使用全光谱检测,因其可最大化灵敏度、几乎完全消除串色,并将每轮成像时间缩短一半。本文提供了 Spectral IBEX 的详细实验方案,包含建议、注意事项及相关数据,以支持在多种研究环境中实施各类 IBEX 模式。
组织自发荧光是荧光成像的主要限制因素。福尔马林固定石蜡包埋(FFPE)等固定和包埋方法会显著增强组织的自发荧光,从而限制了任何荧光成像技术在大量以FFPE组织块形式长期保存的临床样本中的应用37。此外,某些组织本身具有极强的自发荧光(如肝脏、脾脏、鼻息肉等),使用传统显微镜方法无法将真实信号与背景自发荧光区分开来,导致发射波长范围相...
访问受限。请登录或开始试用以查看此内容。
披露
JFEK 和 MJ 收到来自 ALK Abello A/S 的资助。JFEK 收到来自 Merida Biosciences 的咨询费。
致谢
我们感谢Andrea Radtke博士和Ziv Yaniv博士在IBEX平台的引入和迭代过程中提供的支持。感谢João Bronze de Firmino博士和Mouhanad Babi博士在显微镜使用和故障排查方面的协助,以及麦克马斯特大学先进光学显微中心提供显微镜设备的使用权限。感谢Tina Walker、Jianping Wen和Rangana Talpe Guruge提供的技术支持。本研究得到了由加拿大卫生研究院感染与免疫研究所(CIHR-III)、加拿大卫生研究院循环与呼吸健康研究所(CIHR-ICRH)以及加拿大过敏、哮喘与免疫学基金会(CAAIF)联合资助的经同行评审的食品过敏研究基金的支持。本研究还获得了加拿大卫生研究院(PJT-198169;JFEK)、J.P. Bickell基金会医学研究基金(JFEK)、加拿大过敏、哮喘与免疫学基金会(JFEK、MJ)、加拿大过敏与临床免疫学会(VO、MJ)、Schroeder基金会(JFEK、SW、MJ)、Food Allergy Canada(JFEK、SW、MJ)、ALK Abello A/S公司(JFEK、MJ)、Zych家族(SW、MJ)、Buckrell家族(JFEK)、安大略省研究生奖学金(SD)以及麦克马斯特大学健康科学学士项目(VO)的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2N 硫酸(H2SO4)溶液 | N/A | N/A | 实验室现有或常用者均可 |
| 500 mL 烧杯 | N/A | N/A | 实验室现有或常用者均可 |
| 6 孔板 | N/A | N/A | 实验室现有或常用者均可 |
| Bcl-6 - Alexa Fluor 647 | BD Biosciences | 561525 | 稀释倍数 1:100 |
| BD Cytofix/Cytoperm 固定/透化试剂盒 | BD Biosciences | 554722 | |
| 台式解剖显微镜 | N/A | N/A | 实验室现有或常用者均可 |
| 牛血清白蛋白(BSA) | SIGMA-ALDRICH | A4503 | |
| CD11c - Alexa Fluor 700 | BD Biosciences | 561352 | 稀释倍数 1:100 |
| CD138/Syndecan-1 - PE | BioLegend | 356503 | 稀释倍数 1:200 |
| CD20 - Alexa Fluor 488 | Invitrogen | 53020282 | 稀释倍数 1:100 |
| CD21 - Alexa Fluor 532 | NovusBio | NBP2-60733AF532 | 稀释倍数 1:100 |
| CD23 - PE | BioLegend | 338507 | 稀释倍数 1:200 |
| CD3 - iFluor 594 | AAT Bioquest | 100320C0 | 稀释倍数 1:100 |
| CD31 - Alexa Fluor 700 | BioLegend | 303134 | 稀释倍数 1:100 |
| CD34 - iFluor 594 | AAT Bioquest | 103400C0 | 稀释倍数 1:100 |
| CD38 - Alexa Fluor 700 | BioLegend | 303523 | 稀释倍数 1:100 |
| CD4 - Alexa Fluor 647 | BioLegend | 300520 | 稀释倍数 1:100 |
| CD45 - Alexa Fluor 532 | ThermoFisher Scientific | 58045942 | 稀释倍数 1:100 |
| CD54/ICAM-1 - Alexa Fluor 647 | BioLegend | 353113 | 稀释倍数 1:100 |
| 铬矾-明胶粘合剂 | Newcomer Supply | 1033A | |
| 冷冻模具(Cryomold) | Fisher Scientific | NC9511236 | 较大样本亦可使用货号 50-465-347 |
| DAPI 校准玻片 | Agar Scientific | AG2273 | |
| DAPI 溶液,1 mg/mL | ThermoFisher Scientific | 62248 | 稀释倍数 1:3000 |
| E-cadherin/CD324 - Alexa Fluor 647 | BioLegend | 147307 | 稀释倍数 1:100 |
| EpCAM/CD326 - Alexa Fluor 594 | BioLegend | 324228 | 稀释倍数 1:100 |
| Eppendorf 管或 Falcon 管 | N/A | N/A | 实验室现有或常用者均可 |
| Fluoromount-G | SouthernBiotech | 0100-01 | |
| 镊子 | N/A | N/A | 实验室现有或常用者均可 |
| FoxP3 - eFluor 660 | ThermoFisher Scientific | 50577382 | 稀释倍数 1:100 |
| 磨砂端显微镜载玻片 | ChemScience | GEW45-2575-W | |
| GL7 - Alexa Fluor 488 | ThermoFisher Scientific | 53590282 | 稀释倍数 1:100 |
| 肝素钠盐 | SIGMA-ALDRICH | H3393 | 10KU |
| HLA-DR - PE | NovusBio | NB100-77855PE | 稀释倍数 1:200 |
| 人源 TruStain FcX(Fc 受体阻断液) | BioLegend | 422302 | 稀释倍数 1:100 |
| 湿盒 | N/A | N/A | 实验室现有或常用者均可 |
| 带盖冰桶 | N/A | N/A | 实验室现有或常用者均可 |
| IgD - Alexa Fluor 488 | BioLegend | 348215 | 稀释倍数 1:100 |
| IL4Ra/CD124 - PE | BioLegend | 144803 | 稀释倍数 1:200 |
| Imaris 文件转换器 | OXFORD instruments | N/A | 将任意图像文件格式转换为 .ims 格式(https://imaris.oxinst.com/microscopy-imaging-software-free-trial#file-converter) |
| 异戊烷(2-甲基丁烷) | N/A | N/A | 实验室现有或常用者均可 |
| Ki-67 - Alexa Fluor 488 | BD Biosciences | 558616 | 稀释倍数 1:100 |
| Kimberly-Clark Professional Kimtech Science Kimwipes 细致任务擦拭纸,单层 | Kimtech Science | 06-666 | |
| 大型(例如 25 cm 长)镊子 | N/A | N/A | 实验室现有或常用者均可 |
| 液氮 | N/A | N/A | 实验室现有或常用者均可 |
| 硼氢化锂(LiBH4) | SIGMA-ALDRICH | 222356 | |
| MECA-79 - Alexa Fluor 488 | Invitrogen | 53603680 | 稀释倍数 1:100 |
| 显微镜载玻片盖玻片 No.1 22x50 mm | Fisher Scientific | 12-542A | |
| 超纯水(Milli-Q 水) | N/A | N/A | 实验室现有或常用者均可 |
| MUC2 - Alexa Fluor 488 | NovusBio | NB120-11197AF488 | 稀释倍数 1:100 |
| Nunc Lab-Tek 带孔盖玻片培养皿 | ThermoFisher Scientific | 155380 | |
| 疏水笔(PAP pen) | abcam | AB2601 | |
| 磷酸盐缓冲液(PBS)溶液 | N/A | N/A | 实验室现有或常用者均可 |
| 手术刀 | N/A | N/A | 实验室现有或常用者均可 |
| SimpleITK Imaris 扩展插件 | N/A | N/A | 用于对齐不同轮次图像的软件(https://github.com/niaid/imaris_extensions) |
| 蔗糖 | SIGMA-ALDRICH | S0389 | |
| Tissue-Tek O.C.T. 包埋剂 | Sakura Finetek USA | 4583 | |
| 吐温 X-100(Triton X-100) | SIGMA-ALDRICH | X100 | |
| Zeiss LSM 980 | ZEISS Microscopy | N/A | 本研究中使用的成像系统 |
| Zen Blue | ZEISS Microscopy | N/A | 用于图像采集后处理的软件 |
参考文献
- Hagios, C., Lochter, A., Bissell, M. J. Tissue architecture: The ultimate regulator of epithelial function. Philosoph Trans Royal Soc B: Biol Sci. 353 (1370), (1998).
- Mincarelli, L., Lister, A., Lipscombe, J., Macaulay, I. C. Defining Cell Identity with Single-Cell Omics. Proteomics. 18 (18), (2018).
- Macaulay, I. C., Voet, T. Single Cell Genomics: Advances and Future Perspectives. PLoS Genet. 10 (1), (2014).
- de Vries, N. L., Mahfouz, A., Koning, F., de Miranda, N. F. C. C. Unraveling the Complexity of the Cancer Microenvironment With Multidimensional Genomic and Cytometric Technologies. Front Oncol. , 10(2020).
- van Dam, S., Baars, M. J. D., Vercoulen, Y. Multiplex Tissue Imaging: Spatial Revelations in the Tumor Microenvironment. Cancers. 14 (13), (2022).
- Bressan, D., Battistoni, G., Hannon, G. J. The dawn of spatial omics. Science. 381 (6657), (2023).
- Williams, C. G., Lee, H. J., Asatsuma, T., Vento-Tormo, R., Haque, A. An introduction to spatial transcriptomics for biomedical research. Gen Med. 14 (1), (2022).
- Ståhl, P. L., et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 353 (6294), (2016).
- Pascal, L. E., et al. Correlation of mRNA and protein levels: Cell type-specific gene expression of cluster designation antigens in the prostate. BMC Genom. 9, (2008).
- Patel, S. S., Rodig, S. J. Overview of Tissue Imaging Methods. Methods Mol Biol. 2055, (2020).
- Ohno, M., Karagiannis, P., Taniguchi, Y. Protein expression analyses at the single cell level. Molecules. 19 (9), (2014).
- Zimmermann, T., Marrison, J., Hogg, K., O’Toole, P. Clearing up the signal: Spectral imaging and linear unmixing in fluorescence microscopy. Methods Mol Biol. , 1075(2014).
- Radtke, A. J., et al. IBEX: an iterative immunolabeling and chemical bleaching method for high-content imaging of diverse tissues. Nat Protoc. 17 (2), (2022).
- Radtke, A. J., et al. IBEX: A versatile multiplex optical imaging approach for deep phenotyping and spatial analysis of cells in complex tissues. Proc Natl Aca Sci U S A. 117 (52), (2020).
- Kothurkar, A. A., et al. ’Iterative Bleaching Extends Multiplexity’ facilitates simultaneous identification of all major retinal cell types. J Cell Sci. 137 (23), (2024).
- Cohn, D. E., et al. Delineating spatial cell-cell interactions in the solid tumour microenvironment through the lens of highly multiplexed imaging. Front Immunol. 14, (2023).
- Radtke, A. J., et al. IBEX: An open and extensible method for high content multiplex imaging of diverse tissues. arXiv. , (2021).
- Radtke, A. J., et al. The IBEX Knowledge-Base: A central resource for multiplexed imaging techniques. PLoS Biol. 23 (3), e3003070(2025).
- Croce, A. C. Light and Autofluorescence, Multitasking Features in Living Organisms. Photochem. 1 (2), (2021).
- Wizenty, J., et al. Autofluorescence: A potential pitfall in immunofluorescence-based inflammation grading. J Immunol Methods. 456, (2018).
- Donaldson, J. G. Immunofluorescence Staining. Curr Protoc Cell Biol. 69 (1), 4.3.1-4.3.7 (2015).
- Sicherre, E., Favier, A. L., Riccobono, D., Nikovics, K. Non-specific binding, a limitation of the immunofluorescence method to study macrophages in situ. Genes. 12 (5), (2021).
- Monique Hartlen Histotechnology Lab Manual. , NSCC. (2022).
- Stephen Peters Frozen Section Technique. , Pathology Innovations, LLC. https://pathology-innovations.squarespace.com/frozen-section-technique (2023).
- Stringer, C., Wang, T., Michaelos, M., Pachitariu, M. Cellpose: a generalist algorithm for cellular segmentation. Nat Methods. 18 (1), (2021).
- Mayeno, A. N., Hamann, K. J., Gleich, G. J. Granule-associated flavin adenine dinucleotide (FAD) is responsible for eosinophil autofluorescence. J Leukocyte Biol. 51 (2), (1992).
- Jenvey, C. J., Stabel, J. R. Autofluorescence and Nonspecific Immunofluorescent Labeling in Frozen Bovine Intestinal Tissue Sections: Solutions for Multicolor Immunofluorescence Experiments. J Histochem Cytochem. 65 (9), (2017).
- Vlaminck, S., et al. The importance of local eosinophilia in the surgical outcome of chronic rhinosinusitis: A 3-year prospective observational study. Am J Rhinol Allergy. 28 (3), (2014).
- Skinner, B. M., Johnson, E. E. P. Nuclear morphologies: their diversity and functional relevance. Chromosoma. 126 (2), (2017).
- Duhamel, R. C., Johnson, D. A. Use of nonfat dry milk to block nonspecific nuclear and membrane staining by avidin conjugates. J Histochem Cytochem. 33 (7), (1985).
- Valnes, K., Brandtzaeg, P. Selective inhibition of nonspecific eosinophil staining or identification of eosinophilic granulocytes by paired counterstaining in immunofluorescence studies. J Histochem Cytochem. 29 (5), (1981).
- Panchuk-Voloshina, N., et al. Alexa dyes, a series of new fluorescent dyes that yield exceptionally bright, photostable conjugates. J Histochem Cytochem. 47 (9), (1999).
- Bystrom, J., Amin, K., Bishop-Bailey, D. Analysing the eosinophil cationic protein - a clue to the function of the eosinophil granulocyte. Respiratory Res. , 12(2011).
- Rahman, A. H., Tordesillas, L., Berin, M. C. Heparin reduces nonspecific eosinophil staining artifacts in mass cytometry experiments. Cyt Part A. 89 (6), (2016).
- Saitou, T., et al. Tissue intrinsic fluorescence spectra-based digital pathology of liver fibrosis by marker-controlled segmentation. Front Med. 5 (DEC), (2018).
- Acuña-Rodriguez, J. P., Mena-Vega, J. P., Argüello-Miranda, O. Live-cell fluorescence spectral imaging as a data science challenge. Biophys Rev. 14 (2), (2022).
- Constantinou, P., Dacosta, R. S., Wilson, B. C. Extending immunofluorescence detection limits in whole paraffin-embedded formalin fixed tissues using hyperspectral confocal fluorescence imaging. J Microscopy. 234 (2), (2009).
- Enninful, A., Baysoy, A., Fan, R. Unmixing for ultra-high-plex fluorescence imaging. Nat Comm. 13 (1), (2022).
- Chang, Q., et al. Imaging Mass Cytometry. Cyt Part A. 91 (2), (2017).
- Angelo, M., et al. Multiplexed ion beam imaging of human breast tumors. Nat Med. 20 (4), (2014).
- Baharlou, H., Canete, N. P., Cunningham, A. L., Harman, A. N., Patrick, E. Mass Cytometry Imaging for the Study of Human Diseases—Applications and Data Analysis Strategies. Front Immunol. 10, (2019).
- Goltsev, Y., Nolan, G. CODEX multiplexed tissue imaging. Nat Rev Immunol. 23 (10), 613-613 (2023).
- Black, S., et al. CODEX multiplexed tissue imaging with DNA-conjugated antibodies. Nat Protoc. 16 (8), (2021).
- Vorobjev, I. A., Kussanova, A., Barteneva, N. S. Development of Spectral Imaging Cytometry. Methods Mol Biol. 2635, (2023).
- Hernandez, S., et al. Multiplex Immunofluorescence Tyramide Signal Amplification for Immune Cell Profiling of Paraffin-Embedded Tumor Tissues. Front Mol Biosci. 8, (2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
