本综述旨在探讨瞬时受体电位锚蛋白1(TRPA1)在化疗诱导的周围神经病变(CIPN)发病机制中的作用机制,并评估其作为免疫调节和抗炎干预治疗靶点的潜力。
本文内容
摘要
摘要
化疗诱导的周围神经病变(CIPN)是一种常见且严重的临床病症,由化疗药物损伤周围神经系统所致,通常表现为四肢远端异常疼痛以及对冷热刺激的敏感性增加。然而,目前针对CIPN的临床治疗方法十分有限,因此迫切需要明确有效的治疗策略。瞬时受体电位锚蛋白1(TRPA1)作为一种损伤感受器,在CIPN的发生和发展过程中可被氧化应激、炎症介质以及低温条件激活。TRPA1调控下游炎症通路,促进炎症因子和神经肽的释放,导致异常的免疫调节,进而引发神经源性炎症反应和疼痛信号传导。本研究探讨了TRPA1在CIPN发病机制中的作用,验证了通过抑制神经炎症、靶向TRPA1治疗CIPN的可行性,并探索了TRPA1拮抗剂及天然草药在CIPN临床治疗中的应用前景。
引言
癌症仍然是全球主要的公共卫生挑战之一1。尽管化疗在提高癌症生存率方面发挥着关键作用,但常伴随严重的不良反应,其中化疗诱导的周围神经病变(CIPN)是最常见且最复杂的并发症之一。CIPN在临床上表现为四肢远端对称性疼痛、感觉异常以及对冷热刺激的异常敏感2,部分患者还可能出现精细运动协调能力受损3。CIPN的报道发病率差异较大,约为50%至90%,其中约30%–40%的病例可能发展为慢性神经系统并发症2,显著降低患者的生活质量和治疗依从性。CIPN的发生风险受多种因素影响,包括给药方式(单次剂量、累积剂量或治疗持续时间)、合并用药、年龄、贫血、较高的体重指数(BMI)以及既往存在的神经病变2,4,5。已报道可引起不同程度神经毒性的抗肿瘤药物包括铂类化合物、紫杉烷类、长春碱类、蛋白酶体抑制剂(如硼替佐米)、表观遗传或免疫调节药物(如沙利度胺和来那度胺)以及微管抑制剂(如艾日布林)6。
目前,用于管理化疗诱导的周围神经病变(CIPN)的药物选择仍然有限。美国临床肿瘤学会(ASCO)推荐度洛西汀作为唯一具有循证医学支持的CIPN治疗药物干预手段。临床研究显示,度洛西汀在缓解CIPN相关疼痛方面有效,其治疗效果在铂类化疗药物(尤其是奥沙利铂(OXA))引起的神经病变中最为显著;而在其他药物(如紫杉烷类和长春碱类)所致CIPN中的疗效,不同研究结果则表现出较大差异7。尽管度洛西汀已证实具有镇痛效果,但其整体临床获益程度中等,主要在于缓解症状,而非预防CIPN或逆转其潜在的病理改变。此外,尽管度洛西汀通常耐受性良好,但治疗过程中可能伴随轻度至中度不良反应,包括疲劳、失眠和恶心,这可能限制部分患者的长期依从性。其他常用药物如加巴喷丁和普瑞巴林虽也用于症状管理,但在CIPN中的治疗效果在不同研究中表现不一致或不尽如人意8,9。因此,目前仍迫切需要开发更有效的预防策略,并明确CIPN新的治疗靶点。
近年来,随着对CIPN发病机制的深入理解,炎症反应、氧化应激以及神经可塑性改变等多种机制逐渐受到越来越多的关注10,11,12。其中,氧化应激和神经炎症被认为是CIPN中神经元损伤发生与进展的核心因素。重要的是,TRPA1通道作为一种在感觉神经元中高表达的氧化还原敏感性离子通道,已被确认为连接氧化应激和炎症信号通路与神经元过度兴奋及痛觉过敏的关键分子中介13,14。与主要感知有害热刺激的TRPV1以及感知冷刺激的TRPM8不同,TRPA1的特点在于其对多种氧化性和亲电性代谢产物(如4-羟基壬烯醛(4-HNE))具有高度敏感性15。TRPA1的激活通常涉及对其关键半胱氨酸残基的共价修饰16,这一独特机制使TRPA1成为连接化疗诱导的氧化应激和脂质过氧化与痛觉过敏发展的关键分子桥梁。此外,多项动物研究表明TRPA1在化疗诱导的神经病理性疼痛中具有功能性参与作用。特别是在奥沙利铂(OXA)诱导的神经病变模型中,TRPA1的基因敲除或药理学阻断可显著缓解冷刺激和机械性异常性疼痛,表明TRPA1在CIPN发病机制中具有重要作用17,18。
TRPA1 是一种对氧化还原状态敏感的离子通道,在外周伤害性感觉神经元中高表达。化疗药物常导致神经元线粒体功能障碍、氧化应激和脂质过氧化,从而引起活性氧(ROS)和脂质过氧化产物(如 4-HNE)的过度积累。这些活性分子可通过共价修饰 TRPA1 的关键半胱氨酸残基或改变其激活阈值,导致通道开放、Ca²⁺ 内流和神经元去极化,进而放大疼痛信号传递和炎症信号通路19,20,21。先前的研究进一步表明,TRPA1 对冷刺激敏感,并可被内源性炎症介质激活,参与冷诱导性疼痛超敏反应的发生22。此外,TRPA1 还被证实是一种机械敏感性离子通道,其活性受细胞内氧化还原状态调节,参与异常的机械性疼痛和痛觉过敏22,23。除神经元外,TRPA1 也在多种免疫细胞类型中表达,其激活可调节细胞因子释放和炎症级联反应,进一步加剧外周神经炎症24。综上所述,TRPA1 的冷敏感性、机械敏感性和氧化还原响应性在化疗诱导的氧化应激与继发性病理性疼痛过程之间建立了明确的机制联系,从而参与化疗诱导的周围神经病变(CIPN)的发生与维持。因此,靶向 TRPA1 以阻断氧化应激与神经炎症毒性之间的恶性循环,可能成为治疗化疗诱导的周围神经病理性疼痛的一种有前景的治疗策略。在已有研究中,针对 TRPA1 的干预策略已在多种模型系统中得到验证。体外实验中,通常联合使用背根神经节(DRG)神经元培养与钙成像技术,以验证 TRPA1 激活对化疗诱导的神经元兴奋性的影响25。体内实验中,通常在啮齿类动物中使用奥沙利铂(OXA)、紫杉醇或多泽蒙(bortezomib)诱导 CIPN,随后通过药理学或遗传学手段抑制 TRPA1,并进行冷刺激和机械性痛觉过敏等行为学评估17,26,27。在治疗层面,TRPA1 拮抗剂已在临床前模型中显示出缓解神经病理性疼痛的效果28,29。总体而言,这些研究结果为将 TRPA1 作为 CIPN 治疗靶点的转化研究提供了坚实的实验基础。
目前的研究已经揭示了TRPA1与化疗诱导的周围神经病变(CIPN)之间可能存在关联。然而,这些研究主要集中在TRPA1对疼痛信号传导的直接影响及其在炎症反应中的局部作用。目前仍缺乏对TRPA1调节免疫反应进而影响CIPN整体病理过程的系统性研究和深入探讨。因此,本文讨论了CIPN的潜在发病机制,重点探讨TRPA1在CIPN发病过程中的作用。同时,本文还总结了TRPA1拮抗剂及天然草药的研究现状,以验证抑制TRPA1产生抗炎免疫效应从而治疗CIPN的可行性。本文的创新之处在于从免疫调节的视角系统研究TRPA1在CIPN发病机制中的作用,突破了以往研究仅局限于其在神经细胞或局部炎症中效应的局限性。此外,本文为开发治疗CIPN的药物提供了新的靶点和理论依据,具有重要的科学意义和临床应用价值。
综述与观点
1. CIPN 的潜在机制
CIPN 的发病机制复杂,与化疗药物诱导的线粒体功能障碍、氧化应激、免疫系统异常、离子通道失调、背根神经节(DRG)神经元损伤以及神经元细胞骨架破坏有关2,30,31,32,33,34,35,36,37,38,39,40,41,42。表1概述了 CIPN 中涉及的具体致病机制。
- 线粒体功能障碍与氧化应激
化疗药物可诱导线粒体形态改变、生物能量紊乱以及活性氧(ROS)的过度产生,从而导致线粒体结构损伤、功能障碍及氧化应激12,43这些事件可激活免疫细胞,升高促炎性细胞因子水平,并触发炎症信号通路,最终促进化疗诱导的周围神经病变(CIPN)的发生。具体而言,基于铂类的化疗药物会形成铂- DNA 加合物,这些加合物在背根神经节(DRG)中积聚,并与细胞核DNA(nDNA)及线粒体DNA(mtDNA)结合。这会促进交联反应,改变核DNA的结构与合成,诱导DNA/线粒体损伤,增加活性氧(ROS)的产生,激活损伤受体相关通道,并诱导神经元凋亡。另有证据表明,奥沙利铂(OXA)可通过激活星形胶质细胞,并在丝裂原活化蛋白激酶(MAPK)通路中上调促炎性细胞因子,从而诱发神经病理性疼痛。
除了铂类化合物外,其他化疗药物也可通过多种机制损害线粒体完整性。紫杉醇干扰轴突和线粒体的运输过程,导致线粒体通透性转换孔(mPTP)开放,进而引起线粒体膜电位丧失、活性氧(ROS)过度生成、ATP 耗竭、钙离子外流以及线粒体肿胀。另一方面,硼替佐米抑制蛋白酶体活性,破坏细胞内蛋白质稳态,从而诱发线粒体结构损伤和功能障碍。这些改变表现为线粒体肿胀与空泡化、钙离子调节失常、呼吸链受抑、ATP 生成减少以及活性氧的积聚。此外,长春新碱(VCR)抑制微管聚合,损害线粒体沿轴突的运输,继而导致膜电位降低、钙稳态紊乱以及神经元兴奋性异常。综上所述,这些药物凸显了线粒体功能障碍在化疗药物神经毒性作用中的核心地位。41,44,45,46,47.
类似地,线粒体功能障碍作为促炎信号传导的核心调节因子,而炎症反过来又加剧线粒体损伤,从而形成神经毒性的恶性循环30,31值得注意的是,此过程中产生的活性氧(ROS)可直接激活氧化还原敏感性离子通道TRPA1,引发钙离子内流、神经元过度兴奋,以及化疗诱导的周围神经病变(CIPN)相关特征性症状,如冷觉和机械性异常性疼痛。因此,氧化应激在连接线粒体损伤、TRPA1激活与CIPN发病机制中发挥关键枢纽作用。 图1 阐述了线粒体功能障碍和氧化应激导致化疗诱导的周围神经病变(CIPN)发展的机制。 - 免疫系统的异常
- 神经免疫相互作用
神经免疫相互作用在化疗诱导的周围神经病变(CIPN)的发生与持续中起关键作用。越来越多的证据表明,神经系统与免疫系统之间的通讯在其发病机制中具有重要贡献。化疗药物可诱导细胞应激和轴突损伤,导致损伤相关分子模式(DAMPs)的释放,从而激活巨噬细胞和胶质细胞上的Toll样受体4(TLR4)信号通路。该激活促进巨噬细胞向M1型极化,并分泌CCL2和CXCL10等趋化因子,进而招募CD4+ 和 CD8+ T淋巴细胞和B细胞进入背根神经节(DRG),同时减少抗炎性T细胞的数量48,49,50,51尽管中性粒细胞对化疗的细胞毒性作用高度敏感,常导致全身性中性粒细胞减少,但多项研究报道,在化疗诱导的神经病变期间,外周神经系统和背根神经节(DRG)中的中性粒细胞活化和浸润程度有所增加32肥大细胞(MCs)通过募集免疫细胞并释放多种炎症性细胞因子,进一步调控促炎反应。此外,促炎性细胞因子可抑制自然杀伤(NK)细胞的活性,加剧神经炎症和氧化应激,从而促进化疗诱导的周围神经病变(CIPN)的进展52.
化疗药物还可改变感觉神经元中与免疫和神经功能相关基因的表达。例如,长春新碱(VCR)可上调激活转录因子3(Atf3)和神经降压素(Nts)的表达,从而调节趋化因子的释放,促进免疫细胞向背根神经节(DRG)募集,进而影响神经炎症反应。奥沙利铂(OXA)可调节前列腺素H2 D-异构酶(Ptgds)和小核仁RNA宿主基因1(Snhg1),这些分子参与炎症介质的合成以及神经元可塑性的调控,从而影响神经元兴奋性和疼痛信号的传递。相比之下,顺铂(CDDP)改变脂质运载蛋白-2(Lcn2)和锌指同源框2(Zfhx2)的表达,破坏神经元代谢稳态和转录调控,进而促进神经炎症和神经元功能障碍53这些基因表达谱在化疗应激下的共同失调揭示了CIPN发病过程中神经损伤与免疫激活之间的复杂相互作用。
此外,TRPA1不仅表达于感觉神经元中,还表达于巨噬细胞和肥大细胞等免疫细胞中,在这些细胞中可介导促炎性细胞因子的释放。TRPA1在神经元和免疫细胞中的双重表达可能作为关键的分子纽带,驱动神经-免疫相互作用以及CIPN相关的炎症反应。 - 神经炎症的加剧
化疗药物可调节背根神经节中卫星胶质细胞(SGCs)、脊髓中小胶质细胞和星形胶质细胞以及轴突中施万细胞的活化状态及免疫介质的分泌54免疫细胞活化会增加促炎性细胞因子的水平,如肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-20(IL-20),这些因子可促进神经炎症和神经元敏化;相反,抗炎性细胞因子如白细胞介素-10(IL-10)和白细胞介素-4(IL-4)的表达受到抑制,从而损害炎症的消退。与此同时,趋化因子如CCL2、CXCL1、CXCL12、CX3CL1和CCL3参与免疫细胞的募集以及胶质细胞与神经元之间的相互作用。这些变化共同激活了关键的炎症信号通路,如MAPK通路和活化B细胞核因子κB(NF-κB)通路,进一步增强细胞因子的产生和神经元的过度兴奋性。54,55,56,57,58,59. 图2 阐述免疫系统失调诱导化疗诱导的周围神经病变(CIPN)的机制。
重要的是,近期研究表明,TRPA1作为这些炎症级联反应的关键下游效应分子和放大器发挥作用。促炎性细胞因子和氧化介质可致敏或直接激活感觉神经元上的TRPA1通道,从而将神经炎症与CIPN中神经元兴奋性升高及疼痛过敏联系起来60,61.
- 神经免疫相互作用
- 离子通道失调
- 钾离子通道
化疗药物可诱导神经炎症反应,导致Kir4.1通道异常表达,进而促进卫星胶质细胞(SGCs)活化、胶质纤维酸性蛋白(GFAP)上调以及促炎性细胞因子(如TNF-α和IL-6)的释放。这会加剧背根神经节(DRG)神经元的兴奋性,并诱发化疗诱导的周围神经病变(CIPN)。33. - TRP通道
TRP通道参与CIPN相关的炎症反应和神经性疼痛,并可被化疗诱导的氧化应激所激活。其中,TRPA1通道主要定位于感觉神经元,通过释放降钙素基因相关肽(CGRP)和P物质(SP)等神经肽介导神经源性炎症,促进免疫细胞向损伤部位募集。同时,TRPA1也在胶质细胞和免疫细胞中表达,其激活可刺激促炎性细胞因子和趋化因子的释放,进一步增强免疫细胞募集并放大炎症反应。综上所述,TRPA1在神经系统与免疫系统之间起到关键桥梁作用,参与CIPN中炎症加剧和神经元高敏状态的形成。因此,TRPA1拮抗可能通过双重神经-免疫调节作用缓解疼痛,包括抑制CGRP和SP的释放、减轻神经源性炎症和免疫细胞募集,以及降低促炎性细胞因子水平。62.
Singh 等人报道,OXA 处理增加了大鼠背根神经节(DRGs)中瞬时受体电位香草素 1(TRPV1)和瞬时受体电位 M8(TRPM8)与 TRPA1 的共表达,导致神经病理性疼痛行为增强。值得注意的是,TRPA1 与 TRPV1 在化疗诱导的疼痛信号传导中存在功能上的交互作用;然而,目前的临床应用主要集中在 TRPV1 激动剂辣椒素,后者通过使表达 TRPV1 的伤害性感受器脱敏来缓解神经病理性疼痛34这为未来针对TRPA1的镇痛策略开发提供了重要启示。综上所述,TRPA1在氧化应激、免疫激活和疼痛信号传导中发挥关键的整合作用,使其成为治疗化疗诱导的周围神经病变(CIPN)中镇痛和抗炎疗法的有前景靶点。
- 钾离子通道
- 背根神经节神经元损伤
- 直接神经元损伤
背根神经节(DRG)是化疗诱导的周围神经病变(CIPN)的主要受累部位,但不同化疗药物导致神经元损伤的机制存在差异。 图3 描绘了不同药物诱导背根神经节(DRG)神经元损伤所涉及的 distinct 通路。例如,紫杉醇(PTX)可促进巨噬细胞浸润至 DRG,进而减少表皮内神经纤维(IENFs)的数量,并加速化疗诱导的周围神经病变(CIPN)的进展35铂类药物在背根神经节神经元中蓄积,导致线粒体功能障碍、活性氧过度生成以及神经元凋亡。沙利度胺可直接诱导背根神经节神经元损伤。此外,多种化疗药物可改变钠、钾和钙离子通道的表达与功能,从而引起神经元过度兴奋。36,37破坏背根神经节(DRG)中的微管结构会进一步损害轴突运输,并引发华勒变性,最终导致神经纤维丢失和神经传导功能受损38. - 间接免疫介导损伤
除了直接的神经元毒性外,化疗药物还可通过激活固有免疫信号通路间接损伤背根神经节(DRG)神经元。这些药物引起的细胞损伤会释放损伤相关分子模式分子(DAMPs),进而激活模式识别受体(PRRs),如 TLR4 和晚期糖基化终末产物受体(RAGE)。这些受体的激活可诱发神经炎症级联反应,增强神经元兴奋性,并加重神经病理性疼痛。39综上所述,这些发现表明化疗药物通过直接的细胞毒性机制和间接的免疫介导途径引起背根神经节损伤,从而促进化疗诱导的周围神经病变(CIPN)的发生和发展。
- 直接神经元损伤
- 神经元细胞骨架的破坏
先前的研究表明,微管去聚合会直接削弱神经元的结构完整性,并损害其轴突延伸能力。细胞骨架的解聚会导致神经元表面出现不规则性,而这些力学改变可作为化疗诱导周围神经病变(CIPN)的物理标志。40另一项由Chine等人开展的研究首次证明,Hsp27可通过保护轴突结构来预防化疗诱导的周围神经病变(CIPN)。与传统的抗炎机制不同,Hsp27通过调控凋亡通路和维持细胞骨架稳定性发挥神经保护作用。46.
长春碱类药物(如长春新碱,VCR)特异性结合β-微管蛋白末端,抑制纺锤体形成和轴突运输,导致微管解聚以及神经突生长缺陷40相比之下,紫杉醇可稳定微管并阻止其去聚合,从而干扰轴突内的电信号传导和线粒体运输,导致周围神经纤维脱髓鞘。41硼替佐米通过非蛋白酶体途径诱导微管过度聚合,抑制神经突延伸,并引发轴突变性42.
这些药物共同导致轴突运输障碍、神经元凋亡以及神经传导功能丧失,构成了化疗诱导周围神经病变(CIPN)的核心病理基础。此外,RhoA/ROCK/LIMK/cofilin 信号通路的激活会抑制肌动蛋白丝的重塑,进一步阻碍轴突再生。63细胞骨架破坏还会与线粒体运输缺陷和钙蛋白酶激活相互作用,形成恶性循环 "结构-能量-凋亡" 加速CIPN进展的周期64.
2. 与TRPA1相关的CIPN机制
TRPA1 是一种非选择性阳离子通道,通常以同源四聚体的形式存在于细胞膜中。它包含六个跨膜区段(S1-S6),这是 TRP 通道的典型特征。其中,S1-S4 构成类似电压感受器的结构域(VSLD),而 S5 和 S6 则形成离子通过的孔道。这些区域对于通道的激活及其在感知疼痛、温度和化学刺激中的作用至关重要65。TRPA1 的长N端区域含有多个锚蛋白重复结构域(ARDs),可介导与其他蛋白质的相互作用,并参与通道的调控。该区域也是参与疼痛信号传导的激酶进行调节的关键位点66,67。在C端,TRP样结构域与跨膜区相连,在通道门控中发挥核心作用。该结构域的移动,以及 S5 和 S6 的构象重排,共同介导通道的开放和 Ca2+ 内流,从而激活与炎症和疼痛相关的下游信号通路68,69。总体而言,ARDs、跨膜螺旋(S1-S6)以及 TRP样结构域是决定 TRPA1 激活及其在疼痛和炎症信号传导中功能的主要结构特征。图4展示了与化疗药物激活 TRPA1 相关的关键结构域,而表2则总结了与 TRPA1 相关的化疗诱导周围神经病变(CIPN)的作用机制61,62,70,71,72,73,74,75,76,77,78,79,80,81,82,83。
- 氧化应激介导的CIPN中TRPA1的激活
- 氧化应激是化疗药物抗肿瘤疗效和神经毒性的主要因素84TRPA1 是一种氧化还原和亲电物质敏感的离子通道,在化疗期间氧化应激水平升高时被激活。氧化型磷脂(OxPAPCs)及其他活性氧(ROS)衍生的亲电物质共价修饰 TRPA1 N 末端结构域中的半胱氨酸残基,从而激活该通道并促进钙离子内流。这种激活导致神经肽和炎症介质(如 CGRP 和 SP)的释放,介导 CIPN 发病机制中的异常痛觉传递和神经源性炎症。61,70与此同时,化疗药物引发的外周炎症会导致感觉神经节中活性氧(ROS)的过度生成与积聚,进而激活并上调TRPA1的表达,形成ROS-TRPA1正反馈环路,加剧炎症性和机械性过敏反应85.
顺铂诱导的化疗诱导性周围神经病变(CIPN)也依赖于这一机制,因为顺铂可促进口腔组织中活性氧(ROS)的产生,从而激活TRPA1,导致持续性口面部疼痛86同样,奥沙利铂通过多种机制调节TRPA1活性。一方面,奥沙利铂直接激活TRPA1 通过 一种谷胱甘肽敏感的机制,导致背根神经节神经元胞质酸化71,87另一方面,OXA可抑制脯氨酰羟化酶(PHD),从而阻止TRPA1氨基末端区域脯氨酸残基的羟基化,增强该通道对活性氧(ROS)的敏感性,并显著提高其对冷刺激的反应性。71此外,OXA 激活 p38 MAPK 信号通路,进一步促进 TRPA1 介导的冷过敏反应88.
动物研究为这些机制提供了有力证据。在奥沙利铂处理的野生型小鼠中,观察到明显的机械性异常性疼痛和冷超敏反应,而在TRPA1基因敲除小鼠中,这些反应显著减弱。89在CIPN的斑马鱼幼体模型中也获得了类似发现,其中TRPA1的激活通过促进氧化应激和疼痛信号转导,增强了活性氧(ROS)的产生,从而维持了疼痛反应。90综上所述,这些研究结果表明,TRPA1 作为连接活性氧感知与疼痛放大的关键节点,构成了氧化应激介导 CIPN 神经病理性疼痛的核心通路。
- 氧化应激是化疗药物抗肿瘤疗效和神经毒性的主要因素84TRPA1 是一种氧化还原和亲电物质敏感的离子通道,在化疗期间氧化应激水平升高时被激活。氧化型磷脂(OxPAPCs)及其他活性氧(ROS)衍生的亲电物质共价修饰 TRPA1 N 末端结构域中的半胱氨酸残基,从而激活该通道并促进钙离子内流。这种激活导致神经肽和炎症介质(如 CGRP 和 SP)的释放,介导 CIPN 发病机制中的异常痛觉传递和神经源性炎症。61,70与此同时,化疗药物引发的外周炎症会导致感觉神经节中活性氧(ROS)的过度生成与积聚,进而激活并上调TRPA1的表达,形成ROS-TRPA1正反馈环路,加剧炎症性和机械性过敏反应85.
- TRPA1在免疫调节与炎症性疼痛中的作用
TRPA1 是一种氧化还原敏感的非选择性阳离子通道,在外周感觉神经系统及多种免疫细胞类型中均有表达。它可被化疗药物诱导的氧化应激、亚硝化应激和醛类应激,以及炎症介质和电化学刺激所激活,从而在化疗诱导的周围神经病变(CIPN)过程中的炎症反应和痛觉敏化中发挥关键作用。24,91,92.- TRPA1 调控免疫细胞介导的神经炎症
在外周神经系统中,TRPA1 在背根神经节(DRG)感觉神经元中的研究最为深入,其作为伤害性感受的关键介导分子发挥作用。在化疗过程中,活性氧(ROS)、活性氮(RNS)以及醛类代谢产物水平升高,这些物质主要来源于受损的神经元及邻近的施万细胞,可直接激活神经元上的 TRPA1,导致神经元兴奋性增强和痛觉过敏。93同时,在感觉神经元中,TLR4信号通路被证明可上调背根神经节(DRG)神经元中TRPA1的表达,从而增强疼痛过敏反应。94.
除了神经元外,施万细胞也表达TRPA1,该受体可被氧化应激激活。活化的施万细胞会放大活性氧信号并释放炎症介质,形成一个 "施万细胞-神经元-TRPA1" 维持神经炎症并促进化疗诱导的周围神经病变(CIPN)发展的反馈环路72,73动物研究表明,耗竭坐骨神经驻留的巨噬细胞可显著减轻由施万细胞TRPA1激活及氧化应激诱导的癌症相关性疼痛,凸显了施万细胞与髓系细胞之间的相互作用73.
除感觉神经元外,TRPA1还在多种免疫细胞群体中功能性表达,包括巨噬细胞、T细胞、NK细胞和肥大细胞24,74,95化疗过程中产生的活性氧(ROS)、活性氮(RNS)及代谢物可激活这些细胞中的TRPA1,进而引发依赖于细胞类型的多种免疫反应91在巨噬细胞中,TRPA1 抑制促炎性活化,促进抗炎表型,并限制巨噬细胞浸润,从而发挥抗炎和组织保护作用14,96在淋巴细胞中,TRPA1 的激活会抑制 T 细胞活化及其效应功能,负向调控 T 细胞介导的免疫应答97,而TRPA1介导的Ca2+ 内流可能增强自然杀伤细胞的细胞毒性,从而调节神经损伤后的神经炎症反应52,74在肥大细胞中,TRPA1 的激活与应激诱导的脱颗粒及促炎信号传导有关,有助于放大过敏性炎症和神经源性炎症24,75.
综上所述,这些观察结果表明,TRPA1 作为连接神经元、施万细胞和免疫细胞的信号枢纽,其在各类细胞中激活水平的升高均参与了化疗诱导的周围神经病变(CIPN)的启动与维持。 图5 描绘了TRPA1介导的神经-免疫相互作用及CIPN中疼痛信号传导的假定机制。 - TRPA1在炎症性疼痛及化疗诱导的周围神经病变相关伤害性感受中的作用
在感觉神经系统中,TRPA1 主要定位于背根神经节(DRG)、三叉神经节(TG)和迷走神经节(VG)的初级感觉神经元中。化疗药物诱导的氧化应激产物、炎症介质以及蛋白激酶信号通路(PKA/PKC)可增强 TRPA1 的磷酸化及其通道活性26通道激活增加细胞内Ca2+ 内流,触发P物质(SP)、神经激肽A(NK-A)和降钙素基因相关肽(CGRP)等神经肽的释放,促进血管扩张、血浆外渗和免疫细胞募集,从而引发神经源性炎症和痛觉过敏62.
在炎症条件下,促炎性细胞因子(IL-1家族、TNF-α、IL-6、IL-8)和趋化因子(CXCL5/CXCR2)水平升高,进一步增强活性氧(ROS)的产生和TRPA1的激活,导致背根神经节(DRG)神经元膜去极化及兴奋性增高,最终促成神经病理性疼痛的发生。此外,炎症介质如NGF可上调TRPA1的表达,形成正反馈环路,持续维持炎症反应和疼痛状态14,98,99,100TRPA1 还参与外周和中枢敏化,从而增强疼痛信号的传递101.
此外,TRPA1 通过调控与炎症相关的通路促进伤害性信号传导。上调的 TRPA1 增加 Ca2+ 内流并激活泛连接蛋白-1(PANX1)通路,促进三磷酸腺苷(ATP)的释放。细胞外ATP作为神经递质,进一步加剧痛觉过敏102化疗药物也可使TRPA1致敏 通过 肥大细胞中缓激肽B2受体及其下游PLC/PKCε信号通路的激活,加重与CIPN相关的疼痛103相反,阿片类化合物如洛哌丁胺已被证明可抑制TRPA1和电压门控钠通道(VGSC)活性,抑制小胶质细胞活化及氧化应激,从而缓解化疗诱导的周围神经病变(CIPN)中的痛觉过敏104,105.
总之,TRPA1 作为连接氧化应激与炎症信号通路的关键分子靶点,在化疗诱导的周围神经病变(CIPN)中发挥重要作用。通过协调免疫细胞与感觉神经元之间的双向相互作用,TRPA1 不仅启动并传播炎症反应,还放大疼痛信号,成为免疫调节、神经炎症与伤害性敏感化之间的重要桥梁。 - TRPA1介导的离子通道串扰与背根神经节神经元致敏
TRPA1 在受损的感觉神经元中高表达,尤其是在背根神经节(DRG)中,作为介导化疗诱导的周围神经病变(CIPN)的关键离子通道。它通过与多种离子通道相互作用,调节神经元兴奋性,并促进伤害性信号的传递。例如,TRPV1 的激活可增强 TRPA1 的敏感性,且这两个通道常共表达,协同参与冷异常性疼痛和机械性痛觉过敏的发生。76,106此外,TRPA1 与冷敏感通道 TRPM8 具有互补功能:TRPM8 介导 25–28 °C 范围内的无害性冷感,而 TRPA1 在低于 17 °C 时被激活,负责检测强烈且有害的冷刺激。这两种通道的异常激活已被认为与化疗诱导的周围神经病变(CIPN)患者中常见的冷过敏现象有关。77化疗诱导的氧化应激及增强的Ca2+ 通道活性可进一步激活TRPA1通道,导致依赖于电压门控Na⁺通道的频繁动作电位发放+ 通道(Nav1.7)78,79。此外,Zn2+ 可直接激活TRPA1以促进CGRP的释放80,而电压门控K+ 钾通道(Kv7)对该过程发挥负向调控作用81. 总体而言,TRPA1 与其他离子通道(包括 TRPV1、TRPM8、Ca2+,Na+,K+,和 Zn2+ 通道增强神经元兴奋性及CIPN中的伤害性信号传递。
此外,细胞内pH稳态可调节TRPA1的活性。Na+/+ 转运蛋白1(NHE1)通过调节细胞内pH值影响TRPA1的敏感性。在炎症或化疗诱导的损伤条件下,TRPA1与NHE1在背根神经节(DRG)神经元中相互作用。87,107,细胞内酸化增强TRPA1的反应性,导致动作电位频率增加以及谷氨酸和CGRP等神经递质释放增多82,83该过程可导致炎症性疼痛和冷过敏,并进一步维持神经炎症。相反,抑制背根神经节(DRG)神经元中TRPA1的表达或功能可显著减轻伤害性信号传递和神经炎症反应。108.
总之,TRPA1 作为连接氧化应激与离子通道信号传导的中枢分子枢纽,在化疗诱导的周围神经病变(CIPN)中发挥关键作用。通过与多种离子通道及细胞内调控机制的广泛交互,TRPA1 促进感觉神经元的过度兴奋及疼痛过敏,是治疗 CIPN 相关疼痛的关键分子靶点。 图6 描述了TRPA1通过与多种离子通道相互作用,调节神经元兴奋性并增强伤害性信号传导的机制。
- TRPA1 调控免疫细胞介导的神经炎症
3. 靶向 TRPA1 治疗 CIPN 的潜力
在上一节中,我们阐明了TRPA1通过触发神经炎症级联反应,成为缓解化疗诱导的周围神经病变(CIPN)的关键靶点。TRPA1的作用机制具有双重性:一方面,TRPA1直接受神经炎症级联反应的调控,并参与CIPN的病理过程;另一方面,TRPA1与炎症信号相互作用,进而介导神经毒性反应并加剧神经元损伤。因此,靶向抑制TRPA1可减轻氧化应激和神经炎症反应,减弱疼痛信号传导,最终改善与CIPN相关的症状。图7展示了通过特异性拮抗剂或天然草药成分抑制TRPA1,从而缓解CIPN相关神经病理性疼痛的假定机制。
- TRPA1拮抗剂
TRPA1 可被外源性物质(如芥子油和肉桂醛)及内源性物质(如氧化应激产物和炎症介质)激活62 引起疼痛、瘙痒和炎症109因此,TRPA1 被认为是一种具有广泛应用前景的治疗靶点,涵盖疼痛管理、炎症性疾病和神经系统疾病等领域。因此,研究和开发 TRPA1 拮抗剂至关重要。
多种TRPA1拮抗剂在缓解化疗诱导的周围神经病变(CIPN)方面已显示出潜在的治疗价值109,110,111,112,113,114,115,116,117其主要作用机制包括抑制TRPA1介导的氧化应激反应、钙离子内流及神经炎症信号传导,从而对TRPA1活性产生拮抗作用。在临床前研究中,选择性TRPA1阻断剂HC-030031显著缓解了奥沙利铂(OXA)和顺铂(CDDP)引起的机械性及冷痛觉过敏28与此同时,新一代拮抗剂如 GRC-17536 和 LY-3526318 已进入针对糖尿病性神经病变、慢性咳嗽及骨关节炎相关神经性疼痛的 II 期临床试验,显示出良好的耐受性和初步疗效109,113.
表3 总结了代表性TRPA1拮抗剂当前的研发进展及临床应用。这些研究提供了临床证据,支持TRPA1拮抗剂在神经病理性疼痛治疗中的转化潜力。然而,大多数TRPA1拮抗剂仍受限于较低的生物利用度和潜在的脱靶效应115,118,119,尚未进入针对CIPN的临床评估。未来的研究应着重优化化合物的选择性及药代动力学特性,并设计专门针对CIPN的临床试验,以验证在此背景下抑制TRPA1的治疗相关性。
除了直接拮抗作用外,通过其他分子靶点调节TRPA1活性在化疗诱导的周围神经病变(CIPN)中也显示出应用前景。Sigma-1受体对多种离子通道具有调控功能,研究表明Sigma-1受体拮抗剂可显著抑制TRPA1通道在质膜上的表达及其功能,从而阻止奥沙利铂(OXA)诱导的CIPN模型小鼠疼痛症状的进展89Trevisan 等人的一项研究表明,在化疗前或化疗同时使用 TRPA1 拮抗剂 HC-030031 或抗氧化剂 α-硫辛酸,可有效预防和缓解硼替佐米诱导的化疗诱导周围神经病变(CIPN)高敏症状。120此外,在化疗药物诱导的神经毒性背景下,TRPA1抑制剂可通过减少钙依赖性促炎信号传导来缓解神经损伤。
总之,TRPA1拮抗剂通过调节该通道的功能并抑制其活性等多种机制,在预防和治疗化疗诱导的周围神经病变(CIPN)中发挥重要作用,可减轻疼痛过敏并缓解神经损伤。 - TRPA1活性调节剂作为CIPN治疗的新选择
TRPA1 通过神经炎症级联反应和神经毒性损伤参与 CIPN 的病理过程,可能是治疗 CIPN 的新靶点。
多项研究表明,某些天然草药及其活性成分与调控TRPA1通道活性密切相关,具有抗炎、镇痛等生物学效应,从而为化疗诱导性周围神经病变(CIPN)的预防与治疗提供了潜在策略。例如,甘草苷已被证实具有显著的抗炎特性。121,而大蒜素因其抗氧化和抗炎特性表现出镇痛潜力122;这两种化合物均参与调控TRPA1通道活性。基于这些发现,推测这些天然化合物可能通过调节TRPA1活性,减轻化疗诱导的周围神经病变(CIPN)相关的疼痛感知和神经炎症反应,从而发挥潜在的治疗作用。进一步研究表明,薄荷醇对TRPA1通道具有双向调节作用:在低浓度时激活TRPA1,而在高浓度时则抑制其活性。因此,合理使用薄荷醇可能通过调节TRPA1活性,在CIPN患者中实现镇痛和抗炎效果。123同样,肉桂在传统医学中被用作温阳散寒、促进血液循环的疗法,其主要活性成分为肉桂醛。Li 等报道,肉桂醛可激活 TRPA1 受体,促进棕色脂肪组织中的产热作用,从而有助于维持体温并缓解畏寒症状124此外,肉桂醛通过激活核因子红系2相关因子2(Nrf2)增强抗氧化反应125薄荷醇在较高浓度下通过抑制TRPA1,可能缓解化疗诱导的周围神经病变(CIPN)特征性的机械性及冷异样痛;而肉桂醛则通过激活TRPA1及Nrf2介导的抗氧化机制,可能对抗化疗引起的氧化应激,并改善CIPN患者的冷不耐受。此外,岩白菜素一水合物、川芎嗪、柴胡皂苷以及羌活的水提取物已被证实可减轻神经病理性疼痛。126,127,128,129.
表4 总结了TRPA1配体的天然草药来源及其在缓解化疗诱导的周围神经病变(CIPN)中的可能作用机制。这些发现凸显了中药成分在减轻CIPN神经毒性方面的潜力。尽管已有多种天然化合物被鉴定为具有潜在治疗作用的TRPA1调节剂,但其中大多数仍处于 体外 以及动物研究阶段,其在CIPN中的疗效证据主要来自临床前模型。相比之下,只有薄荷醇具有有限的人体概念验证证据,并有正在进行的注册临床试验。130这些研究结果共同表明,尽管靶向TRPA1的天然产物在缓解CIPN相关神经毒性方面展现出巨大潜力,但仍需开展设计严谨的临床研究,以验证其转化潜力和治疗效果。
从植物提取物中鉴定出的天然TRPA1调节剂不仅为疼痛管理提供了新的治疗前景,也为化疗诱导的周围神经病变(CIPN)的治疗提供了潜在的天然来源。越来越多的证据表明,天然化合物可通过抑制TRPA1的过度激活或对该通道发挥双向调节作用,从而缓解化疗引起的神经毒性症状,实现镇痛和抗炎的双重效果。然而,尽管这些化合物在临床前研究中展现出良好潜力,系统性的临床验证仍显不足。此外,这些化合物通常具有多靶点、多通路的调节特性,使得难以明确TRPA1调节在其整体治疗效应中的具体贡献。未来的研究应聚焦于阐明天然TRPA1调节剂影响CIPN的分子机制,探索TRPA1与其他离子通道或信号通路之间的协同相互作用,并开展设计严谨的临床试验以验证其有效性和安全性。这些努力对于将靶向TRPA1的天然药物转化为CIPN管理的实用策略至关重要。
4. 讨论
根据国际癌症研究机构(IARC)的最新统计数据,2022年全球将有近2000万例新增癌症病例,其中约50%的癌症患者最终将死于癌症或其并发症。IARC的预测还表明,到2050年,每年新增癌症病例数将超过3500万例。因此,癌症是全球重大的公共卫生问题之一,也是全球疾病负担的主要因素之一1。尽管针对癌症的新疗法(如靶向治疗和免疫治疗)正在不断研究和开发中,化疗在癌症治疗中仍处于核心地位。化疗引起的周围神经病变(CIPN)是化疗常见的副作用,会影响治疗进程及其疗效。然而,CIPN的发病机制尚不明确,可能与线粒体功能障碍、氧化应激、免疫系统异常、离子通道失调以及背根神经节(DRG)神经元损伤有关2。目前,美国临床肿瘤学会(ASCO)仅推荐度洛西汀用于CIPN患者的疼痛管理。尽管度洛西汀已显示出一定的镇痛效果,但其整体临床获益有限,主要在于缓解症状,而无法预防CIPN或逆转其潜在的病理改变8。因此,探索CIPN的潜在治疗靶点对于药物研发和精准治疗具有重要意义。
瞬时受体电位(TRP)通道是伤害性信号传导的关键介质,近年来在化疗诱导的周围神经病变(CIPN)治疗研究中受到越来越多的关注。在众多TRP通道中,TRPA1被认为是由多种化疗药物诱导疼痛过敏反应的关键因素131。因此,本研究聚焦于TRPA1在CIPN发病机制中的作用,并进一步阐明其介导神经病理性疼痛的机制,如图8所示。该通道可被氧化应激激活,从而引发异常的机械性疼痛和冷过敏61,70,71,并通过调节免疫细胞介导神经炎症,参与炎症性痛觉感知62,72,73,74,75。此外,TRPA1通道与TRPV1、TRPM8以及电压门控通道(如Ca2+、Nav1.7、Zn2+和Kv7)相互作用,这些相互作用可放大神经病理性疼痛和炎症性疼痛反应76,77,78,79,80,81。这种协同调节具有重要的临床意义。由于TRPA1、TRPV1和TRPM8在感觉神经元中共同表达,并能相互调节彼此的活性,因此双靶点或多靶点抑制剂所产生的镇痛效果优于仅靶向TRPA1的单一抑制剂。此外,这种协同作用使得各化合物在较低剂量下即可达到相当的镇痛效果,从而降低潜在的不良反应。同样地,背根神经节(DRG)作为CIPN神经毒性的靶点,也受到TRPA1的影响。TRPA1的激活增强了DRG神经元的兴奋性,进而促进DRG中神经递质的释放,导致对伤害性症状的敏感性增加82,83。综上所述,TRPA1可通过诱导神经炎症级联反应,加重CIPN患者的神经病理性疼痛。因此,拮抗TRPA1可有效缓解CIPN的炎症和疼痛症状,这也提示TRPA1拮抗剂及天然草药的应用至关重要。
TRPA1拮抗剂在动物模型中已有效证明其疗效。例如,在TRPA1基因敲除小鼠中,或使用TRPA1拮抗剂(如HC-030031)时,化疗药物诱导的神经病理性疼痛症状显著减轻86,89。然而,TRPA1拮抗剂的应用仍存在局限性,因为目前尚未开展针对化疗诱导周围神经病变(CIPN)患者的临床试验,这表明TRPA1拮抗剂在人体中的安全性和有效性仍需进一步评估和验证。例如,啮齿类动物与人类之间在TRPA1表达模式及对拮抗剂的敏感性方面可能存在差异,从而导致临床前与临床结果之间的不一致。此外,实验动物剂量向人体剂量的换算仍不确定,进一步增加了药物开发的复杂性。
此外,TRPA1 作为化疗诱导的周围神经病变(CIPN)治疗靶点的具体作用机制尚未完全阐明,其在不同组织中的特异性功能仍需进一步研究。鉴于 TRPA1 在感觉神经元、施万细胞和免疫细胞中广泛表达,明确其在不同细胞环境中的特定功能仍具挑战性。目前大多数研究依赖于全身性 TRPA1 拮抗剂,因此难以将观察到的效应精确归因于特定的细胞区室。需要强调的是,感觉神经元中表达的 TRPA1 直接介导伤害性信号传导,而施万细胞和免疫细胞中的 TRPA1 主要调控炎症及微环境过程,从而间接调节疼痛敏感性。因此,组织特异性敲除 TRPA1 将提供重要的机制性见解。神经元特异性缺失 TRPA1 可阐明其在伤害感受器兴奋性和疼痛传递中的直接作用,而施万细胞特异性缺失则有助于揭示 TRPA1 驱动的氧化应激及胶质-神经元相互作用如何促进持续性神经炎症。尤为重要的是,免疫细胞特异性 TRPA1 敲除模型(例如在巨噬细胞或 T 细胞中)将有助于明确免疫细胞中 TRPA1 信号在神经-免疫串扰及 CIPN 炎症调控中的贡献。这些研究策略将显著加深我们对 TRPA1 在组织和细胞水平特异性功能的理解,并推动更精准治疗策略的开发。同时,TRPA1 拮抗在 CIPN 治疗中的多个方面仍有待进一步探索。例如,TRPA1 在不同化疗药物诱导的 CIPN 中是否具有差异性功能作用,以及如何更精确地调控其活性以实现最佳治疗效果,仍是尚未解决的重要问题。
在此背景下,联合使用TRPA1拮抗剂与天然草药成分或中药方剂代表了一种有前景的治疗策略。这种联合疗法不仅可能降低药物相关毒性,还可通过多靶点协同作用增强疗效。总体而言,阻断TRPA1可调节免疫反应并中断神经炎症级联过程,从而有效减轻化疗引起的神经毒性及神经元损伤,为化疗诱导的周围神经病变(CIPN)的临床管理提供了新的思路和潜在策略。
结论
本文全面探讨了TRPA1与化疗诱导的周围神经病变(CIPN)之间复杂的相互关系,以及TRPA1拮抗在治疗中潜在的抗炎作用。临床前研究表明,通过药物抑制或基因敲除TRPA1可抑制神经炎症、降低神经元兴奋性并减轻神经毒性,从而产生抗炎和镇痛效应,可能有助于缓解CIPN的症状。然而,当前研究仍存在一些局限性。未来的研究应进一步探索TRPA1参与CIPN的具体分子机制,优化靶向策略,并开展大规模临床试验以验证TRPA1拮抗剂的安全性和有效性,从而为CIPN患者提供更精准、更有效的治疗选择。
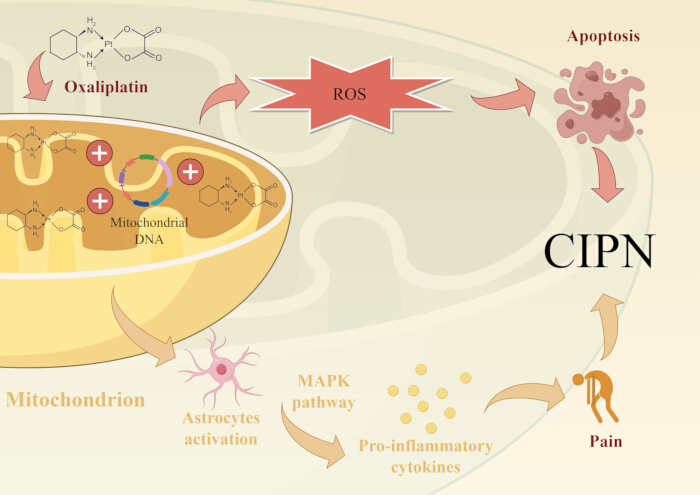
图1:线粒体功能障碍与氧化应激诱导的化疗诱导周围神经病变机制。 基于铂类的化疗药物会形成铂-DNA加合物,这些加合物在背根神经节(DRG)中积累,并与核DNA(nDNA)和线粒体DNA(mtDNA)结合。这会导致DNA/线粒体损伤,增加活性氧(ROS)的产生,并诱导神经元凋亡。此外,有证据表明奥沙利铂(OXA)通过激活星形胶质细胞并上调MAPK通路中的促炎性细胞因子来诱导神经病理性疼痛。 请点击此处查看该图的放大版本。
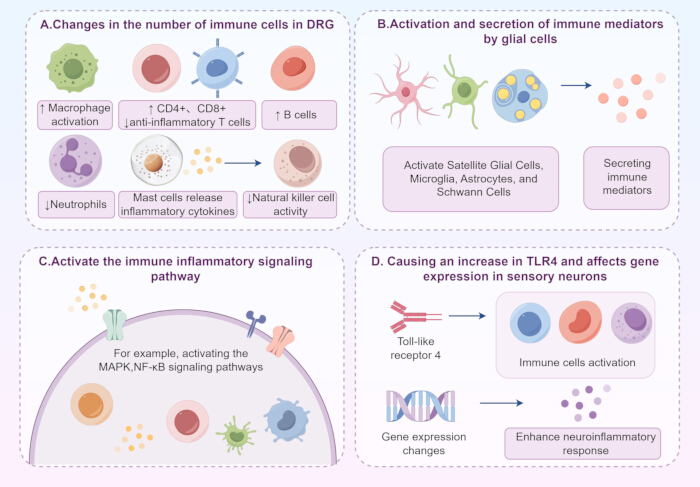
图2免疫系统异常诱导化疗诱导的周围神经病变的机制 (A) 化疗药物可导致巨噬细胞活化,T淋巴细胞(CD4+),细胞毒性T细胞(CD8+),以及背根神经节(DRG)中的B细胞,同时抗炎性T细胞和中性粒细胞数量减少。肥大细胞(MCs)通过募集免疫细胞并在化疗诱导的周围神经病变(CIPN)中释放多种炎症性细胞因子,导致自然杀伤细胞(NK细胞)活性降低,从而加剧神经炎症和氧化应激,促进CIPN的进展。B) 化疗药物可调节免疫细胞的活化及免疫介质的分泌 通过 背根神经节中的卫星胶质细胞(SGCs)、脊髓中的小胶质细胞和星形胶质细胞,以及轴突中的施万细胞,导致CIPN中感觉神经元兴奋性增加以及疼痛过敏加剧。C) MAPK和NF-κB等免疫-炎症信号通路的激活在加剧神经炎症反应中也发挥着重要作用。D化疗药物还可通过激活 TLR4 并触发相关基因的失调,从而激活免疫细胞并增强神经炎症反应。 请点击此处以查看此图的放大版本。
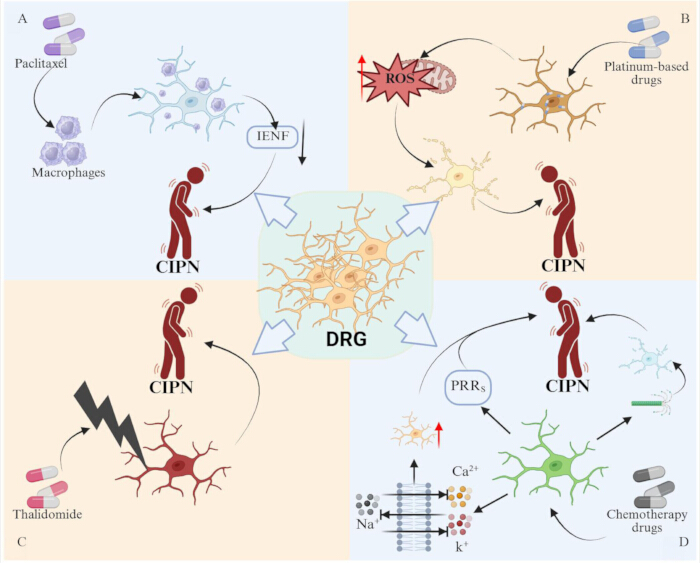
图3:背根神经节(DRG)是化疗药物引发CIPN的主要靶点。(A)紫杉醇(PTX)可导致巨噬细胞浸润至DRG,进而引起表皮内神经纤维(IENF)数量减少。(B)铂类药物在DRG中蓄积,导致线粒体功能障碍和活性氧(ROS)水平升高,从而促进神经元凋亡。(C)沙利度胺可直接损伤DRG。(D)化疗药物还可通过改变钠、钾和钙离子通道,破坏微管结构以及激活模式识别受体(PRRs),对DRG神经元造成损伤。请点击此处查看该图的高清版本。
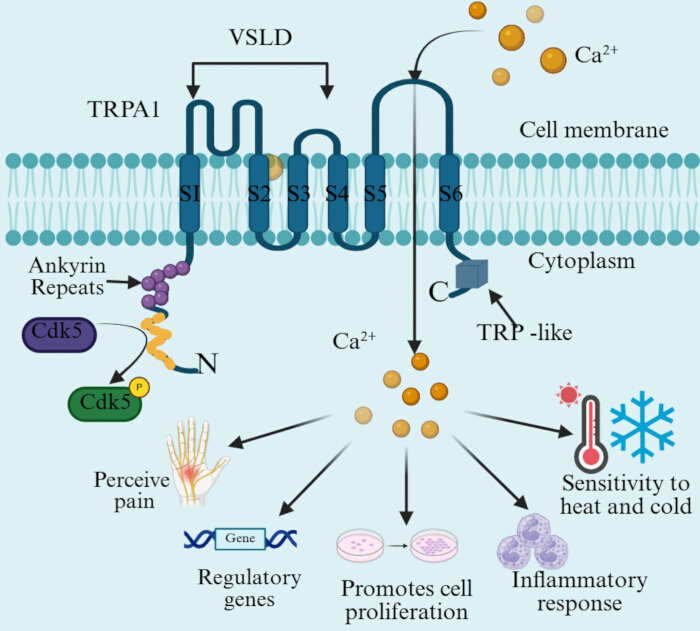
图4:TRPA1被化疗药物激活所涉及的关键结构域。 TRPA1通道包含六个跨膜α螺旋片段(S1-S6)。其中,S1-S4构成电压感应样结构域(VSLD),S5和S6则形成一个凹陷的孔环结构。TRPA1通道的NH2端和COOH端均位于细胞质内。较长的NH2末端包含锚蛋白重复结构域(ARDs)和Cdk5位点,而TRPA1的C末端包含一个TRP样结构域,并与跨膜结构域相连。通道激活可引起Ca2+内流,进而触发一系列细胞信号通路,例如调控基因表达、促进细胞增殖以及诱导炎症反应的通路。TRPA1的结构决定了其在感知疼痛以及热/冷敏感性中的功能。请点击此处查看该图的放大版本。
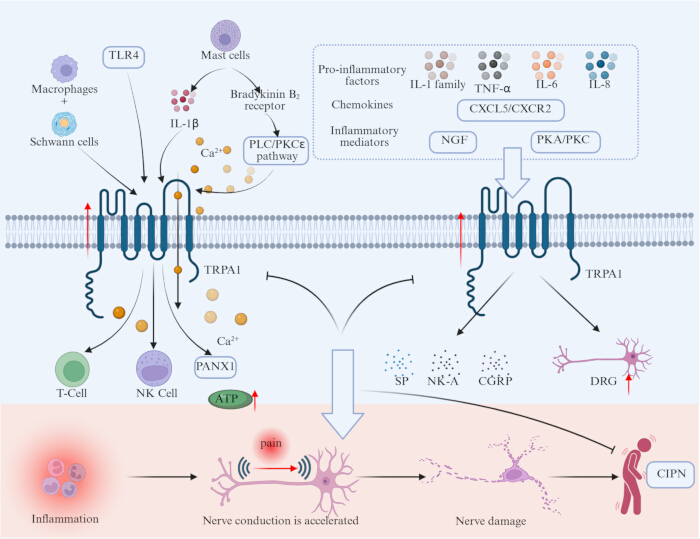
图5:TRPA1调控免疫细胞介导的神经炎症性痛觉传导。 免疫细胞(巨噬细胞、施万细胞和肥大细胞)、促炎因子(IL-1家族、TNF-α、IL-6、IL-8)、趋化因子(CXCL5/CXCR2)、炎症介质(NGF、PKA/PKC)以及TLR4均可激活TRPA1通道。TRPA1通道的激活可增加细胞内Ca2+浓度,促进P物质(SP)、神经激肽A(NK-A)和降钙素基因相关肽(CGRP)的释放,影响免疫细胞(T细胞、NK细胞),并调节与炎症相关的通路(PANX1通路),从而增强背根神经节(DRG)神经元的兴奋性,维持神经炎症和持续性疼痛。 请点击此处查看该图的高清版本。
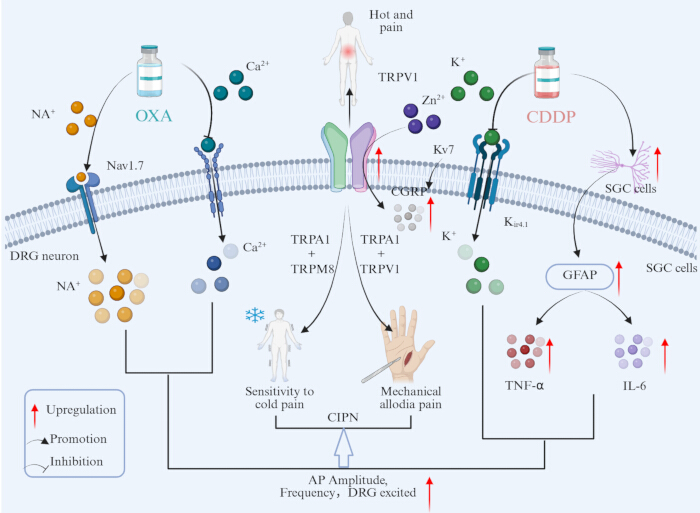
图6:TRPA1通过调节离子通道加速疼痛信号传导。 TRPA1和TRPM8参与冷过敏反应,而TRPA1和TRPV1参与机械性异常性疼痛。此外,TRPA1通道与电压门控Ca2+、Nav1.7、Zn2+、Kv 7以及Kir4.1通道共同作用,促进炎症介质(如CGRP、GFAP)和促炎因子(如TNF-α、IL-6)的释放,引发背根神经节(DRG)神经元的过度兴奋,从而协同加剧神经病理性疼痛和炎症性疼痛。 请点击此处查看该图的放大版本。
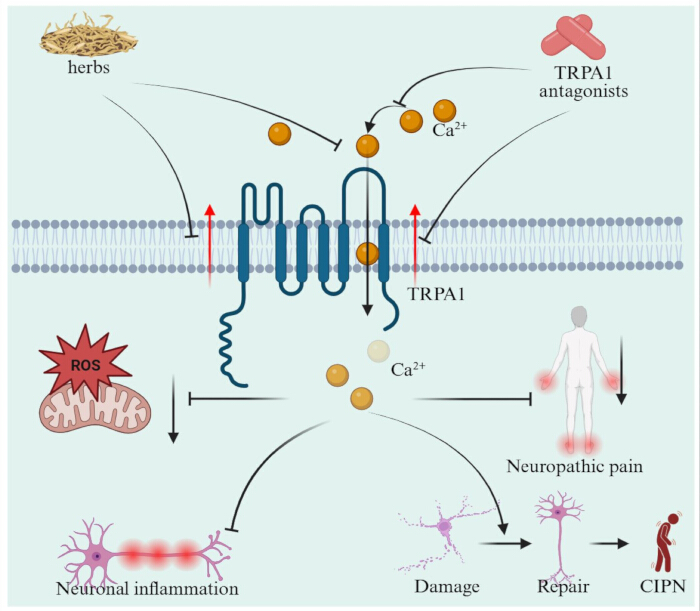
图7:靶向TRPA1治疗化疗诱导的周围神经病变(CIPN)的潜力。 使用TRPA1拮抗剂和天然草药可抑制TRPA1通道活性,从而减少Ca2+ 内流和氧化应激,进而抑制神经炎症反应,减轻神经病理性疼痛,最终减少神经损伤并改善CIPN相关症状。 请点击此处查看该图的放大版本。
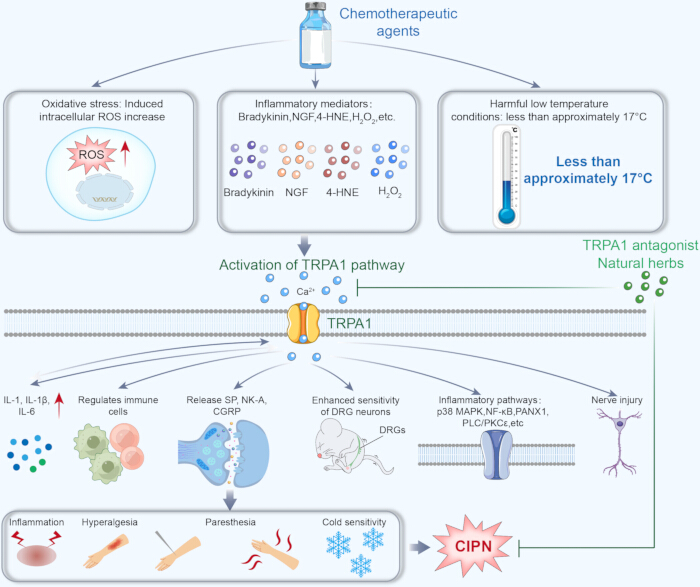
图8:抑制TRPA1——CIPN的一种治疗策略。TRPA1的激活在CIPN中引发炎症和感觉过敏;通过拮抗剂或草药抑制TRPA1可能减轻神经源性炎症、伤害性感觉致敏以及CIPN症状。请点击此处查看本图的高清版本。
表1:CIPN的潜在机制。化疗药物通过多种病理途径导致CIPN,包括线粒体功能障碍和氧化应激、免疫系统异常、离子通道失调、背根神经节(DRG)神经元损伤以及神经元细胞骨架的破坏。这些机制共同引发神经炎症、神经毒性和神经病理性疼痛。请点击此处下载该表格。
表2:与TRPA1相关的化疗诱导周围神经病变(CIPN)机制。TRPA1通过多种病理过程参与CIPN的发生,包括氧化应激诱导的激活、免疫调节与炎症反应、离子通道相互作用以及背根神经节(DRG)神经元损伤。这些机制共同增强神经元兴奋性,促进神经病理性疼痛和感觉过敏的发生。请点击此处下载该表格。
表3:代表性TRPA1拮抗剂的当前研发状态与临床适应症。本表格总结了在临床前和临床研究中被广泛研究的主要TRPA1拮抗剂,包括其作用机制、治疗适应症以及药物研发阶段。这些药物通过抑制TRPA1通道活性,从而减轻与化疗诱导的周围神经病变(CIPN)及其他病理状态相关的氧化应激、炎症反应和神经病理性疼痛。请点击此处下载该表格。
表4:TRPA1配体的天然草本来源及其在缓解化疗诱导的周围神经病变(CIPN)中的潜在作用机制。本表总结了可调节TRPA1活性的代表性天然化合物及草本提取物,包括其来源、化学类型、实验条件和分子靶点。这些天然物质通过调控TRPA1及相关信号通路,发挥神经保护和抗炎作用,从而缓解与CIPN相关的氧化应激、神经炎症和神经元过度兴奋。 请点击此处下载该表格。
披露
不存在需要披露的财务利益冲突。
致谢
作者谨向李明珠课题组全体成员致以诚挚感谢,感谢他们的支持与帮助。本研究得到国家自然科学基金(82104838)、中国科技产业化促进会“星火计划”(XH-D001)以及辽宁省重点研发计划项目(2024JH2/102500062)的资助,特此致谢。图1 和 图2 使用 FigDraw 软件绘制。
参考文献
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).