我们介绍一种利用新诊断和复发性肿瘤患者来源的磁性胶质瘤球体构建的三维胶质母细胞瘤迁移模型。该平台可实现对患者特异性迁移动态的可视化,并可用于评估治疗效果。在迁移完成后,该检测方法还可进行多重分析,以评估蛋白质的定位和表达模式。
本文内容
摘要
摘要
我们描述了一种可重复的三维迁移实验方法,用于在临床相关的缺氧条件下,模拟新诊断和复发性肿瘤患者来源的胶质母细胞瘤胶质瘤球体的迁移和侵袭潜能。将大小均一的胶质瘤球体转移至一层薄的细胞外基质上,并与磁性氧化铁纳米颗粒共培养,通过将其置于磁性板架上,可实现球体在培养孔中的集中定位。在接种过程中引入磁性氧化铁纳米颗粒,可通过温和的磁力实现对单个患者来源胶质瘤球体的精确定位成像,并通过减少位置变异优化自动图像处理流程。该实验方法支持在生理相关微环境中对胶质母细胞瘤迁移行为进行深入研究,并可直接比较新诊断与复发性患者来源胶质瘤球体之间的侵袭潜能和迁移行为。该方法适用于活细胞成像和多重分析,为胶质母细胞瘤迁移、侵袭潜能及治疗反应的临床前研究提供了一个可扩展的实验平台。
引言
胶质母细胞瘤仍然是神经肿瘤学领域最具挑战性的问题之一。该疾病的发生由显著的患者间和患者内异质性、对标准治疗方案的强烈逃逸反应、抗凋亡诱导的耐药性,以及对环境变化的高度可塑性所驱动1。近年来,肿瘤微环境(TME)的复杂性受到广泛关注,尤其是胶质瘤干细胞样细胞(GSCs)的动态特性,其可随微环境变化而转换表型和细胞状态2,3。这种表型可塑性促进了肿瘤进展,并导致即使接受积极的标准一线治疗后仍不可避免地复发。手术切除目前仍是改善患者预后的最有效干预手段,然而由于胶质母细胞瘤具有高度浸润性和微观侵袭性,完全切除肿瘤组织无法实现4。在不同疾病阶段及特定肿瘤条件下,对患者样本的侵袭动态进行建模,将有助于深入理解胶质母细胞瘤迁移过程中的动态性和可塑性能力,从而帮助识别有效的新型治疗方法5。因此,建立能够反映患者特异性侵袭和迁移动态的生理相关模型,对于加强临床前研究并推进上述目标至关重要。此外,此类模型对于评估新型抗肿瘤疗法的疗效也极为关键,理论上这些疗法可与手术联合使用,以防止残留的微观侵袭,最终降低复发风险。胶质母细胞瘤的复杂性表明,有必要开发先进的复杂临床前模型,以重现关键的肿瘤结构特征。近年来,源自患者的三维模型因其能够保留细胞间的相互作用、维持营养物质、氧气和治疗药物的梯度分布,并复制原发肿瘤的结构完整性而受到越来越多的关注6,7。然而,对这些三维模型的可视化仍面临技术挑战,包括类球体定位、成像变异性和实验可重复性等问题。
本文介绍了一种在低氧条件下进行的患者特异性三维胶质母细胞瘤迁移模型,可用于研究来源于不同患者肿瘤亚型及疾病阶段(包括未经治疗和复发性肿瘤样本)的迁移动力学。该平台能够评估不同治疗药物的差异性反应,并通过图像分割支持迁移后的多重分析,从而对迁移动力学、类球体生长和蛋白表达进行定量评估。通过引入磁性氧化铁纳米颗粒,可在每个孔中施加温和的磁力,使类球体始终保持居中位置8。在标准多孔板中培养的类球体常倾向于向孔边缘漂移,这种现象被认为受到液面弯月面形成及周边蒸发的影响,尤其在位于板边缘的孔中更为明显9,10,11。这些现象会引入成像伪影和背景噪声,特别是在透射光显微镜下,可能干扰对侵袭动态的延时成像。与二维单层培养不同——后者可选择细胞密度均一的区域进行成像——单个类球体侵袭实验要求在整个成像视野中对整个类球体及其迁移区域实现精确且一致的定位。这带来了额外挑战,因为类球体在孔内的漂移或位置不规则可能影响数据质量和实验可重复性。因此,将类球体在多孔板中始终保持居中,有助于减轻上述问题,不仅提升成像质量,也增强实验的一致性、图像处理流程及迁移后分析的可靠性。此外,在此类专用类球体培养板中以均一的细胞密度起始培养,有助于提高类球体形成的可重复性,降低形态、生长速率和结构完整性方面的变异性10,11。实际操作中,本实验常用的胶质瘤类球体直径范围为150–300 µm,在标准化细胞密度下可稳定形成。培养过程维持在低氧条件(1%–2% O2)下进行。
此处描述的平台支持中等到高通量的实验格式,例如96孔板,可对每个患者样本进行多次重复实验,并可扩展用于药物筛选或多条件检测12。因此,优化类球体的定位和培养条件对于增强用于研究胶质瘤侵袭潜能及其他动态细胞过程的3D临床前模型的稳健性和临床相关性至关重要。
方案
胶质母细胞瘤患者来源的细胞由荷兰鹿特丹伊拉斯姆斯医学中心(Erasmus MC)和加拿大多伦多病童医院(Hospital for Sick Children)提供。这些细胞系的原始患者样本是在患者知情同意的情况下,作为常规切除手术的一部分获取的(伦理批准编号:MEC-2013-090、0020010404)。
1. 磁性患者来源胶质瘤球的制备(图1)
- 在胶质瘤球解离前至少30分钟,分装足够量的细胞解离酶培养基和胶质瘤球培养基用于实验(通常每瓶汇合的T75培养瓶需1 mL),并将两者恢复至室温。
- 在无菌条件下,使用10 mL刻度吸管和移液辅助器轻柔吸出培养瓶中的胶质瘤球,转移至15 mL锥形管中。以300 × g离心3分钟。小心弃去上清液,避免扰动细胞沉淀。
- 用1 mL室温的细胞解离酶培养基重悬沉淀,孵育10–15分钟,期间每2–3分钟用P1000移液器轻柔吹打一次,以促进解离形成单细胞悬液。
- 加入等体积的胶质瘤球培养基以终止酶反应。将单细胞悬液在37 °C下以300 × g离心3分钟,然后根据细胞沉淀的大小,用3–5 mL完全胶质瘤球培养基轻柔重悬细胞沉淀,并记录用于后续细胞计数的准确体积。
注意:酶培养基孵育时间主要取决于培养中胶质瘤球的大小,使用前应始终进行目视检查并相应调整。 - 取10 µL单细胞悬液作为代表性样本,于1.5 mL微量离心管中与10 µL台盼蓝轻柔混匀。取10 µL该混合液加入血细胞计数板或自动细胞计数仪,测定活细胞数量。
- 将每孔500个单细胞的胶质母细胞瘤细胞接种至超低吸附96孔球体微孔板中。最佳接种密度可能因不同患者样本而异。
- 每孔加入1 µg/mL碘化丙啶(PI)和0.05 µL氧化铁纳米颗粒(例如,20个球体使用1.5 µL磁性纳米颗粒,相当于约10,000个单细胞)。加入前需用P100移液器(设定为100 µL)反复吹打,确保氧化铁纳米颗粒均匀混悬。
注意:所用氧化铁纳米颗粒的体积可根据使用的细胞系进行优化;但在本实验中,每10,000个细胞使用1.5 µL已足以使球体在中心区域定位。该设置可确保不同患者样本间球体大小的一致性,便于在侵袭实验中直接比较侵袭和生长动力学。 - 将培养板置于37 °C、5% CO2和21% O2的加湿细胞培养箱中孵育48小时,以促进胶质瘤球的形成。
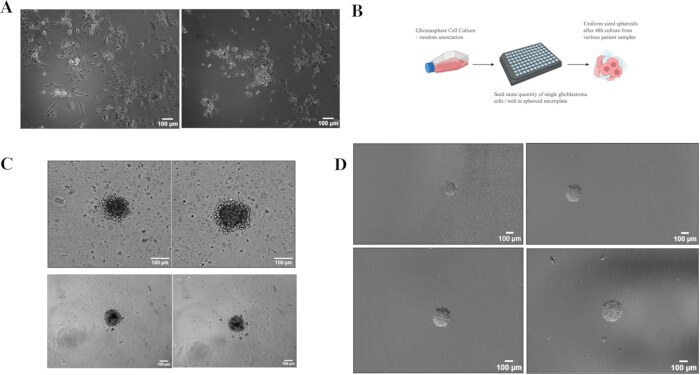
图1:与氧化铁纳米颗粒共培养的大小均一且位置固定的胶质瘤类球体。 (A) 来自新诊断及复发患者肿瘤的胶质瘤类球体表现出双相表型及随机的细胞间聚集。 (B) 接种后48小时内形成大小均一类球体的示意图。 (C) 在圆底类球体微孔板中培养48小时的胶质瘤类球体的透射光图像,上图未添加氧化铁纳米颗粒,下图添加了氧化铁纳米颗粒。注意含有氧化铁纳米颗粒的胶质瘤类球体呈现深色斑点状外观。 (D) 胶质瘤类球体定位情况:未添加纳米颗粒培养的类球体呈随机分布(上图),而添加纳米颗粒培养的类球体则始终位于中央位置(下图),从而降低了背景噪声并提高了图像质量。比例尺 = 100 µm。示意图使用 Biorender.com 制作。 请点击此处查看该图的放大版本。
2. 细胞外基质(ECM)包被多孔板的制备(迁移实验前1小时)
- 根据制造商说明对细胞外基质(ECM)进行分装并储存。将1 mL ECM(1:10稀释)在4 °C冰上缓慢过夜解冻。铺板前立即用预冷的完全神经球培养基将1:10储备液进一步稀释10倍,配制成1:100(v/v)的终工作溶液。稀释后的ECM必须始终置于冰上,以防止提前聚合。此稀释液必须始终保持在冰上,因为ECM在室温下会迅速聚合。
- 将50 µL的1:100 ECM工作溶液加入96孔透明平底或µClear底板的每个孔中。将板置于37 °C孵育至少1小时,使ECM凝固并在每孔中形成一层薄薄的基质。
- 孵育后,小心从每孔中移除30 µL液体,每孔保留20 µL已聚合的ECM(终浓度为1:100 v/v),覆盖在孔底表面。此过程中ECM应尽可能保持低温,因其在室温下会快速聚合。成像用板也可在此过程中预先冷却并置于冰上保存。
3. 成像板设置与活细胞成像
- 在检测当天(胶质瘤球接种后 48 小时),将包被有细胞外基质(ECM)的微孔板放置于 96 孔磁力板驱动器上,如图 2B、C所示。用 70% 乙醇喷洒磁力板进行消毒,并擦拭干燥,切勿浸泡。
- 目视检查类球体的质量和均一性。使用移液器,将每个孔中含单个胶质瘤球的 80 µL 培养基轻柔地转移至具有 ECM 表面的孔板上。
注意:对于特别大的类球体,在转移过程中应注意尽量减少剪切应力;可通过使用剪刀剪去 P100 移液器吸头尖端 1–2 mm 以扩大开口,从而降低机械损伤。使用前应确保剪刀已在紫外线下灭菌。最重要的是,应尽量避免引入气泡,因为气泡会严重影响成像质量。 - 根据实验设计对类球体进行处理。将处理溶液配制成所需浓度,每份 20 µL,然后向含有类球体的每个孔中加入 20 µL,使最终体积达到 100 µL。
注意:以这种方式处理胶质瘤球可减少移液操作,并最大限度降低类球体从孔中被移除的风险。 - 将微孔板连同磁力驱动器一起转移至成像系统进行活细胞成像。从磁力支架上取下微孔板时需小心操作,并尽可能保持垂直,以尽量减少类球体偏离孔中心位置。
- 使用配备 Plan-Apochromat 5x/0.35 NA 物镜、0.5x 管镜、Axiocam 506 相机(binning = 2)以及 Zen 3.1(蓝版)软件的可编程倒置活细胞显微镜进行活细胞成像。像素至微米的校准已内置于成像系统中,并由软件自动完成,因此无需手动校准。本实验中,采用 2.5x 放大倍数(5x 物镜配合 0.5x 管镜),相机 binning 设置为 2 × 2,得到的校准结果为 1 像素 = 3.645 µm。
- 调节环境控制参数,使气体混合器提供含 1% 氧气和 5% CO2 的气体,并保持极低的气流速率。通过将进气通入加湿瓶可有效防止培养液不必要的蒸发。
- 为防止在初始成像阶段胶质瘤球发生位移,应将显微镜载物台的加速度和速度降低至 10%,在类球体贴附于 ECM 表面前尽量减少其在表面的移动。
- 轻柔地将不带磁力驱动器的多孔板装入显微镜。如适用,应在软件中选择正确的板材质类型,以确保光学系统自动调整至匹配状态。
- 选择合适的放大倍数,以完整覆盖整个侵袭性扩展的视野范围。例如,在 Cell Discoverer 7 系统上,选择 5x 物镜和 0.5x 管镜,获得 2.5x 的总放大倍数。
- 定位每一个胶质瘤球,调焦并设定包含 x-y-z 坐标的位置。若设备支持硬件自动对焦功能,应予以启用,以确保在整个实验过程中始终对同一焦平面进行一致性的成像。
- 在相位梯度对比(透射光)和荧光通道中均进行检查,并调整曝光时间和光照强度,确保无过曝现象。使用 590 nm LED 激发碘化丙啶(死细胞染料),通过四通道带通滤光片收集发射光信号,捕获波长范围为 618–756 nm。其他显微镜系统可能因滤光片和光源配置不同而有所差异。
- 设置每隔一小时拍摄一次图像,持续成像至预定天数。
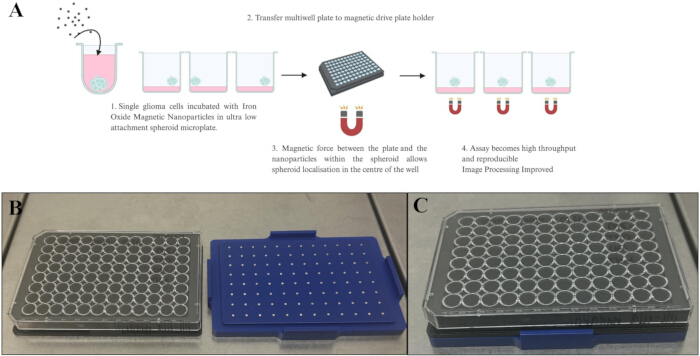
图 2:成像板设置说明。(A)表示所述方案的示意图。(B)多孔板紧邻磁力板驱动装置的图像,以及多孔板简单地安装在磁力驱动装置上方,每个独立磁体位于各孔中心,有助于胶质瘤球体的定位。示意图使用 Biorender.com 制作。请点击此处查看此图的放大版本。
4. 侵袭实验后类球体的固定用于多重蛋白质分析(图3)
- 侵袭实验完成后,每孔加入 100 μL PBS 洗涤,使每孔总体积达到 200 μL。重复此步骤,即每次移除 100 μL PBS,并补充 100 μL 新鲜 PBS。
- 小心移除每孔中的 200 μL 培养基,然后每孔加入 100 μL 4% 多聚甲醛(PFA),在室温下于通风橱中孵育 10 分钟。
注意:多聚甲醛为有毒化学品,操作时应谨慎,尽量减少暴露风险。 - 固定结束后,吸去各孔中的 PFA,用 PBS 洗涤 3 次,每次移除 PFA 后加入 100 mL PBS。
- 根据试剂盒说明书进行免疫染色。或者,如需长期保存,可在 PBS 中加入叠氮化钠(0.02%)以维持无菌状态,并用透明封板膜密封。于 4 °C 保存,待后续使用。
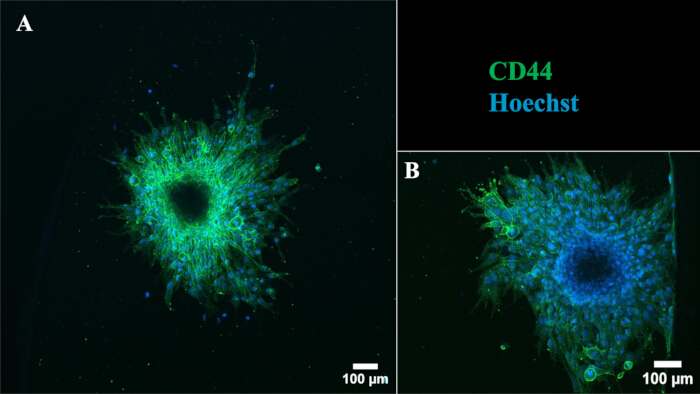
图3:位于孔中央与孔边缘的胶质瘤球体迁移实验后具有代表性的蛋白分析。 对复发性胶质瘤球体进行迁移实验后,使用靶向胶质母细胞瘤干细胞标志物CD44的抗体进行免疫染色,并通过激光共聚焦显微镜观察。CD44-FITC(绿色)和Hoechst(细胞核,蓝色)。比例尺 = 100 µm。箭头指示孔的边缘。请点击此处查看该图的放大版本。
5. 患者来源迁移动力学的图像处理流程
注意:根据我们数据集的使用经验,建议处理计算机配备具有高基础核心频率的多核处理器以及充足的内存,因为 WEKA 处理过程能极大受益于较高的核心数量,并会根据数据集大小充分利用可用内存。以下列出推荐和实际使用的配置。请注意,本工作流程不使用 GPU 处理。
CPU:>= 6 核 | >= 2 GHz(推荐);32 核 | 2.1 GHz(实际使用)
内存:> 32 GB(推荐);192 GB(实际使用)
- 打开 Fiji13 [目前使用附带的 ImageJ-win64.exe 可执行文件进行分析]。通过导航至 – 文件 > 打开 选择多通道,打开多场景延时图像文件(.czi),该文件将在 Fiji 界面中显示(如果使用脚本,则为补充文件 1)。
- 在图形用户界面(GUI)中选择所需的图像。建议优先选择实验中侵袭性最强的胶质瘤球体图像用于初始分类器训练(即对照组 – DMSO),因为该图像将提供关于图像各部分的详细信息,例如侵袭/迁移细胞、类球体与背景之间的外观差异。
- 然后导航至 图像 > 颜色 > 拆分通道 —— 此操作将图像分为两个通道,本例中一个为碘化丙啶(Propidium Iodide)染色通道,另一个为透射光通道。
- 选择用于分割的通道 —— 本例中为反映迁移动态的透射光通道。导航至 插件 > 分割 > 可训练 WEKA 分割14。
- 将两个默认类别重命名为:类别 1:胶质瘤球体;类别 2:侵袭/迁移。通过导航至 设置 > 新建类别 > 背景,可添加第三个名为“背景”的类别(可选但推荐)。
- 使用自由线工具(Freeline tool)在每个图像堆栈和类别中绘制训练区域,即在代表性区域上进行标注,例如在类球体区域画螺旋线并点击 添加到类球体,对侵袭区域和背景重复此操作,直至每个类别均包含代表性区域。点击 训练分类器 完成训练。如有需要,可进一步标注更多图像以提升分类器准确性。
- 当结果满意后,将训练好的分类器模型保存为类似 CellLine_Treatment_Classifier.model 的文件名。完成后关闭分割窗口。
- 对于使用该已保存分类器的新图像,请导航至 插件 > 分割 > 可训练 WEKA 分割 >加载分类器> 打开已保存的分类器 CellLine_Treatment_Classifier(这将生成一个 .model 文件,是运行补充文件 2前必须准备的必要条件之一。启动脚本时,必须选择相应的样本文件)。
- 在可训练 WEKA 分割界面中导航至“获取概率”(Get probability)—— 此操作将为每个选定类别(即胶质瘤球体、侵袭/迁移、背景)生成概率图,表示图像中每个像素值归属于特定类别或区域的可能性。这将生成包含 3 个独立图像的概率图文件,每个图像具有 32 位动态范围,分别对应胶质瘤球体、侵袭和背景。
- 选择对应于侵袭/迁移的概率图。导航至 图像 > 超堆栈 > 降维。选择 保留源图像。
- 取消勾选 通道,但保留帧 —— 这将地图简化为随时间变化的单通道图像,本例中即为侵袭概率图。选择对应于胶质瘤球体的概率图。
- 重复步骤 5.10–5.11。此时将得到两个概率图,分别对应某一场景中原始透射光延时图像的迁移区域和类球体区域。将两者以如下命名格式保存:ImageName_Scene_Gliomasphere_ProbabilityMap 和 ImageName_Scene_Invasion_ProbabilityMap,保存于对应实验的文件夹中,例如 CellLine_Treatment。
- 设置阈值以生成二值掩膜:进入 图像 > 调整 > 阈值。选择一种阈值方法(例如 Yen、Otsu)。所有处理图像应保持相同的选定方法。
- 导航至 分析 > 设置测量值。选择所需测量项;勾选面积、积分密度和平均值,然后点击 确定。再导航至 分析 > 分析颗粒。对于侵袭/迁移区域,设置大小:0 – 无穷大;圆度:0.00 – 1.00。对于胶质瘤球体,设置大小:通常为 1500 – 无穷大(根据细胞系/处理条件下的类球体大小适当调整 —— 对照组类球体自然生长更大);圆度:0.05 – 1.00。所有设置均选择像素单位。
- 导航至 分析>分析像素> 显示:选择掩膜。生成掩膜后,验证整个延时堆栈中感兴趣区域的分割情况,确保准确追踪。通过 处理 > 二值 > … (例如在优化类球体掩膜时选择“填充孔洞”)应用二值运算,然后导航至 分析 > 分析颗粒 > 显示 > 取消选择 并点击 汇总。这将生成所选测量值的汇总窗口。
- 点击 文件 > 另存为 > 结果 保存结果。保存为 .csv 文件,并在电子表格或其他分析软件中打开。
- 对所有分割类别(例如胶质瘤球体、侵袭)重复阈值化和颗粒分析,以提取随时间变化的相应测量值。输出的 .csv 文件提供随时间变化的面积(单位为像素或微米,取决于校准)。
- 选择代表 PI 染色的荧光通道(例如通道 2)。如上所述进行阈值化和颗粒分析,以识别死细胞。使用 Calculator Plus 插件将 PI 阳性细胞的掩膜分别与胶质瘤球体掩膜和侵袭掩膜相乘,以量化特定区域内的死细胞数量。
- 将掩膜、概率图和汇总表导出为 TIFF 和 CSV 文件,并使用清晰、描述性强的文件名以便记录和后续分析。当使用补充材料中提供的脚本时,可参考以下命名规范:例如 FileName_Scene#_(PI-)Invasion_Summary.csv(随时间变化的对象数据),FileName_Scene#_(PI-)Invasion.zip(由分析颗粒定义的区域)。
注意:补充文件 1 将生成每个场景的单个 tif 文件,包含延时图像。补充文件 2 将基于预定义的分类模型文件对所有场景和每个延时图像中的所有图像运行 WEKA 像素分类,生成胶质瘤球体和侵袭细胞的概率图。补充文件 3 将所有图像分割为胶质瘤球体和侵袭细胞,并量化覆盖面积以及被死细胞(PI 阳性)覆盖的区域比例。补充文件 4 的运行假设使用特定的阈值方法和特定分析区域,而补充文件 3 允许用户为每个场景设置阈值并调整分析区域。每个场景不应更换不同的阈值方法,但可为不同对象设置不同方法。
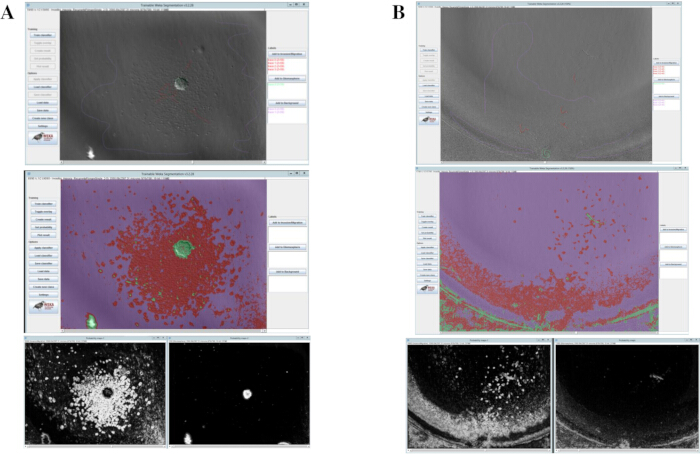
图4:由于胶质瘤球体分割效果不佳导致图像处理可重复性困难。在Fiji中使用可训练的WEKA分割插件进行图像处理流程,显示(A)中心定位的胶质瘤球体,其迁移区域相对于背景具有更佳的分割效果;而(B)位于边缘的胶质瘤球体则导致图像分割质量差,无法用于有效重复实验。通过确保胶质瘤球体定位的一致性,不同生物学重复样本的图像处理结果均呈现如(A)所示的效果,显著提高了实验的可重复性和自动化程度。请点击此处查看该图的放大版本。
结果
在低氧条件下使用所述的三维迁移实验,对来自复发性患者肿瘤的胶质瘤球分别用溶剂对照或药物X处理,并每小时监测一次侵袭动态,持续72小时。图5展示了对侵袭动态进行WEKA分割分析的结果,表明在临床相关的低氧条件下,与溶剂对照组相比,药物X显著降低了复发性胶质瘤球的侵袭潜能。
为了进一步评估药物X对迁移后干细胞特性的影响,对胶质瘤球体进行固定,并针对胶质母细胞瘤干细胞标志物CD44的表达与定位进行免疫染色,如图6所示。这种多重分析有助于可视化迁移动态和干细胞标志物的表达,揭示药物X在临床相关低氧条件下如何调控复发性胶质母细胞瘤模型的侵袭潜能和类干细胞特性。
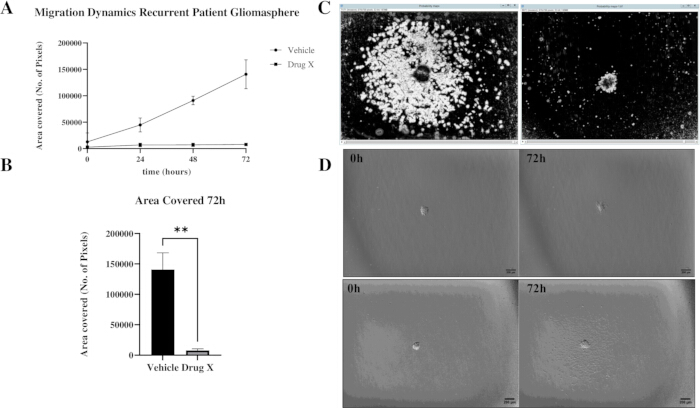
图 5:优化的迁移实验凸显了新型药物X在抑制复发性胶质瘤球迁移方面的有效性。 来自患者的复发性胶质瘤球在缺氧条件下分别用溶剂或药物X处理72小时。每小时记录一次侵袭动态,持续72小时。(A) 上图显示溶剂处理组、下图显示药物X处理组在0小时和72小时时侵袭动态的代表性透射光图像。(B) 分割分析中所用侵袭区域的代表性概率图。(C) 经药物X处理的复发性胶质瘤球表现出显著低于溶剂处理组的侵袭潜力。在72小时时对侵袭面积进行定量分析,结果显示药物X处理组的胶质瘤球侵袭显著减少,以固定时刻覆盖的总面积表示。数据来自n=3次独立重复实验,侵袭面积随时间变化。采用非配对t检验评估统计学显著性;p < 0.005 以 ** 表示。请点击此处查看该图的放大版本。
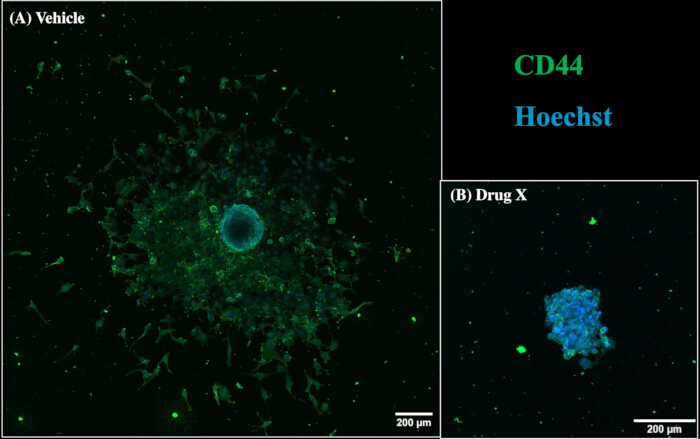
图6:治疗后细胞迁移及干细胞标志物表达情况。 如图5所述的胶质瘤球体在迁移后经固定,并使用靶向胶质母细胞瘤干细胞标志物CD44的抗体进行免疫染色,以评估溶剂对照或药物X处理后的效应。本图展示了利用常规免疫染色技术可实现的多重迁移后分析类型。图像显示CD44-FITC(绿色)和Hoechst(细胞核,蓝色)。比例尺 = 200 µm。 请点击此处查看该图的放大版本。
补充文件 1:将显微镜获取的多场景 CZI 文件重新保存为单个场景的 TIF 文件。请点击此处下载该文件。
补充文件 2:使用 Weka 模型生成概率图。请点击此处下载该文件。
补充文件3:无阈值分割分析。请点击此处下载该文件。
补充文件4:基于阈值的分割分析。请点击此处下载该文件。
讨论
建立高度侵袭性肿瘤(如胶质母细胞瘤)侵袭动态的模型,对于加深对疾病过程的理解并确定更有效的治疗策略至关重要。胶质母细胞瘤细胞迁移具有复杂、适应性强和可塑性的特点,因此需要能够精确捕捉单个胶质瘤细胞从中心肿瘤团块迁移过程中动态行为的临床前模型。尤为重要的是,利用来自疾病不同阶段的患者来源样本建立这些过程的模型,可使研究人员更好地应对肿瘤异质性带来的挑战,并识别侵袭动态中是否存在与疾病阶段相关的特异性变化。
鉴于这种复杂性,可以合理地认为,临床前模型应具备同等水平的复杂性。本文介绍了一种改进的方法,用于生成大小均一的患者来源胶质瘤类球体,并与氧化铁纳米颗粒共培养。该方法可实现胶质瘤类球体在每孔中央的可控定位,从而支持对侵袭动态进行自动化的活细胞成像分析。已有多个研究指出,采用传统三维培养方法时,类球体在大小、形状和生长动力学方面存在显著变异性;Sayde 及其同事证明,来自未分选与已分选肿瘤干细胞群体的类球体直径分布差异较大,反映出类球体形成过程中的固有变异性15,16。这种异质性也被认为是基于类球体的药物筛选实验中可重复性问题的主要来源之一,进一步凸显了生成均一类球体群体的重要性12。这些发现强调了在开展功能分析之前标准化类球体形成条件的必要性,而本方法正是直接应对这些挑战。通过标准化类球体的大小和位置,该方法显著提高了实验的可重复性,减少了三维细胞培养系统中因类球体形成不均而导致的变异性,从而有利于后续分析。
在该实验方法的初期开发过程中,我们观察到重复实验之间类球体定位存在显著差异,这要求每次实验使用大量孔板,同时还需要进行多次生物学重复,才能获得具有统计学意义的结果。这不仅显著增加了工作量,还产生了大量无法使用的数据,降低了实验的效率和可重复性。因此,这种变异性反映的是可量化数据的丢失,而非侵袭行为的差异。通过将胶质瘤类球体在每孔中进行中心化定位,磁力定位技术可确保所有重复样本的图像均能被一致地分割和分析,即使样品间在侵袭动态上存在生物学差异。
引入氧化铁纳米颗粒可产生温和的磁力,使所有孔中的胶质瘤球体持续居中,从而显著提升图像处理流程、数据处理及迁移后分析的性能,同时不影响胶质瘤球体的生物学特性或存活率8。该系统的一个关键优势在于其兼容迁移后的多重分析。例如,图6 展示了胶质母细胞瘤干细胞标志物CD44的可视化分析结果,可用于评估不同患者样本在迁移和治疗后干细胞样细胞的表达情况。这一能力凸显了该平台在整合研究中的潜力,可将侵袭性表型与分子特征关联起来;鉴于胶质母细胞瘤干细胞样细胞在微环境信号刺激下具有表型可塑性,并能逃避治疗从而导致肿瘤不可避免地复发,这一特性尤为重要。
尽管该检测方法显著提高了单个球状体侵袭动态成像的可重复性,但仍存在一些关键局限性,需在未来的检测优化中加以考虑。Matrigel 是基底膜的常用模型,但它是一种成分复杂且未明确定义的细胞外基质(ECM)替代物,来源于小鼠肉瘤,无法完全模拟人类脑部微环境17。未来对该检测方法的优化可引入脑组织特异性的细胞外基质模型,以更真实地模拟脑肿瘤微环境,我们认为这是体外脑侵袭模型必须实现的关键优化步骤18,19。尽管 Matrigel 仍是目前广泛使用的 ECM 模型,但它代表的是来源于小鼠肉瘤的非脑组织特异性细胞外基质,因此无法完全重现人类脑部微环境的生化和力学特性。重要的是,本文所述的磁性定位策略不依赖于基质类型,未来可轻松适配于脑组织特异性的 ECM 系统,从而进一步提升其生理相关性。
该检测方法的其他注意事项包括:由于样本存在异质性以及侵袭形态的可变性,可能需要针对每种细胞系训练新的 WEKA 分割模型。此外,在进行高通量迁移检测之前,应针对每种细胞系和类球体类型优化接种密度和纳米颗粒浓度,以保持其均一性和细胞活力。尽管存在这些局限性,该平台仍为研究患者特异性的胶质母细胞瘤侵袭行为及治疗反应提供了可扩展且灵活的框架。该平台与活细胞成像、自动化分割流程以及多重检测后分析兼容,为针对高度异质性患者肿瘤样本的新疗法、联合疗法以及侵袭机制研究提供了高内涵筛选的机会。此外,将该检测方法扩展至共培养系统,例如与星形胶质细胞、神经元、小胶质细胞等脑内常驻细胞共培养,或用于研究血脑屏障相互作用的模型,可进一步揭示驱动胶质母细胞瘤进展和复发的肿瘤基质相互作用机制。
在检测方法开发过程中,已确定若干技术步骤是影响可重复性和整体检测性能的关键因素。在检测前对细胞系的接种密度进行标准化,可确保胶质瘤球体的初始大小一致,从而使不同细胞系、处理方式和实验条件下类球体的生长动态具有可比性。若缺少该标准化步骤,初始类球体大小将引入显著的变异性,进而可能导致胶质瘤球体对实验条件的反应出现差异。将胶质瘤球体精确地定位在每孔中央是实现自动化图像准确采集及后续分割的关键要求。 偏离中心的球体会导致严重的成像噪声,并阻碍使用 WEKA 分割方法将图像划分为明确定义的区域。通过确保所有胶质瘤球体均位于孔中央,可多次重复使用相同的 WEKA 分类器,因为此时噪声显著减少,图像质量大幅提升。这一点的示意图见图1。因此,引入磁性氧化铁纳米颗粒是一种确保胶质瘤球体居中定位的方法,可最大限度减少位置变异,并显著改善图像处理效果以及各重复之间的可比性。最后,在 WEKA 分析流程中进行分割模型训练是另一个关键的标准化步骤。由于患者间存在异质性以及侵袭形态的差异,单一的分割模型可能无法适用于所有样本。针对每种细胞系重新训练或优化分类参数,可生成准确的侵袭区域概率图,避免定量分析中的误差。
总体而言,该检测方法为实时研究患者来源的胶质瘤样本的动态侵袭行为提供了一个可重复且可扩展的平台。该方法与多重成像及下游分子分析兼容,使其成为基础与转化胶质瘤研究中一种强大且多功能的工具,将显著提升临床前胶质母细胞瘤模型的转化相关性。
披露
无任何利益冲突需要披露
致谢
本工作由爱尔兰研究理事会(科学基金会爱尔兰)资助,资助编号为20391A01,以及由健康研究理事会资助,资助编号为ERA-TRANSCAN-2022-002。细胞由我们在多伦多病童医院Dirks实验室及荷兰鹿特丹伊拉斯姆斯医学中心(EMC)的合作研究人员慷慨提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 96孔生物打印试剂盒,透明 | Greiner | 655840 | |
| Accutase | Invitrogen | 00-4555-56 | n/a |
| B-27 增补剂(50X),血清 不含维生素A | Gibco | 12587010 | 10% |
| 人碱性成纤维细胞生长因子 (bFGF) | PeproTech | 100-18B | 20 ng/ml |
| Celldiscoverer 7 | Zeiss | - | |
| 康宁球形微孔板 | 康宁 | CLS4515 | |
| Corning Matrigel 基质 | 康宁 | 354234 | 1:100 的终浓度稀释 |
| Countess 自动细胞计数仪 | Invitrogen | - | |
| DMEM-F12 (500 ml) | 赛默飞世尔科技 | 11320-074 | n/a |
| 人表皮生长因子(EGF) | PeproTech | AF-100-15 | 20 ng/ml |
| FITC 标记小鼠抗人 CD44 | BD Pharmingen | 555478 | 1:100 |
| Greiner CELLSTAR 96 孔聚苯乙烯细胞培养微孔板,F 型底/烟囱孔 µ透明、黑色、组织培养处理、无菌、带盖 | Greiner | 655090 | |
| 肝素 | 赛默飞世尔科技 | A16198 | 5µg/ml |
| Hoechst 33258 | Sigma Aldrich(默克) | 861405 | 1µg/ml |
| NanoShuttle-PL | Greiner | 657841 | 1.5 µl/10,000 个细胞 |
| 青霉素-链霉素 | 默克 | P4333 | 1% |
参考文献
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
重印与许可
