Dieses Protokoll beschreibt, wie man eine 2D-Mischmatrix, bestehend aus Gelatine und Kollagen I, und einem 3D-Kollagen-I-Plug, um lineare Invadosomen zu studieren, vorzubereiten. Diese Protokolle erlauben die Untersuchung der linearen Invadosomenbildung, der Matrixabbauaktivität und der Invasionsfähigkeit von Primärzellen und Krebszelllinien.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
2D- und 3D-Matrizen zur Untersuchung der linearen Invadosomenbildung und -aktivität
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Zelladhäsion, Migration und Invasion sind in viele physiologische und pathologische Prozesse involviert. Zum Beispiel müssen die Tumorzellen während der Metastasenbildung anatomische Barrieren überqueren, um durch das umgebende Gewebe einzudringen und zu wandern, um Blut oder Lymphgefäße zu erreichen. Dies erfordert die Wechselwirkung zwischen Zellen und der extrazellulären Matrix (ECM). Auf zellulärer Ebene sind viele Zellen, einschließlich der Mehrheit der Krebszellen, in der Lage, Invadosomen zu bilden, die F-Aktin-basierte Strukturen sind, die in der Lage sind, ECM abzubauen. Invadosomen sind protrusive Aktinstrukturen, die Matrixmetalloproteinasen (MMPs) rekrutieren und aktivieren. Die molekulare Zusammensetzung, die Dichte, die Organisation und die Steifigkeit des ECM sind entscheidend für die Regulierung der Invadosomenbildung und -aktivierung. In vitro ist ein Gelatine-Assay der Standard-Assay, der verwendet wird, um Invadosomen-Abbauaktivität zu beobachten und zu quantifizieren. Allerdings ist Gelatine, die denaturiertes Kollagen I ist, keine physiologische Matrix eLeasing Ein neuartiger Test unter Verwendung von Kollagenfibrillen vom Typ I wurde entwickelt und verwendet, um zu zeigen, dass diese physiologische Matrix ein potenter Induktor von Invadosomen ist. Invadosomen, die sich entlang der Kollagenfibrillen bilden, werden als lineare Invadosomen aufgrund ihrer linearen Organisation auf den Fasern bezeichnet. Darüber hinaus zeigte die molekulare Analyse von linearen Invadosomen, dass der Diskoidin-Domänen-Rezeptor 1 (DDR1) der Rezeptor ist, der an deren Bildung beteiligt ist. Diese Daten zeigen deutlich, wie wichtig es ist, eine physiologisch relevante Matrix zu verwenden, um die komplexen Wechselwirkungen zwischen Zellen und ECM zu verstehen.
Einleitung
Extrazelluläre Matrix (ECM) Remodeling erfolgt während physiologischer und pathologischer Prozesse wie Angiogenese und Tumorzellinvasion. In physiologischen Bedingungen können viele Zelltypen, meist aus der hämatopoetischen Abstammung, ECM-Elemente abbauen. Zum Beispiel können Makrophagen anatomische Barrieren kreuzen, um Gewebe zu erreichen, und Osteoklasten verschlechtern die Knochenmatrix, um die Calciumhomöostase zu gewährleisten. Weltweit erneuern sich alle Matrizen im Körper, um ihre physikalischen und chemischen Eigenschaften zu erhalten. In Krebsgeweben wird die Tumor-Mikroumgebungszusammensetzung verändert. Zum Beispiel bei Brust-und Lungenkrebs, Typ I Kollagen ist überexprimiert und sammelt sich um den Tumor. Darüber hinaus ist diese Akkumulation mit einem erhöhten Risiko der Entwicklung von Metastasen 1 , 2 verbunden. Die Krebsmetastase hängt von der Fähigkeit von Krebszellen ab, das ECM abzubauen und in benachbarte Gewebe einzudringen.
DasInvasive Aktivität von Zellen wird auf spezialisierte aktinreiche Strukturen, die als Invadosomen bekannt sind, zugeschrieben. Dieser Begriff schließt Podosomen und Invadopodien ein, die jeweils in normalen und Krebszellen vorhanden sind ( z. B. Makrophagen, Endothelzellen und Krebszellen wie die MDA-MB-231-Brustkrebszelllinie). In vitro können Invadosomen in verschiedene Formen organisieren: Punkte, Aggregate oder Rosetten 3 . Klassisch bestehen Invadosomen aus einem F-Aktin-Kern, der mehrere Proteine enthält, wie das Gerüstprotein Tks5 und Cortactin, umgeben von Adhäsions-Plaque-Molekülen wie Integrinen und Vinculin 4 . Vor kurzem wurde gezeigt, dass Tks5 und die RhoGTPase Cdc42 als minimale molekulare Signatur für funktionelle Invadosomen verwendet werden können 5 . Diese Strukturen sind in der Lage, das ECM durch die Rekrutierung und Aktivierung von spezifischen Metalloprotease-Proteinen wie MT1-MMP und MMP-2 zu verschlechtern. In einer früheren Studie berichteten wir, dass die Wechselwirkung zwischen Kollagenfibrillen des Typs I und dem Diskoidin-Domänenrezeptor 1 (DDR1), einem spezifischen Rezeptor von Kollagenfibrillen vom Typ I, zur Bildung einer neuen Klasse von Invadosomen mit dem Namen lineare Invadosomen führt. Lineare Invadosomen werden entlang Kollagenfibrillen des Typs I gebildet 7 . Diese Strukturen sind in der Lage, Typ-I-Kollagenfibrillen durch die Rekrutierung und Aktivierung von MT1-MMP / MMP2 abzubauen. Darüber hinaus ist ihre Bildung abhängig von Tks5 und Cdc42 5 . In vitro zeigten wir die Existenz von linearen Invadosomen und die Beteiligung von DDR1 an ihrer Bildung und Aktivität 8 unter Verwendung verschiedener Strategien, die aus einer Kombination verschiedener Matrixelemente bestehen, einschließlich: i) fluoreszierende Gelatine-beschichtete Deckgläser, ii) fluoreszierende Kollagenfibrillen vom Typ I -beschichtete Deckgläser und iii) 3D-Typ-I-Kollagen-Stopfen. Durch den Einsatz unterschiedlicher Matrizen konnten wir studieren und charakterisierenIve lineare Invadosomenbildung und deren Abbauaktivität 7 , 8 .
Um die Biologie von invasiven Zellen besser zu verstehen, wurde eine Kombination von ECM-Komponenten sowohl in 2D- als auch in 3D-Kultursystemen verwendet, wobei die Komplexität der Tumor-Mikroumgebungszusammensetzung nachgeahmt wurde. Im Folgenden sind Protokolle für die Beschichtung von Deckgläschen mit Gelatine / Typ I Kollagen in 2D- und 3D-Kultursystemen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
HINWEIS: Vor der Fixierung werden alle Schritte in einer sterilen laminaren Strömungshaube durchgeführt.
1. 2D Matrix
ANMERKUNG: 2D Matrizen werden verwendet, um den Prozentsatz der Zellen zu bestimmen, die Invadosomen bilden, und der Matrixabbaubereich pro Zelle.
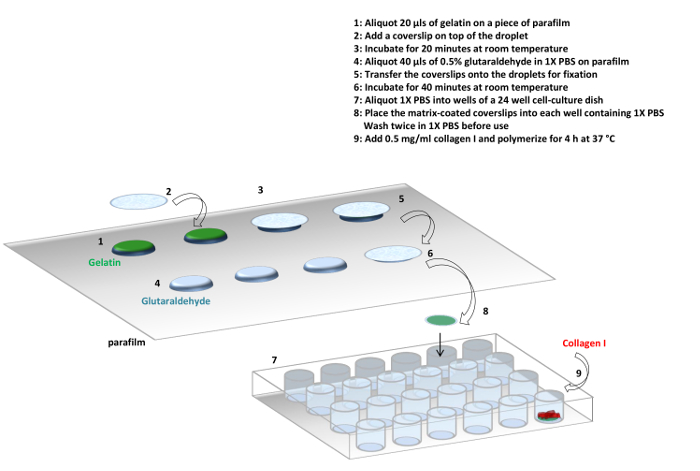
Abbildung 1: Protokoll. Zusammenfassung des Protokolls zur Herstellung von Gelatine- und Kollagen-I-Matrizen. Es ist möglich, die Gelatine-Matrix nur oder eine Gelatine und Kollagen I gemischte Matrix zu machen. Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
- Gelatine-Matrix
ANMERKUNG: Fluoreszierende Gelatine-Matrizen werden verwendet, um den Matrixabbau zu quantifizieren, und nicht-fluoreszierende Gelatine wird verwendet, um die Adhäsion von Kollagen-I-Fasern zu fördern. Fluoreszierende Gelatine-MatteRizes werden auch für Podosomen- und Invadopodien-Studien verwendet (siehe Abbildung 1 ).- Unter einer sterilen laminaren Strömungshaube legen Sie ein Stück Parafilm (20 cm x 15 cm) auf den Arbeitsbereich und desinfizieren es mit 70% Ethanol.
- Aliquotieren von 20 & mgr; l Tröpfchen von 1 mg / ml Gelatine in einer Linie, die etwa 1 cm voneinander entfernt ist; Siehe Abbildung 1 für Tröpfchenorganisation.
- Bedecken Sie jedes 20 μl Gelatine-Tröpfchen mit einem Autoklaven-Glasdeckel (12 mm Durchmesser).
- 20 min bei Raumtemperatur inkubieren. Wenn die Gelatine fluoreszierend ist, schützen sie vor Licht.
- Aliquotieren Sie 40 μl Tröpfchen von 0,5% Glutaraldehyd in 1x phosphatgepufferter Kochsalzlösung (PBS) in einer Linie, die jeweils etwa 1 cm unterhalb der Linie der Deckgläser aus Schritt 1.1.3 liegen.
ACHTUNG: Glutaraldehyd ist ein toxisches Fixiermittel. Handschuhe benutzen und nicht einatmen. - Mit der geschmiedeten Pinzette, jedes Gelatine-beschichtete Deckglas auf ein Glutaraldehyd-Tröpfchen übertragen.
Notiere esIst normal, dass ein kleines Gelatine-Tröpfchen auf dem Parafilm bleibt. Wiederholen Sie das nicht für ein anderes Experiment. - 40 min bei Raumtemperatur inkubieren. Für fluoreszierende Deckgläser schützen sie vor Licht.
- Nehmen Sie eine 24-Well-Zellkulturplatte und füllen Sie jede Vertiefung mit 500 μl sterilem 1x PBS. Legen Sie die Deckgläser, Gelatine Seite nach oben, in jede Vertiefung.
- Waschen Sie zweimal in 1x PBS für jeweils 5 min.
HINWEIS: Bei diesem Schritt können die Deckgläser zum Experimentieren verwendet oder in 1x PBS bei 4 ° C gelagert werden. Nicht fluoreszierende Deckgläser können für eine Woche gelagert werden, und fluoreszierende Deckgläser können für 48 h gelagert werden.
- Fibrilläre Kollagen Typ I Matrix
HINWEIS: Die Fibrillar-Kollagen-Typ-I-Matrix wird verwendet, um die lineare Invadosomenbildung und den damit verbundenen Matrixabbau zu untersuchen. Eine Kombination von fluoreszierendem Kollagen I und nicht-fluoreszierenden Gelatine-Deckgläschen wird verwendet, um Invadosomenmarker mit Kollagenfasern zu kolokalisieren ( z. B. F-Aktin iN der weit-rote Kanal, Kollagen I im roten Kanal, Tks5 im grünen Kanal und Hoechst Farbstoff für einen Kernfleck). Auf der anderen Seite wird eine Kombination von nicht-fluoreszierendem Kollagen I mit nicht-fluoreszierenden Gelatine-Deckgläschen verwendet, um die Anzahl der gefärbten Invadosomen-Marker zu maximieren ( z. B. F-Aktin im weit-roten Kanal, Cortactin im roten Kanal, Tks5 in Der grüne Kanal und Hoechst Farbstoff für einen Kernfleck). Schließlich wird eine Kombination von nicht-fluoreszierendem Kollagen I mit fluoreszierenden Gelatine-Deckgläschen verwendet, um den Gelatine-assoziierten Abbau zu quantifizieren ( z. B. F-Aktin im weit-roten Kanal, Tks5 im roten Kanal, im grünen Kanal und Hoechst-Farbstoff Für einen Kernfleck) (siehe Abbildung 1). Hoechst-Farbstoff wird verwendet, um den Kern zu färben, und es prüft auch auf Mycoplasma-Kontamination, zusätzlich zu einem PCR-Test, der regelmäßig auf den verwendeten Zelllinien durchgeführt wird.- Fluoreszierendes Kollagen I
- Verwenden Sie kommerzielles Kollagen, das ich aus Rattenschwanzsehne in 0,02 N Essigsäure extrahiert habeD. Ziehen Sie die Menge an Kollagen, die notwendig ist, um 500 μl Lösung pro Deckglas bei einer Endkonzentration von 0,4 mg / ml Kollagen I herzustellen.
- Füge 5-Carboxy-x-Rhodamin-succinimidylester in einer Endkonzentration von 10 μg / ml hinzu, berechnet für das Endvolumen der Kollagen-I-Lösung (nx 500 μL).
- Mischen Sie die Lösung durch Pipettieren auf und ab und inkubieren für 5 min bei Raumtemperatur, vor Licht geschützt.
- Verdünnen Sie das endgültige Volumen mit 1X Dulbecco's Phosphat-gepufferter Salzlösung (DPBS), die Calcium und Magnesium enthält, und verwenden Sie direkt.
- Fibrillar Kollagen I Deckglas
- Verwenden Sie die zuvor in Schritt 1.1 hergestellten nicht-fluoreszierenden oder fluoreszierenden Gelatine-Deckgläser.
- Vorbereitung einer Lösung von fluoreszierendem oder nicht-fluoreszierendem Kollagen I bei einer Endkonzentration von 0,4 mg / ml in 1X DPBS, enthaltend Calcium und Magnesium.
- Füge 500 μl fluoreszierende oder nicht-fluoreszierende Kollagen-I-Lösung hinzuDeckglas in einer 24-Well-Zellkulturplatte.
- Inkubieren für 4 h bei 37 ° C für die Kollagen-I-Polymerisation.
- Nach der Inkubation das überschüssige Kollagen I durch Kippen der Platte und Pipettieren auf der Seite des Brunnens (nicht direkt auf dem Deckglas) entfernen, um eine Beschädigung der Matrix zu vermeiden.
HINWEIS: Diese Matrix kann nicht gespeichert werden. Die Zellen sofort nach dem Entfernen von überschüssigem Kollagen I.
- Fluoreszierendes Kollagen I
2. Zellseeding, Zeit der Kultur und Fixierung
- Je nach Zelltyp werden die Zellen in das entsprechende Kulturmedium vorbereitet und Zellen für ein Endvolumen von 500 μl pro Vertiefung zugegeben.
- Um die Fähigkeit einer Zelllinie zu charakterisieren, lineare Invadosomen zu bilden und die Matrix abzubauen, die Zellen für 4 h, 12 h und 24 h auf der Kollagen-I-Matrix zu trennen, um die Kinetik der linearen Invadosomenbildung und der damit verbundenen Abbauaktivität zu bestimmen.
ANMERKUNG: Tabelle 1 enthält Beispiele für ZelllinienGetestet im Labor.
Tabelle 1: Zellseeding und Inkubationszeitreferenz. Diese Tabelle stellt eine nicht erschöpfende Liste von Zelllinien dar, die verwendet werden, um lineare Invadosomen zu studieren. Es gibt die Anzahl der Zellen an, die auf der Matrix säen, die Zeit, die notwendig ist, um lineare Invadosomen zu beobachten, und die Zeit, die notwendig ist, um den assoziierten Matrixabbau zu beobachten. Lineare Invadosomen haben eine kurze Lebensdauer. Um lineare Invadosomen in der maximalen Anzahl von Zellen beobachten zu können, müssen die Zellen für eine kurze Zeitspanne mit der Kollagen-I-Matrix in Kontakt kommen. Um andererseits den gemeldeten Gelatineabbau zu visualisieren, müssen die Zellen über einen längeren Zeitraum mit der Kollagen-I-Matrix in Kontakt kommen als die oben aufgeführten.Zelllinie Anzahl der Zellen pro Deckglas Zeit der Kontakt mit Matrix für lineare Invadosom-Quantifizierung Zeit der Berührung mit Matrix zur Quantifizierung der linearen Invadosomenabbauaktivität MDA MB 231 40.000 4 h 12 h HUH7 40.000 12 h 24 h HEP 3B 40.000 12 h 24 h SNU 398 40.000 12 h 24 h NIH 3T3 src 30.000 4 h 12 h A431 50.000 6 h 24 h A549 40.000 12 h 24 h &# 160; ROH 40.000 12 h 12 h PAE 40.000 12 h 12 h - Nach der Entfernung des Zellkulturmediums,Die Deckgläser für 10 min in 500 μl 4% Paraformaldehyd in 1X PBS fixieren.
- Waschen Sie zweimal mit 1x PBS.
- Bei 4 ° C aufbewahren, vor Licht geschützt.
3. Immunfluoreszenz
- Permeabilisieren Sie die Zellen für 10 min mit einer frisch zubereiteten Lösung Von 0,2% Triton X-100 in 1x PBS. Diese Lösung nicht wiederverwenden.
- Waschen Sie die Deckgläschen zweimal mit 1x PBS.
- Lege ein Stück Parafilm (20 cm x 15 cm) auf die Bank.
- Verdünnen Sie den primären Antikörper in 4% Rinderserumalbumin (BSA) in 1x PBS, wie in der Materialtabelle beschrieben .
- Aliquotieren Sie 50 & mgr; l Tröpfchen der primären Antikörperlösung in einer Linie, die jeweils etwa 1 cm voneinander entfernt sind.
- Lege jedes Deckglas auf ein Tröpfchen.
- 40 min bei Raumtemperatur inkubieren, vor Licht geschützt.
- Nach der Inkubationszeit zweimal mit 1x PBS waschen.
- Verdünnen Sie den sekundären Antikörper, Phalloidin und Hoechst Farbstoff in 4% BSA in 1xPBS
- Aliquotieren Sie 50 μl Tröpfchen der Mischung, die jeweils etwa 1 cm unterhalb der ersten Linie der Deckgläser liegen, wie zuvor getan.
- Lege jedes Deckglas auf ein Tröpfchen.
- 30 min bei Raumtemperatur inkubieren, vor Licht geschützt.
- Nach der Inkubation zweimal mit 1x PBS waschen.
- Waschen Sie einmal mit destilliertem Wasser, um die Salze zu entfernen.
- Montieren Sie die Deckgläser auf einer Glasrutsche mit polymerisierendem Montagemedium.
- Lassen Sie die Deckgläser über Nacht bei Raumtemperatur trocknen, vor Licht geschützt vor der Mikroskopie.
4. Quantifizierungen
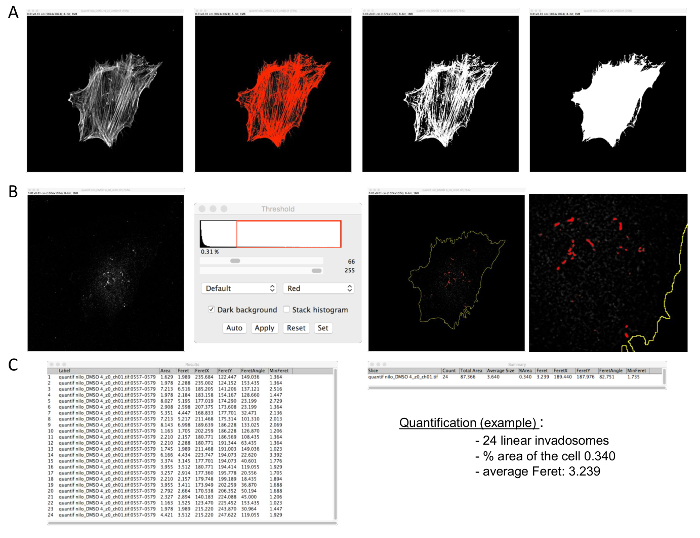
Abbildung 2: Lineare Invadosom-Quantifizierung. Das Makro erfordert konfokale Bilder von F-Aktin und Tks5-Färbung (Format: 1.024 x 1.024). ( A ) Zuerst das F-Aktin-Bild öffnen und eine Maske machen. ( B ) Dann öffne dichDas Tks5 Bild und Schwelle es. Tragen Sie das Makro auf. ( C ) Die analysierten Ergebnisse werden in zwei Tabellen angezeigt. Die Anzahl der linearen Invadosomen pro Zelle und andere Informationen, wie der prozentuale Bereich, der von linearen Invadosomen in der Zelle verwendet wird, befindet sich in der Übersichtstabelle. Die Größe jedes linearen Invadosoms wird in der Ergebnistabelle liegen. Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
- Prozentsatz der Zellen, die lineare Invadosomen bilden
- Zählen Sie die Zellen, die lineare Invadosomen bilden, ungefähr 100 Zellen pro Deckglas (verwenden Sie technische Triplikate). Quantifizieren Sie mindestens 300 Zellen pro n mit n = 3.
- Berechnen Sie den Prozentsatz der Zellen, die lineare Invadosomen bilden, indem Sie den Durchschnitt von drei unabhängigen Experimenten, was zu 900 quantifizierten Zellen führt.
- Lineare Invadosomgröße und Anzahl pro Zelle
- Verwenden Sie ImageJ mit dem zusätzlichen Makro.
- Verwenden Sie drei Deckgläser pro Zustand.
- Nehmen Sie 30 Bilder pro Deckglas von fluoreszierenden Gelatine und Hoechst-gefärbten Kernen.
- Verwenden Sie die ImageJ-Software, wie in Martin KH et al. 9
5. 3D-Kollagen-Invasionstest
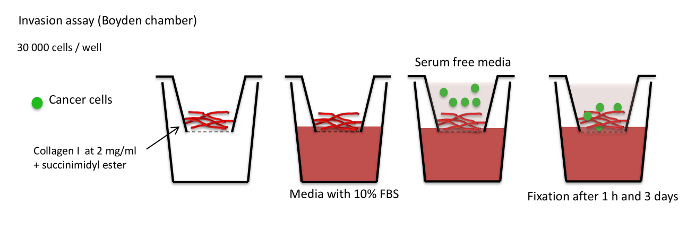
Abbildung 3: Invasionstestschema. Zusammenfassung des Invasionstestprotokolls Kollagen I wird mit Succinimidylester-Farbstoff vernetzt und für 1 h bei 37 ° C polymerisiert. Die Zellen werden in serumfreiem Medium auf den Kollagen-I-Stopfen gegeben. Der Einsatz ist mittig wiTen 10% FBS. Kollagen I-Stöpsel sind 1 h nach Zellsäen in der Kontrolle fixiert und 3 Tage nach Zellsäen im experimentellen Zustand, um die Invasionskapazität der Zellen zu bestimmen. Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
- Kollagen I Stecker Vorbereitung
- Machen Sie einen Zeitverlauf von 4 h, 12 h, 24 h, 48 h und 72 h für das erste Experiment, um die Kinetik der Invasion in das Gel nach dem Zelltyp zu bestimmen. Für jedes Experiment fügen Sie einen 1-Stunden-Zeitpunkt als Referenzzeitpunkt hinzu, wenn keine Invasion auftritt.
- Bereiten Sie die Kollagen-I-Lösung auf Eis unter einer sterilen laminaren Strömungshaube vor. 500 μl Lösung für 3 Boyden Kammereinsätze vorbereiten.
- 1 mg handelsübliches Ratten-Schwanz-Kollagen I einspülen, um eine Lösung mit einer Endkonzentration von 2 mg / ml Kollagen I herzustellen.
- Füge 5-carboxy x Rhodamin-succinimidylester bei einEine Endkonzentration von 1 & mgr; g / ml, berechnet für das Endvolumen der Kollagen-I-Lösung (in diesem Fall 500 & mgr; l).
- Mischen Sie gut und inkubieren Sie für 5 min auf Eis unter der sterilen laminaren Strömungshaube, geschützt vor Licht.
- 50 μl eiskaltes, filtriertes 10X PBS und 6,25 μl eiskaltes 1 M Natriumhydroxid (NaOH) zugeben.
- Addieren Sie steriles Wasser gemäß der Formel 443,75 - x μl Kollagen I.
- 100 μl Lösung pro Boyden-Kammereinsatz zugeben.
- 1 Stunde bei 37 ° C inkubieren, um die Polymerisation zu ermöglichen.
- Addieren Sie Zellkulturmedium, angereichert mit fötalem Rinderserum (FBS) in neue Brunnen; Platzieren Sie Einsätze in diese Brunnen.
- Seed 30.000 Zellen auf dem Kollagen Ich stecke FBS-freies Medium ein.
- Nach dem Kultivieren der Zellen bei 37 ° C fixieren Sie den Kollagen-I-Stopfen für 30 min in 4% Paraformaldehyd in 1x PBS.
- Komplette Immunfluoreszenz wie in Schritt 3, mit Ausnahme der folgenden Schritte: permeabiliZe mit 0,2% Triton X-100 in 1x PBS für 30 min, nicht 10 min; Inkubieren mit primären und sekundären Antikörperlösungen für jeweils 1,5 h, anstatt 40 min bzw. 30 min. Fleck für F-Aktin oder Kerne, um die Zellen zu lokalisieren.
- Nach der Immunfluoreszenz ein Skalpell verwenden, um die Membran des Einsatzes zu schneiden und den Kollagen-I-Stecker vorsichtig auf eine Glasbodenschale zu übertragen. Stellen Sie sicher, dass die Oberseite des Kollagen-I-Steckers mit dem Glas in Berührung kommt. Halten Sie die Einsatzmembran an der Unterseite des Kollagen-I-Steckers befestigt, um die Integrität des Steckers beizubehalten.
HINWEIS: Der Collagen-I-Stecker bleibt in der Glasbodenschale intakt. Die Tiefe zwischen dem Glasboden und dem Kunststoff, der den Glasboden umgibt, entspricht der Dicke des Stopfens. - Legen Sie ein Deckglas auf das Kollagen I-Stecker und montieren mit polymerisierenden Montagemedium, um zu verhindern, dass der Stecker austrocknet.
- Verwenden Sie ein umgekehrtes konfokales Mikroskop, um den Kollagen-I-Stecker abzubilden. die Spitze vonDer Stecker steht mit dem Glasboden der Schale in Kontakt.
- Erwerben Sie einen Z-Stapel von der Oberseite bis zum Ende des Kollagen-I-Steckers, um die Zellinvasion zu visualisieren. Bestimmen Sie die Dicke des Z-Stapels, indem Sie untersuchen, wie tief die Zellen in das Bildgebungsfeld eindringen. Führen Sie Akquisitionen mit einem 40X Ölobjektiv in einem 512 x 512 Format mit einer z-Schrittgröße von 0,25 μm durch.
HINWEIS: Als Referenz ist der durchschnittliche Z-Stack für MDA-MB-231 Zellen 3 Tage nach dem Seeding 30 μm.
- Erwerben Sie einen Z-Stapel von der Oberseite bis zum Ende des Kollagen-I-Steckers, um die Zellinvasion zu visualisieren. Bestimmen Sie die Dicke des Z-Stapels, indem Sie untersuchen, wie tief die Zellen in das Bildgebungsfeld eindringen. Führen Sie Akquisitionen mit einem 40X Ölobjektiv in einem 512 x 512 Format mit einer z-Schrittgröße von 0,25 μm durch.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Unter Verwendung einer Kombination von zwei Arten von Matrizen, Gelatine und Typ I Kollagen ( Fig. 1 und 4 ) haben wir eine neue Art von Invadosom, bekannt als lineare Invadosomen, hervorgehoben. Die Markierung dieser Matrizen ermöglicht die Beobachtung der linearen Invadosomenbildung entlang der Kollagen-I-Fasern und ihrer Abbaubarkeit (Abbildung 5 ). Die Anzahl der invasiven Strukturen kann dann durch das zuvor beschriebene Makro quant...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Klassisch werden Invadosomen in vitro ohne Rücksicht auf die Mikroumgebung und die Matrix untersucht, auf der die Zellen plattiert werden. Mehrere Matrixarten werden derzeit verwendet, einschließlich Gelatine, Fibronectin, Vitronectin oder hochdichtes fibrilläres Kollagen (HDFC) 7 , 11 ; Diese sind jedoch oft nicht repräsentativ für die Mikroumgebung, in der sich Zellen befinden und nicht physiologisch relevant sind. Hier wurde ein neuartiger Matrixtyp ...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben nichts zu offenbaren.
Danksagungen
JDM wurde von einem Doktorandenstipendium von INSERM / Région Aquitaine unterstützt und wird nun von einem Post-Doktoranden-ARC-Stipendium und dem Tisch-Krebs-Institut am Berg Sinai School of Medicine unterstützt. EH wird von einem Doktorat des Ministère de l'Enseignement Supérieur et de la Recherche unterstützt. ZE wird von einem Postdoc-Stipendium von Agence Nationale de la Recherche (ANR) unterstützt. CM wird vom Tisch-Krebs-Institut am Berg Sinai School of Medicine unterstützt und JJBC wird von der NIH / NCI Grant K22CA196750, dem TCI Young Scientist Cancer Research Award JJR Fund und dem Tisch Cancer Institute an der Mount Sinai School of Medicine unterstützt. Diese Arbeit wurde durch einen Zuschuss von ANR-13-JJC-JSV1-0005 unterstützt. FS wird von der "Ligue nationale contre le cancer" unterstützt. VM und FS werden durch die Finanzierung von "Equipe Labellisée Ligue Nationale contre le Cancer 2016" und Institut National du Cancer, INCA_8036 und PLBio2012 unterstützt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Gelatinelösung | Sigma | G1393 | Bestand 20 mg/ml verwendet bei 1 mg/ml |
| Gelatine aus Schweinehaut Oregongrün 488 Konjugat | Molekulare Sondenlebensdauer Technologien | G13186 | 5mg bei 1 mg/ml in sterilem Wasser verdünnt |
| Mikroskopdeckelgläser | Marlenfeld GmbH & Co | 111520 | & Oslash; 12 mm Nr.1 |
| 2,5 % Glutaraldehyd in 0,1 M Natriumcacodylatpuffer pH 7,4 | Elektronenmikroskopie | Wissenschaft 15960 | Bei 0,5 % in sterilem Wasser verdünnen |
| 1x PBS pH 7,4 | Gibco von life technologies | 10010-015 | Verwenden Sie dieses PBS in allen Schritten vor der Fixierung |
| Kollagen I Rattenschwanz | Corning | 354236 | |
| 5 Carboxy X Rhodamin Siccinimidylester | Life Technologies | C-6125 | |
| DPBS 1x + Calcium + Magnesium | Gibco von life technologies | 14040-091 | |
| Paraformaldehyd 16% ige Lösung | Elektronenmikroskopie | Wissenschaft 15710 | Verdünnung bei 4% in 1X PBS |
| Triton X 100 | Sigma | T9284 | |
| 10x PBS Puffer pH 7,4 | Ambion | AM9625 | Verdünnung bei 1X in Wasser Verwendung in Schritten nach Fixierung |
| Tks5 Antikörper | Santa Cruz | sc-30122 | Invadosomenmarker Verdünnung : 1/100 |
| Cortactin 4F11 Antikörper | Millipore | 5180 | Invadosomenmarker Verdünnung :1/100 |
| DDR1 Antikörper | Zellsignalisierung | 5583 | Lineare Invadosomrezeptor |
| Verdünnung :1/100 | |||
| Phalloidin FluoProbes | Interchim | FT-AZ0330 | Fibrillärer Aktinmarker Verdünnung :1/200 |
| Hoechst | Sigma | 33258 | Nucleus Marker Verdünnung :1/200 |
| Sekundärantikörper FluoProbes | Interchim | FP-488 FP-547H oder FP-647H | |
| Albumin aus Rinderserum | Sigma | A2153 | Verdünnung bei 4% in 1X PBS |
| Fluoromount G Eindeckmedium | Interchim | FP 483331 | |
| ImageJ Software | domain | http://www.macbiophotonics.ca/imagej/ | |
| Zellkultureinsatz | Corning | 353097 | 8.0µ m Porengröße / 24 Vertiefungen |
| Natriumhydroxid (NaOH) | Sigma | 221465 |
Referenzen
- Ramaswamy, S., Ross, K. N., Lander, E. S., Golub, T. R. A molecular signature of metastasis in primary solid tumors. Nat. Genet. 33, 49-54 (2003).
- Gilkes, D. M., et al. Collagen prolyl hydroxylases are essential for breast cancer metastasis. Cancer Res. 73, 3285-3296 (2013).
- Linder, S., Wiesner, C., Himmel, M. Degrading Devices: Invadosomes in Proteolytic Cell Invasion. Annu. Rev. Cell Dev. Biol. 27, 185-211 (2011).
- Murphy, D. A., Courtneidge, S. A. The 'ins' and 'outs' of podosomes and invadopodia: characteristics, formation and function. Nat. Rev. Mol. Cell Biol. 12, 413-426 (2011).
- Di Martino, J., et al. Cdc42 and Tks5: a minimal and universal molecular signature for functional invadosomes. Cell Adh. Migr. 8, 280-292 (2014).
- Poincloux, R., Lizarraga, F., Chavrier, P. Matrix invasion by tumour cells: a focus on MT1-MMP trafficking to invadopodia. J. Cell Sci. 122, 3015-3024 (2009).
- Juin, A., et al. Physiological type I collagen organization induces the formation of a novel class of linear invadosomes. Mol. Biol. Cell. 23, 297-309 (2012).
- Juin, A., et al. Discoidin domain receptor 1 controls linear invadosome formation via a Cdc42-Tuba pathway. J. Cell Biol. 207, 517-533 (2014).
- Martin, K. H., et al. Quantitative measurement of invadopodia-mediated extracellular matrix proteolysis in single and multicellular contexts. J. Vis. Exp. , e4119(2012).
- Diaz, B. Invadopodia detection and gelatin degradation assay. Bio-protocol. 3, 1-8 (2013).
- Artym, V. V., et al. Dense fibrillar collagen is a potent inducer of invadopodia via a specific signaling network. J. Cell Biol. 208, 331-350 (2015).
- Schachtner, H., et al. Megakaryocytes assemble podosomes that degrade matrix and protrude through basement membrane. Blood. 121, 2542-2552 (2013).
- Schoumacher, M., Glentis, A., Gurchenkov, V. V., Vignjevic, D. M. Basement membrane invasion assays: native basement membrane and chemoinvasion assay. Methods Mol. Biol. 1046, 133-144 (2013).
- Wolf, K., Muller, R., Borgmann, S., Brocker, E. B., Friedl, P. Amoeboid shape change and contact guidance: T-lymphocyte crawling through fibrillar collagen is independent of matrix remodeling by MMPs and other proteases. Blood. 102, 3262-3269 (2003).
- Geraldo, S., et al. Do cancer cells have distinct adhesions in 3D collagen matrices and in vivo? Eur. J. Cell Biol. 91, 930-937 (2012).
- Monteiro, P., et al. Endosomal WASH and exocyst complexes control exocytosis of MT1-MMP at invadopodia. J. Cell Biol. 203, 1063-1079 (2013).
- Wolf, K., et al. Collagen-based cell migration models in vitro and in vivo. Semin. Cell Dev. Biol. 20, 931-941 (2009).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
