La citometría de flujo es una herramienta poderosa que permite el aislamiento y estudio de poblaciones celulares específicas. Este protocolo describe los pasos para aislar células que expresan LacZ a partir de tejidos cocleares de ratones transgénicos neonatos. Las células cocleares disociadas se marcaron utilizando sustratos conjugados con fluoróforos de β-galactosidasa antes de la separación mediante citometría de flujo.
Se requiere una suscripción a JoVE para ver este contenido. Inicie sesión o comience su prueba gratuita.
Artículo de método
Aislar las células que expresan LacZ de tejidos de ratón del oído interno mediante citometría de flujo
En este artículo
Resumen
Resumen
El aislamiento de tipos celulares específicos permite analizar poblaciones celulares raras, como las células madre o progenitoras. Dicho enfoque para estudiar los tejidos del oído interno representa un desafío único debido a la escasez de células de interés y a la limitada disponibilidad de modelos de ratones transgénicos con reporteros. Aquí describimos un protocolo que utiliza sondas conjugadas con fluorescencia para etiquetar selectivamente células positivas para LacZ procedentes de cócleas neonatales.
La patología subyacente más común de la hipoacusia neurosensorial es el daño irreversible y la pérdida de las células ciliadas sensoriales cocleares, que son necesarias para transducir las ondas sonoras en impulsos nerviosos. Evidencias recientes sugieren que los órganos auditivos y vestibulares de los ratones albergan células madre o progenitoras que podrían tener potencial regenerativo1,2. Estos hallazgos justifican una investigación más profunda, incluyendo la identificación de tipos celulares específicos con características de células madre o progenitoras. Se ha demostrado que la vía de señalización Wnt desempeña un papel fundamental en el mantenimiento de poblaciones de células madre o progenitoras en varios sistemas orgánicos3-7. Recientemente, hemos identificado células que expresan Axin2 y responden a Wnt en la cóclea neonatal, pero su función es en gran parte desconocida8.
Para comprender mejor el comportamiento de estas células sensibles a Wnt in vitro, hemos desarrollado un método para aislar células que expresan Axin2 de cócleas de ratones transgénicos reporteros Axin2-LacZ9. Mediante citometría de flujo para aislar células positivas para Axin2-LacZ de cócleas neonatales, podríamos a su vez realizar una variedad de experimentos en células vivas para investigar su comportamiento como células madre o progenitoras. Aquí describimos en detalle los pasos para la microdisección del cóclea neonatal, la disociación de estos tejidos, la marcación de las células positivas para LacZ mediante un sustrato fluorogénico y la clasificación celular. Se han descrito técnicas para disociar cócleas en células individuales y aislar células cocleares mediante citometría de flujo2,10-12. Hemos realizado modificaciones a estas técnicas para establecer un protocolo novedoso que permite aislar células que expresan LacZ del cóclea neonatal.
Protocolo
1. Microdisección de la cóclea
- Prepare el microscopio de disección bajo la campana aspiradora limpiando las superficies con etanol al 70% y colocando bloques de hielo.
- Prepare 10-15 placas de Petri de 35 mm en condiciones estériles y llénelas hasta la mitad (~2 ml) con solución salina equilibrada de Hank con calcio (HBSS) estéril.
- Prepare dos placas de Petri de 35 mm en condiciones estériles y llénelas hasta la mitad (~2 ml) con solución tampón fosfato estéril 1x (PBS).
- Esterilice la micro-pinza en un tubo cónico Falcon de 50 ml con etanol al 70%.
- En una habitación separada de la campana estéril, use tijeras de iris para decapitar 12-15 ratones posnatales (P) de 0 a 3 días de edad, portadores del gen reportero Axin2LacZ/+, y coloque las cabezas en una placa de Petri de 60 mm sobre un bloque de hielo.
- Utilizando pinzas Dumont #5 y tijeras de iris, extirpe la mandíbula y la lengua y corte a través de la base del cráneo a nivel del paladar.
- Retire la piel sobreyacente de la calota craneal y seccione la base del cráneo insertando las tijeras en la parte inferior del foramen magno hasta el centro del paladar.
- Realice otra incisión con las tijeras de iris desde el borde cortado del paladar hasta la parte superior de la calota craneal en ambos lados, teniendo cuidado de no dañar la cápsula ótica.
- Complete el aislamiento del hueso temporal realizando dos incisiones anguladas a 45 grados que comiencen desde la parte superior del foramen magno y se extiendan hasta el corte coronal en el paladar duro.
- Coloque los huesos temporales aislados en placas de Petri de 35 mm que contengan HBSS sobre un bloque de hielo.
- Recolecte huesos temporales de aproximadamente 12-15 animales sacrificados, para un total de 24-30 huesos temporales.
- Transfiera la placa de Petri con los huesos temporales aislados a la campana de disección estéril previamente preparada (1.1).
- Transfiera cuatro huesos temporales a cada placa de Petri de 35 mm previamente preparada que contenga HBSS (1.2) y colóquelas sobre un bloque de hielo.
- Comience la microdisección utilizando dos pinzas #55 para retirar suavemente la corteza, el bulbo raquídeo y el cerebelo del hueso temporal que recubre la cápsula ótica.
- Sin retirar la cápsula ótica, desprenda partes de la cápsula coclear comenzando por la entrada del nervio vestibulococlear en la cápsula ótica.
- Tras exponer la base de la cóclea, extraiga suavemente la cóclea y los tejidos circundantes. Retire cualquier ganglio espiral residual y la estría vascular comenzando desde la base.
- Transfiera la cóclea a una placa de Petri de 35 mm que contenga PBS sobre un bloque de hielo.
- Para una viabilidad tisular óptima, el tiempo total de disección debe ser inferior a 60 minutos.
- Repita los pasos anteriores con 3-5 ratones silvestres (WT) de P0-P3 como controles para los ratones Axin2-LacZ.
2. Disociación celular (modificado de métodos descritos previamente)2,10
- Coloque 50 μl de PBS estéril en el centro de un pocillo de una placa de cultivo de 6 pocillos sin recubrir.
- Transfiera hasta 20 cócleas Axin2LacZ/+ a cada gota de 50 μl de PBS. Se debe usar una nueva gota de 50 μl de PBS para más de 20 cócleas.
- Caliente previamente alícuotas de 50 μl de tripsina al 0,125 % durante aproximadamente 2 minutos en un baño de agua a 37 °C.
- Añada 50 μl de tripsina precalentada al 0,125 % al PBS que contiene las cócleas.
- Coloque la placa de 6 pocillos a 37 °C durante 8 minutos, teniendo cuidado de no agitarla.
- Para detener la tripsinización, añada 50 μl de inhibidor de tripsina de soja a cada gota de 100 μl.
- Añada adicionalmente 50 μl de medio completo (FM) (IGF-1, EGF, bFGF, HS, ampicilina en DMEM/F12)2.
- Utilizando una punta de pipeta romo de 300 μl y una pipeta p200 ajustada a 125 μl, triture suavemente las células 80 veces, teniendo cuidado de no generar burbujas.
- Tras la trituración de cada gota, añada adicionalmente 200 μl de FM a cada pocillo.
- Pase las células a través de un filtro celular azul Falcon de 40 μm hacia un nuevo pocillo.
- Transfiera las células a tubos estándar Falcon para FACS (quedan aproximadamente 300 μl tras la trituración y filtración).
- Divida las células procedentes de cócleas de tipo salvaje en tres tubos, diluyendo 100 μl con 300 μl de FM en cada tubo. Un tubo se utilizará como control en blanco, otro se tiñirá solo con yoduro de propidio (PI, 1 μg/ml) (no añadir en este paso), mientras que el último se tiñirá con 3-carboxiumbelil β-D-galactopiranósido (CUG, ver 2.15) para detectar la fluorescencia de fondo.
- Coloque 400 μl de células disociadas procedentes de cócleas Axin2-LacZ en cada tubo FACS. Como control solo con CUG, diluya 10 μl de células en 390 μl de FM (ver tubo F en el paso 2.15). Ajuste el volumen de los tubos restantes a 400 μl.
- Incube las células en un incubador húmedo a 37 °C durante 10 minutos.
- Prepare la solución de CUG:
- Prepare 200 μl de CUG para cada tubo FACS que requiera tinción.
- Diluya el CUG en FM 1:50 en un lugar oscuro con exposición mínima a la luz.
- Caliente previamente el CUG diluido a 37 °C durante 3-5 minutos.
- A continuación, añada 200 μl de CUG diluido a cada tubo FACS adecuado. Para los tubos que no deban recibir CUG, añada solo FM (ver 2.15).
- En este punto, debe haber cinco categorías de tubos con los siguientes contenidos (no añada PI en este paso):
- Tipo salvaje: sin CUG ni PI (para compensación, ver pasos 3.5-6)
- Tipo salvaje: solo con PI (para compensación)
- Tipo salvaje: con CUG y PI (para control frente a células Axin2-LacZ)
- Axin2-LacZ: solo con CUG (para compensación)
- Axin2-LacZ: con CUG y PI (para ordenación real de células)
- Axin2-LacZ: con CUG y PI (para análisis de eventos)
- Proteja todos los tubos de la luz e incúbelos en un incubador húmedo a 37 °C durante 25 minutos.
- Prepare una solución fresca de HEPES + suero bovino fetal (FBS) para detener la reacción tras la incubación:
- Diluya 400 μl de FBS recién descongelado en 10 ml de HEPES estéril 10 mM (en PBS) en un tubo Falcon de 15 ml.
- Coloque el tubo en hielo hasta completar el paso 2.16.
- Añada 1,8 ml de solución de HEPES fría a cada tubo FACS bajo una campana estéril con las luces apagadas para minimizar la exposición a la luz.
- Centrifugue las células a 1200 rpm durante 5 minutos.
- Retire el sobrenadante y re-suspenda las células en 300 μl de FM, reuniendo todas las alícuotas para la muestra de ordenación (Axin2-LacZ teñida con CUG y PI).
- Añada PI a cada tubo para alcanzar una concentración final de 1 μg/ml.
- Coloque las células en hielo y protéjalas de la luz.
3. Citometría de flujo
- Utilizamos un BD Aria II equipado con láseres de 488 nm, 633 nm y 407 nm. La detección de CUG se realizó utilizando el láser violeta de 407 nm y la PI con el láser azul de 488 nm en la Instalación Compartida de FACS de Stanford.
- Se requiere un operador capacitado en citometría de flujo. Continúe con el siguiente paso tras calentar los láseres, calibrar los detectores del citómetro siguiendo las instrucciones del fabricante y establecer los parámetros óptimos de ordenación. En nuestra experiencia, el uso de una boquilla de 100 μm optimiza la viabilidad celular para experimentos posteriores.
- Se utilizaron los siguientes parámetros: umbral en 5.000 eventos, velocidad de flujo inferior a 3.000 eventos/segundo, dispersión hacia adelante (FSC) a 125 voltios y dispersión lateral (SSC) a 250 voltios; el canal PE-Cy5 se usó para PI y Cascade Blue para CUG.
- Lave la cámara del citómetro con etanol al 70 % y PBS, dos veces cada uno, en ese orden.
- Comience el análisis con células silvestres sin teñir (tubo A en el paso 2.15). Recolecte 1.000 eventos para determinar la distribución celular en el gráfico de FSC frente a SSC. Si no se desea la dispersión, ajuste los parámetros de FSC y SSC.
- Realice la compensación utilizando células WT sin teñir (tubo A), WT teñidas con PI (tubo B) y células Axin2-LacZ teñidas con CUG (tubo D). La compensación permitirá una mejor discriminación de señales entre las diferentes longitudes de onda del láser.
- Comience el análisis con células silvestres teñidas con PI y CUG (tubo C) y establezca los parámetros de selección para:
- Exclusión de restos basada en el gráfico de FSC frente a SSC.
- Exclusión de dobletes y agregados mediante el gráfico de FSC-altura frente a FSC-área.
- Exclusión de células muertas basada en el gráfico de FSC-área frente a PE-Cy5-área.
- Configure un gráfico de FSC-área frente a Cascade Blue-área con cualquier colocación de puerta.
- A continuación, analice 10.000 eventos del tubo de muestra para ordenación que contiene células Axin2-LacZ teñidas con PI y CUG (tubo F).
- Todas las puertas establecidas con células silvestres deben aplicarse aquí.
- Utilizando los gráficos de las células silvestres, cree puertas para células con alta intensidad de Cascade Blue que representen menos del 1 % del número total de eventos.
- Esta misma puerta de Cascade Blue-alto ahora abarca aproximadamente el 15-20 % de las células en la muestra Axin2-LacZ, identificando así a estas células como Axin2-alto.
- Utilizando el gráfico de análisis de las células Axin2-LacZ, cree una puerta para el 15-20 % de células con menor fluorescencia, denominadas a partir de ahora células Axin2-bajo.
- Basándose en la estrategia de selección mencionada anteriormente, ordene las células en tubos FACS que contengan 500 μl de FM, un tubo para células Axin2-alto y otro para células Axin2-bajo. Asegúrese de que los tubos de recolección estén en una cámara enfriada a 4 °C durante la ordenación.
- Registre el número de células contadas por el citómetro de flujo para cada población.
4. Resultados representativos (ver Figura 2):
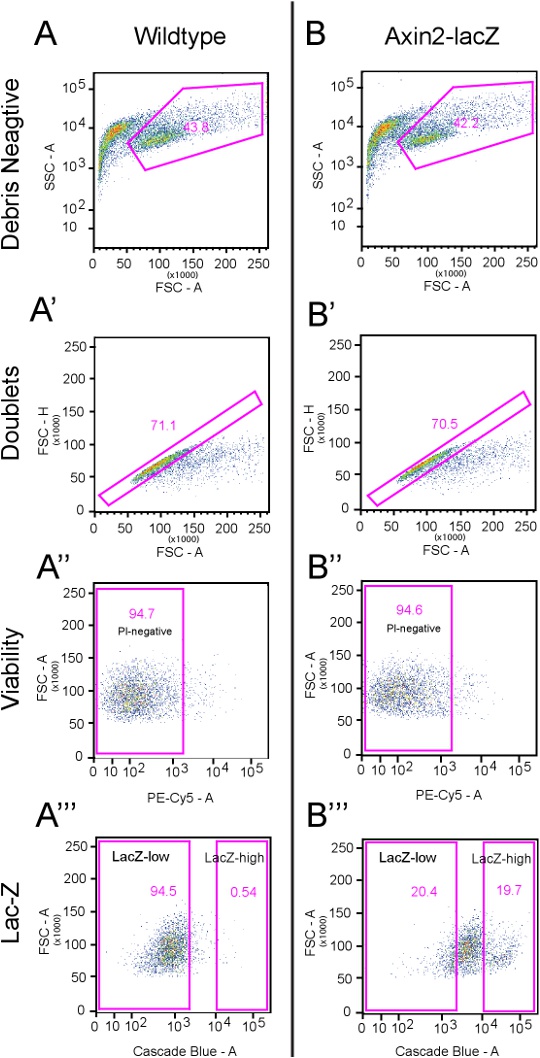
Con el protocolo anterior, normalmente recuperamos entre un 40 y un 45 % de células libres de restos celulares de las cócleas tanto del tipo salvaje como de Axin2LacZ/+ (Figuras 2A y B), con aproximadamente el 70 % de ellas libres de dobletes (véanse las Figuras 2A' y B'). La mayoría de las células clasificadas son viables y no incorporaron yodo de propidio (PI) (~95 %) (Figuras 2A'' y B''). En promedio, el ~20 % superior de células positivas para CUG se consideran células positivas para Axin2-LacZ (Figura 2B''') y equivalen a unas 15 000 células con alto nivel de Axin2-LacZ por cada 10-12 animales.
El análisis de reordenación por citometría de flujo de células con alto contenido de Axin2 reveló una pureza superior al 93 % en el canal Cascade Blue. Para confirmar aún más la identidad de estas células, realizamos una inmunotinción posterior a la clasificación de células con alto y bajo contenido de Axin2 utilizando anticuerpos anti-β-galactosidasa, y encontramos que las células con alto contenido de Axin2 contenían aproximadamente un 93,4 % de células positivas para β-galactosidasa (más de 1.500 células analizadas) y que las células con bajo contenido de Axin2 contenían aproximadamente un 4,8 % de células positivas para β-galactosidasa.
Figuras y tablas:

Figura 1. Paradigma experimental. La figura anterior muestra la estrategia y las técnicas experimentales generales descritas en la sección del protocolo. Se obtuvieron cócleas de ratones silvestres y de ratones Axin2LacZ/+, que se disociaron en células individuales y luego se trataron con CUG, un sustrato fluorescente para la β-galactosidasa. A continuación, las células con alto y bajo contenido de Axin2-LacZ se separaron mediante citometría de flujo. Haga clic aquí para ver una versión de mayor tamaño de esta imagen.


Figura 2. Estrategias de selección (gating). Esta figura ilustra las estrategias de selección utilizadas en citometría de flujo. A) Se analizan aquí células disociadas de tipo silvestre que recibieron el mismo tratamiento que las células Axin2-LacZ, utilizando un total de 10.000 eventos. El primer panel muestra la dispersión lateral en función del área (SSC-A) frente al área de dispersión frontal (FSC-A). Aquí, un grupo distinto de eventos presenta un tamaño mucho mayor que aquellos eventos más cercanos al eje Y. Estos eventos se designan como «Negativos para detritos». La siguiente compuerta, A', analiza las células «Negativas para detritos» del panel A, que representan el 43,8 % del número total de eventos (véase la tabla inferior). En este panel, se utiliza la altura de dispersión frontal (FSC-H) frente al FSC-A para excluir dobletes. Se excluyen los eventos que se desvían del comportamiento lineal esperado del gráfico. Esta preparación suele producir aproximadamente un 70 % de eventos dentro de la compuerta definida, excluyéndose el resto de las células. En el panel A'', el yoduro de propidio (PI), detectado mediante el canal PE-Cy5, se utiliza para marcar las células muertas (5,3 %). En el siguiente panel (A'''), se utiliza el canal azul Cascade para detectar el sustrato fluorescente CUG. Aquí, las compuertas LacZ-alto incluyen menos del 1 % del total de eventos. B) Se analizan aquí células disociadas de ratones Axin2-LacZ tratadas con CUG y PI, utilizando un total de 10.000 eventos. Se aplican aquí compuertas idénticas a las del panel A. B' muestra que el 29,5 % de las células se excluyen como dobletes, mientras que B'' demuestra que el 5,4 % no son viables. Las compuertas iniciales para células LacZ-alto y LacZ-bajo se trazan utilizando el panel B''', estableciendo inicialmente LacZ-alto en un 19,7 % y LacZ-bajo en un 20,4 %. Haga clic aquí para ver una versión de mayor tamaño de esta imagen.
| Número de evento | Porcentaje | ||
| A | Análisis de tipo silvestre | 10,000 | |
| A' | Negativo para detritos | 4,381 | 43,80% |
| A'' | Negativo para dobletes | 3,116 | 71,10% |
| A''' | Negativo para PI | 2,951 | 94,70% |
| LacZ-alto | 16 | 0,54% | |
| LacZ-bajo | 2,790 | 94,50% | |
| B | Análisis de Axin2-LacZ | 10,000 | |
| B' | Negativo para detritos | 4,218 | 42,2% |
| B'' | Negativo para dobletes | 2,973 | 70,50% |
| B''' | Negativo para PI | 2,813 | 94,6% |
| LacZ-alto | 553 | 19,70% | |
| LacZ-bajo | 573 | 20,40% |
Tabla 1. Análisis cuantitativos de las estrategias de selección en la Figura 2.
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Discusión
Estudios de investigación independientes han caracterizado una capacidad regenerativa limitada dentro de los cócleas neonatales2,10,12,13. Mediante el uso de ratones con reportero GFP y citometría de flujo, White y colaboradores aislaron células de sostén cocleares específicas y descubrieron que presentaban características de células progenitoras12.
Se ha demostrado que la vía canónica de Wnt marca poblaciones de células madre o progenitoras en múltiples sistemas orgánico...
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Divulgaciones
No se declararon conflictos de intereses.
Agradecimientos
Agradecemos a S. Heller, K. Oshima, R. Nusse y Y. Zeng por las fructíferas discusiones, y a C. Tang, A. Lee, E. Liaw y al personal de la Stanford Shared FACS Facility por la asistencia técnica. Este trabajo fue apoyado por la Beca de Formación en Investigación Médica del Instituto Médico Howard Hughes, el programa de Médicos Investigadores de la Universidad de Stanford (ambos para T.A.J.), la Beca del Decano de la Universidad de Stanford (para R.C.), la Sociedad Otológica Americana, la Sociedad Triológica, el Premio Percy Memorial, el Fondo de Becarios de Facultad Akiko Yamazaki y Jerry Yang, y NIDCD/NIH K08 DC011043 (todos para A.G.C.).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Placa de Petri, poliestireno, estéril Geriner Bio-one 35 x 10 mm | VWR international | 82050-540 | |
| BD Falcon Filtros para células, estériles, BD Biosciences, azul, 40 μm | VWR international | 21008-949 | |
| Hanks’ Solución salina equilibrada (HBSS). Solución con calcio, magnesio y sin rojo de fenol, estéril | VWR international | 45000-456 | |
| Tubos cónicos para centrífuga Cellstar, de polipropileno, estériles, Greiner Bio-One, 50 ml | VWR international | 82050-346 | |
| Tubos cónicos Cellstar, de polipropileno, estériles, Greiner Bio-One, 15 ml | VWR international | 82050-278 | |
| Suplemento libre de suero B-27 (50x), líquido | Invitrogen | 17504-044 | |
| Suplemento N-2 (100x), líquido | Invitrogen | 17502-048 | |
| bFGF, factor de crecimiento de fibroblastos básico humano | Sigma-Aldrich | F0291 | |
| IGF-1, factor de crecimiento similar a la insulina-1 de ratón | Sigma-Aldrich | I8779 | |
| EGF, factor de crecimiento epidérmico humano | Sigma-Aldrich | E9644 | |
| Dulbecco’s Eagle modificado’s Medio/Ham’s F-12 50/50 Mix: 1X, con L-glutamina y 15 mM HEPES | VWR international | 45000-350 | |
| BD Falcon Tubos cónicos, desechables, de poliestireno, 12x75 | VWR international | 60819-295 | |
| Tripsina, 0,25 % (1X) con EDTA 4Na, líquida | Invitrogen | 25200-056 | |
| ep Dualfilter TIPS 300 μL, 960 TIPS | Eppendorf | 22491245 | |
| Inhibidor de la tripsina, de soja, purificado | Worthington Biochemical | LS003570 | |
| Filtros celulares BD Falcon de 40 μm | BD Biosciences | 21008-949 | |
| Placas multipozo, de poliestireno, Greiner Bio-One, placas no tratadas, 6 pocillos | VWR international | 82050-846 | |
| Kit de detección de beta-galactosidasa LacZ para FACS azul con gen marcador | Tecnologías de Genes Marcadores | M0255 |
Referencias
- Li, H., Liu, H., Heller, S. Pluripotent stem cells from the adult mouse inner ear. Nat. Med.. 9, 1293-1299 (2003).
- Oshima, K. Differential distribution of stem cells in the auditory and vestibular organs of the inner ear. J. Assoc. Res. Otolaryngol. 8, 18-31 (2007).
- Barker, N. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449, 1003-1007 (2007).
- Jaks, V. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat. Genet. 40, 1291-1299 (2008).
- Kalani, M. Y. Wnt-mediated self-renewal of neural stem/progenitor cells. Proc. Natl. Acad. Sci. U.S.A. 105, 16970-16975 (2008).
- Willert, K. Wnt proteins are lipid-modified and can act as stem cell growth factors. Nature. 423, 448-452 (2003).
- Zeng, Y. A., Nusse, R. Wnt proteins are self-renewal factors for mammary stem cells and promote their long-term expansion in culture. Cell Stem Cell. 6, 568-577 Forthcoming.
- Chai, R. Dynamic Expression of Lgr5, a Wnt Target Gene, in the Developing and Mature Mouse Cochlea. J. Assoc. Res. Otolaryngol. , Forthcoming.
- Lustig, B. Negative feedback loop of Wnt signaling through upregulation of conductin/axin2 in colorectal and liver tumors. Mol. Cell Biol. 22, 1184-1193 (2002).
- Diensthuber, M., Oshima, K., Heller, S. Stem/progenitor cells derived from the cochlear sensory epithelium give rise to spheres with distinct morphologies and features. J. Assoc. Res. Otolaryngol. 10, 173-190 (2009).
- Savary, E. Cochlear stem/progenitor cells from a postnatal cochlea respond to Jagged1 and demonstrate that notch signaling promotes sphere formation and sensory potential. Mech. Dev. 125, 674-686 (2008).
- White, P. M., Doetzlhofer, A., Lee, Y. S., Groves, A. K., Segil, N. Mammalian cochlear supporting cells can divide and trans-differentiate into hair cells. Nature. 441, 984-987 (2006).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. J. Neurosci. Methods. 164, 271-279 (2007).
Acceso restringido. Inicie sesión o comience una prueba gratuita para ver este contenido.
Reimpresiones y permisos
