La adición de palmitato reversible a las proteínas es un importante regulador de tráfico intracelular de proteínas. Esto es de particular interés en las neuronas donde muchas proteínas sinápticas se palmitoilada. Nosotros utilizamos un método simple bioquímico para detectar proteínas palmitoiladas en las neuronas cultivadas, que pueden ser adaptados para múltiples tipos de células y tejidos.
Artículo de método
La detección de palmitoilación proteínas en neuronas del hipocampo cultivadas por inmunoprecipitación e Intercambio Acyl-Biotina (ABE)
En este artículo
Resumen
Resumen
Palmitoilación es una modificación post-traduccional de lípidos que implica la unión de un 16-carbono ácidos grasos saturados, palmitato, a residuos de cisteína de las proteínas sustrato a través de un enlace lábil tioéster [revisado en 1]. Palmitoilación de un sustrato de la proteína aumenta su hidrofobicidad, y típicamente facilita su tráfico hacia las membranas celulares. Estudios recientes han demostrado palmitoilación a ser una de las modificaciones lipídicas más comunes en las neuronas 1, 2, lo que sugiere que la rotación de palmitato es un mecanismo importante por el cual estas células regulan la focalización y el tráfico de proteínas. La identificación y detección de sustratos palmitoiladas por lo tanto puede mejorar nuestra comprensión de tráfico de proteínas en las neuronas.
Detección de palmitoilación de proteínas en el pasado ha sido técnicamente impedida debido a la falta de una secuencia de consenso entre proteínas de sustrato, y la dependencia de la metabólico labeling de proteínas con palmitoil-3 H-palmitato, un ensayo bioquímico que consume tiempo con baja sensibilidad. Desarrollo de la acil-Biotina Exchange (ABE) de ensayo permite detectar sensibilidad más rápida y elevada de proteínas palmitoylated 2-4, y es óptimo para medir el volumen de negocios dinámico de palmitato de las proteínas neuronales. El ensayo de ABE se compone de tres pasos bioquímicos (Figura 1): 1) bloqueo irreversible de no modificados grupos cisteína tiol utilizando N-ethylmaliemide (NEM), 2) la escisión específica y desenmascaramiento del grupo tiol de la cisteína palmitoylated de por hidroxilamina (HAM), y 3) el etiquetado selectivo de la cisteína palmitoylated utilizando un reactivo de biotinilación reactivo con tiol, biotina-BMCC. La purificación de las proteínas tiol biotina siguiendo los pasos de EBA ha variado, dependiendo del objetivo general del experimento.
Aquí se describe un método para purificar una proteína de interés en palmitoylated hippocamp primariaal neuronas por una inmunoprecipitación inicial (IP) paso utilizando un anticuerpo dirigido contra la proteína, seguido por el ensayo de ABE y el Western Blot para medir directamente los niveles de palmitoylation de que la proteína, que se denomina el ensayo de IP-ABE. Baja densidad cultivos de neuronas de hipocampo de rata embrionarias se han utilizado ampliamente para estudiar la localización, función, y el tráfico de proteínas neuronales, lo que hace que sean especialmente adecuados para el estudio de palmitoilación de proteínas neuronales utilizando el ensayo de IP-ABE. El ensayo de IP-ABE requiere principalmente IP estándar y reactivos occidentales secante, y sólo está limitado por la disponibilidad de anticuerpos contra el sustrato diana. Este ensayo puede ser fácilmente adaptado para la purificación y detección de proteínas palmitoiladas transfectadas en cultivos de células heterólogas, cultivos neuronales primarios derivados de los tejidos cerebrales distintas de ratón y de rata, y el tejido cerebral incluso primaria misma.
Protocolo
1. Extracción de la proteína diana a partir de neuronas del hipocampo cultivadas primarias
- Antes de cosechar proteína endógena de las células primarias del hipocampo, preparar un tampón de lisis (LB, Tabla 1) con inhibidores de la proteasa. A 10 ml de tampón de lisis, añadir 0,1 ml solución de fluoruro de fenilmetanosulfonilo (PMSF) a una concentración final de 10 mM, y añadir 1 tableta de cóctel inhibidor de la proteasa.
- Preparar N-etilmaleimida (NEM) solución (Tabla 1) a partir de polvo liofilizado. Disolver suavemente en 100% de EtOH a temperatura ambiente (RT). Siempre preparar la solución de NEM fresco para el día del experimento.
- Siguiente combinar el tampón de lisis y NEM. Añadir 0,5 ml de solución de NEM 2 M a un nuevo tubo de 50 ml cónico. Añadir 20 ml de LB sobre la parte superior, y rápidamente LB lugar + NEM (concentración final de 50 mM) en una plataforma oscilante a 4 º C para mezclar completamente durante 5 min. Siempre añadir NEM / EtOH segunda solución primera y LB, así como para mezclar adecuadamente los dos.
- Retire las neuronas cultivadas de incubadora y el lugar en * hielo. Retire con cuidado los medios de comunicación celular, y suavemente lavar dos veces con frío tampón fosfato salino (PBS) 1x. Añadir 300 ml de LB + 50 mM de NEM a la primera y de las neuronas del hipocampo, y células de rascado de utilizar una grúa móvil utilizable. Se recoge el lisado celular, luego se descarga el lisado en el pozo siguiente de ese grupo. Raspe las células dentro del segundo pozo de utilizar la grúa móvil, recoger y repetir con un tercer pozo, si es necesario concentrar aún más el lisado.
- Recoger en un lisado de células pre-enfriada (en hielo), 1,5 ml tubo de microcentrífuga. Repita el paso 1.4 con 100 l de LB + 50 mM NEM para recoger el lisado celular restante. Pase lisado celular total a través de una jeringa de calibre 26 ½ 5-6 veces para ayudar en la lisis mecánica, teniendo cuidado de no soplar burbujas en la solución. Una vez puede someter a ultrasonidos durante 15 s en hielo, si el equipo está disponible. Inclinar la cabeza lisado celular para ≥ 30 min a 4 ° C.
- Aclarar la célula lysaTE por centrifugación a 16.000 xg / min 30, con el fin de pellets no lisados células y el material insoluble en detergente.
- Recoger aclaró lisado celular (sobrenadante) en una nueva pre-enfriado tubo de 1,5 ml en hielo. Repita el protocolo de la cosecha para todos los grupos de células. Medida de la concentración de proteínas en todas las muestras de lisado utilizando ensayo de BCA, y normalizar el volumen de todas las muestras de lisado de grupos de células que tienen la proteína total exactamente igual, con un mínimo recomendado de 500 g. Rellene todas las muestras con LB + 50 mM NEM a 500 l volumen total.
- Añadir 1-5 g de anticuerpo primario dirigido contra la proteína diana para cada muestra de lisado. Inclinar la cabeza las muestras de lisado de anticuerpos mixtos durante la noche a 4 ° C.
* Neuronas primarias de hipocampo de rata se cultivaron a una densidad de aproximadamente 250.000 células / pocillo en una placa de 6-así, en un medio libre de suero que contienen un suplemento B27 neuronal, como se ha descrito previamente 5, y se cultivaron durante el deseod longitud de tiempo, típicamente 14-16 días-in-vitro (DIV) para alcanzar la madurez. Un mínimo de 500 g de proteína total se recomienda con éxito inmunoprecipitar y biotinilar una proteína diana neuronal, que normalmente requiere de 2-3 pocillos de una placa de 6 pocillos.
2. La precipitación de proteína diana unida al anticuerpo
- Antes de la precipitación y la inmovilización de una proteína diana, preparar una suspensión al 50% de proteína A o proteína G-Sepharose perlas recubiertas. Específicamente, añadir ≥ 60 l de perlas de sepharose por muestra a tubos de 1,5 ml, asegurándose de que todas las muestras tienen la misma cantidad de perlas. Las perlas magnéticas también son adecuados si el equipo está disponible.
- Añadir un volumen igual de suspensión al 50% a cada muestra de anticuerpo-lisado, y para inclinar la cabeza ≥ 1 hora a 4 ° C.
3. Acil-Biotina Exchange: hidroxilamina (HAM) Escisión
- Mientras se realiza el paso 2,2, preparar una serie de tubos con tampón de lisis (LB) de diferentes valores de pH. El pH es muy importante para estos pasos y siempre debe ajustarse utilizando un medidor de pH. Preparar 2 ml de LB pH 7,2 por muestra, y 0,5 ml de tampón de estrictos por muestra (Tabla 1). También preparar 0,5 ml de LB + 10 mM NEM por muestra, como en los pasos 1.1-1.3. Añadir PMSF y tabletas de inhibidores de proteasa a todos los tampones de lisis, como en el paso 1,1.
- Hidroxilamina (HAM) es un potente agente reductor, cuya escisión de palmitato de cisteínas se requiere para la biotinilación (Figura 1), y la omisión de la escisión HAM sirve como un control negativo. Dividir cada muestra de perlas en dos muestras, una omitiendo la etapa de escisión HAM (-HAM), y uno que incluye la etapa HAM (+ HAM). Para normalizar la degradación de proteínas causada por el tratamiento HAM, se debe dividir cada muestra en tres partes, con 1/3 de las perlas usadas para el control de la HAM-, y los restantes 2/3 utilizado para el tratamiento HAM +.
- Preparar adicional 1.Tubos de 5 ml en hielo, etiquetados como control de la HAM-para cada muestra. Tras el paso 2.2, suavemente centrifugar todas las muestras de granos "a 0,5 ug / 1 min a 4 ° C (centrífuga a esta velocidad, la duración y la temperatura de todos los pasos que quedan a menos que se indique lo contrario), coloque los tubos en hielo, separar el sobrenadante, y volver a suspender las bolas en 600 l de LB + 10 mM NEM.
- Después de resuspender las perlas de muestras »en tampón de lisis + NEM 10 mM, inmediatamente recoger 200 l de lisado de suspensión de perlas de la muestra, y la descarga en la HAM-que muestra el tubo en hielo. Añadir un adicional de 300 l de LB + NEM 10 mM a la muestra de HAM-, y un adicional de 100 l a la muestra HAM + para un total de 500 l en cada muestra. Incubar los tubos durante 10 min en hielo.
- Vuelva a suspender (lavar) el-HAM HAM + muestras y suavemente con 0,5 ml de tampón estrictas, por ejemplo. Realizar este paso rápidamente, como ya incubación SDS resultará en la eliminación del anticuerpo unido de laperlas.
- Lave cuidadosamente todas las muestras tres veces en 0,5 ml / muestra de pH 7,2 LB, y girar hacia abajo entre los mismos, como en 3.2b paso.
- Mientras se realiza el paso 3,5, preparar un tampón de HAM (Tabla 1). Añadir un volumen apropiado de solución de hidroxilamina a un nuevo tubo, para conseguir una concentración final de 1 M en un volumen de 0,5 ml de LB pH 7,2, por muestra + HAM. Siempre preparar el tampón de HAM fresco para el día del experimento. Añadir 0,5 ml / muestra de pH 7,2 a todos LB-HAM muestras, y 0,5 ml / muestra de tampón de HAM a todas las muestras + HAM.
- Inclinar la cabeza todas las muestras durante 1 hora a temperatura ambiente (RT). No exceda de 1 hora.
4. Acil-Biotina Exchange: Biotina-BMCC Etiquetado
- Mientras se realiza el paso 3,6, preparar 2 ml de LB pH 6,2 por muestra (Tabla 1), como en el paso 3,1. Coloque el pH 6,2 LB en hielo hasta su utilización. También preparar una solución madre de biotina-BMCC (Tabla 1) inmediatamente antes del uso. Pesar exatemente 2,1 mg de biotina BMCC, recoger en un tubo de 1,5 ml, y suavemente se disuelve en 0,5 ml de sulfóxido de dimetilo (DMSO) al colocar en una plataforma de agitación a temperatura ambiente, para lograr la concentración de 8 mM (no utilizar una pipeta para disolver el polvo ).
- Una vez que se haya completado el paso 3.6, lave cuidadosamente las cuentas una vez en tampón de lisis pH 6,2, para eliminar el tampón HAM residual. Eliminar el sobrenadante y colocar las muestras en hielo.
- Biotina-BMCC es una molécula maliemide biotina conjugado que tiene una alta afinidad por los grupos tiol libres de cisteínas (Figura 1). Mientras se realiza el paso 4,2, preparar 0,5 ml de biotina-BMCC Buffer (Tabla 1) por muestra, a una concentración de trabajo entre 0,5 mM a 5 mM. Las concentraciones en exceso de 5 mM probablemente saturar la proteína diana 6, y típicamente no se debe exceder, sin embargo, esto puede variar dependiendo de la proteína diana deseada. Añadir 0,5 ml de biotina-BMCC tampón a cada muestra, y para inclinar la cabeza exactamente 1 hora a 4 ygrados; C. No exceda de 1 hora.
5. La elución de la proteína diana conjugado con biotina y SDS-PAGE
- Una vez que se haya completado el paso 4.3, lave cuidadosamente todas las muestras una vez en LB pH 6,2. Mantenga todas las muestras en hielo entre lavados. Eliminar 2x tampón de muestra SDS sin agentes reductores (Tabla 1) de -20 ° C de almacenamiento y descongelar lentamente en hielo.
- Lave cuidadosamente las muestras tres veces en LB pH 7,5 + PMSF / inhibidores y mantener las muestras en hielo entre lavados.
- Eliminar el sobrenadante del tercer lavado, dejando las perlas sedimentaron en una suspensión con tampón que queda en el fondo del tubo. Sumerja una pipeta con una punta de diámetro pequeño (una punta de carga de gel o punta de pipeta P2 son suficientes) en la parte inferior del tubo a través de la suspensión, y rápidamente recoger el buffer restante, teniendo cuidado de no ocupar ningún perlas.
- Complementa la 2x tampón de muestra SDS con DL-ditiotreitol (DTT) para conseguir una concentración final de 5 mM. Añadir40-50 l de tampón de muestra 2x + DTT 5 mM a cada muestra. Si es necesario, las perlas de vórtice para mezclar completamente con el tampón de muestra, e inmediatamente se centrifuga a alta velocidad para recoger todas las perlas en una pastilla, sumergidos en tampón de muestra.
- Hervir todas las muestras durante 10 minutos a 75-80 ° C. Deje enfriar las muestras a temperatura ambiente durante ≥ 10 minutos sobre mesa de trabajo, y se centrifuga a 16.000 xg / 3 min a pellets totalmente las cuentas.
- Añadir el volumen completo de la proteína eluida (sobrenadante) de cada muestra a un solo carril en un gel de poliacrilamida adecuado para el Western Blot, utilizando SDS-PAGE 7. Organizar todas las muestras de modo que el HAM-eluyente control y eluyente HAM + para una sola muestra se ejecutan inmediatamente adyacentes uno a otro durante SDS-PAGE (Fig. 2). Después de SDS-PAGE, transferencia a una membrana de nitrocelulosa o PVDF.
6. Transferencia de Western y detección de palmitoilación de la proteína diana
- Una vez que se haya completado el paso 5.6, lavar la membranados veces en tampón Tris-solución salina (TBS 1x) durante 10 min en una plataforma de agitación a TA.
- Preparar un tampón de bloqueo para bloquear no específicas etiquetado pesando albúmina de suero bovino (BSA), para lograr 3% en peso en un volumen de TBS 1x + Tween-20 al 0,05% (TBS-T) que es suficiente para sumergir completamente la membrana . Para estreptavidina secante, siempre bloquear con BSA y no leche en polvo. Bloquear la membrana durante 1 hora a temperatura ambiente en una plataforma oscilante.
- Preparar una solución de anticuerpos de TBS-T + 0,3% BSA. Añadir estreptavidina-HRP anticuerpo reconstituido en 1 mg / ml en agua destilada, se diluyó en 1:5,000-1:10,000. Una vez que se ha completado el paso 6,2, lavar la membrana una vez en TBS-T durante 10 min, a continuación, incubar la membrana en solución de anticuerpo de estreptavidina en una plataforma oscilante, ya sea para durante 1 hora a RT, o durante la noche a 4 ° C.
- Se lava la membrana tres veces en TBS-T durante 10 minutos en una plataforma oscilante. Con el fin de detectar la señal de palmitoilación, exponer la luminiscencia HRP utilizando un chemkit sustrato iluminescent.
- Con el fin de normalizar los niveles de palmitoylation a la cantidad de la proteína de interés que se inmunoprecipitó, tira de la membrana utilizando tampón de extracción blot occidental durante 5-10 min en una plataforma de agitación a TA. Repita los pasos 6,1 a 6,4 utilizando el anticuerpo primario contra la proteína de interés que se utilizó originalmente para la inmunoprecipitación.
- Cuantificar palmitoilación de la proteína de interés utilizando el software de análisis de imagen, y normalizar los niveles de palmitoylation a la cantidad de proteína inmunoprecipitada.
Resultados
El ensayo de IP-ABE detecta específicamente tiol palmitoilación de residuos de cisteína a lo largo de proteínas de sustrato, y se puede utilizar para detectar palmitoilación de inmunoprecipitadas proteínas neuronales de una manera representada en la figura 1. Tratamiento de la proteína inmunoprecipitada neuronal con HAM (Figura 1) escinde el enlace tioéster entre el palmitato y el grupo tiol de una cisteína, permitiendo la incorporación específica de biotina-BMCC en el grupo tiol disponible recientemente, que puede ser detectado posteriormente utilizando el Western Blot. La omisión de HAM (minus-HAM) escisión evita la incorporación de biotina-BMCC y funciona como un control negativo para específico palmitoil-biotinilación de la muestra más el HAM-, y por lo tanto debe ser siempre de forma adyacente a la de la muestra más-HAM para el oeste secante por SDS-PAGE (Figura 2).
En un experimento optimizado (Figura 2A), la palmitoilaciónseñal de la proteína neuronal δ-catenina 2 puede ser fácilmente detectado por inmunotransferencia para la biotina-BMCC a una concentración de 1 mM, utilizando estreptavidina conjugada con HRP, contra muestras paralelas minus-plus y HAM-. La señal de palmitoilación específico para δ-catenina aparece con el tamaño predicho de 160kD, sólo en la muestra más-HAM. La especificidad de esta señal fue confirmada por reprobing para δ-catenina con el anticuerpo específico que se usó inicialmente para inmunoprecipitar, resulta en una señal en ambos tratamientos Ham en el mismo tamaño predicho. Optimización del ensayo de IP-ABE (Figura 2A) dará lugar a un perfil de transferencia de Western de una muestra menos HAM-que es fácilmente distinguible de la de la muestra más-HAM, y exhibe mínima a ninguna señal de palmitoilación.
La concentración de biotina-BMCC utiliza para etiquetar cisteínas palmitoiladas requiere la optimización cuidadosa, y si una super-saturación concentración de biOtin-BMCC se utilizan durante las etapas de química ABE (Figura 2B), el fondo excesivo y las señales no específicas serán visibles. Una curva de respuesta lineal para la biotinilación de una proteína palmitoylated neuronal, el receptor nicotínico de la acetilcolina α7, usando biotina-BMCC ha sido determinado previamente 6, y muestra cerca de la saturación completa a una concentración de 5-10 mM. Aunque la concentración óptima de biotina-BMCC se desviará ligeramente en función de la proteína diana neuronal, el tratamiento con biotina-BMCC en una concentración en exceso de 5 mM probablemente super-saturar la proteína diana, y el resultado en un perfil de transferencia de western con el fondo visible y señales no específicas. Una concentración de 0,5 mM para la biotina-BMCC se utilizó anteriormente para detectar palmitoilación de otras proteínas neuronales incluyendo SNAP-25, huntingtina, subunidades del receptor de AMPA y GluA2 Glu-A1, y paralemmin 8, y la determinación de la concentración óptima para una novelaproteína diana puede realizarse por ensayo y error en forma lineal, comenzando en el intervalo de 0.5-5 mM que describimos aquí. Los perfiles resultantes estreptavidina mancha occidental entre las muestras menos y más para HAM-δ-catenina palmitoylation parecen similares cuando se trataron con 4 BMCC biotina (Figura 2B), m con señales de fondo adicionales en diferentes tamaños, lo que indica que biotinilación inapropiado ocurrido.
La hidroxilamina es un potente agente reductor que resulta en la degradación limitada de la proteína diana, además de su escisión eficaz de tioéster de ligamiento. Por consiguiente, la optimización de ABE química requiere una a normalizar la cantidad de proteína inmunoprecipitada utilizado para las muestras minus-plus y HAM-(pasos desde 3,2 hasta 3,3). La normalización implica el uso de la doble de la cantidad de la proteína diana inmovilizada en la plus-vs la muestra minus-HAM, que da lugar realmente a wester indistinguiblesn secante perfiles para la proteína diana, como se muestra para δ-catenina (Figura 2A, B). Sin embargo, si la cantidad de proteína diana inmovilizada no se normaliza entre muestras minus-plus y HAM-, la señal resultante de Western blot para la proteína diana en la muestra más-HAM puede perderse, como se muestra para δ-catenina cuando cantidades iguales de proteína se utilizaron en ambos tratamientos Ham (Figura 2C).
La especificidad de la ABE química para el etiquetado de proteínas palmitoylated es muy sensible y requiere de la optimización. Las trampas comunes encontradas durante el ensayo de IP-ABE incluyen los resultados sub-óptimos que se muestran en las Figuras 2B y 2C, y la degradación de la proteína diana, independientemente del tratamiento HAM, que son causadas típicamente por mayores reactivos y tampones, y pH correctos. Con el fin de evitar estos problemas y para corregir sub-óptima química ABE, la frescura y la concentración de los reactivos necesarios para labuffers listados en la Tabla 1 siempre debe ser examinado, y los ajustes del pH de todas las memorias intermedias siempre se debe comprobar antes de ejecutar el experimento.
| Buffer | Concentración de Trabajo | Comentarios | |
| Lysis Buffer (LB) | En destilada H 2 O: 1% IGEPAL CA-630 50 mM Tris-HCl pH 7,5 150 mM NaCl Glicerol 10% | N / A | Preparar antes del experimento y se almacenan a 4 ° C |
| NEM Solution | En EtOH al 100%: polvo liofilizado NEM | 2 M | Preparar fresco, inmediatamente antes de su uso. |
| Buffer estricta | En LB: 10 mM MEM 0,1% de SDS | N / A | Prepare poco antes de su uso, mantener en hielo. |
| LB pH 7,2 | En LB: Ajustar el pH a 7,2 exactamente | N / A | Use un medidor de pH para ajustar el pH inmediatamente antes de su uso. |
| HAM Buffer | En LB pH 7.2: Solución madre HAM | 1 M (concentración final de HAM) | Preparar inmediatamente antes de su uso. |
| LB pH 6,2 | En LB: Ajustar el pH a 6,2 exactamente | N / A | Igual que para pH 7,2 LB |
| De la biotina BMCC Solution | En DMSO: 2,1 mg Biotina-BMCC solución | 8 mM | Preparar inmediatamente antes de su uso. |
| Biotina-BMCC Buffer | En LB pH 6,2: Añadir biotina BMCC solución | 1 a 5 M (final de biotina-BMCC concentración) | Preparar inmediatamente antes de su uso. |
| 2x SDS muestra de amortiguación, sin agentes reductores | En destilada H 2 O: 5% SDS 5% Glicerol 125 mM Tris-HCl pH 6,8 0,01% azul de bromofenol | N / A | Preparar antes del experimento, y se almacena a -20 ° C hasta su uso. Suplemento con DTT 5 mM antes de su uso. |
Tabla 1. Los tampones y reactivos requeridos para el ensayo de IP-ABE. Muchos de los tampones de lisis se pueden preparar antes de comenzar el experimento, sin embargo el pH debe comprobarse y ajustarse inmediatamente antes de su uso con un medidor de pH, para asegurar el éxito de la química ABE. La mayoría de las soluciones madre deben prepararse de nuevo para cada experimento, inmediatamente antes de su uso. Muchos de los tampones requieren reactivos comunes a la mayoría de los laboratorios equipados para la bioquímica, y reactivos de la especialidad con la información del proveedor se enumeran en la tabla de reactivos y equipos.
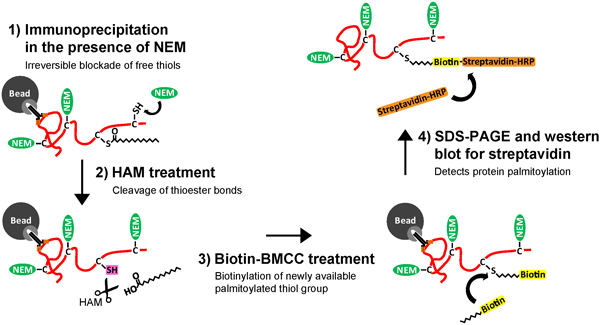
Figura 1. Esquema de la inmunoprecipitación y acil-Biotina análisis de intercambio (IP-ABE) para purificar y detectar palmitoilación de proteínas neuronales. Neuronas del hipocampo cultivadas son lisadas, (1) una proteína diana se purifica a continuación usando un anticuerpo específico de diana, y inmovilizada sobre Sepharose perlas recubiertas con proteína G o A. La proteína diana purificada es entonces (2) se trató con N-ethylmaliemide (NEM) para unirse irreversiblemente y bloquear libres tiol (-SH) a lo largo de cisteínas no modificado (C). La proteína diana es entonces (3) sometido a tratamiento con hidroxilamina (HAM), resultando en la escisión específica de enlaces tioéster en cisteínas palmitoiladas y el desenmascaramiento de un grupo libre de palmitoylated tiol (-SH). A continuación, la proteína diana es (4) treated con una molécula de biotina reactivo con tiol, biotina-BMCC, resultando en la biotinilación específica de la cisteína palmitoilada. Por último, (5) la proteína diana biotinilado se eluye y se elimina del anticuerpo y el talón. La proteína diana con su palmitoylated cisteína (s) marcado con biotina ahora es adecuada para electroforesis en gel de SDS-poliacrilamida (SDS-PAGE) y Western Blot con estreptavidina para detectar por palmitoylation de la proteína purificada neuronal. Haga clic aquí para ampliar la cifra .
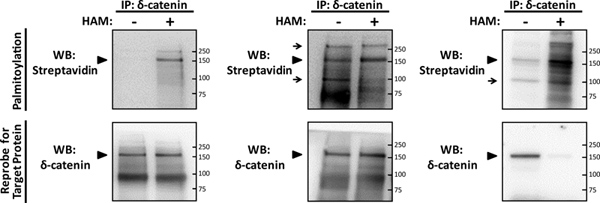
Figura 2. Detección de palmitoilación de la proteína neuronal δ-catenina usando el ensayo de IP-ABE. Neuronas primarias de hipocampo de rata se cultivaron como antesriormente descrito 5, a una densidad de 130 células / mm 2 hasta la madurez a los 14DIV, se lisaron entonces, y se sometió al ensayo de IP-ABE para detectar palmitoilación de un sustrato recientemente identificado palmitoilada neuronal, δ-catenina 2. Purificada inmunoprecipitados (IP) de δ-catenina (proteína diana) se aislaron utilizando 5 g de δ-catenina anticuerpo por muestra (BD Transducción Laboratories), y se sometieron luego a SDS-PAGE en paralelo minus-y más-hidroxilamina (HAM) muestras. Palmitoilación se detectó por Western Blot (WB) con estreptavidina-HRP (palmitoilación), y la membrana fue despojado y se sometió a un WB reprobe para δ-catenina. (A) Un representante optimizado IP-ABE resultado para palmitoylated δ-catenina (punta de flecha) tratados con 1 mM biotina-BMCC, que ilustra la especificidad de ABE química para la detección de tiol-palmitoiladas proteínas a partir de muestras de PI. (B) Un representante sub-óptimasentante IP-ABE resultado de δ-catenina, en el que se utiliza un exceso de concentración de 4 mM biotina-BMCC, resultando en señales no específicas y el fondo en ambas muestras minus-plus y HAM-(flechas). (C) Otro representante sub-óptima IP-ABE WB para δ-catenina, donde se utilizó una excesiva concentración de 4 mM de biotina-BMCC, y la cantidad de proteína utilizada para la muestra más el IP-HAM no se normalizó para la HAM mediada la degradación de proteínas, resultando en una pérdida de señal en el WB para reprobe δ-catenina. Haga clic aquí para ampliar la cifra .
Discusión
El ensayo de IP-ABE se presenta aquí es un método simple y altamente sensible para la detección de proteínas palmitoiladas en neuronas del hipocampo cultivadas primarias, utilizando técnicas bioquímicas estándar en su mayoría. Esto hace que el ensayo fácilmente adaptable para los laboratorios ya equipados con Western Blot materiales. El ensayo de IP-ABE combina un protocolo de inmunoprecipitación estándar para aislar e inmovilizar la propia proteína diana, seguido por la química descrita anteriormente ABE 2-4 para detectar rápidamente los niveles de palmitato en una proteína sustrato. La técnica ABE tiene una amplia gama de aplicaciones para examinar las proteínas palmitoiladas en diversos tejidos y líneas celulares, incluyendo la gran palmitoil-proteómico de detección de perfiles palmitoylation globales, y la rápida detección de los niveles de palmitoylation de una proteína diana única.
Descripciones anteriores de ABE química han utilizado métodos de lisis celular diferente y extracción con detergente de prot neuronaleins 2, 9, tiol libre bloqueo 10, 11, biotinilación, y la purificación de la proteína diana 4, dependiendo de la aplicación del experimento. La adición de palmitato a los resultados de proteínas neuronales en su orientación hacia las membranas celulares, y la detección de la fracción palmitoylated de una proteína diana requiere su extracción a partir de estas membranas. Metodologías previamente descritas ABE han utilizado una variedad de 9 iónico y detergentes no iónicos 8 para extraer las proteínas diana deseadas, y el uso de un detergente en particular depende de la proteína diana y su tráfico de membrana conocida. Aquí, utilizamos la no desnaturalizante y detergente no iónico Igepal CA-630 para extraer las proteínas palmitoiladas, que se han validado para la extracción y detección de la proteína neuronal palmitoylated δ-catenina (Figura 2). La estructura de IGEPAL CA-630 incluye una voluminosos y rígidos no polar grupo de cabeza que no seinterrumpir conformación de la proteína nativa o interacciones, pero que permite su asociación con las regiones hidrofóbicas de las proteínas asociadas a la membrana, lo que confiere a la miscibilidad, y permitir su extracción. Muchas proteínas neuronales localizado en la membrana sináptica o post-sináptica densidad de las sinapsis debe ser extraído por medio de IGEPAL CA-630, sin embargo, algunos no pueden solubilizar completamente, y puede requerir el uso de un diferente no desnaturalizante detergente como Triton X-100, que tiene sido previamente utilizado para ABE química 2, 8.
Varias descripciones de ABE química también han utilizado un diferente reactivo con tiol reactivo de biotinilación de la molécula como se describe aquí, llamada biotina-HPDP (Thermo Scientific), que también requiere un medio diferente de la purificación de proteínas 4. Biotina-HPDP es otro reactivo con tiol, maliemide conjugado molécula de biotina que contiene un enlace disulfuro en el brazo de unión maliemide, estructuralmente differentiating que a partir de biotina-BMCC, que no contenga este enlace disulfuro. Después de tiol-biotinilación de cisteína libre o palmitoylated de una proteína por biotina-HPDP, el enlace disulfuro resultante entre la proteína diana y el grupo de biotina puede ser escindido por la reducción de los reactivos para liberar el grupo biotina y regenerar la proteína en su forma no modificada, haciendo biotinilación por biotina-HPDP transitoria y reversible. Por lo tanto, el uso de este reactivo de biotinilación requiere la purificación de una proteína diana por reactivos de avidina inmovilizada, tales como perlas recubiertas con estreptavidina. Sin embargo, tiol-biotinilación de una proteína diana por biotina-BMCC, como se describe aquí, es estable y relativamente permanente, y requiere la purificación de la proteína diana por un anticuerpo dirigido contra el objetivo, y se inmovilizó en perlas de sefarosa. Ambas técnicas de EBA han sido utilizados previamente para grandes pantallas, y la detección de palmitoilación de proteínas individuales 2, 8-10, 12, y elIP-ABE ensayo como se describe aquí es óptimo para la detección rápida de palmitoylation de un solo objetivo proteínas neuronales.
Una abrumadora mayoría de palmitoilación celular implica la adición reversible de palmitato al grupo tiol de las cisteínas (denominado S-palmitoilación, que se generaliza como "palmitoilación 'en este protocolo), sin embargo un grupo muy limitado de proteínas se someten a palmitoilación irreversible en glicina y residuos de cisteína a través de la formación de enlaces de amida estables, denominado N-palmitoilación 13. Una limitación de ABE química es su incapacidad para detectar N-palmitoilación debido a la estabilidad del enlace amida, y así que la revisión de una proteína nueva diana para palmitoilación debe confirmarse utilizando 3H-palmitato marcado metabólico 1.
Como se mencionó previamente, el ensayo de IP-ABE puede adaptarse fácilmente para el examen de palmitoilación en extractos de proteínas a partir de múltiples fuentes, incluyendo transfected líneas celulares, tejidos heterólogos primaria y cultivos primarios de neuronas de regiones cerebrales múltiples. El ensayo de IP-ABE se ha utilizado para examinar la suficiencia de palmitoilación mutados cisteína-a-serina proteínas para identificar la ubicación de una cisteína palmitoylated a lo largo de una proteína diana 8, para el examen de rotación palmitato dinámica de las proteínas sinápticas en neuronas cultivadas bajo condiciones basales 10, y cambios en los niveles palmitoylation de proteínas neuronales después de la inducción de la actividad neuronal 9. La sensibilidad y la capacidad de adaptación de la prueba IP-ABE hacen ideal para el examen de los perfiles palmitoylation de las proteínas neuronales, y óptima para la detección de los cambios dinámicos en palmitoylation.
Divulgaciones
No hay conflictos de interés declarado.
Agradecimientos
Este trabajo fue apoyado por becas de los Institutos Canadienses de Investigación en Salud MOP-81158.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Nombre del reactivo | Empresa | Número de catálogo | Comentarios |
| IGEPAL CA-630 | Sigma | I8896 | |
| PMSF | Fluka | 93482 | |
| Inhibidor de la proteasa Cocktail | Roche Complete Mini | 11 836 153 001 | |
| NEM | Sigma | E3876 | |
| HAM solución | Sigma | 46780-4 | |
| BCA Protein Assay Kit | Thermo Scientific | 23225 | Asegurar la compatibilidad con detergente elegido |
| Proteína G / A recubierto con perlas de sefarosa | GE Healthcare | 17-6002-35 | |
| Biotina-BMCC | Thermo Scientific | 21900 | |
| Estreptavidina-HRP | Thermo Scientific | 21126 | Reconstituir a 1 mg / ml en agua |
| Western Blot Stripping Buffer | Thermo Scientific | 21059 |
Referencias
- Fukata, Y., Fukata, M. Protein palmitoylation in neuronal development and synaptic plasticity. Nat. Rev. Neurosci. 11, 161-175 (2010).
- Kang, R., et al. Neural palmitoyl-proteomics reveals dynamic synaptic palmitoylation. Nature. 456, 904-909 (2008).
- Drisdel, R. C., Green, W. N. Labeling and quantifying sites of protein palmitoylation. Biotechniques. 36, 276-285 (2004).
- Wan, J., Roth, A. F., Bailey, A. O., Davis, N. G. Palmitoylated proteins: purification and identification. Nat. Protoc. 2, 1573-1584 (2007).
- Xie, C., Markesbery, W. R., Lovell, M. A. Survival of hippocampal and cortical neurons in a mixture of MEM+ and B27-supplemented neurobasal medium. Free Radic. Biol. Med. 28, 665-672 (2000).
- Drisdel, R. C., Alexander, J. K., Sayeed, A., Green, W. N. Assays of protein palmitoylation. Methods. 40, 127-134 (2006).
- Eslami, A., Lujan, J. W. estern Blotting: Sample Preparation to Detection. J. Vis. Exp. (44), e2359(2010).
- Huang, K., et al. Neuronal palmitoyl acyl transferases exhibit distinct substrate specificity. FASEB J. 23, 2605-2615 (2009).
- Noritake, J., et al. Mobile DHHC palmitoylating enzyme mediates activity-sensitive synaptic targeting of PSD-95. J. Cell Biol. 186, 147-160 (2009).
- Thomas, G. M., Hayashi, T., Chiu, S. L., Chen, C. M., Huganir, R. L. Palmitoylation by DHHC5/8 Targets GRIP1 to Dendritic Endosomes to Regulate AMPA-R Trafficking. Neuron. 73, 482-496 (2012).
- Hayashi, T., Thomas, G. M., Huganir, R. L. Dual palmitoylation of NR2 subunits regulates NMDA receptor trafficking. Neuron. 64, 213-226 (2009).
- Ho, G. P., et al. S-Nitrosylation and S-Palmitoylation Reciprocally Regulate Synaptic Targeting of PSD-95. Neuron. 71, 131-141 (2011).
- Iwanaga, T., Tsutsumi, R., Noritake, J., Fukata, Y., Fukata, M. Dynamic protein palmitoylation in cellular signaling. Prog. Lipid Res. 48, 117-127 (2009).
Reimpresiones y permisos
