Este protocolo describe NAME, un ensayo que permite la identificación rápida de moléculas capaces de inhibir in vitro las actividades chaperonas de la proteína nucleocápside del VIH-1.
Artículo de método
El recocido mediada nucleocápside electroforesis (NOMBRE) ensayo permite la identificación rápida del VIH-1 inhibidores de la nucleocápside
En este artículo
Resumen
Resumen
ARN o ADN doblado en el plegamiento tridimensional estable son objetivos interesantes en el desarrollo de fármacos antivirales o antitumorales. En el caso del VIH-1, proteínas virales implicadas en la regulación de la actividad del virus reconocen varios ácidos nucleicos. La proteína de la nucleocápside NCp7 (NC) es una proteína clave que regula varios procesos durante la replicación del virus. NC es de hecho una chaperona desestabilizar las estructuras secundarias de ARN y ADN y facilitar su recocido. La inactivación de Carolina del Norte es un nuevo enfoque y un objetivo interesante para la terapia anti-VIH. El N ucleocapsid A nnealing- M ediated E lectrophoresis (NOMBRE) de ensayo se desarrolló para identificar moléculas capaces de inhibir la fusión y recocido de ARN y ADN doblado en conformaciones tridimensionales termodinámicamente estables, tales como estructuras de horquilla de TAR y elementos CTAR de VIH, por la proteína de la nucleocápside del VIH-1. El nuevo ensayo emplea ya sea la rerecombinante o la proteína sintética, y los oligonucleótidos sin la necesidad de su etiquetado anterior. El análisis de los resultados se logra mediante electroforesis en gel de poliacrilamida estándar (PAGE) seguido de tinción de ácido nucleico convencional. El protocolo se informa en este trabajo se describe cómo realizar el ensayo NOMBRE con la proteína de longitud completa o su versión truncada que carece del dominio N-terminal básico, tanto competente como ácidos nucleicos chaperones, y la forma de evaluar la inhibición de la actividad chaperona NC por un enhebrar intercalador. Por otra parte, NAME se puede realizar en dos modos diferentes, útil para obtener indicaciones sobre el supuesto mecanismo de acción de los inhibidores de la NC identificados.
Introducción
La proteína de la nucleocápside NCp7 (NC) del virus de inmunodeficiencia humana tipo 1 (VIH-1) es una proteína pequeña, básico que está estrechamente asociada con el ARN genómico en el virus infeccioso maduro, jugando un papel fundamental en la replicación del virus como un cofactor durante la transcripción inversa , el reconocimiento del genoma, y el embalaje. 1-3 NC actúa como una chaperona de ácido nucleico catalizar la desestabilización de estructuras estables de ácidos nucleicos y la hibridación de secuencias complementarias. Su actividad de ácido nucleico reside principalmente en la agregación de los 11 aminoácidos del dominio N-terminal, mientras que la actividad de la desestabilización de dúplex se ha mapeado en sus estructuras de dedos de zinc (12-55 peptídicos). 4 La proteína cargada positivamente reduce la barrera electrostática de la reacción de recocido y aumenta la velocidad a la que dos secuencias complementarias separadas se unen.
Los ácidos nucleicos plegadas en la conformación estable requieren las actividades chaperona de la NC a facilitate su recocido 5 Esto es particularmente importante en la transcripción inversa, donde NC es crítico en eventos de transferencia de hebra:. en la transferencia de cadena menos, el ADN parada de cadena menos, sólo retrotranscribed, debe ser transferido y hibrida con una secuencia complementaria en la región R en el extremo 3 'del genoma de ARN de plantilla. 6 Aunque termodinámicamente favorecida, esta reacción no se produce ampliamente en la ausencia de NC debido a la presencia de la estructura estable de la activación trans región sensible (TAR) de ARN en las regiones R, que deben estar asociados a su copia de ADN (CTAR ADN). 7 regiones CTAR y TAR son, de hecho, altamente estructurado con una conformación de piruleta característica. Proteína NC desnaturaliza estas horquillas, y promueve la transferencia de cadena negativa mediante el aumento de la tasa de hibridación intermolecular entre las cadenas de ácido nucleico complementarias. El mecanismo de la NC de recocido de alquitrán y CTAR se ha investigado a fondo y dedescrito como ensayo de recocido TAR en varios trabajos de investigación y la medida propuesta se representa en excelentes críticas. 8-11 resumen, NC desestabiliza la estructura secundaria de ARN estable, como TIE-ARN, desestabiliza la estructura secundaria de su secuencia complementaria, CTAR-DNA , y promueve la reacción de hibridación de ARN / ADN que conduce a TAR / formación de heterodúplex CTAR 10,11. Como resultado, se favorece el paso de cadena de transferencia durante la replicación del VIH. 12
NC es un objetivo atractivo para el desarrollo de nuevos agentes antivirales ya que la posible interferencia inducida por pequeñas moléculas hacia NC resultaría en una reducción de la transcripción inversa del genoma viral como consecuencia de una actividad NC comprometida. 2,13 Este enfoque podría en última instancia conducir al desarrollo de agentes anti-VIH de éxito. En el curso de un cribado de inhibidores de la NC 14 hemos desarrollado un ensayo basándose en las propiedades bien conocidasde nucleocápside desestabilizar de manera eficiente y recocido oligonucleótidos complementarios 10,11. Lo llamamos N ucleocapsid Un nnealing- M ediated lectrophoresis (NOMBRE) ensayo E. NOMBRE ensayo utiliza NC para mediar el recocido entre las copias de manera estable estructurados de ácidos nucleicos complementarios, en nuestro caso del oligonucleótido correspondiente a la parte apical de una secuencia TAR-RNA con su secuencia de ADN complementaria (CTAR) para producir el híbrido TAR / CTAR heterodúplex . El análisis de la TAR / reacción de hibridación CTAR en presencia de NC puede ser investigado mediante electroforesis en gel de poliacrilamida nativa (PAGE).
Este protocolo se muestra cómo realizar el ensayo NOMBRE para recocer rápidamente a temperatura ambiente oligonucleótidos dobladas en estructuras de horquilla estables, la forma de analizar el resultado de la reacción y posible resolución de problemas del experimento. No se solicita el etiquetado radioactivo del ácido nucleico, y detectien las bandas de oligonucleótidos se puede realizar por métodos convencionales de tinción. El ensayo, que emplea ya sea la proteína de longitud completa recombinante o una versión sintética truncada de NC, permite la identificación de intercaladores de roscado que inhiben NC, una actividad demostrado que se correlaciona con fuerte unión a ARN y ADN. 14
Protocolo
1. Preparación del material, Nucleic Acids y Proteínas
- Nucleic Acids
- Autoclave los tubos de 1,5 ml y guárdelos en un recipiente estéril. Realice cada paso usando puntas con filtro estériles para eliminar agentes contaminantes, es decir, nucleasas de consumibles de laboratorio.
- Preparar tampón de 10 mM Tris-HCl pH 7,5 en agua tratada con DEPC y filtrar la solución con un filtro de 0,22 micras de tamaño de poro.
- NOTA: El oligonucleótido llamada "alquitrán" corresponde a la secuencia de ARN corto (29-mer) 5'-GGCAGAUCUGAGCCUGGGAGCUCUCUGCC-3 '15 mientras CTAR es su secuencia complementaria de ADN 5'-GGCAGAGAGCTCCCAGGCTCAGATCTGCC-3'.
- Solubilizar tanto TAR y CTAR en el tampón de Tris antes mencionado (1.1.2.) Para hacer 100 mM de soluciones madre. Tienda CTAR solución madre a -20 ° C (alícuotas se puede almacenar durante meses en estas condiciones). Para el almacenamiento a largo plazo de ARN, hacer 20 ml de alícuotas de la TARsolución madre, seque cada alícuota utilizando un concentrador de centrífuga de vacío y almacenarlos a -80 ° C. Recién antes del uso, resuspender cada alícuota TAR en 20 de agua tratada con DEPC l.
NOTA: TAR alícuotas de trabajo se puede almacenar a -20 ° C durante dos semanas.
- Solubilizar tanto TAR y CTAR en el tampón de Tris antes mencionado (1.1.2.) Para hacer 100 mM de soluciones madre. Tienda CTAR solución madre a -20 ° C (alícuotas se puede almacenar durante meses en estas condiciones). Para el almacenamiento a largo plazo de ARN, hacer 20 ml de alícuotas de la TARsolución madre, seque cada alícuota utilizando un concentrador de centrífuga de vacío y almacenarlos a -80 ° C. Recién antes del uso, resuspender cada alícuota TAR en 20 de agua tratada con DEPC l.
- Proteína NC y (12-55) péptido NC
- Preparar la proteína NC recombinante de longitud completa como se informó. 16 Guarde la solución madre en alícuotas a -20 ° C. Determinar la concentración de proteína exacta con un espectrofotómetro UV-Vis usando un coeficiente de extinción a 280 nm de 6410 M -1 cm -1.
- Resuspender el sintético (12-55) NC péptido en Tris-HCl 10 mM pH 7,5 y almacenar la solución madre en alícuotas a -20 ° C. Determinar la concentración de péptido correcta en un espectrofotómetro UV-Vis usando un coeficiente de extinción a 280 nm de 5700 M -1 cm -1.
NOTA: El péptido (12-55) NC se obtuvo HPLC purificado y liofilizadoilized de una solución que contiene dos equivalentes de cloruro de zinc.
- Compuesto 1
- Pesar aproximadamente 1 mg del compuesto liofilizado 1 usando una balanza analítica y se disuelven en 100 l de DMSO al 100%, oportunamente pesados, para obtener una alta concentración (mM ≈10) solución madre. Determinar la concentración exacta compuesto en un espectrofotómetro UV-Vis utilizando su coeficiente de extinción (a 354 nm: 11387 M -1 cm -1). La solución madre, en la oscuridad a -20 ° C antes de su uso.
2. Configuración del aparato de gel y Fundición del gel
- Para configurar el gel, enjuague dos platos (uno largo y otro más corto) con etanol al 70%, dejar secar, y luego colocar dos espaciadores de 1 mm a lo largo de los bordes largos de la placa más larga; cúbralo con la placa corta, y asegúrese de alinear las dos placas en la parte inferior.
- Para lanzar el gel, siga las instrucciones proporcionadas por el supllier (diferentes proveedores utilizan aparatos ligeramente diferente; abrazaderas sándwich y pilas son proporcionados por cada aparato de fundición). En todos los casos, asegúrese de que las abrazaderas, pilas y las juntas están limpias, y eliminar los restos de acrilamida dejados por los usuarios anteriores.
- Coloque el emparedado de gel montado en el soporte de fundición y seguir las instrucciones específicas por parte del proveedor.
NOTA: Por lo general, una junta de silicona limpia en la parte inferior de la ranura de colada se asegura un buen sello y ayuda a evitar fugas cuando se vierte el gel. - Para comprobar si hay fugas, verter agua destilada utilizando una pipeta entre las placas de vidrio. Agregue agua para llenar el sándwich y esperar algunos minutos para asegurarse de que no se produzcan fugas. Si el sándwich se ensambla correctamente, retire el agua e insertar un papel de filtro entre los dos vasos para secar las gafas. Retire el papel y ahora el sándwich está listo para la fundición de gel.
- Verter gel a temperatura ambiente (RT, 25 ° C). Desde poliacrilamida es altamente neurotóxico, use guantes. Nosotrose continuas 12% geles de poliacrilamida en condiciones no desnaturalizantes (nativos) para llevar a cabo el ensayo NAME.
- Preparar la solución de gel de 12%: mezclar 12 ml de 40% de acrilamida / bisacrilamida (19/1) solución, 4 ml TBE tampón 10x (10x: Tris-HCl 890 mM, borato 890 mM, EDTA 20 mM) y agua 24 ml MilliQ . Añadir 400 APS ly 50 l de TEMED inmediatamente antes de su uso. Mezclar la solución y utilizar rápidamente una pipeta para verter la solución hacia abajo entre las placas de vidrio. Introducir el peine entre las placas de vidrio, evitando las burbujas. Añadir solución de gel para llenar completamente el sándwich.
- Deje que el gel se polimeriza durante 45 minutos a 1 hora. Inmediatamente antes de la carga de muestra, retire el peine y enjuague lentamente pozos a fondo con agua destilada.
- Después de las etapas de polimerización y pozos de enjuague, siga las instrucciones específicas por el proveedor a la sándwich de gel en el aparato de electroforesis en gel vertical. Si un sistema de refrigeración está presente, asegúrese de colocar el sistema de gel en el correct posición de la refrigeración del núcleo.
- Si el sistema está diseñado para manejar más de un gel, pero sólo un gel tiene que ser ejecutado, adjuntar un sándwich de gel como presa de tampón para la refrigeración del núcleo en el otro lado para formar la cámara completa tampón superior.
NOTA: si la presa no se coloca correctamente, el búfer superior se escapará posiblemente detener la carrera gel. - Preparar 2,5 L de tampón de TBE (1x: Tris-HCl 89 mM, borato 89 mM, EDTA 2 mM) en agua desionizada. Apartadme unos 500 ml de tampón TBE para la cámara intermedia superior y vierta el resto en la cámara intermedia inferior. Verter la 500 ml de tampón TBE restante en la cámara de tampón superior.
- Coloque la tapa en la parte superior de la cámara de tampón inferior, de manera que el ánodo y el cátodo están en la posición apropiada.
- Conectar la refrigeración del núcleo, si está presente, a un grifo de agua usando mangueras. Llenar el núcleo con agua del grifo, que actuará como un disipador de calor durante la electroforesis, y dejar que el agua del grifo circule a través del núcleo durante elegidosrophoresis.
Mediada por recocido 3. nucleocápside electroforesis (NOMBRE) Ensayo
- Preparación de tampones
- Preparar tampón TNMG (1x: Tris-HCl 10 mM, NaCl 20 mM, Mg (ClO 4) 2 1 mM, pH 7,5) en agua tratada con DEPC-y filtrar la solución con un filtro de 0,22 micras de tamaño de poro.
NOTA: tampón TNMG se puede almacenar a 4 ° C hasta 7 días. Para obtener los mejores resultados de plegado y de recocido, se recomienda el uso de tampones recién hechos. - Preparar el tampón de carga de gel que contenía SDS (SDS GLB: Tris-HCl 100 mM, EDTA 4 mM, 50% w / v de glicerol, 2% w / v de SDS, 0,05% w / v azul de bromofenol) en agua tratada con DEPC.
NOTA: GLB ayuda a realizar un seguimiento de hasta qué punto las muestras de oligonucleótidos se están ejecutando en el sistema de gel y permite hundir las muestras en el gel. La adición de SDS al GLB es un paso crítico para el éxito óptimo de ensayo NOMBRE. Si no se sigue este paso, no es posible distinguir banda de ácidos nucleicos en la gel sistema (Figura 2).
- Preparar tampón TNMG (1x: Tris-HCl 10 mM, NaCl 20 mM, Mg (ClO 4) 2 1 mM, pH 7,5) en agua tratada con DEPC-y filtrar la solución con un filtro de 0,22 micras de tamaño de poro.
- Controla preparación
- Diluir los oligonucleótidos en serie soluciones madre y utilizar recién hechos 10 mM soluciones para preparar 10 l de una solución 1 M de TAR. Preparar la misma manera, por separado, 10 l de un 1 mM en tampón de CTAR TNMG 1x. Calentar cada tubo a 95 ° C durante 5 min y luego dejar enfriar a RT con el fin de TAR y CTAR a asumir sus estructuras de tallo-bucle-protuberancia.
- Preparar 1 mM solución de TAR híbrido / CTAR como control. Mezclar 1 l de 10 mM TAR con 1 l de 10 mM CTAR en TNMG 1x, en un volumen total de 10 l. Desnaturalizar los oligonucleótidos calentando el tubo a 95 ° C durante 5 min y se deja enfriar lentamente a temperatura ambiente con el fin de TAR para hibridar con su secuencia complementaria CTAR y para formar el TAR de doble cadena híbrida / CTAR.
- Cuando las soluciones se enfriaron a RT, realizar una centrifugación corta-spin. Añadir 3 l de GLB SDS, eac pipetah solución dentro del tubo 3 veces y poner el tubo en hielo. Mantenga las muestras de control constante en hielo hasta la etapa de carga.
- Preparación de muestras para analizar la proteína NC y (12-55) actividad del péptido NC
- Utilice 2,5 l de solución recién hecha oligonucleótido 4 mu M para cada muestra. Prepare siempre una pequeña cantidad en exceso de cada solución para evitar los errores de pipeteo. Doblar 32,5 l de solución 4 mM de TAR y, por separado, de CTAR en tampón 1x TNMG como se informó para la preparación controles anteriormente mencionado (paso 3.2.1.).
- Diluir la solución madre de ambas proteínas NC y el péptido (12-55) NC 80 mM solución con agua MilliQ.
- Cuando las soluciones de alquitrán y CTAR se enfrió a ta, realizar una centrifugación a corto giro de ambos tubos y comenzar la preparación de los tubos de muestras.
- Preparar 12 vacíos tubos de 0,5 ml en autoclave. Coloque 3 filas de 4 tubos en el rack para muestras de laboratorio. Cada fila indica respectivamente las muestras para analizar ªe proteína NC de larga duración, las muestras sin proteína y las muestras para analizar el (12-55) actividad péptido NC.
- Siempre reemplace consejos cada vez que se utiliza un reactivo diferente.
- Añadir en cada tubo 2,5 l de TAR plegada y 2,5 l de plegado CTAR. Añadir 4 l de agua tratada con DEPC a las muestras para el análisis de NC y de (12-55) NC. Añadir 5 l de agua tratada con DEPC a las otras muestras.
- Añadir 1 l de 80 mM NC o 1 l de 80 micras (12-55) NC a las muestras, respectivamente, NC o (12-55) análisis NC.
- Añadir inmediatamente 3 l de GLB SDS a las muestras min tiempo 0 (reportados como 0 'en la Figura 1), pipeteando la solución en el interior de cada tubo 3 veces, y finalmente poner el tubo en hielo. Repita este paso para todas las muestras y controles. Mantenga las muestras constante en hielo hasta la etapa de carga.
- Después de 15 minutos, 30 minutos y 1 hora de incubación a temperatura ambiente, añadir 3 l de GLB SDS, pipeta la solución dentro eactubo h 3 veces y poner el tubo en hielo. Repita este paso para todas las muestras y controles, respectivamente, y mantener en hielo hasta la etapa de carga.
- Retirar la tapa del aparato de gel. Cargar 13 l de cada muestra en los pocillos formados como se describió previamente por colada del gel con un peine de formación de bien. Cargar las muestras siguiendo el orden reportado en la Figura 1.
- Vuelva a colocar la tapa del aparato de gel. Conecte los cables del aparato de gel para la fuente de alimentación. Compruebe que los electrodos se conectan en las ranuras correctas en la fuente de alimentación.
- Encienda la alimentación y ejecutar el gel durante 2 horas y 30 min a un voltaje constante de 200 V, hasta que el colorante ha migrado a 1,5 cm por encima de la parte inferior del gel.
- Preparación de muestras para analizar la actividad de antraquinona en Carolina del Norte y (12-55) NC
- Diluir la solución madre de compuesto 1. Preparar 10 l de la 500 mM, 250 mM, 50 mM, dilución 5 M de compuesto 1 en agua MilliQ.
- Preparar las muestras de control como se informó anteriormente (apartado 3.2.).
- Utilice 2,5 l de solución recién hecha oligonucleótido 4 mu M para cada muestra. Prepare siempre una pequeña cantidad en exceso de cada solución para evitar los errores de pipeteo. Doblar 27,5 l de solución 4 mM de TAR y, por separado, de CTAR en tampón 1x TNMG como se mencionó anteriormente (paso 3.2.1.).
- Diluir la solución madre de tanto la proteína NC y el péptido (12-55) NC a 80 mM solución en agua.
- Cuando las soluciones de alquitrán y CTAR se enfrió a ta, realizar una centrifugación a corto giro de ambos tubos y comenzar la preparación de las muestras.
- Preparar 20 vacíos tubos de 0,5 ml en autoclave. Coloque 2 filas de 10 tubos cada uno en el bastidor para muestras de laboratorio.
- Siempre reemplace consejos cada vez que se utiliza un reactivo diferente.
- Añadir todos los tubos de la primera fila con 2,5 l de TAR plegada. Añadir todos los tubos de la segunda fila con 2,5 l de plegado CTAR.
- Añadir 2 l de compuesto apropiado 1 de dilución (aumento de la concentración de los 5 M a la dilución 500 m) para TAR y al CTAR. Reemplazar compuesto con agua en las muestras para el análisis de NC y (12-55) NC en ausencia de compuesto. Se incuban las muestras durante 15 min a RT.
- Después de 15 minutos de incubación, mezclar las muestras CTAR (tubos de segunda fila) con las muestras TAR corresponsal (tubos de primera fila).
- Añadir 1 l de 80 mM NC o 1 l de 80 mM (12-55) NC a las muestras de Carolina del Norte o (12-55) el análisis NC, respectivamente.
- Después de 15 minutos de incubación, añadir 3 l de GLB SDS, pipetear cada tubo 3 veces y poner el tubo en hielo. Repita este paso, respectivamente, utilizando las muestras para NC y (12-55) análisis NC. Mantenga las muestras constante en hielo hasta la etapa de carga.
- Retirar la tapa del aparato de gel. Cargar 13 l de cada muestra en los pocillos. Cargar las muestras siguiendo el orden reportado en la figura3B Ure.
- Vuelva a colocar la tapa del aparato de gel. Conecte los cables del aparato de gel para la fuente de alimentación. Compruebe que los electrodos se conectan en las ranuras correctas en la fuente de alimentación.
- Encienda la alimentación y ejecutar el gel durante 2 horas y 30 min a un voltaje constante de 200 V, hasta que el colorante ha migrado a 1,5 cm por encima de la parte inferior del gel.
- Preparación de la muestra: el modo de oligo-preincubación vs modo NC-preincubación
- Diluir el compuesto 1 solución madre. Preparar 10 l de los 500 m, 250 mM, 50 mM, 5 mM de dilución de compuesto 1 en agua MilliQ.
- Preparar las muestras de control como se informó anteriormente (apartado 3.2.).
- Utilice 2,5 l de solución de oligonucleótido 4 mu M para cada muestra. Prepare siempre una pequeña cantidad en exceso de cada solución para evitar los errores de pipeteo. Doblar 27,5 l de solución 4 mM de TAR y, por separado, de CTAR en tampón 1x TNMG como se mencionó anteriormente (paso 3.20.1.).
- Diluir la solución madre de tanto la proteína NC y el péptido (12-55) NC a 80 mM solución en agua.
- Cuando las soluciones de alquitrán y CTAR se enfrió a ta, realizar una centrifugación a corto giro de ambos tubos y comenzar la preparación de las muestras.
- Siempre reemplace consejos cada vez que los reactivos se cambian o si cualquier otro líquido o solución contenida en el tubo de reacción se toca.
- A partir de este paso en asegurarse de etiquetar y separar las muestras de los dos procedimientos de pre-incubación diferentes claramente.
- Modo Oligo-preincubación
- Preparar 10 vacíos tubos de 0,5 ml en autoclave. Coloque 2 filas de 5 tubos en el rack para muestras de laboratorio.
- Añadir en cada tubo de la primera fila 2,5 l de TAR plegada. Añadir en cada tubo de la segunda fila 2,5 l de plegado CTAR.
- Añadir 2 l de el compuesto apropiado 1 de dilución (aumento de la concentración de los 5 M a la dilución 500 m) para TAR y al CTAR.Reemplazar compuesto con agua en las muestras para el análisis de NC en ausencia de compuesto. Se incuban las muestras durante 15 min a RT.
- Después de 15 minutos de incubación, tomar las muestras CTAR (segunda fila) y ponerlos con las muestras TAR corresponsal (primera fila).
- Añadir 1 l de 80 mM NC a cada muestra e incubar las muestras durante 15 min a TA.
- Después de 15 minutos de incubación, añadir 3 l de GLB SDS, pipetear cada tubo 3 veces y poner el tubo en hielo. Mantenga las muestras constante en hielo hasta la etapa de carga.
- Modo NC-preincubación
- Preparar 5 vacías tubos de 0,5 ml en autoclave y colocarlos en el bastidor para muestras de laboratorio.
- Añadir en cada tubo 4 l del compuesto 1 dilución apropiada (aumento de la concentración de la 5 M a la dilución 500 mM). Reemplazar compuesto con agua en las muestras para el análisis de NC en ausencia de compuesto.
- Añadir en cada tubo 1 l de 80 μ; M NC e incubar las muestras durante 15 min a TA.
- Mezclar 15 l de TAR plegado con 15 l de plegado CTAR en un tubo y utilizar esta solución TAR + CTAR en la siguiente etapa.
- Después de 15 min de incubación, añadir a cada muestra 5 l de la solución mezcla de TAR + CTAR e incubar las muestras durante 15 min a TA.
- Después de 15 minutos de incubación, añadir 3 l de GLB SDS, pipetear cada tubo 3 veces y poner el tubo en hielo. Mantenga las muestras constante en hielo hasta la etapa de carga.
NOTA: A partir del paso 3.5.8 en adelante, el análisis se puede realizar con todas las muestras (curriculum vitae de 3.5.7).
- Modo Oligo-preincubación
- Retirar la tapa del aparato de gel. Cargar 13 l de cada muestra en los pocillos. Cargar las muestras siguiendo el orden indica en la figura 4.
- Vuelva a colocar la tapa del aparato de gel. Conecte los cables del aparato de gel para la fuente de alimentación. Compruebe que los electrodos se conectan en las ranuras correctas en el supl podery.
- Encienda la alimentación y ejecutar el gel durante 2 horas y 30 min a un voltaje constante de 200 V, hasta que el colorante ha migrado a 1,5 cm por encima de la parte inferior del gel.
4. Quitar el gel y gel de tinción
- Después de la electroforesis, apague la fuente de alimentación y desconecte los cables eléctricos. Cierre el grifo de agua del sistema de refrigeración y desconecte las mangueras del núcleo.
- Retire la tapa, y, si el sistema se enfrió, retire la refrigeración del núcleo y verter el tampón de ambas cámaras.
- Desensamblar suavemente el sándwich de gel del aparato y eliminar todas las abrazaderas de las placas de vidrio. Para retirar el gel de las placas, empujar uno de los espaciadores fuera al lado de las placas y girar suavemente para tirar hacia arriba y lejos de la placa de vidrio superior. Sujete dos esquinas del gel y lo despega suavemente para retirarla de la copa.
- Colocar el gel en un recipiente adecuado con la solución de tinción de ácidos nucleicos deseada para30-45 min con agitación.
- Después de la tinción, poner el gel en un transiluminador sistema de imágenes para detectar ácidos nucleicos señal de fluorescencia en el sistema de gel.
Resultados
La Figura 1 muestra un resultado representativo del ensayo de la nucleocápside Recocido mediada por Electroforesis (NAME), realizado i) con la proteína recombinante de longitud completa, ii) sin la proteína, es decir, la mezcla CTAR + TAR y la incubación de hasta 1 hora a RT, y iii ) el mismo ensayo realizado con (12-55) NC, un péptido sintético que carece de los 11 aminoácidos del dominio N-terminal. El TAR pre-doblado y CTAR se mezclaron y la formación de la TAR heterodúplex recocido / CTAR fue controlado en la presencia de la NC de longitud completa recombinante (carriles de la izquierda de la Figura 1), en ausencia de proteína (carriles centrales en la Figura 1 ), y en presencia de los (12-55) de péptido NC (carriles truncan por la derecha en la Figura 1). Los controles son: plegados CTAR, TAR dobladas, y recocidos híbrido (TAR / CTAR), obtenida a través de la desnaturalización térmica de las estructuras plegadas de forma estable TAR a CTAR seguido de su annealin lentog. 14
La capacidad de NC para desnaturalizar dos secuencias de ácidos nucleicos estables en la hélice heterodúplex extendida es claramente evidente: la proteína NC de longitud completa lleva inmediatamente a la formación de la TAR / CTAR híbrido: 0 'indica el tiempo mínimo que pasa entre la adición de NC de las muestras y la adición de tampón de carga de gel, que se detiene la reacción; formación completa ya se alcanza después de 15 'el tiempo de incubación. El aumento en la intensidad de la heterodúplex recocido es paralela a la disminución en la intensidad de los CTAR y TAR oligonucleótidos plegadas. La formación de heterodúplex se consigue también en la presencia de la forma truncada, es decir, el (12-55) NC, lo que confirma la actividad biológica del péptido sintético. En ausencia de la proteína o del péptido no se observa la formación de heterodúplex, y TAR y los oligonucleótidos CTAR no recocer a temperatura ambiente en el heterodúplex (Figura 1). Entodos los experimentos, la rápida formación de intermedios inestables ("complejos intermedios" en la Figura 1) que disminuyen con el tiempo se observa, de manera coherente con el mecanismo propuesto de la línea de cambio a través de las horquillas de CTAR y TAR hasta que los ácidos nucleicos plegamiento correcto. 17
Una posible solución de problemas del experimento es la falta de SDS en el Gel Loading Buffer. En ausencia de SDS en el GLB se muestra el resultado de la reacción en la Figura 2 y se compara con el resultado con GLB + SDS. El TAR pre-doblado y CTAR se mezclaron y se incubaron durante 3 horas a RT por 3 horas a 37 ° C con la proteína NC recombinante de longitud completa. Después de la incubación las muestras se dividieron en dos: a uno tampón de carga media gel sin SDS (GLB) se añadió, mientras que a la otra mitad GLB estaba con SDS (SDS GLB). Las muestras se cargaron en el gel, y la posición de los ácidos nucleicos bandas se visualizaron después de la gel dirigido portinción de colorante. Cuando NC estaba presente, pero las muestras se cargaron con GLB, todos los ácidos nucleicos bandas se desplazan hacia arriba: se espera e indica una fuerte unión entre la proteína y los ácidos nucleicos. Los resultados con SDS GLB se muestran en la extrema derecha del gel: la adición de SDS desnaturaliza la proteína y libera los ácidos nucleicos a partir del complejo estable con la proteína, lo que permite la comparación con los controles.
El ensayo nombre se utiliza para evaluar la capacidad de enhebrar intercaladores para estabilizar estructuras de ácido nucleico dinámicos e inhibir la actividad chaperona NC. 14 intercaladores de roscado son moléculas aromáticas planas sustituidos por cadenas laterales voluminosas situadas en los sitios opuestos del sistema de anillos, tales como la antraquinona muestran en la Figura 3A. 18 Estos intercaladores son capaces de hilo a través de la doble hélice de los ácidos nucleicos, finalmente, la localización de sus cadenas laterales en cada ranura de la doblehélice. 19,20
La Figura 3B muestra el resultado del ensayo NOMBRE en presencia de compuesto 1, un intercalador de roscado conocida, 18 en presencia de NC de longitud completa o del péptido truncado. En ambos casos, la formación del híbrido TAR / CTAR por NC se reduce al aumentar la concentración del intercalador, mientras que, al mismo tiempo, la cantidad de alquitrán libre y aumenta CTAR. La forma truncada de la proteína que carece de la cola N-terminal (12-55NC) es más sensible a la inhibición de su actividad: esta diferencia se verificó con todos los compuestos ensayados hasta ahora.
El ensayo NOMBRE se puede realizar de dos maneras, ya sea por pre-incubación del compuesto de prueba con NC, seguido de la adición de los oligonucleótidos plegados (modo NC-preincubación), o preincubando el compuesto de ensayo durante 15 min con los sustratos de ácido nucleico plegadas , seguido por la adición de NC y una incubación adicional durante 15 min (oligo-prmodo de eincubation). Aunque el tiempo total de incubación es de la misma en los dos modos diferentes, la preincubación con los oligonucleótidos plegadas antes de la adición de la NC permite más tiempo para el enhebrado de los intercaladores en el ácido nucleico plegada. Esto da lugar a una estabilización más fuerte de sus estructuras dinámicas y en una inhibición más fácil de las actividades de chaperonas NC. El análisis del ensayo NOMBRE en los dos modos, por tanto, mejora las diferencias en el mecanismo de acción de los inhibidores de Carolina del Norte, como se muestra en la Figura 4: cuando el compuesto 1 se analizó por su nombre en el modo de oligo-preincubación (Figura 4, los carriles de la izquierda) que muestra la inhibición potente de recocido mediada por NC, mientras que la inhibición mucho más baja se observó en el modo NC-preincubación (Figura 4, carriles a la derecha). Tenga en cuenta que para la determinación de las concentraciones inhibitorias mientras cribado series de compuestos relacionados con este ensayo y en estas condiciones, cada una expeción debe ser realizado al menos por triplicado utilizando concentraciones muy próximas entre sí (sobre todo en torno al valor IC 50). 14
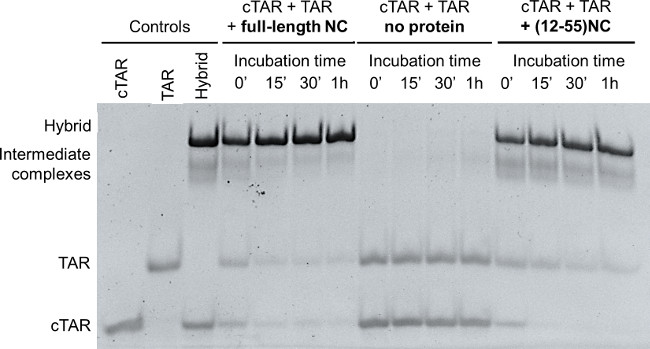
Figura 1:. NOMBRE ensayo con larga duración NC y con la truncada (12-55) NC TAR Doblado y CTAR, cada 1 mM, se incubaron con NC recombinante o con (12-55) NC (oligos / CN = 1 / 8) para 0 min, 15 min, 30 min y 1 h. TAR y CTAR se incubaron en ausencia de proteína (0 min, 15 min, 30 min y 1 h) se utilizaron como control negativo. TAR doblado, plegado CTAR y el TIE híbrido / CTAR obtuvieron después de la desnaturalización térmica seguido se usaron in vitro de recocido como controles. Las reacciones se detuvieron a continuación, utilizando GLB SDS. Las muestras se resolvieron en un gel de poliacrilamida al 12% en TBE 1X; después de ácidos nucleicos de electroforesis en el gel se tiñeron y se detectó en un transiluminador.
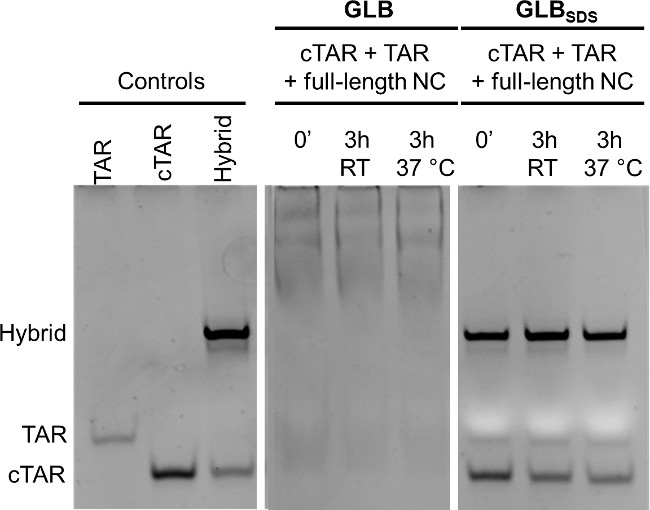
Figura 2:. Efecto de SDS en tampón de carga de gel (GLB) al analizar TAR / CTAR de recocido por NC TAR y CTAR, dobladas en TNMG 1x, se incubaron con recombinante de longitud completa NC (oligos / NC = 1/8) para 3 hr a temperatura ambiente o a 37 ° C. GLB o GLB SDS a continuación, se añadieron a las muestras incubadas con NC. Controles: TAR, CTAR y el TIE híbrido recocido / CTAR (cada 1 M). Se realizó la electroforesis utilizando un gel de poliacrilamida al 12% en TBE 1x; después de ácidos nucleicos de electroforesis en el gel se tiñeron y se detectó en un transiluminador. Esta cifra se ha modificado desde la figura S4 de:. Sosic, A. et al Diseño, síntesis y evaluación biológica de TAR y aglutinantes CTAR como el VIH-1 inhibidores de la nucleocápside MedChemComm 4, 1388-1393, doi:. 10.1039 / c3md00212h (2013) .
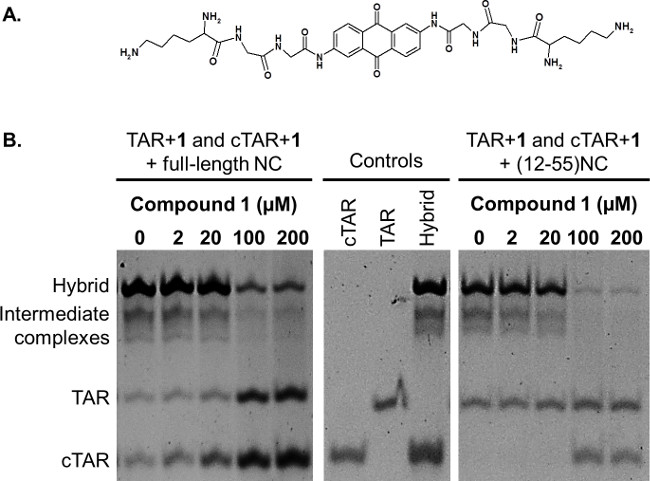
Figura 3: (A) Estructura química del intercalador roscado 1. (B) Efecto de enhebrar intercalador 1 evaluada mediante el ensayo de NAME. Plegada TAR y CTAR, cada uno 1 mM, se incubaron en presencia de las concentraciones indicadas de compuesto 1 con la longitud completa NC o con el (12-55) NC, cada 8 M. TAR doblado, plegado CTAR y el TIE heterodúplex ampliada / CTAR se utilizaron como controles. Las reacciones se detuvieron a continuación, utilizando GLB SDS. Las muestras se resolvieron en un gel de poliacrilamida al 12% en TBE 1X; después de ácidos nucleicos de electroforesis en el gel se tiñeron y se detectó en un transiluminador.
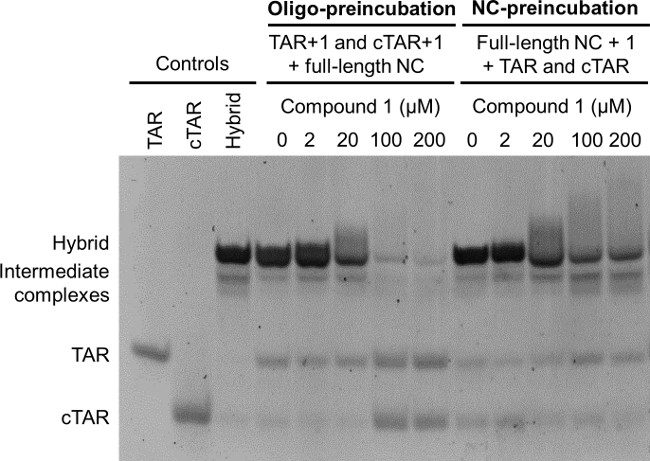
Figura 4: Oligo-preincubación modos versus NC-preincubación: efectos sobre el ensayo NOMBRE Oligo-preincubación mod.e: TAR doblada y plegada CTAR, cada uno de 1 M, se preincubaron con las concentraciones indicadas de la intercalador roscado 1 durante 15 min, y luego durante otros 15 min en presencia de la longitud completa NC (8 M) NC-preincubación. modo: las concentraciones indicadas de la intercalador de roscado 1 se preincubaron con la longitud completa NC (8 mM) durante 15 min, y luego durante otros 15 min en presencia de TAR doblado y plegado CTAR, cada uno 1 mM. TAR doblado, plegado CTAR y el TIE heterodúplex ampliada / CTAR se utilizaron como controles. Todas las reacciones se detuvieron finalmente usando GLB SDS. Las muestras se resolvieron en un gel de poliacrilamida al 12% en TBE 1X; después de ácidos nucleicos de electroforesis en el gel se tiñeron y se detectó en un transiluminador.
Discusión
NOMBRE es un ensayo que permite evaluar rápidamente la inhibición de la actividad chaperona de la proteína de la nucleocápside del VIH-1, un objetivo interesante en la búsqueda de nuevos fármacos anti-VIH. NC hibrida rápido y en ácidos nucleicos temperatura ambiente cuyo plegado estable de otro modo requeriría desnaturalización térmica a alta temperatura seguido por cuidado de recocido. El ensayo se puede realizar con cualquiera de longitud completa NC o con el truncado (12-55) NC: en ambos casos, los dos ácidos nucleicos (ARN y su copia de ADN complementario) se hibridan rápidamente. Esto es consistente con la observación literatura con el péptido NC truncada: recocido se inicia por la fusión eficaz del tallo de CTAR seguido por la interacción de su bucle apical complementaria, que es un sitio de unión débil NC, con la secuencia complementaria de bucle apical TAR, terminando través de varios intermedios inestables al híbrido recocido extendida. 21
NC es un prot muy establemientras que podrían ocurrir NOMBRE realizar ein y pocos problemas. Es muy importante, sin embargo para agregar SDS recién hechos en la carga de gel tampón usado para detener la reacción: Si esto no se logra, el gel no mostrará las bandas de ácido nucleico en las posiciones correctas. De hecho, NC es una proteína de unión a ácido nucleico, de modo que para visualizar correctamente TAR / CTAR heterodúplex mediante electroforesis en gel de SDS debe estar presente en el tampón de carga de gel para desnaturalizar la proteína y liberarla de su complejo apretado con los ácidos nucleicos. Esto también es una posible solución de problemas del experimento, es decir, la formación de bandas pasado durante la ejecución de gel. Este efecto es particularmente evidente cuando se empleó la longitud completa NC, como en la Figura 2, y está vinculada a la presencia de la cola N-terminal altamente básica, que tiene un fuerte efecto de agregación en los ácidos nucleicos.
La presencia de la cola básicas del terminal hace que la reacción de hibridación más difícil de ser inhibida, como se muestran en la figura 3, utilizando el compuesto 1, un intercalador enhebrado representativa, es decir, un intercalador particularmente eficaz en la estabilización de las estructuras de tallo-bucle de TAR y de CTAR. De hecho, este tipo de interacción con ácidos nucleicos se ve favorecida cuando protuberancias y bucles interrumpen la continuidad de doble hélice, lo que permite un roscado fácil de los sustituyentes voluminosos en los pares de bases. Estabilización de alquitrán y CTAR por estos aglutinante de ácidos nucleicos se analizó previamente por la determinación del aumento de la temperatura de fusión de los dos oligonucleótidos. 14 Por otra parte, el aumento de la temperatura de fusión se correlaciona con la inhibición de la hibridación catalizada por el VIH-1 NC, que conduce a la reducción de la formación del heterodúplex TAR / CTAR y que indica que intercaladores de roscado son una clase interesante de aglutinantes para estructuras dinámicas de ARN tal como el elemento TAR. 14
El mecanismo de acción invocada para estos compounds se puede validar aún más por la realización del ensayo nombre en diferentes formatos alternativos, como se muestra en la Figura 4: en el caso de intercaladores se mejora la inhibición de heterodúplex recocido cuando el fármaco se incubó con los dos oligos plegadas. Los compuestos que actúan con diferente mecanismo de acción, tales como aglutinantes directos de la proteína NC, serían menos afectada por la diferente modo de preincubación. NOMBRE ensayo realizado en los dos métodos, por tanto, podrían ser utilizados para cribar bibliotecas de compuestos para la identificación de inhibidores de Carolina del Norte, y también para evaluar el supuesto mecanismo de acción de los éxitos positivos durante la búsqueda de fármacos contra el VIH dirigidos a Carolina del Norte. Claramente, el uso de estas técnicas por sí solas cuando reclamando un mecanismo específico de acción de los inhibidores de la NC identificados no es suficiente, y se necesitan otros ensayos bioquímicos adecuados para sostener la hipótesis de trabajo. 14
Por último, hay que subrayar que NOMBRE utiliza altamenteenzimas purificadas, ya sea recombinantes o sintéticos, que dan información valiosa sobre la inhibición "in vitro" de NC por los compuestos ensayados. Esta es la "fuerza y la debilidad" del ensayo: NOMBRE bien puede complementar el cribado virtual y modelado molecular se acerca en los pasos preliminares de los programas de descubrimiento de fármacos, lo que permite construir y analizar rápidamente las relaciones estructura-actividad y eventualmente reorientar el diseño y síntesis de drogas. Sin embargo, como otros ensayos bioquímicos utilizan en proyectos de desarrollo de fármacos en VIH, NAME no dará información sobre los efectos de los inhibidores putativos en células infectadas por virus.
Divulgaciones
Los autores declaran que no tienen intereses financieros contrapuestos.
Agradecimientos
Este trabajo fue apoyado por Ministero degli Affari Esteri (MAE, DRPG, Unità per la cooperazione scientifica e tecnologica, Grant: PGR Italy-USA) y por MIUR, Progetti di Ricerca di Interesse Nazionale (Grant: 2010W2KM5L_006).
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| cTAR: oligonucleótido de ADN de 29 meros. Desalado. Purificado por HPLC. | Metabion International AG | Almacene la solución de stock a -20 C | |
| TAR, oligonucleótido de ARN de 29 meros. Desalado. Purificado por HPLC. | Metabion International AG | Almacene la alícuota de stock a -80 ° C | |
| (12-55)Péptido NC | EspiKem srl | Almacene la solución madre a -20 ° C | |
| Tubos de 1,5 ml | Eppendorf | 0030 120 086 | Autoclave antes de usar |
| Tubos de 0,5 ml | Eppendorf | 0030 121 023 | Autoclave antes |
| de usar Puntas de filtro Biosphere 0,1-10 µ l | Sarstedt | 701,130,210 | |
| Puntas de filtro de biosfera 2-20 y micro; l | Sarstedt | 70,760,213 | |
| Puntas de filtro de biosfera 200 y micro; l | Sarstedt | 70,760,213 | |
| Filtro de jeringa 0.22 y micro; m | Biosigma srl | 51.798 | |
| Etanol | Carlo Erba | 414631 | |
| Dodecil Sulfato de Sodio | Sigma-Aldrich | 71725-50G | |
| Dimetilsulfóxido | Sigma-Aldrich | D8418-1L | |
| Cloruro de Sodio | Sigma-Aldrich | 71376-1KG | |
| Ácido Bórico | Sigma-Aldrich | B0252-2.5KG | |
| Etilendiaminotetraacético Ácido | Sigma-Aldrich | E5134-500G | |
| Perclorato de magnesio | Sigma-Aldrich | 222283-100G | Almacene el 1 M solución a -20 ° C |
| Glicerol | Sigma-Aldrich | 49770-1L | |
| Azul de bromofenol | GE Healthcare Life Sciences | 17-1329-01 | |
| N,N,N′,N′ -Tetrametiletilendiamina | Sigma-Aldrich | T9281-100ML | |
| Persulfato de amonio | Sigma-Aldrich | A7460-500G | Prepare la solución al 10% recién hecha antes de usarla |
| Acrylamide-bis solución lista para usar 40% (19:1) | Merck Millipore | 1006401000 | La poliacrilamida es altamente neurotóxica: use guantes durante la fundición en gel |
| Tris ultrapure | Applichem | A1086, Agua tratada con 1000 | |
| DEPC | Centrífuga Ambion | AM9922 | |
| 5415R | Espectrómetro Eppendorf | 22.621.408 | |
| NanoDrop 1000 | Espectrómetro | ||
| Lambda 20 | Perkin Elmer | ||
| Protean II xi Cell Fuente | de alimentación básica Bio-Rad | 165-1803 | |
| PowerPac | Bio-Rad | 164-5050 | |
| SybrGreen II RNA Gel Tinción Lonza | 50523 | Haga la dilución 1/10,000 en TBE 1x. Guárdelo en la oscuridad a 4 ° C durante dos semanas. | |
| Sistema de imagen Geliance 600 | Perkin Elmer |
Referencias
- Druillennec, S., et al. A mimic of HIV-1 nucleocapsid protein impairs reverse transcription and displays antiviral activity. Proc Natl Acad Sci USA. 96, 4886-4891 (1999).
- Darlix, J. L., Garrido, J. L., Morellet, N., Mely, Y., de Rocquigny, H. Properties, functions, and drug targeting of the multifunctional nucleocapsid protein of the human immunodeficiency virus. Adv Pharmacol. 55, 299-346 (2007).
- Thomas, J. A., Gorelick, R. J. Nucleocapsid protein function in early infection processes. Virus Res. 134, 39-63 (2008).
- Mirambeau, G., Lyonnais, S., Gorelick, R. J. Features, processing states, and heterologous protein interactions in the modulation of the retroviral nucleocapsid protein function. RNA Biol. 7, 724-734 (2010).
- Zeng, Y., et al. Probing nucleation, reverse annealing, and chaperone function along the reaction path of HIV-1 single-strand transfer. Proc Natl Acad Sci USA. 104, 12651-12656 (2007).
- Basu, V. P., et al. Strand transfer events during HIV-1 reverse transcription. Virus Res. 134, 19-38 (2008).
- Guo, J., Henderson, L. E., Bess, J., Kane, B., Levin, J. G. Human immunodeficiency virus type 1 nucleocapsid protein promotes efficient strand transfer and specific viral DNA synthesis by inhibiting TAR-dependent self-priming from minus-strand strong-stop DNA. J Virol. 71, 5178-5188 (1997).
- Godet, J., Mely, Y. Biophysical studies of the nucleic acid chaperone properties of the HIV-1 nucleocapsid protein. RNA Biol. 7, 687-699 (2010).
- Darlix, J. L., et al. Flexible nature and specific functions of the HIV-1 nucleocapsid protein. J Mol Biol. 410, 565-581 (2011).
- Lapadat-Tapolsky, M., Pernelle, C., Borie, C., Darlix, J. L. Analysis of the nucleic acid annealing activities of nucleocapsid protein from HIV-1. Nucleic Acids Res. 23, 2434-2441 (1995).
- Vo, M. -N., Barany, G., Rouzina, I., Musier-Forsyth, K. Mechanistic studies of mini-TAR RNA/DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. J Mol Biol. 363, 244-261 (2006).
- Beltz, H., et al. Structural determinants of HIV-1 nucleocapsid protein for cTAR DNA binding and destabilization, and correlation with inhibition of self-primed DNA synthesis. J Mol Biol. 348, 1113-1126 (2005).
- Mori, M., et al. Nucleocapsid Protein: a Desirable Target for Future Therapies against HIV-1. Curr Top Microbiol Immunol. , Forthcoming Forthcoming.
- Sosic, A., et al. Design, synthesis and biological evaluation of TAR and cTAR binders as HIV-1 nucleocapsid inhibitors. MedChemComm. 4, 1388-1393 (2013).
- Tabarrini, O., et al. Studies of Anti-HIV Transcription Inhibitor Quinolones: Identification of Potent N1-Vinyl Derivatives. Chemmedchem. 5, 1880-1892 (2010).
- Hagan, N., Fabris, D. Direct mass spectrometric determination of the stoichiometry and binding affinity of the complexes between nucleocapsid protein and RNA stem-loop hairpins of the HIV-1 Psi-recognition element. Biochemistry. 42, 10736-10745 (2003).
- Ivanyi-Nagy, R., Davidovic, L., Khandjian, E. W., Darlix, J. L. Disordered RNA chaperone proteins: from functions to disease. Cell Mol Life Sciences: CMLS. 62, 1409-1417 (2005).
- Zagotto, G., et al. Tuning G-quadruplex vs double-stranded DNA recognition in regioisomeric lysyl-peptidyl-anthraquinone conjugates. Bioconjug Chem. 22, 2126-2135 (2011).
- Carlson, C. B., Vuyisich, M., Gooch, B. D., Beal, P. A. Preferred RNA binding sites for a threading intercalator revealed by in vitro evolution. Chem Biol. 10, 663-672 (2003).
- Gooch, B. D., Beal, P. A. Recognition of duplex RNA by helix-threading peptides. J Am Chem Soc. 126, 10603-10610 (2004).
- Kanevsky, I., et al. Structural determinants of TAR RNA-DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. Nucleic Acids Res. 39, 8148-8162 (2011).
Reimpresiones y permisos
