La activación de la quinasa multifuncional Ser/Thr AURKA se caracteriza por su autofosforilación en Thr288. Las sondas fluorescentes que dependen de FRET pueden discriminar entre sus estados inactivo y activado. Aquí, ilustramos algunas estrategias para la ingeniería de sondas, junto con un protocolo FRET rápido para seguir la activación de la quinasa a lo largo de la mitosis.
Artículo de método
Monitoreo en tiempo real de la activación de aurora quinasa A utilizando biosensores FRET conformacionales en células vivas
En este artículo
Resumen
Resumen
Los cánceres epiteliales a menudo se caracterizan por la sobreexpresión de la Ser/Thr quinasa Aurora A/AURKA. AURKA es una proteína multifuncional que se activa tras su autofosforilación en Thr288. AURKA abundancia alcanza su punto máximo en la mitosis, donde controla la estabilidad y la fidelidad del huso mitótico, y la eficiencia general de la mitosis. Aunque bien caracterizado a nivel estructural, falta un seguimiento consistente de la activación de AURKA a lo largo del ciclo celular. Una posible solución consiste en utilizar biosensores de transferencia de energía de resonancia (FRET) de Förster codificados genéticamente para obtener información sobre la autofosforilación de AURKA con suficiente resolución espaciotemporal. Aquí, describimos un protocolo para diseñar biosensores FRET que detecten la autofosforilación Thr288 y cómo seguir esta modificación durante la mitosis. En primer lugar, proporcionamos una visión general de los posibles pares de FRET donante/aceptor, y mostramos posibles métodos de clonación e inserción de biosensores AURKA FRET en células de mamíferos. Luego, proporcionamos un análisis paso a paso para mediciones rápidas de FRET mediante microscopía de imágenes de fluorescencia de por vida (FLIM) en una configuración personalizada. Sin embargo, este protocolo también es aplicable a las soluciones comerciales alternativas disponibles. Concluimos considerando los controles FRET más apropiados para un biosensor basado en AURKA, y destacando posibles mejoras futuras para aumentar aún más la sensibilidad de esta herramienta.
Introducción
La aurora quinasa A/AURKA es una serina/treonina quinasa multifuncional, activa durante todo el ciclo celular y en diferentes compartimentos subcelulares1. Comprender su amplia activación espaciotemporal es particularmente importante en cáncer, ya que AURKA a menudo se sobreexpresa en neoplasias epiteliales y hematológicas malignas, con pacientes que muestran poca capacidad de respuesta a las terapias actualmente disponibles2.
Los estudios estructurales revelaron que AURKA se somete a dos pasos para convertirse de una quinasa inactiva a una quinasa activa. En primer lugar, la autofosforilación de Thr288 cambia la conformación de la bolsa cinética de la quinasa y la activa3,4,5,6. Este paso aumenta la actividad catalítica de AURKA en células humanas y en Xenopus laevis3,6,7, preparando la quinasa para una actividad completa. Una vez activado, la interacción de AURKA con la proteína diana para Xklp2 (TPX2) induce un segundo cambio conformacional5. Esta modificación adicional permite a AURKA alcanzar la actividad enzimática completa hacia sus sustratos en la célula5,8,9,10.
Durante casi dos décadas, los conocimientos sobre la activación y la actividad de AURKA se obtuvieron principalmente a través de una combinación de enfoques bioquímicos. Estos incluyen la detección de Thr288 fosforilado en células o in vivo como un sello distintivo de la activación de AURKA, análisis cristalográficos y ensayos in vitro o en celuloquinasa para sondear la actividad de AURKA1. Sin embargo, la resolución espaciotemporal de estos enfoques es pobre o ausente, y se necesitaban soluciones novedosas para ampliar el conocimiento de la dinámica de estos dos eventos.
El desarrollo de sondas fluorescentes en los últimos años facilitó la monitorización de AURKA en células vivas, permitiendo el seguimiento de su activación con mayor resolución espaciotemporal. Los sensores más específicos para AURKA desarrollados hasta ahora se basan en el principio FRET (Förster's Resonance Energy Transfer)11 para discriminar entre AURKA inactivo y activo. El primer sensor desarrollado fue un biosensor basado en sustrato de la actividad de la quinasa AURKA. Los biosensores basados en sustrato están constituidos por una secuencia aminoácida corta dirigida por una quinasa dada para la fosforilación, e insertada dentro de un par FRET donante/aceptor y un dominio de unión que reconoce el residuo fosforilado, lo que ayuda al plegamiento del biosensor para un proceso FRET eficiente12. En el caso de AURKA, se insertó un fragmento de 14 aminoácidos de KIF2C dirigido por fosforilación entre un par donante/aceptor CFP-YFP13. Sin embargo, este sensor tiene algunos inconvenientes importantes. En primer lugar, la secuencia KIF2C utilizada en esta sonda puede ser dirigida tanto por AURKA como por la quinasa estrechamente relacionada AURKB, disminuyendo así la especificidad de este biosensor. En segundo lugar, el sensor se basa en la quinasa endógena para la fosforilación. Por lo tanto, la eficiencia de FRET puede ser indetectable o no significativa si las cantidades de la quinasa son limitantes (por ejemplo, en compartimentos subcelulares o fases del ciclo celular). Para superar estas limitaciones, se creó una nueva clase de sensor AURKA conocido como "sensores conformacionales". En estas sondas, la secuencia completa de AURKA se insertó dentro de un fluoróforo donante en el extremo N, y un fluoróforo aceptor en el extremo C. La AURKA inactiva presenta una conformación "abierta", que aleja a los N- y C-termini de la quinasa entre sí. Con tal distancia entre los dos termini (> 10 nm), el par donante/aceptor está en una configuración no permisiva para FRET. Por el contrario, la AURKA autofosforilada adopta una conformación "cerrada", con las dos proteínas termini y los dos fluoróforos en proximidad. Se demostró que esto permite la FRET entre el donante y el aceptor, que puede medirse utilizando las variaciones en la vida del donante14,15. Tales sondas presentan varias ventajas. Primero, están codificados genéticamente y se pueden usar para reemplazar la quinasa endógena en la célula. En segundo lugar, rescatan los fenotipos inducidos por el derribo de AURKA, lo que indica que son funcionales en la célula. En tercer lugar, permiten seguir la activación de la quinasa en diferentes compartimentos subcelulares y a lo largo del ciclo celular. Las sondas detectaron la activación de AURKA en lugares donde se sabe que la quinasa está activada (es decir, centrosomas y el huso mitótico), y también participaron en el descubrimiento de la activación de AURKA en las mitocondrias16. Por último, estos sensores permitieron cribados de alto contenido basados en FRET/FLIM, donde se utilizaron los cambios conformacionales de AURKA para identificar nuevos inhibidores farmacológicos17.
En el presente trabajo, describimos un procedimiento para visualizar la activación de AURKA en células cultivadas. Primero, haremos una idea de los posibles pares de fluoróforos para FRET. La elección del par donante/aceptor más adecuado se realizará de acuerdo con la configuración del microscopio disponible, o una aplicación posterior particular como multiplex FRET18,19. Luego, proponemos una tubería para explorar el comportamiento de los biosensores elegidos en una configuración rápida del microscopio FRET / FLIM. Esta canalización se extenderá desde el cultivo celular y los procedimientos de sincronización hasta la adquisición de FLIM y el análisis de datos. Por último, discutiremos las ventajas potenciales de este protocolo, ya que una estrategia análoga para el diseño de biosensores podría aplicarse a otras quinasas, y también se puede usar con otros sistemas de imágenes basados en FRET.
Protocolo
NOTA: Las células U2OS utilizadas en este protocolo se compraron a American Type Culture Collection (ATCC, HTB-96) y se probaron libres de micoplasma. Los pasos 2.1 a 2.7 deben realizarse bajo una campana de flujo laminar para mantener las células y los reactivos estériles.
1. Elección del par FRET donante/aceptor
- Consulte la literatura para la elección de los pares FRET donante/aceptor más adecuados. Se pueden encontrar ejemplos útiles en 20,21,22,23,24, aunque la elección final debe hacerse de acuerdo con las características de la configuración FRET/FLIM (líneas láser disponibles, filtros, etc.). Las siguientes son algunas consideraciones sobre cómo seleccionar un par donante/aceptor.
- Elección del donante: consulte la base de FP (https://www.fpbase.org/) para obtener un conjunto completo de información sobre las proteínas fluorescentes disponibles. Esta base de datos se actualiza constantemente con todos los fluoróforos recientemente desarrollados.
- Consulte la Base de datos de biosensores fluorescentes (https://biosensordb.ucsd.edu/index.php) para obtener más información sobre los biosensores ya disponibles en la literatura, junto con las respectivas proteínas fluorescentes utilizadas.
- Como punto de partida general, elija un fluoróforo de donante brillante. Los buenos candidatos son las proteínas fluorescentes cian como mTFP1 o ECFP, o variantes GFP como EGFP o mEGFP.
- Los oligómeros pueden afectar la localización y/o función de las proteínas25. Considere el uso de mutantes monoméricos de CFP como mTurquoise226, o Aquamarine27,28. Estas variantes también tienen un buen rendimiento cuántico y coeficientes de extinción, lo que las convierte en buenas candidatas como donantes de FRET.
- Dar preferencia a las proteínas fluorescentes (tanto como donantes como aceptoras) insensibles a cambios ambientales como el pH23 intracelular, o al fotoblanqueo25, ya que la eficiencia de FRET puede verse muy afectada por estos parámetros29. Hoy en día, fluoróforos como mTurquoise2 o mTFP1 son ampliamente utilizados como donantes, gracias a su buena fotoestabilidad22,25,26.
- Elección del aceptor: los donantes cian a menudo se emparejan con variantes de proteína fluorescente amarilla (YFP), como mVenus, citrino e YPet20,21,22,30. Sin embargo, cabe señalar que estas proteínas tienen una sensibilidad mucho mayor al pH, y a nivel mundial muestran una fotoestabilidad pobre.
- Considere el uso de variantes amarillas de YFP recientemente desarrolladas e insensibles al pH como pH-Lemon31, fluoróforos verdes como mNeonGreen23 o fluoróforos rojos como mScarlet-I23,32 como aceptores fluorescentes previamente validados para mTurquoise2.
- Alternativamente, considere el uso de derivados no fluorescentes / oscuros de YFP como ShadowG33 o ShadowY34, que se demostró que se comportan como buenos aceptores para donantes cian-fluorescentes en experimentos FRET / FLIM.
- Si usa mEGFP como donante, considere el uso de aceptores rojos monoméricos como mCherry.
- Verifique las propiedades espectrales del par donante/aceptor elegido utilizando las herramientas disponibles en el sitio web de la base de FP. Consulte la Figura 1 para ver un ejemplo del par mEGFP/mCherry.
- En el sitio web base de FP, seleccione el menú desplegable Herramientas y seleccione Visor de espectros.
- En los menús desplegables, ingrese el nombre del par de fluoróforos para visualizar (por ejemplo, mEGFP y mCherry).
- Simule las propiedades del par donante/aceptor con una fuente de luz específica seleccionando un láser determinado en el menú desplegable. Alternativamente, ingrese una longitud de onda láser específica seleccionando Agregar láser. Haga clic en la opción Normalizar emisión a esta opción para ajustar los espectros de fluoróforos a la longitud de onda deseada. Aquí, la longitud de onda utilizada para excitar GFP es de 480 ± 10 nm.
- Clone el par donante/aceptor seleccionado agregando un fluoróforo en el extremo N de la secuencia de longitud completa de AURKA, y uno en el extremo C. Siga las pautas del método de clonación preferido para insertar esta construcción en un vector de expresión de mamíferos de elección.
2. Cultivo celular, transfección y sincronización
- DÍA 1. Prepare el medio de cultivo para células U2OS: use el Medio Águila Modificada (DMEM) de Dulbecco suplementado con 10% de Suero Fetal Bovino (FBS), 1% de Penicilina-Estreptomicina y 1% de L-Glutamina (de aquí en adelante, Medios de crecimiento completos). Alternativamente, DMEM con L-glutamina pre-suplementada también se puede utilizar.
- Si las células están congeladas, descongele un vial al menos 8 días antes de los experimentos (es decir, a partir del punto 2.5).
- Cultiva células en una incubadora dedicada a cultivos celulares de mamíferos a 37 °C y con un 5% de CO2. Limpie y esterilice la incubadora regularmente para evitar contaminaciones.
- Cuando las células alcanzan ~80% de confluencia:
- Lávelos brevemente con solución salina tampón de fosfato estéril 1x (PBS) sin Ca2+ y Mg2+.
- Tripsinizar células con Tripsina-EDTA estéril al 0,05% según protocolo del fabricante y colocando células en la incubadora durante 1-3 min.
- Inactivar la tripsina agregando el doble del volumen de medios de crecimiento completos; mezclar bien.
- Centrifugar la suspensión celular a 800 x g durante 3-5 min.
- Cuente las células usando un hemocitómetro y calcule la dilución apropiada para que estén en ~ 70-80% de confluencia en diapositivas de cámara al día siguiente. Alternativamente, también se pueden usar soportes similares para imágenes de células vivas.
- Pipetee el volumen correspondiente de células en el soporte de imágenes de células vivas elegido y vuelva a colocar las células en la incubadora hasta el día siguiente.
- DÍA 2. Proceda con la transfección. Siga las pautas del método o métodos de transfección transitoria preferidos para obtener una eficiencia de transfección óptima (~ 50/80%). No se requiere ningún método de transfección específico. Tenga en cuenta que la eficiencia de la transfección puede variar según la línea celular utilizada. Incubar durante 48 h.
NOTA: Producir clones estables que contengan cada uno de los tres vectores para evitar la necesidad de transfecciones transitorias. En esta etapa, se deben planificar dos tipos de controles. En primer lugar, se requiere un control "solo para donantes" para verificar que la presencia de AURKA de longitud completa no perturbe la vida útil de mTurquoise2 per se. En segundo lugar, un biosensor portador de una mutación muerta de quinasa debe usarse como control negativo cuando el FRET se abole o se reduzca significativamente. Alternativamente a un mutante muerto de quinasa, un inhibidor químico de la activación de AURKA como el análogo de ATP MLN8237 se puede utilizar como un control negativo.- Planifique con anticipación tres condiciones de transfección, cada una de ellas en un pozo independiente:
El vector "solo donante" (por ejemplo, AURKA-mTurquoise2)
El "biosensor" (por ejemplo, superYFP-AURKA-mTurquoise2)
Un biosensor muerto de quinasa/"K162M" (por ejemplo, superYFP-AURKA K162M-mTurquoise2) o, alternativamente, un inhibidor de la activación de AURKA (por ejemplo, MLN8237) - Llevar a cabo tres condiciones para que cada par donante/aceptor independiente se compare.
- Considere la posibilidad de duplicar el número de pozos transfectados si se comparan células no sincronizadas y sincronizadas G2/M (consulte el paso 2.6).
- Planifique con anticipación tres condiciones de transfección, cada una de ellas en un pozo independiente:
- DÍA 3. Sincronizar las células en G2/M. Añadir 100 ng/mL de nocodazol disuelto en DMSO a cada pozo transfectado evitando la exposición a la luz e incubar durante 16 h (preferiblemente durante la noche). Si se comparan células no sincronizadas y sincronizadas G2/M, trate cada condición de transfección con nocodazol o con un volumen igual de DMSO. Para una mejor eficiencia de sincronización, prepare alícuotas de nocodazol de un solo uso en DMSO, guárdelas a -20 ° C y deséchelas después de su uso.
NOTA: La eficiencia de sincronización de celdas puede variar entre líneas celulares. La concentración óptima de nocodazol y su tiempo de incubación deben determinarse experimentalmente mediante enfoques de citometría de flujo antes de los experimentos FRET/FLIM. Para los análisis FRET/FLIM estadísticamente relevantes, se recomienda una eficiencia de sincronización en G2/M de al menos el 50% de la población celular total. - DÍA 4. Lavado de nocodazol e imágenes FRET/FLIM en células mitóticas
- Retire el medio de cultivo con una pipeta y reemplácelo con PBS estéril precalentado. Evite la exposición a la luz si es posible. Mece suavemente el plato.
- Repita el procedimiento de lavado, evitando siempre la exposición a la luz.
- Retire el segundo lavado de PBS y reemplácelo con un medio Leibovitz L-15 estéril precalentado, complementado con suero fetal bovino (FBS) al 20% y penicilina-estreptomicina al 1% (de aquí en adelante, medios de imagen).
NOTA: Los medios de imagen deben comprarse sin indicadores de pH (por ejemplo, rojo fenol) y componentes medios como riboflavina. Estas sustancias son una fuente de autofluorescencia que podría perturbar los valores de por vida. - Proceda con las imágenes FRET/FLIM. Minimice los cambios rápidos de temperatura y proceda al paso de imagen (paso 3) lo más rápido posible. Considere la posibilidad de proteger la muestra de la luz mientras la transporta a la configuración del microscopio (es decir, envolviéndola en un papel de aluminio o colocándola en una caja).
3. Adquisiciones de FRET/FLIM
NOTA: Las adquisiciones de FRET/FLIM en este protocolo se realizaron en una configuración personalizada, descrita en35 y equipada con una solución de control como en 15,17 (Figura 2). La configuración ahora es comercializada por Inscoper y está hecha de un microscopio de disco giratorio con un láser blanco para la excitación pulsada y un intensificador de tiempo de alta velocidad frente a la cámara. Las puertas temporales de 2 ns en una ventana de tiempo de 10 ns se utilizan secuencialmente para obtener una pila de cinco imágenes cerradas en el tiempo. Estas imágenes se utilizan para calcular la vida media de fluorescencia píxel por píxel de acuerdo con la siguiente ecuación: τ = ΣΔti • Ιi/ΣΙi, donde Δti corresponde al tiempo de retardo de la puerta ith mientras que I indica la imagen de intensidad de tiempo píxel por píxel35,36 . Este método garantiza mediciones rápidas de FLIM: no se requieren pasos de ajuste o agrupación, y la vida útil se puede calcular en un modo en línea, con un presupuesto mínimo de fotones. El sistema también presenta una interfaz de software fácil de usar. Sin embargo, el mismo experimento se puede realizar bajo cualquier otra configuración de microscopio comercial equipada para mediciones FLIM.
- Para garantizar una liberación óptima de células del bloque G2/M a la mitosis, realice experimentos a 37 °C. Si es posible, realice experimentos FRET/FLIM con configuraciones de microscopio equipadas con una cámara termostática.
- Encienda la cámara termostática del microscopio al menos 30 minutos a 1 h antes del experimento.
- Encienda el láser, la cámara, la configuración del microscopio y el software de imágenes (Figura 2).
- Seleccione las longitudes de onda de excitación y emisión apropiadas para el fluoróforo donante. Las opciones de longitudes de onda convenientes son: λex 440/10 nm y λem 483/35 nm para mTurquoise2 (Figura 3A); λex 488/10 nm y λem 525/50 nm para GFP) (Figura 3B).
- Establezca el tiempo de exposición, generalmente entre 30 y 100 ms (Figura 3). Tenga en cuenta que la potencia excesiva del láser puede dar lugar a efectos fototóxicos inducidos como el fotoblanqueo, lo que a su vez podría modificar la vida útil de la fluorescencia37. En la configuración, valide la ausencia de eventos de fotoblanqueo monitoreando la intensidad de fluorescencia de la primera puerta durante las adquisiciones de lapso de tiempo. Si se observan variaciones en la intensidad de la fluorescencia, descarte la adquisición y ajuste la potencia del láser.
NOTA: En la configuración aquí, seleccione un tiempo de exposición que permita al menos 3000 niveles de gris en la primera puerta; de lo contrario, el software no calculará la vida útil del donante. Este valor de nivel de gris corresponde al presupuesto mínimo de fotones necesario para obtener valores relevantes de vida útil. - Antes de lanzar las adquisiciones FRET/FLIM, asegúrese de que las células hayan entrado en mitosis esperando hasta la aparición del huso bipolar (~20/30 min en células U2OS). Dado que la AURKA mitótica se localiza principalmente en esta estructura, verifique la progresión mitótica mediante el cribado de la formación del huso en las células directamente bajo el microscopio, con una fuente de luz externa (Figura 1). Tenga en cuenta que el tiempo requerido para la progresión mitótica puede variar según la línea celular utilizada.
- Si se planea el tratamiento con MLN8237, coloque las células bajo el microscopio y permita que alcancen la metafase (aprox. 20 minutos después del lavado con nocodazol). Añadir 250 nM MLN8237 disueltos en DMSO tanto a las células que expresan la construcción de solo donante como a las células que expresan el biosensor.
- Controlar esta condición en las células transfectadas como las anteriores e incubar con un volumen igual de DMSO. Para una mejor inhibición de AURKA, prepare alícuotas de un solo uso de MLN8237 en DMSO, guárdelas a -80 ° C. Descongelarlos colocando las alícuotas sobre hielo, y desecharlas después de su uso.
- Incubar durante 10 min. Después de este período, el huso mitótico se encogerá y solo quedará un solo punto intenso. Un fenotipo similar se observa cuando se utilizan mutantes K162M.
- Para una mejor resolución del huso mitótico, use al menos un objetivo 63x (Figura 3).
- Una vez encontrada una celda en metafase (ver Figura 4 como ejemplo de una celda en metafase), ajuste las coordenadas xyz para colocarla en el centro del campo de visión.
- Para obtener imágenes más rápidas, seleccione un solo plano z . Elija el plano donde el huso mitótico es más visible o intenso.
- Inicie la grabación. El tiempo de adquisición puede variar según la configuración FLIM utilizada (de unos pocos segundos a mínimos). La mayoría de las configuraciones comerciales disponibles en el mercado elaborarán tanto la micrografía de fluorescencia como el mapa de vida útil píxel por píxel. Guarde ambas imágenes.
- Adquirir al menos 10 imágenes independientes de cada transfección y/o tratamiento.
4. Cálculo de ΔLifetime y comparación de los valores de FLIM entre pares donante/aceptor
- Extraiga los valores de vida útil de todo el mapa de vida útil píxel por píxel (es decir, todo el huso mitótico) o seleccione regiones de interés (ROI) correspondientes a subregiones específicas.
NOTA: De acuerdo con la configuración FRET/FLIM utilizada, los cálculos de la vida útil pueden realizarse directamente en el software de adquisición o extraerse con soluciones genéricas de procesamiento de imágenes (por ejemplo, Fiji/ImageJ: https://fiji.sc/). El software que calcula directamente los valores de vida útil (también conocido como modo en línea) ofrece una solución más fácil de usar, que es adecuada para principiantes y para usuarios de microscopía que no están completamente familiarizados con FRET / FLIM. Por el contrario, la extracción de valores de vida útil después de la adquisición a menudo requiere un procedimiento de ajuste. Esta opción es menos accesible para los principiantes, ya que es necesario algún conocimiento previo sobre modelos matemáticos de ajuste. - Una vez visualizado o extraído, calcule la vida media de las células que expresan el vector "solo donante" (por ejemplo, AURKA-mTurquoise2), por lo tanto , la vida útil media del donante.
- Reste cada valor de vida independiente calculado en el paso 4.1 de la vida media del donante. Repetir este paso para todas las células en todas las condiciones analizadas dará el ΔLifetime para cada condición.
- Compare los valores de ΔLifetime para las condiciones "solo donante", "biosensor" y "K162M", o DMSO y MLN8237.
NOTA: Para la condición de "solo donante", ΔLifetime debe dar como resultado valores cercanos a cero y correspondientes a las fluctuaciones experimentales de los valores de por vida. Para la condición de "biosensor", los valores de ΔLifetime deben producir la diferencia neta entre los dos constructos (ver Figura 4 para un ejemplo ilustrado). - Compare los valores de ΔLifetime entre diferentes pares donante/aceptor.
- Compare las condiciones de "biosensor": ¿muestran un ΔLifetime similar?
- ¿Las condiciones "K162M" o MLN8237 muestran un tiempo de vida similar entre ellos? ¿Es su ΔLifetime similar a la condición de "solo donante"?
Resultados
Seguimos el procedimiento descrito anteriormente para registrar la autofosforilación de AURKA en Thr288 utilizando dos biosensores con diferentes propiedades espectrales. Comparamos la sonda inicial GFP-AURKa-mCherry14 con dos biosensores con diferentes propiedades espectrales. Estas dos sondas se basan en el donante fluorescente mTurquoise2 y en un aceptor no fluorescente (ShadowG) en un caso, o un aceptor amarillo (superYFP) en un segundo caso. Luego insertamos la secuencia completa de AURKA dentro de cada par donante/aceptor. Para tener un control negativo para la activación de AURKA, se pueden seguir dos estrategias. En primer lugar, el uso de un pequeño atp-análogo (MLN8237) interfiere con la unión de ATP en la bolsa cinética de la quinasa e impide su activación38. En segundo lugar, la mutación de Lys162 en Met (K162M), crea una versión muerta de quinasa de cada biosensor incapaz de activarse14,15,39. Esta mutación induce la interrupción de un puente salino normalmente establecido entre Lys162 y Glu181, lo que resulta en una apertura estable de la bolsa cinética de la quinasa y desencadena su inactivación global40. Como control negativo para FRET, se utilizó un constructo sin aceptor (GFP-AURKA o AURKA-mTurquoise2).
Después de sincronizar las células en G2/M y liberarlas en mitosis, medimos la vida útil de todas las construcciones transfectadas en el huso mitótico (Figura 4). Cabe destacar que esta estructura se consideró como un todo, y no se analizaron los ROI dentro del husillo. Luego calculamos ΔLifetime para todas las condiciones. Como era de esperar, la vida útil de GFP-AURKA o AURKA-mTurquoise2 (las condiciones "solo para donantes") fue cercana a 0, lo que indica que los valores medidos para estos constructos fluctuaron alrededor del valor medio (Figura 4A,4B). Por el contrario, los valores de ΔLifetime para GFP-AURKA-mCherry fueron estadísticamente diferentes de la condición de solo donante, con un aumento de ΔLifetime de ~ 130 ps (Figura 4A). Se realizaron observaciones similares para shadowG-AURKA-mTurquoise2 y para superYFP-AURKA-mTurquoise2, con un aumento de ΔLifetime de ~150 y ~220 ps a partir de la condición de solo donante, respectivamente (Figura 4B,4C). Estos datos se pueden visualizar fácilmente en celdas individuales con una tabla de búsqueda pseudocolor (LUT). En este caso, los valores de ΔLifetime alrededor de 0 son de color amarillo pseudocolorado, mientras que las diferencias más significativas son de color rojo/púrpura pseudocoloreado. De hecho, la LUT píxel a píxel estaba más cerca del amarillo en las células que expresaban las construcciones solo del donante, mientras que estaba más en el espectro rojo / púrpura en las células que expresaban cualquiera de los biosensores (Figura 4A, 4B). Esto también se observó cuando el biosensor GFP-AURKA-mCherry fue tratado con el inhibidor farmacológico MLN8237.
Luego analizamos el ΔLifetime de los biosensores muertos en quinasa. Estos constructos mostraron valores intermedios de ΔLifetime: ΔLifetime fue significativamente mayor en comparación con la condición de solo donante (Figura 4B,4C), pero también fue significativamente más bajo que sus contrapartes normales (Figura 4B,4D). Las comparaciones con células tratadas con MLN8237 o que expresan biosensores muertos de quinasa son necesarias para estimar si las variaciones de ΔLifetime para cada par donante/aceptor están únicamente relacionadas con la activación de AURKA. En el caso de GFP-AURKA-mCherry, las variaciones de ΔLifetime se eliminan cuando se utiliza un inhibidor específico de AURKA. Por el contrario, las variaciones de ΔLifetime están vinculadas en su mayoría, pero no exclusivamente, a la activación de AURKA en el caso de shadowG-AURKA-mTurquoise2 y de superYFP-AURKA-mTurquoise2.
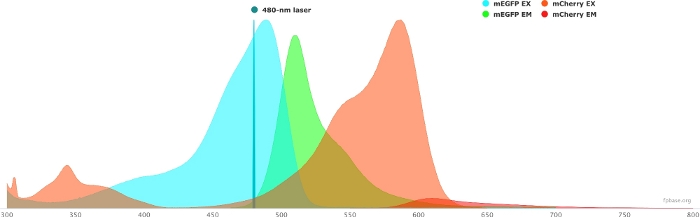
Figura 1: Espectros de excitación y emisión GFP (donante) y mCherry (aceptor).
Los espectros se obtuvieron y adaptaron del sitio web de la base de FP (https://www.fpbase.org/) y se ajustaron a una excitación láser de 480 nm. Haga clic aquí para ver una versión más grande de esta figura.
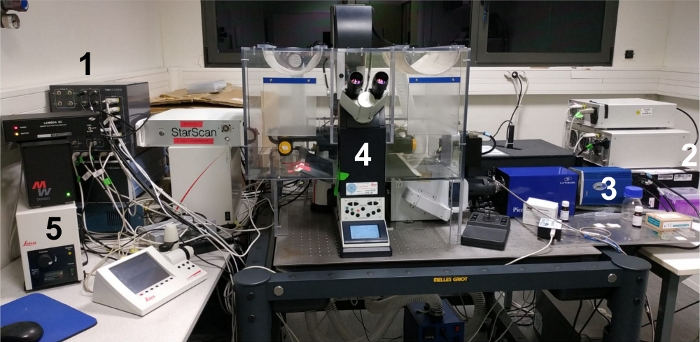
Figura 2: Imagen del espacio de trabajo experimental.
(1) La solución de control; (2) fuente de láser blanco; (3) cámara CCD; (4) configuración del microscopio; (5) fuente de luz externa / lámpara para la detección ocular de la muestra. Haga clic aquí para ver una versión más grande de esta figura.
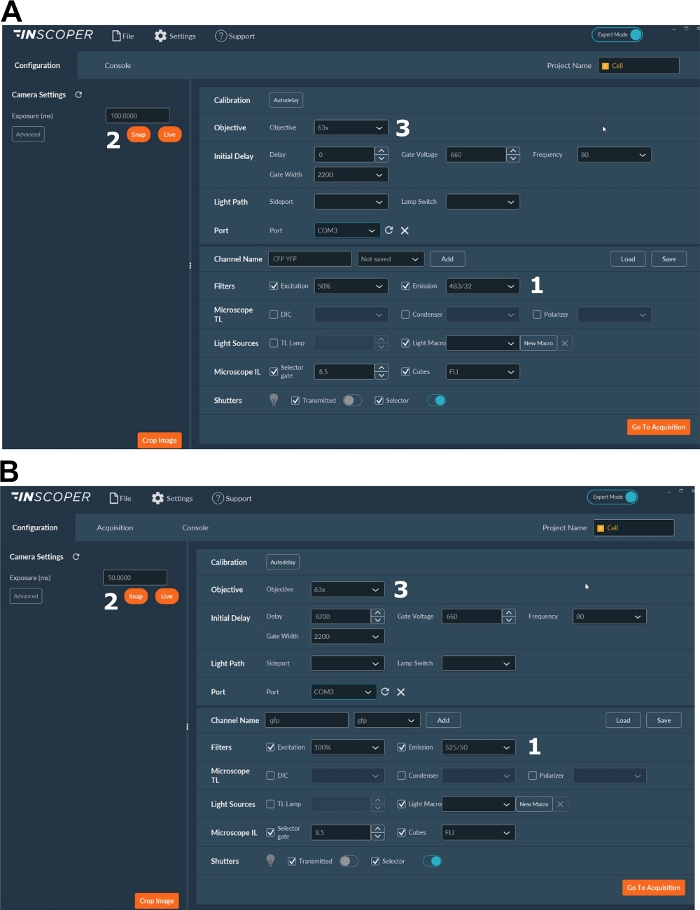
Figura 3: Imágenes representativas del software para la adquisición de FLIM.
(A, B) (1) parámetros de excitación y emisión para el donante (CFP en A, o GFP en B); (2) tiempo de exposición; (3) selección del objetivo. Haga clic aquí para ver una versión más grande de esta figura.
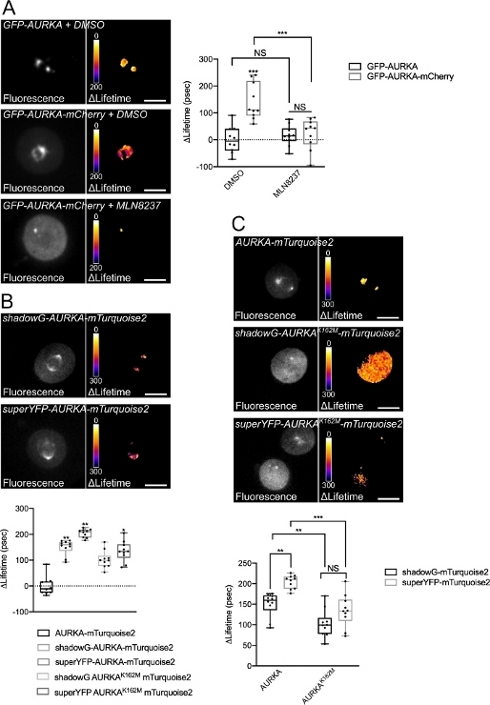
Figura 4: Imágenes representativas de los biosensores AURKA FRET y sus controles negativos.
(A) (Micrografías) Fluorescencia (canal verde) y correspondiente píxel por píxel ΔLifetime (solo donante – biosensor) de células U2OS que expresan GFP-AURKA o GFP-AURKA-mCherry, sincronizadas en G2/M, liberadas hasta que el huso bipolar es visible y luego tratadas con DMSO o con MLN8237. ΔLifetime se ilustra con una escala pseudocolor (tabla de búsqueda "Fire"). (Gráfico) Cuantificación correspondiente y análisis ANOVA bidireccional para las condiciones indicadas. (B) (Micrografías) Fluorescencia (canal cian) y correspondiente píxel por píxel ΔLifetime (solo donante – biosensor) de células U2OS que expresan sombraG-AURKA-mTurquoise2 (panel superior) o superYFP-AURKA-mTurquoise2 (panel inferior), sincronizadas en G2/M y liberadas hasta que el huso bipolar sea visible. ΔLifetime se ilustra con una escala pseudocolor (tabla de búsqueda "Fire"). (Gráfico) Cuantificación correspondiente y análisis ANOVA unidireccional de las condiciones representadas en las micrografías anteriores. (C) (Micrografías) Imágenes de AURKA-mTurquoise2 (panel superior), sombraG-AURKA K162M-mTurquoise2 (panel central) y superYFP-AURKA K162M-mTurquoise2 adquiridas y representadas como en las micrografías. (Gráfico) Análisis ANOVA bidireccional para las condiciones de transfección indicadas. La barra en boxplots representa la mediana; Los bigotes se extienden desde el mínimo hasta el máx. n = 10 células por condición de un experimento representativo (de tres). Los valores individuales se representan como puntos. Barra de escala: 10 μm. *P < 0,05, **P < 0,01, ***P < 0,001 contra cada condición indicada en (A) la condición "AURKA-mTurquoise2" en (B), y contra cada condición indicada en (C). NS: no significativo. Haga clic aquí para ver una versión más grande de esta figura.
Discusión
Los biosensores FRET codificados genéticamente son herramientas fiables para medir la activación de proteínas individuales o de vías de señalización completas41. En particular, el biosensor AURKA FRET constituye una forma preferente de explorar la activación de la quinasa en el tiempo y el espacio. Sin embargo, algunos elementos merecen una atención especial a la hora de diseñar u optimizar un biosensor FRET, no solo en términos generales sino más específicamente para AURKA.
En primer lugar, la naturaleza y la posición relativa del par FRET donante/aceptor se pueden adaptar para funciones específicas de esta quinasa. La AURKA se enriquece enormemente en el huso mitótico durante la mitosis, pero está presente a lo largo del ciclo celular y en diferentes ubicaciones subcelulares (por ejemplo, centrosomas, el núcleo y las mitocondrias)1,2. Si el biosensor se va a utilizar en compartimentos específicos como las mitocondrias, que pueden alcanzar un pH ácido, se debe elegir un par FRET donante-aceptor insensible al pH como mTurquoise2/shadowG. Además, la colocación del donante FRET en el extremo C podría permitir una mejor visualización del biosensor en este compartimento subcelular, y potencialmente incluso optimizar la detección de FRET dado que se demostró que AURKA N-terminal se escinde parcialmente en las mitocondrias16,42.
En segundo lugar, una forma aún inexplorada de optimizar el biosensor AURKA FRET requeriría un diseño más cuidadoso de los enlazadores entre AURKA de longitud completa y el par donante/aceptor. No solo la distancia entre el par fluorescente, sino también las propiedades del propio enlazador demostraron ser factores clave para mejorar la eficiencia de FRET43,44,45,46. En este sentido, aumentar la rigidez o la flexibilidad del enlazador podría ser perjudicial para la eficiencia de FRET o mejorarla aún más.
En tercer lugar, se sabe que la sobreexpresión de AURKA induce anomalías mitóticas del huso en una proporción significativa de células2. Sería interesante comparar el ΔLifetime obtenido expresando el mismo constructo FRET bajo un promotor fuerte como el citomegalovirus (CMV) – uno de los promotores más comunes encontrados en los vectores de expresión de mamíferos – o bajo la secuencia de promotor mínimo AURKA (CTTCCGG)14,47. Anteriormente se demostró que este promotor rescata husos monopolares o multipolares que surgen después del derribo de la quinasa, y su uso no indujo perturbaciones del ciclo celular per se14,47. Aunque FLIM es insensible a los niveles de expresión de proteínas y las concentraciones relativas en la célula11, beneficiarse de una comparación exhaustiva de los dos promotores en la misma configuración de biosensores ampliaría la comprensión del grupo de AURKA activado en cualquier lugar dado. Además, proporcionaría nuevos conocimientos sobre cómo la activación de AURKA puede cambiar tras la sobreexpresión, lo cual es relevante para los paradigmas del cáncer epitelial y hematológico.
Por último, también se debe tener en cuenta la aplicación FRET aguas abajo. Una perspectiva futura en el campo de AURKA sería acumular el biosensor conformacional de quinasa con un biosensor basado en sustrato. El análisis del comportamiento FRET de dos biosensores simultáneamente, un proceso conocido como FRET multiplex, requiere un aceptor oscuro en el primer biosensor para evitar el sangrado espectral en el segundo canal donante. En el contexto de AURKA, esto abriría la nueva y emocionante perspectiva de detectar la activación de la quinasa con el primer biosensor, y su actividad enzimática hacia un sustrato dado con el segundo. Los desarrollos recientes en multiplexación permiten ahora acumular hasta tres biosensores a la vez48. La aplicación de un método similar en el contexto de AURKA podría representar una estrategia muy prometedora no solo para probar la interacción activación-actividad de la quinasa, sino también para explorar cascadas de señalización AURKA con una resolución espaciotemporal sin precedentes.
En conclusión, FRET/FLIM es una forma conveniente de profundizar el conocimiento sobre la actividad de las proteínas. Por un lado, permite visualizar la localización de una proteína dada en células vivas, gracias a al menos una fracción fluorescente. Por otro lado, puede desentrañar los cambios conformacionales de las proteínas, lo que podría ser informativo sobre la activación y / o actividad de las proteínas. Por lo tanto, los biosensores FRET/FLIM y FRET conformacionales tienen el potencial de convertirse en métodos generalizados para seguir las vías de señalización en células vivas, y con una exquisita resolución espaciotemporal.
Divulgaciones
G.B. realizó los experimentos, escribió y revisó el manuscrito, y proporcionó fondos, M.T. revisó el manuscrito y proporcionó apoyo. M.T. es asesor científico y accionista de la empresa Inscoper (Francia), que produce las soluciones para mediciones rápidas de FLIM que se muestran en este manuscrito. Inscoper apoyó parcialmente la publicación en acceso abierto del manuscrito. Inscoper no participó en el diseño experimental, el manejo de datos ni en la redacción del manuscrito.
Agradecimientos
Agradecemos a los ingenieros del Microscopy-Rennes Imaging Center (MRic, BIOSIT, Rennes, Francia) por su asesoramiento y ayuda, y en particular a X. Pinson por la lectura crítica del manuscrito. MRic es miembro de la infraestructura nacional France-BioImaging apoyada por la Agencia Nacional de Investigación de Francia (ANR-10-INBS-04). Este trabajo fue apoyado por el Centre National de la Recherche Scientifique (CNRS), la Ligue Contre le Cancer Comités d'Ille et Vilaine, des Côtes d'Armor et du Finistère, y la Association pour la Recherche Contre le Cancer (ARC) a G.B.
Materiales
| Nombre | Empresa | Número de catálogo | Comentarios |
|---|---|---|---|
| Alisertib (MLN8237) | SelleckChem | S1133 | Uso en una dilución final de 250 nM |
| Medio Eagle modificado de Dulbecco (DMEM) | ThermoFischer Scientific Marca: Gibco | 41966052 | Alto contenido de glucosa + L-glutamina + Piruvato de sodio |
| Suero fetal bovino (FBS) | ThermoFischer Scientific Marca: Gibco | ||
| L15 | ThermoFischer Scientific Brand: Gibco | 21083027 | Leibovitz's L15 medium + L-glutamina, sin rojo de fenol |
| LabTek | Nunc | 2515380 | |
| Nocodazol | Merck Marca: Sigma-Aldrich | M1404 | Úselo en una dilución final de 100 ng/mL |
| Penicilina/Estreptomicina | ThermoFischer Scientific Marca: Gibco | 15140122 | Penicilina-estreptomicina 10,000 U/mL (100x) |
| Tampón de fosfato solución salina (PBS) | ThermoFischer Scientific Marca: Gibco | 14190169 | DPBS, sin calcio, sin magnesio |
| Tripsina/EDTA | ThermoFischer Scientific Marca: Gibco | 25300096 | Tripsina-EDTA 0,05%, Rojo Fenol (1x) |
Referencias
- Bertolin, G., Tramier, M. Insights into the non-mitotic functions of Aurora kinase A: more than just cell division. Cellular and Molecular Life Sciences. , (2019).
- Nikonova, A. S., Astsaturov, I., Serebriiskii, I. G., Dunbrack, R. L., Golemis, E. A. Aurora A kinase (AURKA) in normal and pathological cell division. Cellular and Molecular Life Sciences. 70 (4), 661-687 (2013).
- Walter, A. O., Seghezzi, W., Korver, W., Sheung, J., Lees, E. The mitotic serine/threonine kinase Aurora2/AIK is regulated by phosphorylation and degradation. Oncogene. 19 (42), 4906-4916 (2000).
- Cheetham, G. M. T. Crystal Structure of Aurora-2, an Oncogenic Serine/Threonine Kinase. Journal of Biological Chemistry. 277 (45), 42419-42422 (2002).
- Bayliss, R., Sardon, T., Vernos, I., Conti, E. Structural basis of Aurora-A activation by TPX2 at the mitotic spindle. Molecular Cell. 12 (4), 851-862 (2003).
- Zhang, Y., et al. Identification of the auto-inhibitory domains of Aurora-A kinase. Biochemical and Biophysical Research Communications. 357 (2), 347-352 (2007).
- Littlepage, L. E., Wu, H., Andresson, T., Deanehan, J. K., Amundadottir, L. T., Ruderman, J. V. Identification of phosphorylated residues that affect the activity of the mitotic kinase Aurora-A. Proceedings of the National Academy of Sciences of the United States of America. 99 (24), 15440-15445 (2002).
- Kufer, T. A., et al. Human TPX2 is required for targeting Aurora-A kinase to the spindle. The Journal of Cell Biology. 158 (4), 617-623 (2002).
- Eyers, P. A., Erikson, E., Chen, L. G., Maller, J. L. A novel mechanism for activation of the protein kinase Aurora A. Current Biology. 13 (8), 691-697 (2003).
- Brunet, S., et al. Characterization of the TPX2 Domains Involved in Microtubule Nucleation and Spindle Assembly in Xenopus Egg Extracts. Molecular Biology of the Cell. 15 (12), 5318-5328 (2004).
- Padilla-Parra, S., Tramier, M. FRET microscopy in the living cell: Different approaches, strengths and weaknesses. BioEssays. 34 (5), 369-376 (2012).
- Aoki, K., Kamioka, Y., Matsuda, M. Fluorescence resonance energy transfer imaging of cell signaling from in vitro to in vivo: Basis of biosensor construction, live imaging, and image processing. Development, Growth & Differentiation. 55 (4), 515-522 (2013).
- Fuller, B. G., et al. Midzone activation of aurora B in anaphase produces an intracellular phosphorylation gradient. Nature. 453 (7198), 1132-1136 (2008).
- Bertolin, G., et al. A FRET biosensor reveals spatiotemporal activation and functions of aurora kinase A in living cells. Nature Communications. 7, 12674(2016).
- Bertolin, G., et al. Optimized FRET Pairs and Quantification Approaches To Detect the Activation of Aurora Kinase A at Mitosis. ACS Sensors. 4 (8), 2018-2027 (2019).
- Bertolin, G., et al. Aurora kinase A localises to mitochondria to control organelle dynamics and energy production. eLife. 7, (2018).
- Sizaire, F., Le Marchand, G., Pécréaux, J., Bouchareb, O., Tramier, M. Automated screening of AURKA activity based on a genetically encoded FRET biosensor using fluorescence lifetime imaging microscopy. Methods and Applications in Fluorescence. 8 (2), 024006(2020).
- Demeautis, C., et al. Multiplexing PKA and ERK1&2 kinases FRET biosensors in living cells using single excitation wavelength dual colour FLIM. Scientific Reports. 7, 41026(2017).
- Ringer, P., et al. Multiplexing molecular tension sensors reveals piconewton force gradient across talin-1. Nature Methods. 14 (11), 1090-1096 (2017).
- Nagai, T., Yamada, S., Tominaga, T., Ichikawa, M., Miyawaki, A. Expanded dynamic range of fluorescent indicators for Ca(2+) by circularly permuted yellow fluorescent proteins. Proceedings of the National Academy of Sciences of the United States of America. 101 (29), 10554-10559 (2004).
- Klarenbeek, J., Goedhart, J., van Batenburg, A., Groenewald, D., Jalink, K. Fourth-Generation Epac-Based FRET Sensors for cAMP Feature Exceptional Brightness, Photostability and Dynamic Range: Characterization of Dedicated Sensors for FLIM, for Ratiometry and with High Affinity. PLOS ONE. 10 (4), 0122513(2015).
- Fritz, R. D., et al. A Versatile Toolkit to Produce Sensitive FRET Biosensors to Visualize Signaling in Time and Space. Science Signaling. 6 (285), (2013).
- Mastop, M., et al. Characterization of a spectrally diverse set of fluorescent proteins as FRET acceptors for mTurquoise2. Scientific Reports. 7 (1), 11999(2017).
- vander Krogt, G. N. M., Ogink, J., Ponsioen, B., Jalink, K. A Comparison of Donor-Acceptor Pairs for Genetically Encoded FRET Sensors: Application to the Epac cAMP Sensor as an Example. PLoS ONE. 3 (4), 1916(2008).
- Cranfill, P. J., et al. Quantitative assessment of fluorescent proteins. Nature Methods. 13 (7), 557-562 (2016).
- Goedhart, J., et al. Structure-guided evolution of cyan fluorescent proteins towards a quantum yield of 93. Nature Communications. 3 (1), (2012).
- Mérola, F., et al. Newly engineered cyan fluorescent proteins with enhanced performances for live cell FRET imaging. Biotechnology Journal. 9 (2), 180-191 (2014).
- Erard, M., et al. Minimum set of mutations needed to optimize cyan fluorescent proteins for live cell imaging. Molecular BioSystems. 9 (2), 258-267 (2013).
- Tramier, M., Zahid, M., Mevel, J. C., Masse, M. J., Coppey-Moisan, M. Sensitivity of CFP/YFP and GFP/mCherry pairs to donor photobleaching on FRET determination by fluorescence lifetime imaging microscopy in living cells. Microscopy Research and Technique. 69 (11), 933-939 (2006).
- Padilla-Parra, S., et al. Quantitative Comparison of Different Fluorescent Protein Couples for Fast FRET-FLIM Acquisition. Biophysical Journal. 97 (8), 2368-2376 (2009).
- Burgstaller, S., et al. pH-Lemon, a Fluorescent Protein-Based pH Reporter for Acidic Compartments. ACS Sensors. , (2019).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nature Methods. 14 (1), 53-56 (2016).
- Murakoshi, H., Shibata, A. C. E., Nakahata, Y., Nabekura, J. A dark green fluorescent protein as an acceptor for measurement of Förster resonance energy transfer. Scientific Reports. 5, 15334(2015).
- Murakoshi, H., Shibata, A. C. E. ShadowY: a dark yellow fluorescent protein for FLIM-based FRET measurement. Scientific Reports. 7 (1), 6791(2017).
- Leray, A., Padilla-Parra, S., Roul, J., Héliot, L., Tramier, M. Spatio-Temporal Quantification of FRET in living cells by fast time-domain FLIM: a comparative study of non-fitting methods [corrected]. PloS One. 8 (7), 69335(2013).
- Padilla-Parra, S., Audugé, N., Coppey-Moisan, M., Tramier, M. Quantitative FRET analysis by fast acquisition time domain FLIM at high spatial resolution in living cells. Biophysical Journal. 95 (6), 2976-2988 (2008).
- Song, L., Hennink, E. J., Young, I. T., Tanke, H. J. Photobleaching kinetics of fluorescein in quantitative fluorescence microscopy. Biophysical Journal. 68 (6), 2588-2600 (1995).
- Manfredi, M. G., et al. Characterization of Alisertib (MLN8237), an investigational small-molecule inhibitor of aurora A kinase using novel in vivo pharmacodynamic assays. Clinical Cancer Research: An Official Journal of the American Association for Cancer Research. 17 (24), 7614-7624 (2011).
- Katayama, H., et al. Phosphorylation by aurora kinase A induces Mdm2-mediated destabilization and inhibition of p53. Nature Genetics. 36 (1), 55-62 (2004).
- Nowakowski, J., et al. Structures of the Cancer-Related Aurora-A, FAK, and EphA2 Protein Kinases from Nanovolume Crystallography. Structure. 10 (12), 1659-1667 (2002).
- Palmer, A. E., Qin, Y., Park, J. G., McCombs, J. E. Design and application of genetically encoded biosensors. Trends in Biotechnology. 29 (3), 144-152 (2011).
- Grant, R., et al. Constitutive regulation of mitochondrial morphology by Aurora A kinase depends on a predicted cryptic targeting sequence at the N-terminus. Open Biology. 8 (6), 170272(2018).
- Shimozono, S., Miyawaki, A. Engineering FRET Constructs Using CFP and YFP. Methods in Cell Biology. 85, 381-393 (2008).
- Komatsu, N., et al. Development of an optimized backbone of FRET biosensors for kinases and GTPases. Molecular Biology of the Cell. 22 (23), 4647-4656 (2011).
- Schifferer, M., Griesbeck, O. A Dynamic FRET Reporter of Gene Expression Improved by Functional Screening. Journal of the American Chemical Society. 134 (37), 15185-15188 (2012).
- Peroza, E. A., Boumezbeur, A. H., Zamboni, N. Rapid, randomized development of genetically encoded FRET sensors for small molecules. Analyst. 140 (13), 4540-4548 (2015).
- Reboutier, D., et al. Aurora A is involved in central spindle assembly through phosphorylation of Ser 19 in P150Glued. The Journal of Cell Biology. 201 (1), 65-79 (2013).
- Mo, G. C. H., Posner, C., Rodriguez, E. A., Sun, T., Zhang, J. A rationally enhanced red fluorescent protein expands the utility of FRET biosensors. Nature Communications. 11 (1), 1848(2020).
Reimpresiones y permisos
