Nous décrivons ici les modalités de l'extraction et de purification de l'ARNm et de métabolites de Drosophila Têtes. Nous appliquons ces techniques pour mieux comprendre les perturbations cellulaires qui sous-tendent la dégénérescence neuronale. Ces méthodes peuvent être facilement mis à l'échelle et adapté à d'autres projets "omiques".
Article de méthode
Purification des relevés de notes et de métabolites
Dans cet article
Résumé
Résumé
Pendant la dernière décennie, nous avons essayé de comprendre les mécanismes moléculaires et cellulaires de la dégénérescence neuronale utilisant la drosophile comme organisme modèle. Bien que les mouches des fruits fournissent des avantages évidents expérimentales, la recherche sur les maladies neurodégénératives a surtout compté sur les techniques traditionnelles, y compris l'interaction génétique, histologie, immunofluorescence et biochimie des protéines. Ces techniques sont efficaces pour mécaniste, guidés par les hypothèses des études qui conduisent à une compréhension détaillée du rôle des gènes uniques à des problèmes bien définis biologiques. Cependant, les maladies neurodégénératives sont très complexes et touchent à plusieurs organites cellulaires et les processus au fil du temps. L'avènement des nouvelles technologies et l'âge omiques offre une occasion unique de comprendre les perturbations mondiales cellulaires sous-jacents des maladies complexes. Organismes modèles comme la drosophile flexibles sont idéales pour l'adaptation de ces nouvelles technologies en raison de leur forte annottion et de traçabilité élevé. Un défi à ces petits animaux, cependant, est la purification de molécules suffisamment d'information (ADN, ARNm, protéines, métabolites) à partir de tissus hautement pertinents, tels que les cerveaux de mouches. D'autres défis consiste à recueillir un grand nombre de mouches pour la réplique expérimentale (critique pour la robustesse statistique) et l'élaboration de procédures cohérentes pour la purification de matériaux de haute qualité biologique. Ici, nous décrivons les procédures de collecte des milliers de têtes de mouches et l'extraction des transcriptions et des métabolites de comprendre comment les changements globaux dans l'expression des gènes et le métabolisme contribuer à des maladies neurodégénératives. Ces procédures sont facilement évolutifs et peuvent être appliquées à l'étude des contributions protéomiques et épigénomiques à la maladie.
Introduction
Au siècle dernier, la drosophile s'est avérée être un outil précieux pour l'étude en laboratoire de profondes questions biologiques, notamment dans le développement, la biologie cellulaire, la génétique et de la neurobiologie 1. Les raisons de ce succès est que les mouches des fruits sont faciles à manipuler, avoir une boîte à outils en constante expansion 18, 21, 31, et possèdent un génome relativement simple de haute qualité annotation 26. Ces avantages techniques, combinées à l'ingéniosité et l'innovation constante dans la communauté volée, ont conduit à de larges contributions scientifiques, comme illustré par l'attribution de trois prix Nobel (1933, 1995, 2011). Plus récemment, la drosophile est apparue comme un modèle pertinent pour l'étude des maladies humaines, des troubles du développement, principalement l'immunité innée, le cancer et les maladies neurodégénératives 2. Nous sommes particulièrement intéressés à découvrir les bases cellulaires et moléculaires des maladies neurodégénératives. Ces co complexe et diversifiénditions sont liés à des assemblées, des oligomères solubles, peut-être des protéines anormalement repliées et sont, par conséquent, facilement modelable de mouches. Toutes les grandes maladies neurodégénératives, y compris la maladie d'Alzheimer, de Parkinson et la maladie de Huntington, la sclérose latérale amyotrophique, les ataxies plusieurs tauopathies, les maladies à prions, et d'autres maladies rares, ont été modélisés de mouches dans les quinze dernières années 23. Fly laboratoires ont contribué à la compréhension de ces maladies principalement en exploitant les prouesses de génétique de la Drosophile à identifier de nouveaux gènes impliqués dans la neurotoxicité des protéines pathogènes. Une fois que de nouveaux gènes pertinents pour la cascade neurotoxique sont identifiés, leurs effets sont généralement analysés par les méthodes traditionnelles, y compris histologie pour déterminer les modèles de dégénérescence, immunofluorescence pour déterminer la distribution des protéines et la pathologie cellulaire, et des analyses biochimiques pour évaluer la quantité et le type de conformations de protéines anormales . Enfin, comportementanalyse ioral sert une lecture fonctionnelle de résultats sanitaires. Ces techniques bien établies ont été exploitées pour examiner la contribution d'un ou de quelques gènes candidats à l'évolution de la maladie, y compris le stress oxydatif mitochondrial et la dysfonction 13, dérégulation transcriptionnelle 9, 27, 30, aberrante transport axonal et l'activité synaptique 14, anormale ARN biologie 9, cellulaire dérégulée de signalisation 29, dyshomeostasis ER 6, entravé protéostasie cellulaire 33, et bien d'autres 23. Toutefois, il n'est pas clair comment ces protéines toxiques peuvent perturber simultanément avec de multiples voies interconnectés, ce qui est la séquence temporelle de ces modifications, et quelle est la contribution relative de chaque voie à la pathogenèse. Des décennies de recherches ont porté sur un seul gène, guidés par les hypothèses des approches à la fois les humains et les modèles animaux ont conduit à une incomplet, curieux des mécanismes cellulaires qui provoquentneurodégénérescence. La compréhension actuelle mal les mécanismes exacts par lesquels ces assemblages protéiques toxiques causent neuropathologie est une contrainte majeure pour le développement de thérapies modifiant la maladie.
Nous sommes maintenant intéressés à l'application de nouvelles approches pour comprendre comment ces protéines pathogènes induisent des perturbations cellulaires mondiaux. L'avènement de l'ère omics permet la profondeur de sondage de complexes problèmes biologiques en utilisant sophistiquées technologies à haut débit, ce qui peut conduire à des traitements efficaces contre ces maladies dans un avenir proche. D'expression des gènes (transcriptome) des études ont été établies à l'issue de séquences génomiques multiples depuis de haute qualité annotation ne peut prédire la plupart des transcriptions. L'application récente de séquençage de nouvelle génération pour l'analyse transcription (ARN-seq) a fourni de nouveaux avantages et opportunités par rapport aux puces, y compris une approche impartiale, l'amélioration quantitative gamme, et un coût réduit 32.Nous voulons exploiter les avantages de l'ARN suivants afin de mieux comprendre la forme la plus commune de transmission dominante ataxie, l'ataxie spinocérébelleuse de type 3 (SCA3) ou maladie de Machado-Joseph. SCA3 est un monogénique, maladie dominante avec pénétrance complète, causé par une expansion CAG dans le gène trinucléotide Ataxin3 (ATXN3) 16. Cette mutation conduit à la production de la protéine avec un Atxn3 polyglutamine (polyQ) longue piste qui rend vulnérable aux granulats. Depuis mutant Atxn3 est l'agent neurotoxique dans SCA3 responsable de toutes les perturbations liées à la maladie, c'est une maladie idéal pour l'application de ces nouvelles approches omiques. En outre, SCA3 était l'une des premières maladies neurodégénératives modélisés dans les mouches 34.
Tout en mettant en place des procédures de collecte un grand nombre de têtes de mouches pour l'ARN-seq, nous avons réalisé que nous pourrions utiliser le même matériau pour la réalisation d'études globales d'autres molécules informationnelles. Parmi les autres discip émergentslignes, la protéomique, la métabolomique épigénomique, et permettre l'examen de la pathologie cellulaire à une profondeur pas encore atteint, mais non sans difficultés. Par opposition à l'ARNm, le catalogue de protéines et de métabolites est assez incomplète en ce moment en raison de la difficulté accrue à prévoir toutes les variantes possibles d'épissage et de l'origine encore plus énigmatique de toutes les métabolites normaux et pathogènes. De gros efforts sont en cours pour cataloguer protéines dans de nombreux organismes et dans des conditions pathologiques. Pour cela, nous avons voulu mettre l'accent sur la contribution des métabolites dégradés de SCA3 pathogenèse en utilisant un organisme simple comme la drosophile. Il s'agit d'un domaine relativement nouveau et prometteur, en particulier avec l'introduction récente de la résonance magnétique nucléaire (RMN), qui fournit une haute reproductibilité et ne détruit pas les 5 échantillons, 24. Nous proposons que le profilage métabolite peut contribuer à identifier les biomarqueurs et les mécanismes impliqués dans les maladies neurodegeneratisur.
Une considération importante à ces projets omiques est qu'elles nécessitent de grands échantillons uniformes (200 têtes volantes) ainsi que des techniques de purification précis pour minimiser les variations expérimentales. Nous avons commencé à recueillir des mouches en suivant les procédures que nous avions précédemment utilisées pour les puces et également utilisé récemment pour l'ARN-seq 12. Mais nous avons vite rencontré un certain nombre de problèmes liés à misexpressing les SCA3 constructions. Tout d'abord, nous avons dû choisir un pilote Gal4 pour ces 4 expériences, où le tissu cible pour l'analyse était le cerveau. Le choix évident serait un pilote pan-neurones depuis SCA3 est une maladie du cerveau. Toutefois, étant donné que nous avons l'intention de recueillir des ARNm et des métabolites de têtes entières, cette option produire du matériel mixte de tissus exprimant ou non l'expression des constructions. Pour générer des échantillons homogènes où toutes les cellules expriment les constructions, nous avons décidé d'utiliser un driver de ligne faible mais omniprésent, orpheline (da)-Gal4. Interespicotement, de nombreux gènes impliqués dans des maladies neurodégénératives, y compris ATXN3 20, ont une large distribution, ce qui rend le choix de l'expression ubiquitaire approprié. Ensuite, nous avons rencontré un autre problème: l'expression ubiquitaire de pathogènes Atxn3-78Q causé létalité au cours du développement. Pour contourner cette létalité, nous avons intégré GAL80 ts pour contrôler l'activation de Gal4 temporelle 19. Cela nous a permis de recueillir les mouches expérimentales, l'âge eux pour un maximum de 20 jours, les congeler et traiter leurs têtes lyophilisés pour les deux ARN (TRIzol) ou les métabolites (méthanol-chloroforme) extraction (figure 1). Nous avons déjà utilisé ce protocole pour obtenir des échantillons pour les analyses transcriptomiques et métabolomiques, mais il existe d'autres applications évidentes de cette technique (par exemple, la protéomique ou neuro-peptidomic analyses).
Aperçu expérimentale: L'objectif global de ces protocoles est de soutenir la collecte de consiéchantillons de stent de têtes de mouches pour l'extraction des transcriptions et des métabolites. L'objectif spécifique de ces procédures est d'acquérir des mouches exprimant Atxn3-27Q et 78Q-Atxn3 (non pathogènes et pathogènes constructions expérimentales) ainsi que LacZ (contrôle de construction), où un seul échantillon est composé de 200 têtes de mouches. Bien que la technologie actuelle permet l'analyse de très petits échantillons, y compris des cellules individuelles 28, nous avons regroupé 200 chefs d'éliminer une variation expérimentale, biologiques et techniques, ce qui nous permet d'identifier les changements cellulaires associés au processus de la maladie avec une confiance statistique élevé. Cette approche est conçue pour détecter uniquement les modifications de l'expression des gènes qui sont conformes à la population, nous diriger vers les voies les plus critiques conduite dégénérescence. Comme nous nous intéressons à l'âge dépendant des changements dans les têtes de ces mouches, chaque génotype a été obtenue à 1, 10, et 20 jours d'âge.
Un aspect fondamental de cesanalyses globales est la production de réplicats biologiques qui soutiennent une analyse statistique robuste. Notre expérience précédente avec des microréseaux et RNA-Seq suggère que l'analyse d'échantillons biologiques en trois exemplaires, offrant une forte signification statistique des données 11, 12. Nous décrivons dans la section 1) comment générer une réplique biologique unique (Rep 1) pour chaque point de génotype et de l'heure. Ces procédures peuvent être répétées pour générer Reps 2 et 3, ou fait en parallèle, à condition que chaque représentant est correctement identifié. Bien que trois Représentants est le but, la fixation d'un quatrième (voire cinquième) Rep est fortement recommandé de couvrir les questions liées à la faible rendement, perte de mouches au cours du vieillissement, ou la perte accidentelle de matériel (mouches, des têtes ou ARN) dans un ou plusieurs échantillons.
Nous avons trouvé que dix croix (bouteilles identifiées par des lettres AJ) une progéniture suffisante pour obtenir 200 têtes / génotype / heure du point. Un soin extrême doit être appliquée pour éviter toute confusion, car un grand nombre de bouteilles d'unre nécessaire pour obtenir une Rep (10 bouteilles x 3 x 3 génotypes points dans le temps = 90 bouteilles). Pour cela, nous avons désigné chaque bouteille à l'aide du génotype, point de temps, et la lettre de la bouteille. Par exemple, SCA3-27Q 20E se réfère à la cinquième bouteille (dix) des mouches exprimant Atxn3-27Q vieilli pendant 20 jours. Une fois la descendance Eclose, les mouches sont maintenus dans des flacons séparés marqués à l'identifiant unique.
Nous avons maintenu le nombre de mouches obtenus pour chaque échantillon, bouteille, et un point de collecte (matin et soir) dans une feuille de calcul Excel. Nous avons révisé le nombre de mouches par flacon avant de congeler afin de tenir compte de la létalité et évadés. À partir de ces chiffres définitifs, les flacons en ajoutant 200 mouches peut être facilement localisé avant d'ouvrir le congélateur, contribuant ainsi à la conservation des échantillons. Puisque les mouches recueillies à partir d'une bouteille ne peut être utilisé dans une Rep, nous avons maximisé leur contribution par répétition biologique, bien que tous les Reps contenues mouches de plusieurs bouteilles. Nous avons réservéles mouches de bouteilles non utilisées dans leur Rep prévue pour les représentants d'autres, comme des échantillons de remplacement, ou pour d'autres expériences connexes (western blot, qPCR).
Protocole
1. Génération d'un Répliquer congélation et les mouches (ATTENTION, azote liquide)
Objectifs: Recueillir au moins 200 femelles par génotype / heure du point d'éclair et de gel.
- Génotypes: GAL80 TS; da-Gal4, souche pour l'expression ubiquitaire de Gal4 sous le contrôle de la région progéniture de régulation sensible à la température et GAL80. Comme une ligne de commande, nous avons utilisé SAMU-LacZ, qui a déjà été montré pour induire aucun effet délétère. UAS-Atxn3-27Q et UAS-Atxn3-78Q, non pathogènes et pathogènes constructions expérimentales, respectivement. (Le Y, hs-Hid construction a déjà été utilisé pour une collecte plus efficace des femelles vierges, mais nous avons décidé contre lui en raison du temps supplémentaire nécessaire pour introduire Y, hs-Hid avec GAL80 ts; da-Gal4 sur les chromosomes II et III.)
- Développer toutes les actions en combinant 10 femelles et 5 mâles dans la bouteilles pour éviter le surpeuplement. Toutes les expériences ont été réalisées en Jazz Mix mouche médias, ce qui est facile à préparer et favorise une croissance rapide de la drosophile et faible infestation par les acariens.
- Recueillir 50 GAL80 ts; da-Gal4 les hommes, et 100 UAS-Atxn3-78Q vierges (une seule ligne SAMU sera utilisé comme exemple) pour chaque point dans le temps.
- Faites dix croix par génotype / heure du point. Anesthésier les hommes et les femmes sur le dioxyde de carbone (CO 2) lits / pad. Lieu dix HES-Atxn3-78Q vierges mouches (pas plus de cinq jours) et cinq hommes GAL80 ts; da-Gal4 dans chaque grande bouteille dopés avec de la pâte de levure (levure réhydratée sec). Étiqueter les bouteilles avec des génotypes, des points de temps, et les identificateurs de bouteille (lettres A à J), et les placer à 25 ° C.
- Après 2 jours, désactivez les adultes des bouteilles, ajouter une pincée de levure sèche et un jet d'eau optimal pour encourager la croissance des larves, et de placer les bouteilles à 18 ° C (GAL80 active,Gal4 refoulé). Ne copiez pas les croix, car cela pourrait introduire une variabilité expérimentale dans la descendance issue de fécondé par rapport à des femelles vierges. En outre, la descendance de chaque bouteille représente indépendante biologique répétitions (chaque bouteille produit descendance unique), mais transférés croix (copies) serait reproduit technique (descendance supplémentaire avec la même constitution génétique).
- Lorsque la descendance ecloses à 18 ° C, anesthésier sur le CO 2 canapé / pad, recueillir vierges des génotypes désirés, et les placer dans de petits flacons avec (de deux à douze mouches par flacon). Flacons signalés par l'identificateur de bouteille. Ne piscine vole de bouteilles différentes. Placer les flacons de retour à 18 ° C pendant 24 heures. Pour optimiser la descendance, continuer à recueillir les matins et les soirs consécutifs.
- Lorsque chaque flacon complète de 24 heures à 18 ° C, les déplacer à 29 ° C (GAL80 inactif, actif Gal4). C'est le jour 0, le point de départ de l'expérience, quand til transgènes initier leur expression.
- Transférez les mouches à nettoyer les flacons tous les 2 jours jusqu'à ce qu'ils atteignent jours 10 et 20.
- Quand les mouches atteignent l'âge souhaité (1, 10, 20 jours), compter et de les transférer à partir des flacons alimentaires en pré-étiquetés cryotubes à l'aide d'un petit entonnoir. Ne pas anesthésier les mouches. Inverser les flacons sur le banc.
- Attendre 30 minutes pour permettre aux mouches de se remettre du transfert (stress), puis flash geler les flacons par immersion dans de l'azote liquide et conserver dans un pré-étiquetés, congélateur pré-réfrigérés. N'oubliez pas congeler les mouches dans le même ordre ils ont été transférés à la cryovial, ce qui rend le temps passé dans l'uniforme cryovial dans les deux échantillons.
2. Collecte et lyophilisation des chefs Fly (Exécuter dans la salle froide, pré-refroidissement tous les équipements, ATTENTION, l'azote liquide et la glace sèche)
Objectif: Séparation rapide, la collecte et la lyophilisation des tissus.
- Assembléeble du tamis (maillage le plus grand dans la chambre supérieure pour recueillir les corps, le deuxième dans la chambre inférieure pour collecter les têtes, le couvercle sur la partie inférieure pour collecter les petites pièces) et les pré-refroidissement à -80 ° C pendant au moins 30 min.
- Collecter 200 mouches de cryotubes en maximisant la contribution de mouches provenaient de la même bouteille. Pour compenser les différences entre les mouches recueillies dans le matin ou le soir, faire en sorte que chaque échantillon utilise un identique matin / soir ratio (nous avons utilisé 47% matin / soir 53%). Remarque: les ARN résultant de deux échantillons de 100 têtes peuvent être combinés plus tard, afin de générer l'équivalent de 200 mouches dans une réplique unique.
- Refroidir un morceau de parafilm (~ 9 x 14 cm) sur glace sèche pendant 5 min.
- Videz les cryotubes avec les mouches complet sur le parafilm, un peu à la fois, nombre de mouches en utilisant le pinceau, et dans un autre magasin cryovial sur glace sèche jusqu'à atteindre 100 mouches.
- Trempez le filtre dans de l'azote liquide, ajouter les 100 mouches à la chamb supérieureer. Agiter le tamis vigoureusement pendant 1 min. Trempez-le dans de l'azote liquide à nouveau, et agiter pendant 1 min.
- Ouvrez le tamis, recueillir des chefs de la chambre inférieure dans un microtube, et l'endroit à -80 ° C.
- Ouvrez les microtubes, enveloppez-les dans du parafilm dessus, et faire de petits trous.
- Placer les échantillons dans le lyophilisateur pour un minimum de 2 jours.
3. L'ARN total d'extraction et de purification d'ARNm (Traiter toutes les surfaces avec RNaseZap; Gants changer fréquemment)
Objectif: Homogénéiser les tissus pour maximiser le rendement, d'extraire l'ARN total, et purifier l'ARNm.
- Retirer les échantillons du lyophilisateur et ajouter trois petites, stériles, billes de broyage en acier à chaque microtube. Place dans la Geno / Grinder, courez à 1.500 coups / min pendant 1 min.
- Ouvrir les tubes, ajouter 1 ml TRIzol, et sceller les tubes avec du parafilm. Mixer 1 min, appuyez sur les tubes à l'envers pour déloger les billes d'acier si nécessaire. Mixer 1 min.
- Ne pascentrifuger le tube à cet endroit (le tube sera fragile). Transférer le mélange (à l'exception des billes d'acier) dans un nouveau microtube sans RNase. Pellet débris cellulaires dans une microcentrifugeuse de table à 4 ° C pendant 10 min à 12.000 x g.
- Transférer le surnageant dans un nouveau microtube. Ajouter 0,1 volume de 1-bromo-3-chloropropane (BCP), agiter vigoureusement pendant 15 secondes. Incuber à température ambiante pendant 3 min. Faites tourner dans une microcentrifugeuse à 4 ° C pendant 15 min à 12.000 x g Remarque: de nombreux protocoles d'extraction d'ARN utiliser du chloroforme à ce stade; BCP a pour but de maximiser le rendement d'ARN en augmentant l'efficacité de la séparation de phase.. Garder les échantillons à 4 ° C pendant l'étape de centrifugation permettra également d'augmenter l'efficacité de la séparation de phase et de réduire la contamination de protéines et de l'ADN génomique dans la phase aqueuse.
- Transférer la phase aqueuse supérieure à un nouveau microtube. Précipiter l'ARN en ajoutant 0,5 volume d'isopropanol glacé; inverti six fois à mix. Incuber à température ambiante pendant 10 min. Faites tourner dans une microcentrifugeuse à 4 ° C pendant 10 min à 12.000 x g.
Remarque: En plus de la récupération de l'ARN, les protéines peuvent également être extraites à partir de la couche organique et interphase TRIzol, afin que les deux protéomique et transcriptomique analyses peuvent être effectuées sur les mêmes échantillons. Bien que nous n'ayons pas effectuer cette étape dans nos analyses, l'extraction TRIzol donne une excellente représentation de protéines solubles et une plus grande représentation de la membrane et les protéines nucléaires que la plupart tampon / détergent extractions. Lee et Lo 17 décrivent une procédure pour extraire des protéines à l'aide TRIzol appropriée pour des analyses protéomiques, y compris un gel 2-D et LC-MS/MS.
- Enlever le surnageant. Laver les ARN en ajoutant 1 ml glacée éthanol à 70% (utilisation de l'eau traitée au DEPC) et mélanger au vortex court. Faites tourner dans une microcentrifugeuse à 4 ° C pendant 5 min à 12.000 x g.
- Enlever le surnageant. Sécher à l'air le culot deu moins 15 min. Ajouter 80 ul d'eau DEPC au culot d'ARN et placez-le à 55 ° C pendant 10 min. Laisser à 4 ° C pendant la nuit.
- Déterminer la concentration d'ARN en utilisant le spectrophotomètre NanoDrop. Le rapport de l'absorbance à 260 nm/280 nm devrait se situer entre 1,8 et 2,1, avec 2,1 étant optimale.
- Prenez 30 pg d'ARN en vrac, ajouter 4 U de DNase I, 60 U RNasin, 10 pi de tampon de réaction 10x et eau traitée au DEPC pour porter le volume total à 100 ml. Incuber à 37 ° C pendant 20 min.
- Purifier les ARN en utilisant le kit RNeasy Mini. Suivez les instructions du fabricant, à l'exception effectuer toutes les centrifugations pendant 30 secondes et comprennent toutes les étapes «optionnels».
- Déterminer la concentration d'ARN en utilisant le NanoDrop, et d'évaluer la qualité de l'ARN en utilisant le "pico ARN total" essai sur un BioAnalyzer.
- Pour la purification d'ARNm, transférer 30 ul de Dynabeads à un tube de centrifugeuse sans RNase.
- Placer le tube sur l'aimant pendant 1-2 min et retirer le surnageant. Remettre en suspension les billes dans15 ul de tampon de liaison. Répéter.
- A partir de 5 ug d'ARN total, réglez le volume de 15 ul en utilisant de l'eau DEPC. Chauffer à 65 ° C pendant 2 min, et le placer sur la glace.
- Ajouter 15 ul d'ARN total aux 15 ul pré-lavés perles. Bien mélanger par pipetage toutes les 5 min pendant 30 min pour recuire les ARN aux billes. Placer sur l'aimant pendant 1-2 min et retirez tout le surnageant.
- Ajouter 35 ul de tampon de lavage Mix B. par pipetage soigneux. Placez-la sur l'aimant et retirer délicatement le surnageant. Répéter le lavage deux fois.
- Éluer l'ARNm en ajoutant 15 ul froid 10 mM de Tris-HCl (pH 7,5) et le chauffage à 80 ° C pendant 2 min. Immédiatement placer le tube sur l'aimant, transférer le surnageant dans un tube RNase-free, et congeler à -80 ° C. Quantifier comme en 3.8). Rendement devrait être ~ 1-5% de l'ARN total.
Pour les analyses métabolomiques, effectuez les protocoles 1 et 2), et de procéder à 4) ci-dessous:
4. Méthanol-chloroforme supplémentairection des métabolites
Objectif: Séparer les métabolites polaires et non polaires.
- Ajouter l'antioxydant butylhydroxytoluène (BHT) à l'chloroforme à une concentration de 0,1 mg / ml pour empêcher l'auto-oxydation des lipides au cours de l'extraction. Utilisez cette BHT-chloroforme pour toutes les étapes ultérieures.
- Transfert 200 têtes en réfrigérés, pré-pesée des tubes en polypropylène coniques bouchon à vis, les congeler à -80 ° C, et lyophiliser. Déterminer le poids sec.
- Mettre billes de zircone dans les tubes 5-7 et homogénéiser dans un bourrelet-batteur pour deux cycles de 20 sec à 800 Hz chacun.
- Sur la base du poids sec de l'échantillon le plus lourd, ajouter de l'eau, le méthanol et le chloroforme dans les proportions suivantes: 11,74 x méthanol; 10,59 x eau; 11,74 x chloroforme, où x est le poids le plus lourd de l'échantillon en grammes et le produit est le volume en ml. Ajouter tout le méthanol, tel que calculé et 45% de la quantité totale d'eau dans le tube de battage bourrelet contenant les têtes lyophilisées.
- Homogénéisationze dans le bourrelet batteur pendant deux cycles de plus de 20 secondes chacun.
- Combinez les volumes de chloroforme (100%) et le reste de l'eau (55%) dans un flacon en verre conique sur la glace. Ensuite, transférer le mélange des tissus (avec des perles) dans le flacon de verre. Agiter pendant 10 min. Incuber pendant 10 min sur la glace.
- Faites tourner dans une centrifugeuse à 4 ° C pendant 5 min à 2000 x g. Retirez la polaire (supérieure) de phase avec une pipette Pasteur (éviter les plastiques) et placer dans un microtube de seconde.
- Enregistrez le non-polaire (en bas) de phase dans un petit flacon de verre et congeler à -80 ° C. Sécher sous un courant d'azote gazeux, assurez-vous que le tuyau allant du réservoir d'azote est Tygon haute pureté pour éviter plastifiants dans l'extrait.
- Réhydrater la phase non polaire avec 620 ul chloroforme deutéré. Transfert 600 pi dans des tubes RMN marqués. Conserver dans un congélateur anti-déflagrant -80 ° C.
- Placez phase polaire dans le Centrivap et se poursuivra jusqu'au tube est complètement sec à 30 ° C (~ 7 h).
- Rehydrate la phase polaire avec 620 ul de tampon 0,1 M phosphate de sodium (pH 7,3) dans l'oxyde de deutérium avec 1 mM TMSP [3 - (triméthylsilyl) propionique-2 ,2,3,3-d4 acide] comme étalon interne. Vortex pendant 30 secondes. Faites tourner dans une microcentrifugeuse à 4 ° C pendant 5 min à 10000 rpm à pigments précipiter et d'autres molécules plus grosses qui interfèrent avec les spectres RMN. Transfert 600 pl du surnageant dans des tubes RMN marqués.
Résultats
Pour contourner la létalité induite par l'expression ubiquitaire de Atxn3 élargie sous le contrôle de da-Gal4, nous avons introduit régulation temporelle de Gal4 avec GAL80 ts. Mais avant de procéder à la collecte et à la congélation d'un grand nombre de mouches, nous avons voulu déterminer la dynamique d'expression de notre transgène sous le contrôle de GAL80 ts et da-Gal4. Pour ce faire, nous avons généré des croix, à gauche de la descendance à 18 ° C, a recueilli les mouches adultes, et les a maintenus pendant 24 heures à 18 ° C. Ensuite, nous avons placé les mouches à la température restrictive (29 ° C) et les incuber pendant 0, 6, 12, 24, 36, 48, et 72 h. Ensuite, nous avons détecté l'accumulation de l'allèle polyQ élargi par western blot des mouches simples à la suite publié des protocoles 10. L'expression a été détectée pour la première, mais faible 6 heures après changement de température et a continué à augmenter jusqu'à 48 h, où il a atteint des niveaux de saturation (figure 2A). Interespicotement, une bande de poids moléculaire élevé de polyQ insoluble est apparu après 48 heures, marquant ainsi le temps nécessaire pour que la protéine pour former de gros agrégats. Nous avons également disséqué les cerveaux mouche à chaque moment de déterminer la distribution de l'allèle élargi polyQ par immunofluorescence (figure 2B). La protéine a été détectée pour la première 24 heures après le changement de température, mais avec une distribution inégale. Entre 24 et 48 h les niveaux de protéine a continué d'augmenter, ce qui rend le cerveau de plusieurs centres bien visible, y compris les lobes antennaires et les projections du corps de champignon (figure 2B). Entre 48 et 72 heures l'expression de l'allèle élargi polyQ atteint des niveaux maximaux, ce qui suggère que le système Gal4 a été entièrement activés à ce moment. Sur la base de ces résultats, nous avons sélectionné 24 heures après le changement de température comme le premier point de temps (jour 1) pour les expériences ultérieures. Les collections de mouches 10 et 20 jours anciens ont également été mesurée à partir de la variation de température (timoi 0), qui est le moment où l'expérience démarre avec la nouvelle expression des transgènes pathogènes et de contrôle.
Une fois que nous avons vérifié que Atxn3 a été détectée après 24 heures sous le contrôle de GAL80 ts et da-Gal4 à 29 ° C, nous nous demandions si ces mouches qui montrent des signes de dégénérescence plus de 20 jours. Étant donné que ces mouches commencer à exprimer les protéines pathogènes comme les adultes, nous craignions qu'ils pourraient avoir besoin d'une longue période d'incubation de montrer phénotypes neurodégénératives. Pour déterminer la toxicité des Atxn3-78Q, dans ces conditions, nous avons recueilli les mouches exprimant LacZ, Atxn3-27Q, 78Q et Atxn3-, et ont enregistré leur longévité. Alors que les mouches exprimant LacZ et Atxn3-27Q affiché sur la viabilité de 90% après 20 jours, des mouches exprimant Atxn3-78Q montré faible taux de survie au jour 20 (30%) (figure 3). En fait, Atxn3-78Q mouches ont commencé à mourir le jour 10 (7% de mortalité) et au jour 15, la perte était importante (20%), qui s'est accélérée au cours des cinq dernières days. Ainsi, ces résultats indiquent que l'expression d'un gène adulte pathogène donné lieu à raccourcir la durée de vie, un signe clé des phénotypes neurodégénératives induites par Atxn3-78Q.
L'un des aspects les plus importants de ce protocole est le traitement et la conservation des échantillons après congélation pour assurer la qualité de la matière extraite. Nous avons extrait entre 15-80 ug d'ARN total par 200 têtes (selon l'âge et le génotype) avant traitement à la DNase selon NANODROP. Environ un tiers (6-25 mg) ont été récupérés sous forme très pure ARN après traitement à la DNase par le rapport de l'absorbance à 260 nm/280 nm. Cependant, nous avons trouvé que la meilleure façon de déterminer la qualité de l'ARN pour la préparation de banques d'ADNc de l'ARN-seq était d'analyser l'ARN total sur le BioAnalyzer. Heureusement, seule une petite quantité d'ARN (5 ng) a été utilisé sur le BioAnalyzer, de sorte qu'il n'a pas d'incidence sur la capacité de produire plusieurs bibliothèques par exemple. A titre d'exemple, nous avons organisé deux échantillons du totalARN avant traitement à la DNase sur une puce BioAnalyzer, l'un d'eux soupçonné d'être dégradés (Figure 4A-C). La haute qualité d'ARN (échantillon 1) produit trois fortes bandes d'ARN, deux seulement en dessous de 2000 nucléotides (nt) dans la taille et une petite bande en dessous de 200 nt, représentant les ARN ribosomaux (figure 4A). Les deux bandes d'environ 2000 nt correspondent à l'ARNr 18S (pic plus faible) et deux fragments de l'ARNr 28S (grand pic), qui est un aspect unique de la biologie ARNr chez la drosophile (voir la figure 4B). Ces qualités ont également été observés dans les traces bioanalyser (figure 4B). En revanche, un échantillon d'ARN dégradé (échantillon 2) n'ont pas produit les pics acérés des ARN ribosomique et accumulé plusieurs bandes de moins de 500 nt (figure 4A). Cette distribution de la taille a été facile à distinguer dans les traces bioanalyser (figure 4C), dans lequel des pics larges de taille plus courte ont été observés. Il est également important de noter wcomme la différence entre les unités de l'axe des ordonnées entre les échantillons d'ARN deux, qui ont démontré que l'échantillon dégradé eu moins d'ARN. Seul l'ARN afficher un maximum de qualité (ratio NanoDrop de l'absorbance à 260 nm/280 nm entre 1,8 et 2,1, avec 2,1 étant optimale, voir 3.8 étape du protocole) sera utilisé pour la génération de bibliothèques.
Pour l'extraction des métabolites, nous avons suivi une eau classique / méthanol / chloroforme (2.0:2.0:1.8) la procédure d'extraction 3 fendu en deux étapes afin d'optimiser l'extraction des métabolites polaires et non polaires 35. Après séparation des phases polaires et non polaires, on les reconstituée dans l'eau lourde ou chloroforme deutéré, respectivement, et ajouter des étalons internes pour analyse par RMN. Les spectres RMN obtenus en utilisant cette méthode d'extraction ont été bien résolus avec des bases plates et étroites lignes (figure 5), ce qui indique la purification des extraits de haute qualité, adapté à la fois un profilage métaboliqued l'identification d'un grand nombre de métabolites. La figure 5 montre l'identification de quelques pics importants correspondant à des métabolites très abondants, comme le glucose et le saccharose, et deux clés acides métaboliques, le lactate et l'acétate, selon les déplacements chimiques dans la littérature 7. Le déplacement chimique (en parties par million) représente le blindage électromagnétique d'une molécule par rapport à une molécule standard (TMS, le premier pic de la droite). Plus shieldedmolecules ont une plus grande densité d'électrons autour du noyau et apparaît à la droite du spectre, y compris les alkyles. Déblindés molécules tels que l'amide et les hydrogènes aromatiques apparaît à la gauche du spectre. La section du milieu occupé (ppm 3-4) est enrichi en molécules de sucre.

Figure 1. Flux de production expérimentale. Tout d'abord, nous avons mis en croix pour recueillir les mouches des génotypes désirés (rangée du haut). Ensuite, on passe vierges à 29 ° C pour activer l'expression des gènes, les ans pour 1, 10 et 20 jours, et le flash-les congeler (deuxième rangée). Nous avons ensuite collecter des têtes congelés en utilisant un micro-tamis (troisième rangée). Les têtes sont lyophilisées, broyées et traitées pour l'extraction de l'ARN (quatrième ligne) ou les métabolites (rangée du bas).
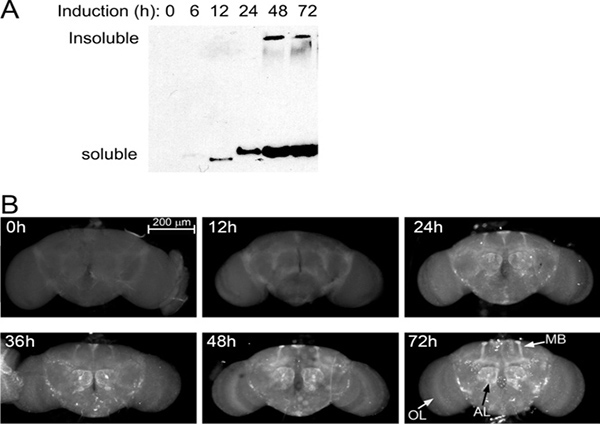
Figure 2. Cinétique d'expression (A) Western blot montrant Atxn3-78Q expression (GAL80 ts; da-Gal4 / UAS-Atxn3-78Q) chez les mouches. Incubées à 29 ° C de 0 à 72 heures. Une faible bande est détectée à 6 heures et la saturation est atteinte par 48 heures après l'induction. (B) par immunofluorescence de cerveaux entiers dans les mêmes mouches. Les cerveaux ont été disséqués, fixé, und colorées avec un anticorps qui reconnaît la protéine polyQ expansé. La protéine est détectée dans les champignonnières du corps (MB) des projections et des lobes antennaires (AL). Entre 48 et 72 heures, l'expression atteint des niveaux maximum et est très visible dans les centres du cerveau avec abondante innervation. Le niveau d'expression par neurone est faible comme on le voit dans le lobe optique (OL), sauf dans quelques neurones importants entre l'OL et le cerveau central.
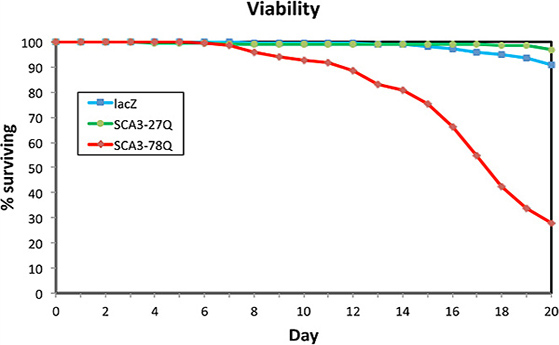
Figure 3. Atxn3-78Q réduit la durée de vie mouches exprimant LacZ, Atxn3-27Q, 78Q et Atxn3-ubiquitaire dans les stades adultes (GAL80 ts; da-Gal4). Ont été suivis pendant leur durée de vie à 29 ° C. Les mouches exprimant LacZ (bleu) et Atxn3-27Q (vert) ont montré de faibles niveaux de mortalité au jour 20. En revanche, les mouches exprimant Atxn3-78Q (rouge) s'afficheun taux de mortalité prononcée à partir du jour 10. En 15 jours, ils ont montré une réduction de 20% de la viabilité, qui s'est accélérée au cours des cinq prochains jours, atteignant un taux de mortalité de 70% au jour 20.
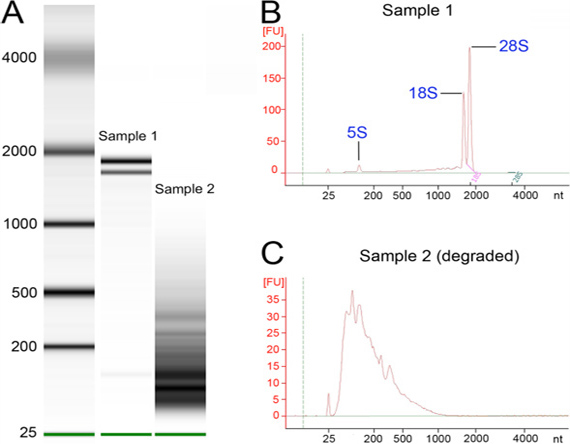
Figure 4. Évaluation de la qualité d'ARN. L'ARN à partir de haute qualité et des échantillons dégradés a été exécuté sur une puce BioAnalyzer. (A) BioAnalyzer de fonctionner avec une haute qualité d'ARN (échantillon 1) et une dégradation d'ARN (échantillon 2) à côté d'un marqueur de taille (voie de gauche). Notez les trois pics nets correspondant à l'ARN ribosomique dans l'allée centrale. (B) BioAnalyzer traçage pour échantillon 1, avec deux pics caractéristiques de solides juste en dessous de 2.000 nt et une autre au-dessous de 200. (C) le traçage pour BioAnalyzer échantillon 2, qui se compose essentiellement de l'ARN dégradé. Notez la différence dans les unités sur l'axe des ordonnées entre les panneaux B et C.
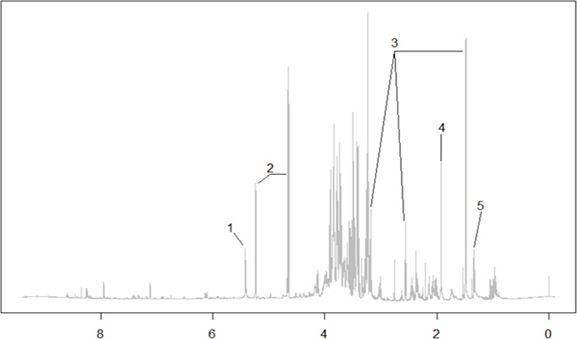
Figure 5. Représentant des spectres RMN 1D de métabolites polaires. Représentant spectre RMN du proton 1D de métabolites polaires de la drosophile et complémentaires 2D COSY (spectroscopie de corrélation) et HSQC (corrélation quantique unique hétéronucléaire) expériences pour l'identification des pics. Les métabolites identifiés selon chimique connu des changements-1: Saccharose; 2: Glucose; 3: La bêta-alanine; 4: Acétate; 5: Lactate.
Discussion
Forts de notre expérience dans la transcriptomique 11, 12, métabolisme 15, et les maladies neurodégénératives 6, 8, nous présentons ici un nouveau protocole pour la collecte de milliers de têtes de mouches adultes avec une expression spécifique des gènes pathogènes, et l'ARNm purifier et de ses métabolites pour l'ARN- suivants et spectroscopie RMN, respectivement. La nature de ces expériences nécessaire l'intégration de plusieurs innovations avant la collecte mouche, y compris la sélection d'une ligne omniprésente Gal4 et l'utilisation de la régulation temporelle de l'expression des gènes. En ce qui concerne Gal4, expression ubiquitaire des transgènes a été cruciale pour deux raisons. Tout d'abord, un grand nombre de gènes impliqués dans les maladies neurodégénératives, y compris ATXN3, la huntingtine, la protéine précurseur amyloïde, et superoxyde dismutase 1, entre autres, sont largement exprimés dans les cellules neuronales et gliales ainsi que dans d'autres types cellulaires en dehors du système nerveux. Nous voulionsmodéliser correctement cet aspect de la biologie de ces gènes pathogènes en analysant les conséquences de l'expression omniprésente plutôt que de se concentrer uniquement sur l'expression de neurones. Deuxièmement, il n'est pas possible de recueillir des cerveaux de mouches en grand nombre, mais nous pouvons le faire avec des têtes de mouches (plus de 200 en trois exemplaires, par condition) 11, 12. Homogénéisation de têtes depuis entiers mélanges tissus nerveux et non neuronal, l'expression du transgène ubiquitaire devient critique pour l'obtention d'ARN uniformes et des métabolites à partir de populations de cellules exprimant les transgènes mêmes. Il est important de noter que da-Gal4 a été choisi pour sa distribution relativement homogène, pas à cause de son niveau d'expression élevé, même si une étude récente suggère que da-Gal4 peut-être pas totalement omniprésent 25. Nous avions déjà envisagé d'autres omniprésents Gal4 lignes, y compris les bras, baignoire-et-Loi Ga4, mais ils ont tous montré des profils d'expression complexes dans le SNC adulte et les muscles, ce qui les rend moins undequate pour cette étude. En fait, l'immunofluorescence dans le cerveau adulte a montré que da-Gal4 induit l'expression répandue, mais faible, qui ne accumulées à des niveaux élevés dans les centres cérébraux constitués de quelques milliers d'axones et dans quelques neurones de grande taille (figure 2). Bien que les niveaux d'expression des constructions étaient faibles, ces conditions réduit considérablement la survie d'une manière polyQ-dépendante. Cette dynamique d'expression répondu à nos besoins tout en gardant une faible expression, ce qui était important pour l'observation des lentes, progressives des altérations cellulaires induites par des protéines neurotoxiques.
Une conséquence prévisible d'induire l'expression ubiquitaire de protéines neurotoxiques, c'est qu'il a causé létalité avant l'éclosion des adultes. Heureusement, cette complication fut contournée par l'utilisation de GAL80 ts. Comme indiqué plus haut, l'expression du gène atteint des niveaux maximaux d'environ 48 h après le changement de température, ce qui cadre bien avec le temps frame de l'expérience. Un avantage supplémentaire de l'utilisation GAL80 ts, c'est que, contrairement aux expériences où les protéines neurotoxiques sont exprimées de manière constitutive pan-neurale, il n'y avait pas d'expression au cours du développement du système nerveux. Ainsi, l'utilisation de GAL80 ts créé un "propre" arrière-plan où le système nerveux n'a pas été exposé aux activités toxiques de ces protéines neurotoxiques au cours de stades sensibles du développement. À notre avis, l'activation de l'expression des gènes chez les adultes conduit à un meilleur modèle pour cette catégorie de pathologies de l'adulte. Cependant, GAL80 ts a également présenté quelques complications associées aux changements de température. La première est que les mouches croissance à basse température (18-20 ° C) ont retardé le cycle de vie, ce qui rend les expériences significativement plus longue. En outre, il est bien connu que les mouches croissance à des températures élevées (29-31 ° C) accélère leur métabolisme, comme l'illustre la durée de vie raccourcie par rapport aux mouches âgés de moins 25 ° C. Since les études de la transcription et métabolique sera effectué dans les mouches âgées à haute température, on peut s'attendre à voir des changements importants dans les voies de stress cellulaire et le métabolisme énergétique. C'est pourquoi il est si important d'introduire deux contrôles à l'expérience, l'un avec le non-pathogène Atnx3-27Q et un contrôle sans rapport exprimant LacZ. Ces contrôles fournissent une base pour l'expression des gènes et des changements métaboliques associés à température élevée afin que nous puissions identifier les changements directement liés à l'expression de Atxn3 toxiques. Dans l'ensemble, nous avons introduit plusieurs modifications à la collection de mouches qui offrent de nombreux avantages - et quelques inconvénients (problèmes de température et le paragraphe suivant) - pour l'étude de l'adulte, des maladies évolutives.
Bien que la régulation temporelle avec GAL80 ts est un ajout utile, il a également introduit une complication inattendue. Alors que la génération des mouches portant à la fois un GAL80 tsnd da-Gal4 constructions dans un stock stable, nous avons remarqué que vole doublement homozygotes pour les deux constructions étaient viables mais stériles. Depuis homozygote GAL80 ts et da-Gal4 souches étaient viables et fertiles par eux-mêmes, il n'est pas clair pourquoi la combinaison affiché une faible fécondité. On sait depuis un certain temps que Gal4 est légèrement toxique pour les tissus Drosophila 22. Il est donc possible que l'expression hétérologue de la levure GAL80 répresseur transcriptionnel contribué à la toxicité de Gal4 en interférant, potentiellement, avec la machinerie transcriptionnelle endogène. Cette toxicité peut être aggravé par la distribution ubiquitaire de Gal4 sous le contrôle de da, un gène qui joue un rôle clé dans le développement précoce et la détermination sexuelle. Quelles que soient les causes sous-jacentes de la stérilité, nous avons élargi le ts GAL80; da-Gal4 mouches par le maintien d'un chromosome d'équilibrage sur da-Gal4 tout en gardant le homozygosity pour GAL80 t s, ce qui suggère que Gal4 est un contributeur plus important pour la stérilité. Cette solution a été la clé parce que nous avons utilisé des centaines de ces hommes toutes les deux semaines pour traverser avec chacun des transgènes UAS. Toutefois, la réalisation d'une traverse d'équilibrage de travail supplémentaire créée lors de la sélection de la descendance appropriée. Seul un quart (25%) de la descendance ont été recueillis (les femelles, non-équilibrage), qui a ajouté le temps de sélection, réduit le rendement par bouteille, et a augmenté le nombre de bouteilles nécessaires à l'obtention d'au moins 200 mouches par génotype / reproduire / heure point. Dans l'ensemble, bien que la collecte de mouches est devenu beaucoup de temps à cause des grands ensembles nécessaires, nous sommes convaincus que l'étude des changements cellulaires quelques heures seulement après avoir allumé l'expression des gènes pathogènes ubiquitaire permettra d'identifier de nouveaux procédés et intéressant impliqués dans la perte neuronale progressive.
Une fois que la conception génétique est en place, nous avons accordé une attention particulière à lamanipulations expérimentales qui pourraient introduire une variabilité biologique. Tout d'abord, nous avons seulement recueilli des femelles vierges afin d'assurer l'homogénéité des échantillons, même si cela signifiait jeter les mâles et la vérification de la descendance deux fois par jour. Au cours du vieillissement, pas plus de 12 mouches ont été maintenus dans le même flacon pour éviter la surpopulation et le stress. Aussi, avant de les congeler, les mouches ont été transférés à cryotubes sans anesthésie et ont pu récupérer du transfert pendant 30 min. Ces facteurs apparemment insignifiants peuvent influer sur l'expression des gènes et le métabolisme, l'introduction de la variabilité dans l'analyse finale qui ne serait pas pertinente à l'expérience.
Pour garantir la qualité des matériaux gelés (têtes, l'ARN et les métabolites), nous avons accordé une attention particulière à chaque détail qui peut contribuer à la dégradation des tissus. Puisque les mouches sont transférés à cryotubes en petit nombre (jusqu'à 12 mouches par flacon), nous avons dû récupérer des flacons de nombreux pour la collecte de 200 têtes. Ces manipulations ont été dune avec un soin extrême dans une chambre froide avec de la glace carbonique et azote liquide. La collection de mouches, la séparation des têtes, et la purification de molécules d'information prend trop de temps pour découvrir que le matériel a été dégradé à la fin de ce long processus. En plus de veiller à ce que le matériau conserve sa qualité, ce protocole décrit plusieurs mesures qui maximisent le rendement de l'ARN et des métabolites, y compris la lyophilisation et les coups de talon. Ces étapes ne sont pas nécessaires pour les extractions normal pour la RT-PCR ou PCR quantitative des mouches entiers, mais ils sont essentiels pour la purification constante à partir d'échantillons de petite taille tels que les têtes de mouches. Nous avons déterminé que d'autres mesures affectent le rendement de l'ARN. Par exemple, les personnes âgées mouches produites ARN nettement moins que les jeunes mouches, quel que soit le génotype. Cette observation suggère que le vieillissement à haute température provoque des changements dramatiques. En outre, l'extraction d'ARN à partir de 100 chefs était en fait plus efficace que de 200 têtes, donc nous avons procédé à purifier dans deux batches de 100 par échantillon, pour les combiner après vérification de la qualité avec le BioAnalyzer. En outre, les colonnes de purification d'ARNm semblait saturer facilement, de sorte que la quantité d'ARN total utilisé par colonne doit être optimisé.
Les métabolites sont un mélange diversifié de petites molécules, donc le contrôle de qualité est plus difficile que l'ADN, l'ARN ou les protéines. Malheureusement, il n'existe pas de catalogue complet de métabolites pour tout modèle animal à ce moment, quelque chose qui pourrait changer dans les prochaines années grâce à quelques l'application de plusieurs innovations technologiques, y compris la spectroscopie RMN et l'utilisation accrue de la chromatographie liquide - spectrométrie de masse ( LC-MS). Bien que la RMN est moins sensible que la SP, il présente de nombreux avantages prometteurs, notamment l'absence de destruction des échantillons, aucune procédure d'analyse qui introduisent des biais (LC), et une reproductibilité élevée qui permet la comparaison statistique des Représentants et plusieurs conditions expérimentales 24. Ainsi, l'échantillon peut êtreun nouveau test afin de vérifier les observations ou ré-analysés par LC-MS pour valider les données de RMN. Ici, nous avons montré données RMN préliminaires de mouches que nous utilisons pour compiler un catalogue de métabolites chez la drosophile. Cette information sera essentielle pour déterminer comment l'expression des gènes pathogènes modifie le métabolisme normal, l'ouverture d'une nouvelle fenêtre pour faire avancer la compréhension des mécanismes cellulaires qui sous-tendent les maladies neurodégénératives.
Émergentes technologies omiques offrent la meilleure opportunité pour étudier les maladies neurodégénératives à un niveau de détail n'est pas atteint auparavant. Peut-être le plus grand obstacle à surmonter dans ces études à haut débit est la collecte d'échantillons fidèle reproductibles qui peuvent être analysés avec des méthodes très sensibles. Les procédures mises en place ici fournissent un moyen de parvenir à cette cohérence, et conduira à des résultats qui peuvent être facilement comparés entre les ensembles de données. Bien que nos principaux intérêts de recherche impliqué des changements examen de gène expresseions et des métabolites, les mouches générés pourraient également être soumises à une analyse protéomique ou épigénomique. Modifications protéomiques et épigénomiques survenant pendant la neurodégénérescence sont également susceptibles d'être d'une importance primordiale pour le processus de la maladie. Lorsque la communauté scientifique identifie finalement le spectre complet des changements moléculaires impact sur le processus de la maladie, une compréhension véritable niveau des systèmes de la maladie sera possible. A ce niveau, les thérapies modifiant la maladie finira par s'imposer comme une réalité.
Déclarations de divulgation
Les auteurs déclarent aucun conflit d'intérêts financiers.
Remerciements
Nous sommes reconnaissants à Janice Santiago, Gabriel Figueroa et José Herrera pour l'assistance technique et la drosophile Bloomington Stock Center à l'Université d'Indiana pour les stocks à la mouche. DH et CW ont été soutenus par des fonds de la NSF-IOS-1051890. PF-F et LMM ont été pris en charge par un fonds de stimulation de chances de l'Université de Floride.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Réactif | Entreprise | Cat. Nombre | Commentaires |
| Jazz mélange Drosophila alimentaire | Fisher Scientific | AS-153 | |
| Les flacons cryogéniques | Corning, Inc | 430658 | |
| Microtubes | Axygen | MCT-175-CS | |
| RNaseZap | Ambion | AM9786 | Traiter toutes les surfaces |
| 5/32 "boulets de broyage en acier inoxydable | Diagnostics OPS | ESG 156-5000-01 | |
| TRIzol | Ambion | 15596018 | |
| 1-bromo-3-chloropropane | Sigma | B9673-200ML | |
| Isopropropanol | Fisher Scientific | A416-500 | |
| Eau traitée au DEPC | Fisher Scientific | BP561-1 | |
| DNase I | Promega | M6101 | |
| RNasin ribonucléase inhibiteur | Promega | N2111 | |
| RNeasy Mini Kit | Qiagen | 74104 | |
| Kit Dynabeads purification d'ARNm | Invitrogen | 610-06 | |
| Les tubes coniques bouchon à vis | Fisher Scientific | 02-681-344 | |
| Vis Caps w / O-Rings | Fisher Scientific | 02-681-364 | |
| 2,0 mm billes de zircone | Produits BIOSPEC | 11079124zx | |
| Methanol, de qualité CLHP | Fisher Scientific | A4524 | |
| Chloroforme, de qualité CLHP | Acros Organics | AC39076 | |
| Stocks de drosophile | |||
| da-Gal4 | Bloomington Stock Center | 5460 | |
| GAL80 [ts] | Bloomington Stock Center | 7108 | |
| UAS-MJD-27Q | Bloomington Stock Center | 8149 | |
| UAS-MJD-78Q | Bloomington Stock Center | 8150 | |
| HES-LacZ | Bloomington Stock Center | 8529 | |
| Équipement | |||
| Injecter + MatSleeper ic | INJECT + MATIC | ||
| Microtamis Set | Fisher Scientific | 3410531 | Utilisez deux plus grandes mailles |
| Geno / Grinder 2000 | Exemple de préparation SPEX | SP2100-115 | |
| Microcentrifugeuse Légende Sorvall | ThermoScientific | 75002436 | |
| FreeZone Plus 2.5 L Système Gel Cascade à sec | Labconco | 7670041 | |
| BioAnalyzer v 2.6 | Agilent | 2100 | |
| Dynamag-2 Aimant | Invitrogen | 123-21D | |
| Spectrophotomètre NanoDrop | ThermoScientific | ||
| Préparation rapide perles batteur | ThermoScientific | FP120 | |
| Centrivap Vacufuge plus | Labconco | 022820001 |
Références
- Bellen, H. J., Tong, C., Tsuda, H. 100 years of Drosophila research and its impact on vertebrate neuroscience: a history lesson for the future. Nat. Rev. Neurosci. 11, 514-522 (2010).
- Bier, E. Drosophila, the golden bug, emerges as a tool for human genetics. Nat. Rev. Genet. 6, 9-23 (2005).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction and purification. Can. J. Biochem. Physiol. 37, 911-917 (1959).
- Brand, A. H., Perrimon, N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development. 118, 401-415 (1993).
- Bundy, J. G., Papp, B., Harmston, R., Browne, R. A., Clayson, E. M., Burton, N., Reece, R. J., Oliver, S. G., Brindle, K. M. Evaluation of predicted network modules in yeast metabolism using NMR-based metabolite profiling. Genome Res. 17, 510-519 (2007).
- Casas-Tinto, S., Zhang, Y., Sanchez-Garcia, J., Gomez-Velazquez, M., Rincon-Limas, D. E., Fernandez-Funez, P. The ER stress factor XBP1s prevents amyloid-beta neurotoxicity. Hum. Mol. Genet. 20, 2144-2160 (2011).
- Fan, T. W. M. Metabolite Profiling by One and Two-Dimensional NMR Analysis of Complex Mixtures. Proress in Nuclear Magnetic Resonance Spectroscopy. 28, 161-219 (1996).
- Fernandez-Funez, P., Casas-Tinto, S., Zhang, Y., Gomez-Velazquez, M., Morales-Garza, M. A., Cepeda-Nieto, A. C., Castilla, J., Soto, C., Rincon-Limas, D. E. In vivo generation of neurotoxic prion protein: role for hsp70 in accumulation of misfolded isoforms. PLoS Genet. 5, e1000507(2009).
- Fernandez-Funez, P., Nino-Rosales, M. L., de Gouyon, B., She, W. C., Luchak, J. M., Martinez, P., Turiegano, E., Benito, J., Capovilla, M., Skinner, P. J., McCall, A., Canal, I., Orr, H. T., Zoghbi, H. Y., Botas, J. Identification of genes that modify ataxin-1-induced neurodegeneration. Nature. 408, 101-106 (2000).
- Fernandez-Funez, P., Zhang, Y., Casas-Tinto, S., Xiao, X., Zou, W. Q., Rincon-Limas, D. E. Sequence-dependent prion protein misfolding and neurotoxicity. J. Biol. Chem. 285, 36897-36908 (2010).
- Graze, R. M., McIntyre, L. M., Main, B. J., Wayne, M. L., Nuzhdin, S. V. Regulatory divergence in Drosophila melanogaster and D. simulans, a genomewide analysis of allele-specific expression. Genetics. 183, 547-561 (2009).
- Graze, R. M., Novelo, L. L., Amin, V., Fear, J. M., Casella, G., Nuzhdin, S. V., McIntyre, L. M. Allelic imbalance in Drosophila hybrid heads: exons, isoforms, and evolution. Mol. Biol. Evol. 29, 1521-1532 (2012).
- Greene, J. C., Whitworth, A. J., Kuo, I., Andrews, L. A., Feany, M. B., Pallanck, L. J. Mitochondrial pathology and apoptotic muscle degeneration in Drosophila parkin mutants. Proc. Natl. Acad. Sci. U.S.A. 100, 4078-4083 (2003).
- Gunawardena, S., Goldstein, L. S. Disruption of axonal transport and neuronal viability by amyloid precursor protein mutations in Drosophila. Neuron. 32, 389-401 (2001).
- Hahn, D. A., Denlinger, D. L. Energetics of insect diapause. Annu. Rev. Entomol. 56, 103-121 (2011).
- Kawaguchi, Y., Okamoto, T., Taniwaki, M., Aizawa, M., Inoue, M., Katayama, S., Kawakami, H., Nakamura, S., Nishimura, M., Akiguchi, I., et al. CAG expansions in a novel gene for Machado-Joseph disease at chromosome 14q32.1. Nat. Genet. 8, 221-228 (1994).
- Lee, F. W., Akiguchi, S. C. The use of Trizol reagent (phenol/guanidine isothiocyanate) for producing high quality two-dimensional gel electrophoretograms (2-DE) of dinoflagellates. J. Microbiol. Methods. 73, 26-32 (2008).
- Matthews, K. A., Kaufman, T. C., Gelbart, W. M. Research resources for Drosophila: the expanding universe. Nat. Rev. Genet. 6, 179-193 (2005).
- McGuire, S. E., Le, P. T., Osborn, A. J., Matsumoto, K., Davis, R. L. Spatiotemporal rescue of memory dysfunction in Drosophila. Science. 302, 1765-1768 (2003).
- Paulson, H. L., Das, S. S., Crino, P. B., Perez, M. K., Patel, S. C., Gotsdiner, D., Fischbeck, K. H., Pittman, R. N. Machado-Joseph disease gene product is a cytoplasmic protein widely expressed in brain. Ann. Neurol. 41, 453-462 (1997).
- Pfeiffer, B. D., Ngo, T. T., Hibbard, K. L., Murphy, C., Jenett, A., Truman, J. W., Rubin, G. M. Refinement of tools for targeted gene expression in Drosophila. Genetics. , 186-735 (2010).
- Rezaval, C., Werbajh, S., Ceriani, M. F. Neuronal death in Drosophila triggered by GAL4 accumulation. Eur. J. Neurosci. 25, 683-694 (2007).
- Rincon-Limas, D., Jensen, K., Fernandez Funez, A. Drosophila models of proteinopathies: the little fly that could. Curr. Pharm. Des. 18, 1108-1122 (2012).
- Robinette, S. L., Ajredini, R., Rasheed, H., Zeinomar, A., Schroeder, F. C., Dossey, A. T., Edison, A. S. Hierarchical Alignment and Full Resolution Pattern Recognition of 2D NMR Spectra: Application to Nematode Chemical Ecology. Anal. Chem. , (2011).
- Simon, A. F., Daniels, R., Romero-Calderon, R., Grygoruk, A., Chang, H. Y., Najibi, R., Shamouelian, D., Salazar, E., Solomon, M., Ackerson, L. C., Maidment, N. T., Diantonio, A., Krantz, D. E. Drosophila vesicular monoamine transporter mutants can adapt to reduced or eliminated vesicular stores of dopamine and serotonin. Genetics. 181, 525-541 (2009).
- Smith, C. D., Shu, S., Mungall, C. J., Karpen, G. H. The Release 5.1 annotation of Drosophila melanogaster heterochromatin. Science. 316, 1586-1591 (2007).
- Steffan, J. S., Bodai, L., Pallos, J., Poelman, M., McCampbell, A., Apostol, B. L., Kazantsev, A., Schmidt, E., Zhu, Y. Z., Greenwald, M., Kurokawa, R., Housman, D. E., Jackson, G. R., Marsh, J. L., Thompson, L. M. Histone deacetylase inhibitors arrest polyglutamine-dependent neurodegeneration in Drosophila. Nature. 413, 739-743 (2001).
- Tang, F., Barbacioru, C., Nordman, E., Li, B., Xu, N., Bashkirov, V. I., Lao, K., Surani, M. A. RNA-Seq analysis to capture the transcriptome landscape of a single cell. Nat. Protoc. 5, 516-535 (2010).
- Tare, M., Modi, R. M., Nainaparampil, J. J., Puli, O. R., Bedi, S., Fernandez-Funez, P., Kango-Singh, M., Singh, A. Activation of JNK signaling mediates amyloid-ss-dependent cell death. PLoS One. 6, e24361(2011).
- Taylor, J. P., Taye, A. A., Campbell, C., Kazemi-Esfarjani, P., Fischbeck, K. H., Min, K. T. Aberrant histone acetylation, altered transcription, and retinal degeneration in a Drosophila model of polyglutamine disease are rescued by CREB-binding protein. Genes Dev. 17, 1463-1468 (2003).
- Venken, K. J., Bellen, H. J. Transgenesis upgrades for Drosophila melanogaster. Development. , 134-3571 (2007).
- Wang, Z., Gerstein, M., Snyder, M. RNA-Seq: a revolutionary tool for transcriptomics. Nat. Rev. Genet. 10, 57-63 (2009).
- Warrick, J. M., Chan, H. Y., Gray-Board, G. L., Chai, Y., Paulson, H. L., Bonini, N. M. Suppression of polyglutamine-mediated neurodegeneration in Drosophila by the molecular chaperone HSP70. Nat. Genet. 23, 425-428 (1999).
- Warrick, J. M., Paulson, H. L., Gray-Board, G. L., Bui, Q. T., Fischbeck, K. H., Pittman, R. N., Bonini, N. M. Expanded polyglutamine protein forms nuclear inclusions and causes neural degeneration in Drosophila. Cell. 93, 939-949 (1998).
- Wu, H., Southam, A. D., Hines, A., Viant, M. R. High-throughput tissue extraction protocol for NMR- and MS-based metabolomics. Anal. Biochem. 372, 204-212 (2008).
Réimpressions et autorisations
