ההפעלה של סר/ת'ר קינאז AURKA רב תכליתית מסומנת על ידי ההתפשטות האוטומטית שלה על Thr288. בדיקות פלואורסצנטיות המסתמכות על FRET יכולות להפלות בין המצבים הלא פעילים והפעילים שלה. כאן, אנו מדגימים כמה אסטרטגיות להנדסת בדיקה, יחד עם פרוטוקול FRET מהיר כדי לעקוב אחר הפעלת קינאז לאורך מיטוזה.
מאמר שיטה
ניטור בזמן אמת של אורורה קינאז הפעלה באמצעות Biosensors FRET קונפורמציה בתאים חיים
במאמר זה
סיכום
תקציר
סרטן האפיתל מסומן לעתים קרובות על ידי ביטוי יתר של Ser / Thr קינאז אורורה A / AURKA. AURKA הוא חלבון רב תכליתי המופעל על ההתפשטות האוטומטית שלו על Thr288. שפע AURKA מגיע לשיאו במיטוזה, שם הוא שולט ביציבות ובנאמנות של הציר המיטוטי, וביעילות הכללית של מיטוזה. למרות מאופיין היטב ברמה המבנית, ניטור עקבי של ההפעלה של AURKA לאורך מחזור התא חסר. פתרון אפשרי מורכב משימוש בביו-סנסורים של העברת אנרגיית תהודה (FRET) המקודדים גנטית של Förster כדי לקבל תובנה לגבי החשיפה האוטומטית של AURKA עם רזולוציה מרחבית מספקת. כאן, אנו מתארים פרוטוקול להנדס biosensors FRET זיהוי Thr288 autophosphorylation, וכיצד לעקוב אחר שינוי זה במהלך מיטוזה. ראשית, אנו מספקים סקירה כללית של זוגות FRET תורמים/מקבלים אפשריים, ואנו מראים שיטות שיבוט והכנסה אפשריות של ביו-סנסורים של AURKA FRET בתאי יונקים. לאחר מכן, אנו מספקים ניתוח שלב אחר שלב למדידות FRET מהירות על ידי מיקרוסקופיה הדמיה לכל החיים פלואורסצנטיות (FLIM) על התקנה שנבנתה בהתאמה אישית. עם זאת, פרוטוקול זה חל גם על פתרונות מסחריים חלופיים הזמינים. אנו מסכמים על ידי התחשבות בבקרות FRET המתאימות ביותר עבור ביו-סנסור מבוסס AURKA, ועל ידי הדגשת שיפורים עתידיים פוטנציאליים כדי להגביר עוד יותר את הרגישות של כלי זה.
מבוא
אורורה קינאז A/AURKA הוא סרין רב תכליתי/קינאז תרוניני, פעיל לאורך מחזור התאים ובתאים תת-תאיים שונים1. הבנת ההפעלה המרחבית הרחבה שלה חשובה במיוחד בסרטן, שכן AURKA מתבטאת לעתים קרובות יתר על המידה בממאירות אפיתל והמטולוגית, כאשר חולים מראים היענות לקויה לטיפולים הזמינים כיום2.
מחקרים מבניים גילו כי AURKA עוברת שני שלבים כדי להפוך מ קינאז לא פעיל לקינאז פעיל. ראשית, החשיפה האוטומטית של Thr288 משנה את הקונפורמציה של הכיס הקינטי של הקינאז ומפעילה אותו 3,4,5,6. צעד זה מגביר את הפעילות הקטליטית של AURKA בתאים אנושיים ובקסנופוס לאביס3,6,7, ומכין את הקינאז לפעילות מלאה. לאחר ההפעלה, האינטראקציה של AURKA עם חלבון הפילוח עבור Xklp2 (TPX2) גורמת לשינוי קונפורמציה שני5. שינוי נוסף זה מאפשר לאאורקה להגיע לפעילות אנזימטית מלאה לקראת המצעים שלה בתא 5,8,9,10.
במשך כמעט שני עשורים, תובנות על ההפעלה והפעילות של AURKA התקבלו בעיקר באמצעות שילוב של גישות ביוכימיות. אלה כוללים את הזיהוי של Thr288 זרחן בתאים או ויוו כסימן היכר של הפעלת AURKA, ניתוחים קריסטלוגרפיים, במבחנה או בבדיקות קינאז צלולו כדי לחקור את הפעילות של AURKA1. עם זאת, הרזולוציה המרחבית של גישות אלה היא ירודה או נעדרת, והיה צורך בפתרונות חדשניים כדי להרחיב את הידע על הדינמיקה של שני אירועים אלה.
הפיתוח של בדיקות פלואורסצנטיות בשנים האחרונות הקל על ניטור של AURKA בתאים חיים, ומאפשר את הבא של הפעלתו עם רזולוציה מרחבית גדולה יותר. החיישנים הספציפיים ביותר עבור AURKA שפותחו עד כה מסתמכים על עיקרון FRET (העברת אנרגיית התהודה של Förster)11 כדי להפלות בין AURKA לא פעילה ופעילה. החיישן הראשון שפותח היה ביו-סנסור מבוסס מצע של פעילות AURKA kinase. ביו-סנסורים מבוססי מצע מורכבים על ידי רצף אמינו-סידי קצר המיועד לקינאז נתון לזרחן, ומוכנסים בתוך זוג FRET של תורם/מקבל ותחום מחייב המזהה את שאריות הזרחן, המסייע בקיפול הביו-סנסור לתהליך FRET יעיל12. במקרה של AURKA, שבר 14-aminoacid של KIF2C ממוקד על ידי זרחן הוכנס בין תורם CFP-YFP / מקבל זוג13. עם זאת, לחיישן זה יש כמה חסרונות גדולים. ראשית, רצף KIF2C המשמש בגשוש זה יכול להיות ממוקד הן על ידי AURKA והן על ידי קינאז AURKB הקשורים קשר הדוק, ובכך להקטין את הספציפיות של biosensor זה. שנית, החיישן מסתמך על קינאז אנדוגני עבור זרחן. לכן, יעילות FRET יכולה להיות בלתי ניתנת לגילוי או לא משמעותית אם כמויות הקינאז מגבילות (למשל, בתאים תת-תאיים או בשלבי מחזור תאים). כדי להתגבר על מגבלות אלה, סוג חדש של חיישן AURKA נוצר המכונה "חיישנים קונפורמצונליים". בבדיקות אלה, הרצף באורך מלא של AURKA הוכנס בתוך פלואורופור תורם ב N-terminus, ופלואורופור מקבל ב C-טרמינוס. AURKA הלא פעילה מציגה קונפורמציה "פתוחה", המרחיקה את ה- N וה- C-termini של הקינאז זה מזה. עם מרחק כזה בין שני termini (> 10 ננומטר), זוג התורם / מקבל נמצאים בתצורה לא מתירנית עבור FRET. להיפך, AURKA האוטוספורית מאמצת קונפורמציה "סגורה", כאשר שני טרמיני החלבון ושני הפלורופורים נמצאים בסמיכות. זה הוכח לאפשר FRET בין התורם לבין המקבל, אשר ניתן למדוד באמצעות הווריאציות בחיי התורם14,15. בדיקות כאלה מציגות מספר יתרונות. ראשית, הם מקודדים גנטית, והם יכולים לשמש כדי להחליף את קינאז אנדוגני בתא. שנית, הם מצילים את הפנוטיפים הנגרמים על ידי הנוקאאוט של AURKA, המציין כי הם פונקציונליים בתא. שלישית, הם מאפשרים לעקוב אחר ההפעלה של קינאז בתאים תת-תאיים שונים ולאורך מחזור התא. הבדיקות זיהו את ההפעלה של AURKA במקומות שבהם הקינאז ידוע להיות מופעל (כלומר centrosomes ואת הציר המיטוטי), וגם השתתפו בגילוי ההפעלה של AURKA במיטוכונדריה16. לבסוף, חיישנים אלה אפשרו הקרנות תוכן גבוה המבוססות על FRET / FLIM, שם השינויים הקונפורמציה של AURKA שימשו לזיהוי מעכבים פרמקולוגיים חדשניים17.
בעבודה הנוכחית, אנו מתארים הליך להמחשה של הפעלת AURKA בתאים מתורבתים. ראשית, אנו נעשה תובנה על זוגות פלואורופור פוטנציאליים עבור FRET. הבחירה של זוג התורמים/ מקבל המתאים ביותר תיעשה על פי הגדרת המיקרוסקופ הזמינה, או יישום במורד הזרם מסוים כמו מולטיפלקס FRET18,19. לאחר מכן, אנו מציעים צינור כדי לחקור את ההתנהגות של biosensor(ים) שנבחר בהגדרת מיקרוסקופ FRET / FLIM מהירה. צינור זה יתרחב מתרביות תאים ותהליכי סינכרון לרכישת FLIM וניתוח נתונים. לבסוף, נדון ביתרונות הפוטנציאליים של פרוטוקול זה, שכן אסטרטגיה אנלוגית לעיצוב ביו-סנסור יכולה להיות מיושמת על קינאות אחרות, וניתן להשתמש בה גם עם מערכות הדמיה אחרות המבוססות על FRET.
פרוטוקול
הערה: תאי U2OS המשמשים בפרוטוקול זה נרכשו מאוסף תרבות הסוג האמריקאי (ATCC, HTB-96), והם נבדקו ללא מיקופלסמה. שלב 2.1 עד 2.7 צריך להתבצע תחת מכסה מנוע זרימה למינארי כדי לשמור על תאים ריאגנטים סטריליים.
1. בחירת התורם/מקבל זוג FRET
- עיין בספרות לבחירת זוגות ה- FRET המתאימים ביותר לתורם/ מקבל. דוגמאות שימושיות ניתן למצוא ב20,21,22,23,24, אם כי הבחירה הסופית חייבת להיעשות על פי המאפיינים של הגדרת FRET / FLIM (קווי לייזר זמינים, מסננים וכו '). להלן מספר שיקולים כיצד לבחור זוג תורמים/מקבלים.
- בחירת התורם: עיין בבסיס FP (https://www.fpbase.org/) לקבלת סט שלם של מידע על החלבונים הפלואורסצנטיים הזמינים. מסד נתונים זה מתעדכן כל הזמן עם כל הפלורופורים החדשים שפותחו.
- עיין במסד הנתונים הביו-סנסור פלואורסצנטי (https://biosensordb.ucsd.edu/index.php) לקבלת מידע נוסף על הביו-סנסורים שכבר זמינים בספרות, יחד עם החלבונים הפלואורסצנטיים המתאימים המשמשים.
- כנקודת התחלה כללית, בחר פלואורופור תורם בהיר. מועמדים טובים הם חלבונים פלואורסצנטיים ציאן כמו mTFP1 או ECFP, או וריאנטים GFP כמו EGFP או mEGFP.
- אוליגומרים יכולים להשפיע על לוקליזציה של חלבון ו/או פונקציה25. שקול להשתמש במוטנטים מונומריים של CFP כמו mTurquoise226, או Aquamarine27,28. לגרסאות אלה יש גם תפוקה קוונטית טובה ומקדמי הכחדה, מה שהופך אותם למועמדים טובים כתורמי FRET.
- תן עדיפות לחלבונים פלואורסצנטיים (הן כתורם והן כמקבלים) שאינם רגישים לשינויים סביבתיים כמו pH23 תאי, או להלבנה פוטואורסצנטית25, מכיוון שיעילות FRET יכולה להיות מושפעת מאוד מפרמטרים אלה29. כיום, פלואורופורים כמו mTurquoise2 או mTFP1 נמצאים בשימוש נרחב כתורמים, הודות לצילום הטוב שלהם22,25,26.
- בחירת המקבל: תורמי ציאן משויכים לעתים קרובות עם וריאנטים של חלבון פלואורסצנטי צהוב (YFP), כמו mVenus, Citrine ו- YPet20,21,22,30. עם זאת, יש לציין כי חלבונים אלה יש רגישות הרבה יותר גדולה pH, ברחבי העולם להציג phototability ירודה.
- שקול להשתמש בגרסאות צהובות שפותחו לאחרונה, ללא רגישות pH של YFP כמו pH-Lemon31, פלואורופורים ירוקים כמו mNeonGreen23 או פלואורופורים אדומים כמו mScarlet-I23,32 כמקבלי פלואורסצנט שאומתו בעבר עבור mTurquoise2.
- לחלופין, שקול להשתמש בנגזרות לא פלואורסצנטיות/כהות של YFP כ- ShadowG33 או ShadowY34, אשר הוכחו כמקבלים טובים עבור תורמים ציאן-פלואורסצנטיים בניסויי FRET / FLIM.
- אם אתה משתמש ב-mEGFP כתורם, שקול להשתמש במקבלים אדומים מונומריים כ-mCherry.
- אמת את המאפיינים הספקטרליים של זוג התורמים/מקבלים שנבחרו באמצעות הכלים הזמינים באתר האינטרנט של בסיס FP. ראו איור 1 לדוגמה של זוג mEGFP/mCherry.
- באתר האינטרנט של בסיס FP, בחר בתפריט הנפתח כלים ובחר מציג ספקטרה.
- בתפריטים הנפתחים, הזינו את שם זוג הפלואורופורים להדמיה (לדוגמה, mEGFP ו-mCherry).
- לדמות את המאפיינים של זוג התורם/מקבל עם מקור אור מסוים על ידי בחירת לייזר נתון בתפריט הנפתח. לחלופין, הזן אורך גל לייזר ספציפי על-ידי בחירה באפשרות הוסף לייזר. לחץ על נרמול הפליטה לאפשרות זו כדי להתאים את ספקטרום הפלואורופור לאורך הגל הרצוי. כאן, אורך הגל המשמש כדי לרגש GFP הוא ב 480 ± 10 ננומטר.
- שכפל את זוג התורמים/מקבלים הנבחרים על-ידי הוספת פלואורופור אחד בטרמינל N של רצף אורך מלא של AURKA, ואחד בסיום C. בצע את ההנחיות של שיטת השיבוט המועדפת כדי להכניס מבנה זה בווקטור ביטוי יונקים של בחירה.
2. תרבות תאים, טרנספקטיבה וסנכרון
- יום 1. הכן מדיום תרבית לתאי U2OS: השתמש במדיום הנשר המתוקן (DMEM) של Dulbecco בתוספת סרום בקר עוברי 10% (FBS), 1% פניצילין-סטרפטומיצין ו-1% L-גלוטמין (מכאן ואילך, מדיה של צמיחה מלאה). לחלופין, ניתן להשתמש גם ב- DMEM עם L-גלוטמין בתוספת מראש.
- אם התאים קפואים, הפשירו בקבוקון לפחות 8 ימים לפני הניסויים (כלומר, מנקודה 2.5 ואילך).
- לגדל תאים באינקובטור המוקדש תרביות תאים יונקים ב 37 °C (5° פרנהייט) עם 5% CO2. לנקות ולחטא את האינקובטור באופן קבוע כדי למנוע זיהומים.
- כאשר התאים מגיעים ~ 80% מפגש:
- לשטוף אותם בקצרה עם סטרילי 1x תמיסת מלח חוצץ פוספט (PBS) ללא Ca2 + ו Mg2 +.
- טריפסין תאים עם סטרילי 0.05% טריפסין-EDTA על פי פרוטוקול היצרן ועל ידי הצבת תאים באינקובטור במשך 1-3 דקות.
- להשבית טריפסין על ידי הוספת נפח כפול של מדיה צמיחה מלאה; לערבב היטב.
- צנטריפוגה השעיית התא ב 800 x g במשך 3-5 דקות.
- לספור את התאים באמצעות hemocytometer ולחשב את הדילול המתאים להם להיות ~ 70-80% מפגש בשקופיות החדר ביום שאחרי. לחלופין, ניתן להשתמש גם בתמיכות דומות להדמיית תאים חיים.
- צנרת את הנפח המתאים של תאים בתמיכה בהדמיית התא החי שנבחרה, והחזרת תאים לאינקובטור עד היום שאחרי.
- יום 2. המשך עם טרנספקטוקציה. פעל בהתאם להנחיות של שיטות המעבר הארעיות המועדפות כדי להשיג יעילות טרנספקטיבה אופטימלית (~ 50/80%). אין צורך בשיטת העברה ספציפית. שים לב כי יעילות ההעברה עשויה להשתנות בהתאם לקו התא שבו נעשה שימוש. דגירה במשך 48 שעות.
הערה: הפק שיבוטים יציבים המכילים כל אחד משלושת הווקטורים כדי לעקוף את הצורך בתעבורות ארעיות. בשלב זה, יש לתכנן שני סוגים של פקדים. ראשית, נדרשת בקרה "תורמת בלבד" כדי לוודא שנוכחותה של AURKA באורך מלא אינה מפריעה לאורך החיים של mTurquoise2 כשלעצמה. שנית, ביו-סנסור הנושא מוטציה מתה קינאז צריך לשמש כבקרה שלילית שבה FRET מבוטל או יורד באופן משמעותי. לחלופין למוטנט מת קינאז, מעכב כימי של הפעלת AURKA כמו MLN8237 אנלוגי ATP יכול לשמש שליטה שלילית.- תכנן מראש שלושה תנאי העברה, כל אחד מהם בבאר עצמאית:
וקטור "תורם בלבד" (למשל, AURKA-mTurquoise2)
"biosensor" (למשל, superYFP-AURKA-mTurquoise2)
קינאז-מת/"K162M" biosensor (למשל, superYFP-AURKA K162M-mTurquoise2) או לחילופין, מעכב של הפעלת AURKA (למשל, MLN8237) - בצע שלושה תנאים עבור כל זוג תורמים/מקבלים עצמאיים להשוואה.
- שקול להכפיל את מספר הבארות שהושפעו אם משווים תאים לא מסונכרנים ותאים מסונכרנים G2/M מסונכרנים (ראה שלב 2.6).
- תכנן מראש שלושה תנאי העברה, כל אחד מהם בבאר עצמאית:
- יום 3. סנכרנו תאים ב-G2/M. הוסיפו 100 ננוקודזול 100 ננוקודזול/מ"ל המומס ב-DMSO לכל אחד מהם, תוך הימנעות מחשיפה לאור ודגרה למשך 16 שעות (רצוי בן לילה). אם משווים תאים לא מסונכרנים ו- G2/M מסונכרנים, לטפל בכל מצב transfection עם נוקודזול או עם נפח שווה של DMSO. לקבלת יעילות סינכרון טובה יותר, הכן aliquots לשימוש חד פעמי של נוקודזול ב- DMSO, אחסן אותם בטמפרטורה של -20 °C (60 °F) והשלך אותם לאחר השימוש.
הערה: יעילות סינכרון התאים עשויה להשתנות בין שורות תאים. הריכוז האופטימלי של נוקודזול וזמן הדגירה שלו צריך להיקבע באופן ניסיוני על ידי גישות cytometry זרימה לפני ניסויי FRET / FLIM. עבור ניתוחי FRET/FLIM רלוונטיים סטטיסטית, אנו ממליצים על יעילות סינכרון ב- G2/M של לפחות 50% מאוכלוסיית התאים הכוללת. - יום 4. שטיפת נוקודזול והדמיה FRET / FLIM על תאים מיטוטיים
- הסר את מדיום התרבות עם פיפטה ולהחליף אותו עם PBS טרום מחומם, סטרילי. יש להימנע מחשיפה לאור במידת האפשר. נענע בעדינות את הצלחת.
- חזור על הליך הכביסה, תמיד הימנעות חשיפה לאור.
- הסר את שטיפת PBS השנייה והחלף אותה במדיום L-15 ליבוביץ L-15 שחומם מראש, בתוספת 20% סרום בקר עוברי (FBS) ו-1% פניצילין-סטרפטומיצין (מכאן ואילך, מדיית הדמיה).
הערה: מדיה הדמיה יש לרכוש ללא אינדיקטורים pH (למשל, פנול אדום) ורכיבים בינוניים כמו ריבופלבין. חומרים אלה הם מקור של autofluorescence שיכול להפריע ערכים לכל החיים. - המשך עם הדמיית FRET / FLIM. מזער את השינויים המהירים בטמפרטורה והמשיך לשלב ההדמיה (שלב 3) מהר ככל האפשר. שקול להגן על המדגם מפני אור תוך העברתו למערך המיקרוסקופ (כלומר, על ידי עטיפתה בנייר אלומיניום או הצבתה בקופסה).
3. רכישות FRET/FLIM
הערה: רכישות FRET/FLIM בפרוטוקול זה בוצעו במערך שנבנה בהתאמה אישית, תואר ב-35 ומצויד בפתרון בקרה כמו ב-15,17 (איור 2). ההתקנה ממוסחרת כעת על ידי Inscoper והיא עשויה ממיקרוסקופ ספינינג-דיסק עם לייזר לבן לעירור פעמו, ומעצם מגודר בזמן גבוה מול המצלמה. שערים זמניים של 2 ns בחלון זמן של 10 ns משמשים ברצף כדי להשיג ערימה של חמש תמונות מגודרות זמן. תמונות אלה משמשות לאחר מכן לחישוב אורך החיים של הפלואורסצנטיות הממוצעת של פיקסל אחר פיקסל בהתאם למשוואה הבאה: τ = ΣΔΔTTI • Ιi/ ΣΙi, כאשר Δti מתאים לזמן ההשהיה של שער ה- i בזמן שאני מציין את תמונת העוצמה המגודרת של פיקסל אחר פיקסל 35,36 . שיטה זו מבטיחה מדידות FLIM מהירות: אין צורך בשלבי התאמה או binning, וניתן לחשב את משך החיים במצב מקוון, עם תקציב פוטון מינימלי. המערכת מציגה גם ממשק תוכנה ידידותי למשתמש. עם זאת, אותו ניסוי יכול להתבצע תחת כל הגדרת מיקרוסקופ מסחרית אחרת המצוידת למדידות FLIM.
- כדי להבטיח שחרור אופטימלי של תאים מהבלוק G2/M לתוך מיטוזה, לבצע ניסויים ב 37 °C (50 °F). במידת האפשר, בצע ניסויי FRET / FLIM עם תצורות מיקרוסקופ המצוידות בתא תרמוסטטי.
- הפעל את התא התרמוסטטי של המיקרוסקופ לפחות 30 דקות עד 1 שעה לפני הניסוי.
- הפעילו את הלייזר, המצלמה, מערך המיקרוסקופ ותוכנת ההדמיה (איור 2).
- בחר את אורכי הגל המתאימים של עירור ופליטה עבור הפלואורופור התורם. אפשרויות אורכי גל נוחים הן: λex 440/10 ננומטר ו- λem 483/35 nm עבור mTurquoise2 (איור 3A); λex 488/10 nm ו- λem 525/50 nm עבור GFP) (איור 3B).
- קבעו את זמן החשיפה, בדרך כלל בין 30 ל-100 אלפיות השנייה (איור 3). היזהר כי כוח לייזר מופרז עלול לגרום אפקטים פוטוטוקסיים המושרה כמו הלבנת פוטו, אשר בתורו יכול לשנות את חיי הפלואורסצנטיות37. על ההתקנה, לאמת את היעדר אירועי photo הלבנת על ידי ניטור עוצמת הפלואורסצנטיות של השער הראשון במהלך רכישות זמן לשגות. אם ניתן להבחין בווריאציות בעוצמת הפלואורסצנטיות, בטל את הרכישה והתאם את עוצמת הלייזר.
הערה: בהתקנה כאן, בחר זמן חשיפה המאפשר לפחות 3000 רמות אפורות בשער הראשון; אחרת התוכנה לא תחשב את משך החיים של התורם. ערך רמת אפור זה מתאים לתקציב הפוטונים המינימלי הדרוש להשגת ערכי משך חיים רלוונטיים. - לפני השקת רכישות FRET / FLIM, ודא כי תאים נכנסו מיטוזה על ידי המתנה עד המראה של ציר דו קוטבי (~ 20/30 דקות בתאי U2OS). מכיוון ש-AURKA המיטוטית הופכת למקומית בעיקר במבנה זה, אמת את ההתקדמות המיטוטית על-ידי סינון היווצרות הציר בתאים ישירות מתחת למיקרוסקופ, עם מקור אור חיצוני (איור 1). שים לב שהזמן הדרוש להתקדמות מיטוטית עשוי להשתנות בהתאם לקו התא בו נעשה שימוש.
- אם הטיפול עם MLN8237 מתוכנן, למקם את התאים מתחת למיקרוסקופ ולאפשר להם להגיע מטפאזה (כ. 20 דקות לאחר שטיפה nocodazole). הוסף 250 ננומטר MLN8237 מומס ב- DMSO הן לתאים המבטאים את המבנה התורם בלבד והן לתאים המבטאים את הביו-סנסור.
- שלוט במצב זה על תאים שהועברו כנ"ל ודגור עם נפח שווה של DMSO. לקבלת עיכוב AURKA טוב יותר, להכין aliquots לשימוש חד פעמי של MLN8237 ב- DMSO, לאחסן אותם ב -80 °C (80 °F). להפשיר אותם על ידי הנחת aliquots על קרח, ולהשליך אותם לאחר השימוש.
- דגירה במשך 10 דקות. לאחר תקופה זו, הציר המיטוטי יתכווץ ונשארה רק נקודה אחת ואינטנסיבית. פנוטיפ דומה הוא ציין כאשר מוטציות K162M משמשים.
- לרזולוציה טובה יותר של הציר המיטוטי, השתמשו לפחות במטרה של פי 63 (איור 3).
- לאחר שנמצא תא במטפאזה (ראו איור 4 כדוגמה לתא במטפאזה), התאם את קואורדינטות xyz כדי למקם אותו במרכז שדה הראייה.
- לתמונות מהירות יותר, בחרו מישור z אחד בודד. בחר את המישור שבו הציר המיטוטי גלוי יותר או אינטנסיבי יותר.
- התחל את ההקלטה. זמן הרכישה עשוי להשתנות בהתאם להגדרת FLIM המשמשת (מכמה שניות לדקה). רוב ההתקנות המסחריות הזמינות בשוק יפרטו הן את מיקרוגרף הפלואורסצנטיות והן את מפת אורך החיים של פיקסל אחר פיקסל. שמור את שתי התמונות.
- השג לפחות 10 תמונות עצמאיות מכל מצב של טרנספקטציה ו/או טיפול.
4. חישוב ΔLifetime והשוואת ערכי FLIM בין זוגות תורמים/מקבלים
- חלץ ערכי משך חיים ממפת אורך החיים של פיקסל אחר פיקסל שלם (כלומר, הציר המיטוטי כולו), או בחר אזורי עניין (ROIs) המתאימים לסכומי משנה ספציפיים.
הערה: על פי ההתקנה FRET/ FLIM בשימוש, חישובים לכל החיים עשויים להתבצע ישירות על תוכנת הרכישה, או לחלץ עם פתרונות עיבוד תמונה כלליים (למשל, פיג'י / ImageJ: https://fiji.sc/). תוכנה המחשבת ישירות ערכים לכל החיים (הידועה גם בשם מצב מקוון) מציעה פתרון ידידותי יותר למשתמש, המתאים למתחילים ולמשתמשי מיקרוסקופיה שאינם מכירים היטב את FRET / FLIM. להיפך, מיצוי של ערכים לכל החיים לאחר הרכישה דורש לעתים קרובות הליך הולם. אפשרות זו היא פחות נגישה למתחילים, כמו כמה ידע קודם על מודלים מתמטיים של התאמה יש צורך. - לאחר הדמיה או חילוץ, לחשב את אורך החיים הממוצע של התאים המבטאים את וקטור "תורם בלבד" (למשל, AURKA-mTurquoise2), בזאת אומר אורך חיים תורם.
- הפחת כל ערך משך חיים עצמאי המחושב בשלב 4.1 מאורך החיים הממוצע של התורם. חזרה על שלב זה עבור כל התאים בכל התנאים שניתחו תעניק את ΔLifetime עבור כל תנאי.
- השווה ערכי ΔLifetime עבור "התורם בלבד", "biosensor" ו- "K162M", או DMSO ואת התנאים MLN8237.
הערה: עבור התנאי "תורם בלבד", ΔLifetime צריך לגרום לערכים קרובים לאפס ומתאימים לתנודות הניסיוניות של ערכים כוללים. עבור התנאי "biosensor", ערכי ΔLifetime צריכים להניב את ההפרש הנקי בין שני המבנים (ראו איור 4 לקבלת דוגמה מאוירת). - השווה את ערכי ΔLifetime בין זוגות תורמים/מקבלים שונים.
- השווה את התנאים "biosensor": האם הם מראים דומה ΔLifetime?
- האם התנאים "K162M" או MLN8237 מראים ΔLifetime דומה ביניהם? האם זמן החיים שלהם דומה למצב "התורם בלבד"?
תוצאות
עקבנו אחר ההליך המתואר לעיל כדי לתעד את הפרסום האוטומטי של AURKA על Thr288 באמצעות שני biosensors עם תכונות ספקטרליות שונות. השווינו את הבדיקה הראשונית GFP-AURKa-mCherry14 עם שני biosensors עם תכונות ספקטרליות שונות. שתי בדיקות אלה מסתמכות על התורם הפלואורסצנטי mTurquoise2 ועל מקבל לא פלואורסצנטי (ShadowG) במקרה אחד, או מקבל צהוב (superYFP) במקרה שני. לאחר מכן הכנסנו את הרצף באורך מלא של AURKA בתוך כל זוג תורמים / מקבלים. כדי לקבל שליטה שלילית להפעלת AURKA, ניתן לנקוט בשתי אסטרטגיות. ראשית, השימוש ATP-אנלוגי קטן (MLN8237) מפריע לכריכת ATP בכיס הקינטי של הקינאז ומונע את הפעלתו38. שנית, המוטציה של Lys162 לתוך Met (K162M), יוצרת גרסה מתה קינאז של כל ביו-סנסור שאינו מסוגל להפעיל 14,15,39. מוטציה זו גורמת לשיבוש של גשר מלח שנקבע בדרך כלל בין Lys162 ו Glu181, אשר גורם לפתיחה יציבה של הכיס הקינטי של קינאז ומפעיל את ההשבתה הכוללת שלה40. כבקרה שלילית עבור FRET, השתמשנו במבנה נטול קבילות (GFP-AURKA או AURKA-mTurquoise2).
לאחר סנכרון תאים ב-G2/M ושחרורם למיטוזה, מדדנו את משך החיים של כל המבנים שהושפעו מהציר המיטוטי (איור 4). שימו לב, מבנה זה נחשב בכללותו, ולא נותחו החזרי השקעה בתוך הציר. לאחר מכן חישבנו את ΔLifetime עבור כל התנאים. כצפוי, אורך החיים של GFP-AURKA או AURKA-mTurquoise2 (התנאים "התורמים בלבד") היה קרוב ל- 0, מה שמצביע על כך שהערכים שנמדדו עבור מבנים אלה נעו סביב הערך הממוצע (איור 4A,4B). לעומת זאת, ערכי ΔLifetime עבור GFP-AURKA-mCherry היו שונים סטטיסטית מהמצב התורם בלבד, כאשר ΔLifetime גדל מ- ~ 130 ps (איור 4A). תצפיות דומות נעשו עבור shadowG-AURKA-mTurquoise2 ועבור superYFP-AURKA-mTurquoise2, עם עלייה של ΔLifetime של ~ 150 ו ~ 220 ps מהמצב התורם בלבד, בהתאמה (איור 4B,4C). ניתן להציג נתונים אלה בקלות בתאים בודדים עם טבלת בדיקת מידע מדומה (LUT). במקרה זה, ערכים של ΔLifetime סביב 0 הם צהוב פסאודוקולרי, בעוד הבדלים משמעותיים יותר הם פסאודוקולור אדום / סגול. ואכן, ה-LUT של פיקסל אחר פיקסל היה קרוב יותר לצהוב בתאים המבטאים את המבנים התורמים בלבד, בעוד שהוא היה יותר בספקטרום האדום/סגול בתאים המבטאים או ביו-סנסור (איור 4A,4B). זה נצפתה גם כאשר GFP-AURKA-mCherry biosensor טופל עם מעכב פרמקולוגי MLN8237.
לאחר מכן ניתחנו את ΔLifetime של ביו-סנסורים מתים קינאז. מבנים אלה הראו ערכי ביניים של ΔLifetime: ΔLifetime היה גבוה משמעותית בהשוואה למצב התורם בלבד (איור 4B,4C), אך הוא גם היה נמוך משמעותית מעמיתיהם הרגילים (איור 4B,4D). ההשוואות עם תאים שטופלו ב- MLN8237 או מבטאים ביו-סנסורים מתים של קינאז נחוצים כדי להעריך אם וריאציות ΔLifetime עבור כל זוג תורמים/מקבלים קשורות אך ורק להפעלת AURKA. במקרה של GFP-AURKA-mCherry, וריאציות ΔLifetime מבוטלות כאשר נעשה שימוש במעכב ספציפי לאורקה. לעומת זאת, וריאציות ΔLifetime הן בעיקר, אך לא קשורות באופן בלעדי להפעלת AURKA במקרה של shadowG-AURKA-mTurquoise2 ושל superYFP-AURKA-mTurquoise2.
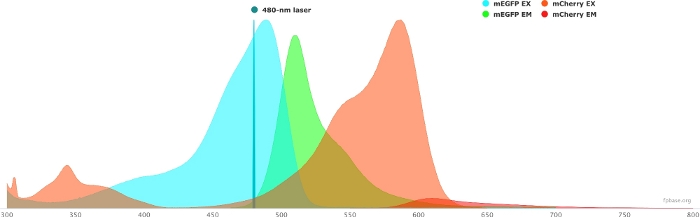
איור 1: GFP (תורם) ו-mCherry (מקבל) עירור וספקטרום פליטה.
ספקטרה הושגו והותאמו מאתר בסיס FP (https://www.fpbase.org/), והותאמו לעירור לייזר של 480 ננומטר. לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
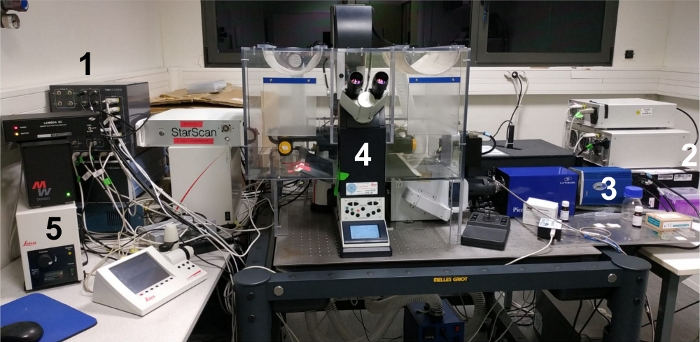
איור 2: תמונה של סביבת העבודה הניסיונית.
(1) פתרון הבקרה; (2) מקור לייזר לבן; (3) מצלמת CCD; (4) הגדרת מיקרוסקופ; (5) מקור אור חיצוני / מנורה להקרנת עינית של המדגם. לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
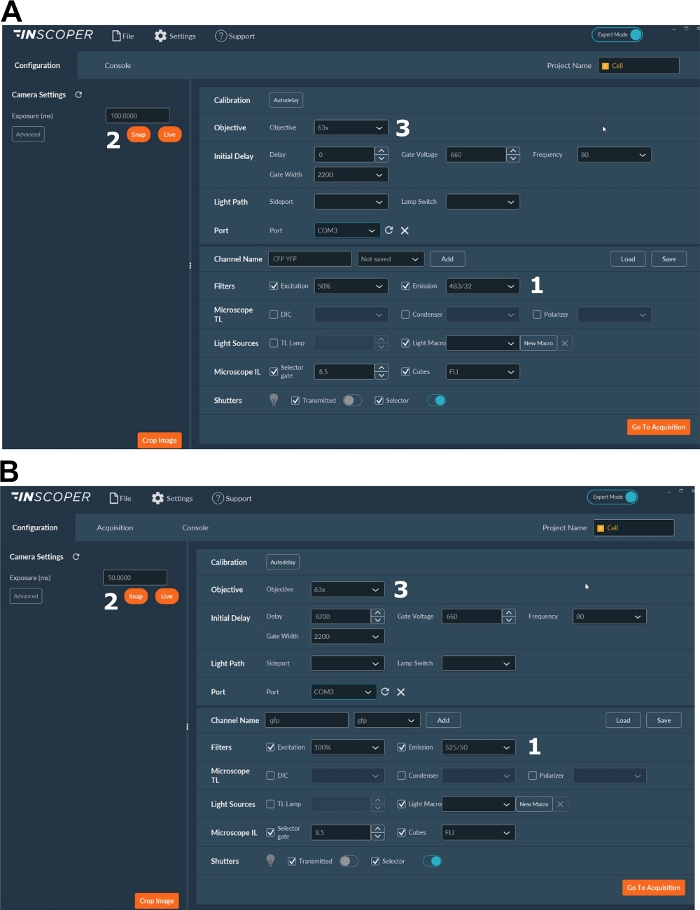
איור 3: תמונות מייצגות של התוכנה לרכישת FLIM.
(א, ב) (1) פרמטרי עירור ופליטה עבור התורם (CFP ב - A, או GFP ב - B); (2) זמן חשיפה; (3) בחירת המטרה. לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
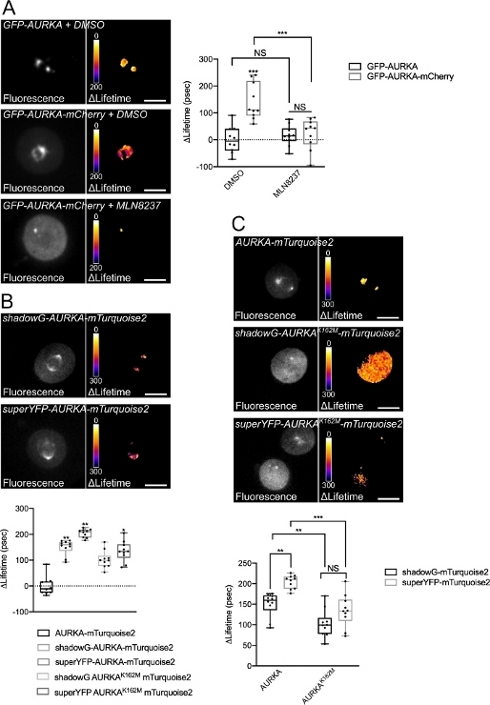
איור 4: תמונות מייצגות של הביו-סנסורים של AURKA FRET ושל הפקדים השליליים שלהם.
(A) (מיקרוגרף) פלואורסצנטיות (ערוץ ירוק) ופיקסל אחר פיקסל ΔLifetime (תורם בלבד – biosensor) של תאי U2OS המבטאים GFP-AURKA או GFP-AURKA-mCherry, המסונכרנים ב- G2/M, משוחררים עד שהציר הדו-קוטבי גלוי לאחר מכן מטופל ב- DMSO או עם MLN8237. ΔLifetime מאויר בקנה מידה פסאודוקולור (טבלת בדיקת מידע "אש"). (גרף) כימות מתאים וניתוח ANOVA דו-כיווני עבור התנאים שצוינו. (B) (מיקרוגרף) פלואורסצנטיות (ערוץ ציאן) ופיקסל אחר פיקסל מתאים ΔLifetime (תורם בלבד – biosensor) של תאי U2OS המבטאים shadowG-AURKA-mTurquoise2 (פאנל עליון) או superYFP-AURKA-mTurquoise2 (פאנל תחתון), מסונכרנים ב- G2/M ומשוחררים עד שהציר הדו-קוטבי גלוי לעין. ΔLifetime מאויר בקנה מידה פסאודוקולור (טבלת בדיקת מידע "אש"). (גרף) כימות מקביל וניתוח ANOVA חד-כיווני של התנאים המיוצגים במיקרוגרפים לעיל. (C) (מיקרוגרפים) תמונות של AURKA-mTurquoise2 (פאנל עליון), shadowG-AURKA K162M-mTurquoise2 (פאנל אמצעי) ו- superYFP-AURKA K162M-mTurquoise2 שנרכשו ומיוצגים כמו במיקרוגרף. (גרף) ניתוח ANOVA דו-כיווני לתנאי הטרנספקטיה שצוינו. הסרגל בקופסאות מייצג את החציון; השפם משתרע מהדקה למקסימום n = 10 תאים לכל תנאי של ניסוי מייצג אחד (מתוך שלושה). ערכים בודדים מיוצגים כנקודות. סרגל קנה מידה: 10 מיקרומטר. *P < 0.05, **P < 0.01, ***P < 0.001 כנגד כל מצב מצוין ב-(A) במצב "AURKA-mTurquoise2" ב-(B), ונגד כל מצב מצוין ב-(C). נ.ס. לא משמעותי. לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
דיון
biosensors FRET מקודדים גנטית הם כלים אמינים למדידת ההפעלה של חלבונים בודדים או של מסלולי איתות שלמים41. במיוחד, הביו-סנסור AURKA FRET מהווה דרך מועדפת לחקור את ההפעלה של הקינאז בזמן ובמרחב. עם זאת, אלמנטים מסוימים ראויים לתשומת לב מיוחדת בעת תכנון או אופטימיזציה של ביו-סנסור FRET, לא רק במונחים כלליים אלא ליתר דיוק עבור AURKA.
ראשית, ניתן להתאים את האופי ואת המיקום היחסי של זוג FRET התורם / מקבל עבור פונקציות ספציפיות של קינאז זה. AURKA מועשרת מאוד בציר המיטוטי במהלך מיטוזה, אך היא קיימת לאורך מחזור התא ובמיקומים תת-תאיים שונים (למשל, צנטרוזומים, הגרעין והמיטוכונדריה)1,2. אם יש להשתמש ב- biosensor בתאים ספציפיים כמו מיטוכונדריה, אשר יכול להגיע pH חומצי, הבחירה של pH-insensitive תורם-מקבל זוג FRET כמו mTurquoise2 / shadowG צריך להיעשות. יתר על כן, הצבת תורם FRET בטרמינל C יכול לאפשר הדמיה טובה יותר של biosensor בתא תת-תאי זה, ואולי אפילו לייעל את זיהוי FRET בהתחשב בכך AURKA N-terminus הוכח לבקע חלקית במיטוכונדריה16,42.
שנית, דרך שטרם נחקרה לייעל את הביו-סנסור של AURKA FRET תדרוש תכנון זהיר יותר של מקשרים בין AURKA באורך מלא לבין זוג התורמים/מקבלי ההחלטות. לא רק המרחק בין הזוג הפלואורסצנטי, אלא גם המאפיינים של המקשר עצמו הוכחו כגורמים מרכזיים לשיפור יעילות FRET43,44,45,45,46. לאור זאת, הגדלת הנוקשות או הגמישות של המקשר עלולה לפגוע ביעילות FRET, או לשפר אותה עוד יותר.
שלישית, ידוע כי ביטוי יתר של AURKA גורם חריגות ציר מיטוטי בחלק משמעותי של תאים2. זה יהיה מעניין להשוות ΔLifetime המתקבל על ידי ביטוי אותו מבנה FRET תחת מקדם חזק כמו cytomegalovirus (CMV) - אחד היזמים הנפוצים ביותר שנמצאו וקטורים ביטוי יונקים - או תחת רצף מקדם מינימלי AURKA (CTTCCGG)14,47. מקדם זה הוכח בעבר כדי להציל מונופולים או צירים רב קוטביים הנובעים לאחר הפלת קינאז, והשימוש בו לא גרם הפרעות מחזור התאים ל se14,47. למרות ש-FLIM אינו רגיש לרמות ביטוי החלבון ולריכוזים היחסיים בתא11, ההנאה מהשוואה יסודית של שני היזמים באותו מערך ביו-סנסור תרחיב את ההבנה של מאגר AURKA המופעל בכל מקום נתון. בנוסף, הוא יספק תובנות חדשניות על האופן שבו הפעלת AURKA עשויה להשתנות עם הבעת יתר, אשר רלוונטית לפרדיגמות סרטן אפיתל והמטולוגיות.
לבסוף, יש לקחת בחשבון גם את יישום FRET במורד הזרם. נקודת מבט עתידית בתחום של AURKA תהיה לצבור את הביו-סנסור הקונפורמי של קינאז עם ביו-סנסור מבוסס מצע. ניתוח התנהגות FRET של שני ביו-סנסורים בו זמנית – תהליך המכונה מולטיפלקס FRET – דורש מקבל כהה על biosensor הראשון כדי למנוע דימום ספקטרלי דרך בערוץ התורם השני. בהקשר של AURKA, זה יפתח את נקודת המבט החדשה והמרגשת של זיהוי ההפעלה של הקינאז עם הביו-סנסור הראשון, והפעילות האנזימטית שלו כלפי מצע נתון עם השני. ההתפתחויות האחרונות במולטיפלקסינג מאפשרות כעת לצבור עד שלושה ביו-סנסורים בכל פעם48. יישום שיטה דומה בהקשר של AURKA יכול לייצג אסטרטגיה מבטיחה מאוד לא רק כדי לבדוק את יחסי הגומלין הפעלה-פעילות של קינאז, אלא גם לחקור מפלי איתות AURKA עם רזולוציה מרחבית חסרת תקדים.
לסיכום, FRET/FLIM היא דרך נוחה להעמיק את הידע על פעילות החלבון. מצד אחד, הוא מאפשר לדמיין את הלוקליזציה של חלבון נתון בתאים חיים, הודות לפחות moiety פלואורסצנטי אחד. מצד שני, זה יכול לפענח שינויים קונפורמציה חלבון, אשר יכול להיות אינפורמטיבי על הפעלת חלבון ו / או פעילות. לכן, FRET / FLIM ו biosensors FRET קונפורמציה יש את הפוטנציאל של הפיכת שיטות נפוצות לעקוב אחר מסלולי איתות בתאים חיים, ועם רזולוציה spatiotemporal מעולה.
גילויים
ג.B ביצע את הניסויים, כתב וסקר את כתב היד, וסיפק מימון, M.T. סקר את כתב היד וסיפק תמיכה. מ.ט. הוא יועץ מדעי ובעל מניות בחברת Inscoper (צרפת), המייצרת את הפתרונות למדידות FLIM מהירות המוצגות בכתב יד זה. אינסקופר תמך חלקית בפרסום הגישה הפתוחה של כתב היד. אינסקופר לא היה מעורב בתכנון ניסיוני, בטיפול בנתונים ולא בכתיבת כתב היד.
תודות
אנו מודים למהנדסי המרכז להדמיית מיקרוסקופיה-רן (MRic, BIOSIT, Rennes, צרפת) על הייעוץ והעזרה, ובמיוחד ל- X. Pinson על קריאה ביקורתית של כתב היד. MRic הוא חבר בתשתית הלאומית France-BioImaging הנתמכת על ידי סוכנות המחקר הלאומית הצרפתית (ANR-10-INBS-04). עבודה זו נתמכה על ידי המרכז הלאומי דה לה Recherche Scientifique (CNRS), ליגה Contre le Cancer Comités d'Ille et Vilaine, des Côtes d'Armor et du Finistère, והאגודה pour la Recherche Contre le Cancer (ARC) to G.B.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Alisertib (MLN8237) | SelleckChem | S1133 | השתמש בדילול סופי של 250 ננומטר |
| Dulbecco's Modified Eagle Medium (DMEM) | ThermoFischer Scientific מותג: Gibco | 41966052 | גלוקוז גבוה + L-גלוטמין + נתרן פירובט |
| סרום בקר עוברי (FBS) | ThermoFischer Scientific מותג: Gibco | ||
| L15 | ThermoFischer Scientific מותג: Gibco | 21083027 | Leibovitz's L15 medium + L-glutamine, ללא פנול אדום |
| LabTek | Nunc | 2515380 | |
| Nocodazole | Merck מותג: Sigma-Aldrich | M1404 | לשימוש בדילול סופי של 100 ננוגרם/מ"ל |
| פניצילין/סטרפטומיצין | ThermoFischer Scientific מותג: Gibco | 15140122 | פניצילין-סטרפטומיצין 10,000 U/מ"ל (100x) |
| Phosphate Buffer Saline (PBS) | ThermoFischer Scientific מותג: Gibco | 14190169 | DPBS, ללא סידן, ללא מגנזיום |
| Trypsin/EDTA | ThermoFischer Scientific מותג: Gibco | 25300096 | טריפסין-EDTA 0.05%, פנול אדום (1x) |
מקורות
- Bertolin, G., Tramier, M. Insights into the non-mitotic functions of Aurora kinase A: more than just cell division. Cellular and Molecular Life Sciences. , (2019).
- Nikonova, A. S., Astsaturov, I., Serebriiskii, I. G., Dunbrack, R. L., Golemis, E. A. Aurora A kinase (AURKA) in normal and pathological cell division. Cellular and Molecular Life Sciences. 70 (4), 661-687 (2013).
- Walter, A. O., Seghezzi, W., Korver, W., Sheung, J., Lees, E. The mitotic serine/threonine kinase Aurora2/AIK is regulated by phosphorylation and degradation. Oncogene. 19 (42), 4906-4916 (2000).
- Cheetham, G. M. T. Crystal Structure of Aurora-2, an Oncogenic Serine/Threonine Kinase. Journal of Biological Chemistry. 277 (45), 42419-42422 (2002).
- Bayliss, R., Sardon, T., Vernos, I., Conti, E. Structural basis of Aurora-A activation by TPX2 at the mitotic spindle. Molecular Cell. 12 (4), 851-862 (2003).
- Zhang, Y., et al. Identification of the auto-inhibitory domains of Aurora-A kinase. Biochemical and Biophysical Research Communications. 357 (2), 347-352 (2007).
- Littlepage, L. E., Wu, H., Andresson, T., Deanehan, J. K., Amundadottir, L. T., Ruderman, J. V. Identification of phosphorylated residues that affect the activity of the mitotic kinase Aurora-A. Proceedings of the National Academy of Sciences of the United States of America. 99 (24), 15440-15445 (2002).
- Kufer, T. A., et al. Human TPX2 is required for targeting Aurora-A kinase to the spindle. The Journal of Cell Biology. 158 (4), 617-623 (2002).
- Eyers, P. A., Erikson, E., Chen, L. G., Maller, J. L. A novel mechanism for activation of the protein kinase Aurora A. Current Biology. 13 (8), 691-697 (2003).
- Brunet, S., et al. Characterization of the TPX2 Domains Involved in Microtubule Nucleation and Spindle Assembly in Xenopus Egg Extracts. Molecular Biology of the Cell. 15 (12), 5318-5328 (2004).
- Padilla-Parra, S., Tramier, M. FRET microscopy in the living cell: Different approaches, strengths and weaknesses. BioEssays. 34 (5), 369-376 (2012).
- Aoki, K., Kamioka, Y., Matsuda, M. Fluorescence resonance energy transfer imaging of cell signaling from in vitro to in vivo: Basis of biosensor construction, live imaging, and image processing. Development, Growth & Differentiation. 55 (4), 515-522 (2013).
- Fuller, B. G., et al. Midzone activation of aurora B in anaphase produces an intracellular phosphorylation gradient. Nature. 453 (7198), 1132-1136 (2008).
- Bertolin, G., et al. A FRET biosensor reveals spatiotemporal activation and functions of aurora kinase A in living cells. Nature Communications. 7, 12674(2016).
- Bertolin, G., et al. Optimized FRET Pairs and Quantification Approaches To Detect the Activation of Aurora Kinase A at Mitosis. ACS Sensors. 4 (8), 2018-2027 (2019).
- Bertolin, G., et al. Aurora kinase A localises to mitochondria to control organelle dynamics and energy production. eLife. 7, (2018).
- Sizaire, F., Le Marchand, G., Pécréaux, J., Bouchareb, O., Tramier, M. Automated screening of AURKA activity based on a genetically encoded FRET biosensor using fluorescence lifetime imaging microscopy. Methods and Applications in Fluorescence. 8 (2), 024006(2020).
- Demeautis, C., et al. Multiplexing PKA and ERK1&2 kinases FRET biosensors in living cells using single excitation wavelength dual colour FLIM. Scientific Reports. 7, 41026(2017).
- Ringer, P., et al. Multiplexing molecular tension sensors reveals piconewton force gradient across talin-1. Nature Methods. 14 (11), 1090-1096 (2017).
- Nagai, T., Yamada, S., Tominaga, T., Ichikawa, M., Miyawaki, A. Expanded dynamic range of fluorescent indicators for Ca(2+) by circularly permuted yellow fluorescent proteins. Proceedings of the National Academy of Sciences of the United States of America. 101 (29), 10554-10559 (2004).
- Klarenbeek, J., Goedhart, J., van Batenburg, A., Groenewald, D., Jalink, K. Fourth-Generation Epac-Based FRET Sensors for cAMP Feature Exceptional Brightness, Photostability and Dynamic Range: Characterization of Dedicated Sensors for FLIM, for Ratiometry and with High Affinity. PLOS ONE. 10 (4), 0122513(2015).
- Fritz, R. D., et al. A Versatile Toolkit to Produce Sensitive FRET Biosensors to Visualize Signaling in Time and Space. Science Signaling. 6 (285), (2013).
- Mastop, M., et al. Characterization of a spectrally diverse set of fluorescent proteins as FRET acceptors for mTurquoise2. Scientific Reports. 7 (1), 11999(2017).
- vander Krogt, G. N. M., Ogink, J., Ponsioen, B., Jalink, K. A Comparison of Donor-Acceptor Pairs for Genetically Encoded FRET Sensors: Application to the Epac cAMP Sensor as an Example. PLoS ONE. 3 (4), 1916(2008).
- Cranfill, P. J., et al. Quantitative assessment of fluorescent proteins. Nature Methods. 13 (7), 557-562 (2016).
- Goedhart, J., et al. Structure-guided evolution of cyan fluorescent proteins towards a quantum yield of 93. Nature Communications. 3 (1), (2012).
- Mérola, F., et al. Newly engineered cyan fluorescent proteins with enhanced performances for live cell FRET imaging. Biotechnology Journal. 9 (2), 180-191 (2014).
- Erard, M., et al. Minimum set of mutations needed to optimize cyan fluorescent proteins for live cell imaging. Molecular BioSystems. 9 (2), 258-267 (2013).
- Tramier, M., Zahid, M., Mevel, J. C., Masse, M. J., Coppey-Moisan, M. Sensitivity of CFP/YFP and GFP/mCherry pairs to donor photobleaching on FRET determination by fluorescence lifetime imaging microscopy in living cells. Microscopy Research and Technique. 69 (11), 933-939 (2006).
- Padilla-Parra, S., et al. Quantitative Comparison of Different Fluorescent Protein Couples for Fast FRET-FLIM Acquisition. Biophysical Journal. 97 (8), 2368-2376 (2009).
- Burgstaller, S., et al. pH-Lemon, a Fluorescent Protein-Based pH Reporter for Acidic Compartments. ACS Sensors. , (2019).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nature Methods. 14 (1), 53-56 (2016).
- Murakoshi, H., Shibata, A. C. E., Nakahata, Y., Nabekura, J. A dark green fluorescent protein as an acceptor for measurement of Förster resonance energy transfer. Scientific Reports. 5, 15334(2015).
- Murakoshi, H., Shibata, A. C. E. ShadowY: a dark yellow fluorescent protein for FLIM-based FRET measurement. Scientific Reports. 7 (1), 6791(2017).
- Leray, A., Padilla-Parra, S., Roul, J., Héliot, L., Tramier, M. Spatio-Temporal Quantification of FRET in living cells by fast time-domain FLIM: a comparative study of non-fitting methods [corrected]. PloS One. 8 (7), 69335(2013).
- Padilla-Parra, S., Audugé, N., Coppey-Moisan, M., Tramier, M. Quantitative FRET analysis by fast acquisition time domain FLIM at high spatial resolution in living cells. Biophysical Journal. 95 (6), 2976-2988 (2008).
- Song, L., Hennink, E. J., Young, I. T., Tanke, H. J. Photobleaching kinetics of fluorescein in quantitative fluorescence microscopy. Biophysical Journal. 68 (6), 2588-2600 (1995).
- Manfredi, M. G., et al. Characterization of Alisertib (MLN8237), an investigational small-molecule inhibitor of aurora A kinase using novel in vivo pharmacodynamic assays. Clinical Cancer Research: An Official Journal of the American Association for Cancer Research. 17 (24), 7614-7624 (2011).
- Katayama, H., et al. Phosphorylation by aurora kinase A induces Mdm2-mediated destabilization and inhibition of p53. Nature Genetics. 36 (1), 55-62 (2004).
- Nowakowski, J., et al. Structures of the Cancer-Related Aurora-A, FAK, and EphA2 Protein Kinases from Nanovolume Crystallography. Structure. 10 (12), 1659-1667 (2002).
- Palmer, A. E., Qin, Y., Park, J. G., McCombs, J. E. Design and application of genetically encoded biosensors. Trends in Biotechnology. 29 (3), 144-152 (2011).
- Grant, R., et al. Constitutive regulation of mitochondrial morphology by Aurora A kinase depends on a predicted cryptic targeting sequence at the N-terminus. Open Biology. 8 (6), 170272(2018).
- Shimozono, S., Miyawaki, A. Engineering FRET Constructs Using CFP and YFP. Methods in Cell Biology. 85, 381-393 (2008).
- Komatsu, N., et al. Development of an optimized backbone of FRET biosensors for kinases and GTPases. Molecular Biology of the Cell. 22 (23), 4647-4656 (2011).
- Schifferer, M., Griesbeck, O. A Dynamic FRET Reporter of Gene Expression Improved by Functional Screening. Journal of the American Chemical Society. 134 (37), 15185-15188 (2012).
- Peroza, E. A., Boumezbeur, A. H., Zamboni, N. Rapid, randomized development of genetically encoded FRET sensors for small molecules. Analyst. 140 (13), 4540-4548 (2015).
- Reboutier, D., et al. Aurora A is involved in central spindle assembly through phosphorylation of Ser 19 in P150Glued. The Journal of Cell Biology. 201 (1), 65-79 (2013).
- Mo, G. C. H., Posner, C., Rodriguez, E. A., Sun, T., Zhang, J. A rationally enhanced red fluorescent protein expands the utility of FRET biosensors. Nature Communications. 11 (1), 1848(2020).
הדפסות חוזרות והרשאות
