דפוס הגליקוזילציה של הנוגדן קובע את ביצועיו הקליניים, ולכן נמשכים המאמצים התעשייתיים והאקדמיים לשלוט בגליקוזילציה. מאחר שקמפיינים טיפוסיים של גליקו-הנדסה הם עתירי זמן ועבודה, יצירת פרוטוקול מהיר לאפיון ההשפעה של גנים של גליקוסילציה באמצעות השתקה חולפת תתברר כיעילה.
מאמר שיטה
גליקו-הנדסה מהירה של נוגדנים בתאי שחלת אוגר סיניים
* These authors contributed equally
במאמר זה
סיכום
תקציר
נוגדנים חד שבטיים רקומביננטיים קושרים מטרות מולקולריות ספציפיות, ולאחר מכן, משרים תגובה חיסונית או מעכבים את הקשירה של ליגנדות אחרות. עם זאת, פונקציונליות נוגדנים חד שבטיים ומחצית החיים עשויים להיות מופחתים על ידי סוג והתפלגות של גליקוסילציה ספציפית לפונדקאי. ניסיונות לייצר נוגדנים מעולים היוו השראה להתפתחותם של תאים יצרניים מהונדסים גנטית המסנתזים נוגדנים מותאמי גליקו. גליקו-הנדסה דורשת בדרך כלל יצירת קו יציב של תאי נוקאאוט או נוקין באמצעות שיטות כגון אשכולות של חזרות פלינדרומיות קצרות (CRISPR) הקשורות באופן קבוע לחלבון 9. נוגדנים חד שבטיים המיוצרים על ידי תאים מהונדסים מאופיינים לאחר מכן בשיטות ספקטרומטריות של מסות כדי לקבוע אם הגליקופרופיל הרצוי הושג. אסטרטגיה זו גוזלת זמן רב, מאתגרת מבחינה טכנית ודורשת מומחים. לכן, אסטרטגיה חלופית המשתמשת בפרוטוקולים יעילים לגליקו-הנדסה גנטית ולזיהוי גליקנים עשויה לסייע למאמצים לקראת נוגדנים אופטימליים. במחקר הוכחת היתכנות זה, תא שחלה אוגר סיני המייצר IgG שימש כמארח אידיאלי לאופטימיזציה של הגליקו-הנדסה. רנ"א מפריע קצר המכוון לגן Fut8 הועבר לתאי השחלה של האוגר הסיני, והשינויים שחלו כתוצאה מכך בביטוי חלבוני FUT8 כומתו. התוצאות מצביעות על כך ש-knockdown בשיטה זו הייתה יעילה, והובילה לירידה של כ-60% ב-FUT8. ניתוח משלים של הנוגדן גליקופיפיל בוצע בטכניקה מהירה אך רגישה מאוד: אלקטרופורזה של ג'ל נימי וזיהוי פלואורסצנציה המושרה בלייזר. כל ניסויי ההדחה הראו עלייה בגליקנים אפוקוסיליים; עם זאת, השינוי הגדול ביותר שהושג במחקר זה היה ~ 20%. פרוטוקול זה מפשט את מאמצי הגליקו-הנדסה על ידי רתימת כלי תכנון סיליקו , ריאגנטים מסונתזים מסחרית המכוונים לגנים, ומבחני כימות מהירים שאינם דורשים ניסיון מקיף קודם. לפיכך, יעילות הזמן המוצעת על ידי פרוטוקול זה עשויה לסייע בחקירות של מטרות גנים חדשות.
מבוא
גליקוזילציה מקושרת N היא תהליך אנזימטי שבאמצעותו מויאטים אוליגוסכרידים מקושרים באופן קוולנטי לשאריות אסן. שלא כמו סינתזת חלבונים דה נובו, סינתזת גליקאן היא תגובה לא תבניתית המביאה לגליקוסילציה הטרוגנית של חלבונים. המבנה, ההרכב וההתפלגות של הגליקנים יכולים להשפיע על קונפורמציה ותפקוד של חלבונים. ואכן, N-גליקוסילציה באזור המקטע הניתן להתגבשות (Fc) של אימונוגלובולין G (IgG) מווסתת את היעילות הטיפולית, האימונוגניות ומחצית החיים של הנוגדן1. ככזה, פרדיגמת האיכות לפי תכנון (QbD) לפיתוח מוצרי חלבון ביו-תרפיים רקומביננטיים מזהה באופן טבעי את הגליקוזילציה כתכונת איכות קריטית (CQA)2,3. תאי יונקים הם לעתים קרובות מערכות הביטוי המועדפות מכיוון שהם מייצרים באופן אינהרנטי דפוסי גליקוזילציה דמויי אדם באופן הדוק יותר מאשר חיידקים, שמרים, חרקים או תאי צמחים. יתר על כן, תאי שחלת האוגר הסיני (CHO) נבחרים על פני קווי תאים אחרים של יונקים מכיוון שהם עמידים לזיהום בנגיף האנושי, מפרישים מוצרים בשכבות גבוהות, וניתן לגדל אותם בתרבית השעיה לצפיפות תאים בת קיימא גבוהה4. ביחס להיווצרות גליקנים, תאי ייצור שאינם CHO מורין מייצרים גליקנים אימונוגניים (α(1-3)-גלקטוז המקושרים [α(1-3)-Gal] וחומצה N-גליקולילנוראמינית [NeuGc]) הפוגעים בשימוש בטוח בנוגדנים חד-שבטיים (mAbs)5. יתרונות אלה הופכים את תאי CHO למערכת הביטוי המובילה, האחראית על ייצור של יותר מ-80% מהביו-תרפיות החדשות בין 2014 ל-20186. עם זאת, גליקוסילציה שאינה תלויה בתבנית היא מנגנון שמור שמוביל לביו-תרפיות שמקורן ב-CHO עם מערך של גליקופורמים.
אסטרטגיות פיתוח ביו-תרפיות שואפות לשלוט בהטרוגניות בתאי CHO על ידי הנדסה גנטית. כמה דוגמאות לספרות כוללות את ההפלה של sialidases (Neu1, Neu3)7, GDP-mannose 4,6-dehydratase (GMD) נוקאאוט8, וביטוי יתר של גליקוזילטרנספראזות (GnTIII)9. ההתקדמות בתחום הגליקו-הנדסה אפשרית הודות לשילוב של משאבים זמינים לציבור, כמו הגנום של CHO10, וההתפתחות המתמשכת של כלים הנדסיים גנטיים, כגון נוקלאזות אפקטור דמויות מפעיל שעתוק (TALENs), נוקלאזות אצבעות אבץ (ZFNs), וחוזרות פלינדרומיות קצרות (CRISPR) הקשורות באופן קבוע לחלבון 9 (CRISPR-Cas9)11,12,13,14 . כלים אלה מועברים בדרך כלל לתאי CHO כדנ"א פלסמידי או כקומפלקסים מטוהרים של ריבונוקליאופרוטאין (RNP). לעומת זאת, הפרעת RNA (RNAi) היא טכנולוגיה הנדסית גנטית שבצורתה הפשוטה ביותר, דורשת רק אספקה של אוליגונוקלאוטידים של רנ"א מפריע קצר (siRNA) מטוהר. חלבונים אנדוגניים מעבדים siRNA דו-גדילי לתוך גדילים בודדים, והנוקלאז, קומפלקס ההשתקה המושרה על ידי RNA (RISC), יוצר קומפלקס עם siRNA כדי לבקע רצפי mRNA מטרה 15,16,17. השתקת גנים בשיטה זו היא חולפת עקב חוסר יציבות של RNA, אך החקירה כאן ממנפת תכונה זו כדי לסייע בסינון מהיר.
אנזים המודל שנבחר למחקר הנוכחי, α1,6-fucosyltransferase (FUT8), מייצר N-גליקנים עם L-fucose המקושר α-1,6 ליבות (Fuc). שינוי זה הוא הקובע העיקרי של פעילות ציטוטוקסיות של תאים תלויי נוגדנים (ADCC), כפי שמעידים מחקרים על נוגדנים מסחריים. בהיעדר פוקוסילציה של הליבה, ריטוקסימאב (אנטי-CD20 IgG1) מגדיל את ADCC פי 50 ומגדיל את ה-ADCC בטרסטוזומאב (אנטי-Her2 IgG1) על ידי שיפור קשירה של FcgRIIIa18,19. לפיכך, פוקוסילציה של הליבה נחשבת לתכונה לא רצויה של mAbs המצדיקה מאמצים להפוך פנוטיפ זה. ישנן דוגמאות למיקוד מוצלח של גנים Fut8 באמצעות siRNA עם עליות מקבילות ב- ADCC 20,21,22, אם כי דוגמאות אלה מספקות Fut8 siRNA המקודד על דנ"א פלסמידי. ניסויים כאלה מייצרים השתקת גנים יציבה שכן דנ"א פלסמיד משמש כתבנית לסינתזת siRNA. זה מאפשר לתאים לחדש מולקולות siRNA שמתפרקות על ידי RNases תוך תאיים ופוספטזות. לעומת זאת, העברת siRNA סינתטי אקסוגני מאפשרת רק השתקת גנים חולפים מכיוון שלא ניתן לחדש את ה-siRNA בשל היעדר תבנית תוך-תאית. לפיכך, משתמשים צריכים לשקול אם עיצובים ניסיוניים תואמים siRNA שמקורו בפלסמיד או סינתטי. לדוגמה, מחקרים המתמקדים בייצור שיא של mAb, בדרך כלל היום השישי של התרבית23,24, עשויים לבחור siRNA סינתטי שניתן להעביר לתאים כמה ימים לפני ביטוי השיא. היתרונות של גישה חולפת המשתמשת ב-siRNA סינתטי כוללים את היכולת לבצע מיקור חוץ של הייצור ואת העובדה שניתן ליצור מבני siRNA מרובים בשבריר מהזמן שלוקח ליצור מבנים בפלסמידים. יתר על כן, siRNA סינתטי הוא יעיל, כפי שמעידות דוגמאות ספרותיות של השתקת גנים Fut8 המספיקות כדי להפחית את ביטוי החלבון FUT825 ולהניב IgGs אפוקוסילציה עם קשירת FCgRIIIa מוגברת ו- ADCC26.
ההצלחה של פרוטוקול גליקו-הנדסה זה נקבעה על ידי מידת הגליקוזילציה של Fc. ספקטרומטריית מסות היא בדרך כלל השיטה המועדפת על ניתוחים גליקומיים; עם זאת, אלקטרופורזה של ג'ל נימי וזיהוי פלואורסצנטי המושרה בלייזר (CGE-LIF) נוחים באופן מושלם לפתרון הגליקופרופיל של IgGs מטוהרים ויש להם את היתרון של מהירות ופשטות רבה יותר. פרוטוקולי ספקטרומטריית מסה חייבים לשלב את שיטות הכרומטוגרפיות והנגזרות המתאימות, מקורות יינון ומנתחי מסה 27,28,29. בנוסף לדרישה למומחה מיומן, פרוטוקולי ספקטרומטריית מסות הם ארוכים, ומגוון השיטות מקשה על השוואה בין נתונים בין מעבדות עם הגדרות שונות. בהקשר של תרופות ביולוגיות, CGE-LIF היא שיטה רגישה שיכולה לספק פרטים מספיקים של גליקופרופיל נוגדן וניתנת להרחבה בקלות לשיטות בתפוקה גבוהה. עבור שפע נמוך, תערובות מורכבות מאוד עם גליקופרוטאינים בעלי אופיון גרוע, היתרונות של ספקטרומטריית מסה עשויים להישאר. עם זאת, ניתוח ה-mAb ברזולוציה גבוהה וברגישות גבוהה הניתן על ידי ניתוח N-glycan מבוסס CGE-LIF משמש כרציונל לניסוי בשיטה זו. יתר על כן, הכנת המדגם והניתוח הושלמו תוך שעות ספורות בלבד30. מחקרים אחרונים הראו כי ניתן להשתמש ב-CGE-LIF כדי לנטר גליקנים שמקורם בפלזמה אנושית31, בעכבר32 וב-CHO IgGs33. מחקרים אלה מדגישים את השימוש ב- CGE-LIF לניתוח דגימות בתפוקה גבוהה ולנפחי מדגם קטנים.
לשיטת CGE-LIF יש מגבלות שיש לקחת בחשבון. העלות היא חסם משמעותי לשימוש במכשיר זה ובמכשירים אחרים לניתוח גליקנים. עם זאת, עלויות אלה אופייניות בתחום, ו- CGE-LIF נחשב לאפשרות חסכונית34. מעבדות עם תקציבים קטנים יותר עשויות למצוא את זה מעשי יותר לשכור מכונות או מיקור חוץ של ניתוח דגימות. שיקול נוסף של כל שיטה אנליטית הוא יכולת החזרה. ההערכה של CGE-LIF נערכה באמצעות 48 העתקים של אותו מדגם שנבדקו בימים שונים. סטיית התקן היחסית לכל נימי נקבעה עבור יכולת חזרה תוך-באץ' ובין-אישית. ההשוואה התוך-תאית של שכפולים נמצאה כבעלת סטיית תקן יחסית של 6.2%, מה שמצביע על כך שהביצועים הנימיים אינם אחידים. יתר על כן, השוואה של נתוני interbatch הראתה סטיית תקן יחסית של 15.8%31, מה שמצביע על כך שהביצועים הנימיים משתנים עם הזמן. החסרונות התפעוליים שזוהו עשויים שלא לחול במחקר הנוכחי, המשתמש במכונות שונות ובריאגנטים קנייניים. אם משתמשים מתכוונים לפתח פרוטוקול פנימי, כדאי לשקול את המחקר של Ruhaak et al. 31, אשר העריך בקפידה את הריאגנטים עבור CGE-LIF. ככאלה, הריאגנטים להזרקת דגימה (Hi-Di Formamide ו-DMSO), תיוג גליקאן (NaBH3CN או 2-picoline borane)31 ואחרים עברו אופטימיזציה.
מחקר זה מציג פרוטוקול גליקו-הנדסה יעיל בזמן המשלב את המהירות של RNAi ישיר עם ניתוח גליקומי במורד הזרם. המתודולוגיה מומחשת באמצעות הגן Fut8 כמטרה מהסיבות שתוארו לעיל.
פרוטוקול
1. תכנון ושיקום DsiRNA
- השתמש בספארי, בפיירפוקס או ב-Microsoft Edge כדי לגשת לאתר IDT (https://eu.idtdna.com). מדף הבית, בחר את הכרטיסיה מוצרים ושירותים ואחריה הפרעת RNA. כדי ליצור מבנים מותאמים אישית של מצעי דיצרים (DsiRNA) המכוונים לגן Fut8 , בחר כלי תכנון ואחריו לשונית יצירת DsiRNA מותאם אישית .
- הזן את מספר ההצטרפות Fut8 או הזן ידנית את רצף הגנים כדי להתחיל. במחקר זה, רצפי Fut8 המוצעים הן מהערכים "CHO-K1" והן מהערכים "אוגר סיני" התקבלו https://chogenome.org ושימשו ליצירת DsiRNA. לרוב הגנים יש מספר גרסאות תעתיק, וחשוב לוודא ש-DsiRNA יהיה פעיל בכל הווריאנטים המדווחים בהרכבה הנוכחית.
- בחר באפשרות לבצע חיפוש "פיצוץ ידני" מכיוון שהגנום של תאי CHO אינו זמין כעת כ"גנום ייחוס " באתר IDT. שלב זה מחפש התאמות בין רצפי DsiRNA מותאמים אישית לבין הגנום המעניין.
- לחץ על חיפוש כדי ליצור רצפי DsiRNA.
- בתורו, להעריך את הספציפיות של כל DsiRNA באמצעות הפונקציה "פיצוץ ידני" עם מזהה המס:10029 (קווי תאי CHO ואוגר סיני). תוצאות כיסוי שאילתות מצביעות על כך שמבני DsiRNA תואמים את Fut8 (כולל גרסאות תעתיק Fut8 ) ב-100%, בעוד שהמשלימות נגד מטרות לא מכוונות היא ≤76%35.
- בדקו שה-DsiRNA מכוון ספציפית ל-Fut8 כדי לוודא שתכולת ה-GC היא בין 30%-50%. תכולת GC נמוכה קשורה לקשירת קשירה חלשה ולא ספציפית, בעוד שתכולת GC גבוהה מעכבת את שחרור ה-siRNA וטעינתו לתוך קומפלקס RISC36.
- בחר שלושה DsiRNA לשימוש במחקרי טרנספקציה (טבלה 1), שכל אחד מהם מכוון למיקום אחר של הגן Fut8 . רכשו מ-IDT DsiRNA שאינו מכוון מראש או מקושקש מ-IDT לניסויי בקרה.
- עם ההגעה, צנטריפוגה DsiRNA ב 13,300 x g במשך דקה אחת כדי לכדור לפני פתיחת הצינור. בנה מחדש כל DsiRNA ליאופילי במאגר דופלקס נטול נוקלאזות (המסופק על ידי IDT) לפתרון מלאי של 100 μM. לדוגמה, הוסף 20 μL של מאגר ל-2 ננומול של DsiRNA כדי לקבל מלאי של 100 μM.
- כדי להבטיח ערבוב מספיק, דגירו את תמיסות המלאי בטמפרטורת החדר למשך 30 דקות תוך כדי רעד עדין על שייקר מסלולי (50 סל"ד, 16 מ"מ מסלול).
- צור תערובת ראשית על ידי שילוב של 20 μL של כל מבנה DsiRNA המכוון ל- Fut8 (100 μM של כל DsiRNA). מכינים aliquots ומאחסנים ב-−20 °C (74 °F).
| יעד DsiRNA | רצף | GC (%) | ||
| מבנה א' | 5' GAGAAGAUAGAAACAGUCACAAAAACC 3' | 36% | ||
| 5' GGUAUUUGACUGUUCUOCUAUCUUCUCUC 3' | ||||
| מבנה ב' | 5' AGAAUGAGAAUGGAUGUUUUUCCTT 3' | 32% | ||
| 5' AAGGAAAAACAUCCAUUCUCUCAUUCUGA 3' | ||||
| מבנה ג' | 5' AGAGAAGAUAGAAACAGUCACAAAUAC 3' | 32% | ||
| 5' GUAUUUGACUGUUUCUCUCUUCUCUCG 3' | ||||
טבלה 1. רצפי DsiRNA המשמשים להפלת Fut8. רצפים שנוצרו על ידי IDT המכוונים ל- Fut8 בגנומים של אוגר סיני ותאי CHO K1. רצפי החושים והאנטי-סנס עבור כל מבנה מוצגים (בהתאמה), ותוכן ה-GC של כל מבנה מוצג. נדפס מחדש מתוך Kotidis et al. 52.
2. טרנספקציה של DsiRNA
- החייאת תאי CHO המבטאים נוגדן חד שבטי IgG37 באמצעות תנאי תרבית המתאימים לקו העניין של התאים.
הערה: התאים ששימשו במחקר זה נוצרו באמצעות מערכת גלוטמין סינטאז (GS), שבה GS אנדוגני מעוכב על ידי L-מתיונין סולפוקסימין (MSX) כדי לשפר את הבחירה של שיבוטים נדירים בעלי תפוקה גבוהה. לכן, השתמש ב- MSX רק אם נדרש על-ידי שורת התאים שבחרת.- להפשיר בקבוקון של תאים במשך 2-3 דקות באמבט מים שנקבע ל 37 מעלות צלזיוס. נקו את החלק החיצוני של הבקבוקון עם 70% (v/v) אתנול והמשיכו את כל העבודה בארון בטיחות ביולוגית מסוג II.
- העבר את תרחיף התא לצינור צנטריפוגה של 15 מ"ל המכיל 9 מ"ל של מדיום מוכן מראש המתאים לקו התא המועדף. גלול את התאים על ידי צנטריפוגה ב 100 x g במשך 5 דקות.
- יש להסיר ולהשליך בזהירות את המדיום מבלי להפריע לכדור התא. לאחר מכן, בצעו החייאה של גלולת התא ב-10 מ"ל של מדיום מוכן מראש וקחו אליקווט לספירה.
- הכתימו את התאים בכחול טריפאן אם סופרים אותם באמצעות המוציטומטר, או כתם מתאים להבחנה בין תאים חיים/מתים בעת שימוש במונה תאים אוטומטי.
- לאחר שתי משיטות הספירה, העבירו נפח מתאים של תרחיף תאים לבקבוק שייק ארלנמאייר של 125 מ"ל בצפיפות תאים בת קיימא של 3 x 10⁵ תאים·mL-1 ב-30 מ"ל של בינוני (עם תוספת אופציונלית של 50 μM MSX).
- מעבירים תאים לחממה המוגדרת ל-36.5 מעלות צלזיוס, 5% CO2 ומניחים על פלטפורמת רעד ב-150 סל"ד (מסלול של 16 מ"מ).
- תאי מעבר כל 3-4 ימים בצפיפות זריעה של 2 x 10⁵ תאים·מ"ל-1 ונפח עבודה של 50 מ"ל בבקבוקון שייק ארלנמאייר 250 מ"ל. אם אתם משתמשים ב-MSX, הפסיקו את השימוש בתוספת לאחר הקטע הראשון.
- תאי מעבר 2x בנוסף להפשרה.
- טרנספקציה
- העריכו את צפיפות התאים וודאו שחיוניות התא גדולה מ-90%.
- נקו בזהירות את ארון הבטיחות הביולוגית ואת כל הציוד עם 70% (v/v) אתנול ופתרון מעכב RNase כדי למנוע זיהום.
- תאי גלולה ב 100 x g במשך 5 דקות ו resuspend בתווך מוכן מראש לצפיפות תאים קיימא של 5 x 10⁶ תאים·mL-1.
- העברת 8 μL (שווה ערך ל-1 μM) של תערובת או בקרה של DsiRNA מאסטר לקובט אלקטרופורציה סטרילי (0.4 ס"מ). לאחר מכן, העבר 800 μL של תרחיף התא (שווה ערך ל-4 x 10⁶ תאים) לאותו קובט וודא ששני הרכיבים מעורבים.
- ספק את תנאי הדופק הבאים: 1200 וולט, 0.1 אלפיות השנייה, צורת גל מרובעת.
- מעבירים את תרחיף התא מהקובטה לבאר אחת של צלחת בעלת 6 בארות, תוך הקפדה על הימנעות מחומר דמוי קצף. שחזרו את התאים באינקובטור (36.5 מעלות צלזיוס, 5% CO2) מבלי לרעוד במשך 10 דקות.
- הוסיפו 800 μL של מדיה מוכנה מראש כדי ליצור נפח סופי של 1.6 מ"ל לבאר והחזירו את התאים שעברו טרנספקט לאינקובטור לצורך גדילה (36.5 מעלות צלזיוס, 5% CO2) תוך כדי רעד ב-150 סל"ד (מסלול של 16 מ"מ).
- קוצרים את הסופרנאטורים והתאים ב-48 שעות לאחר הטרנספקציה.
נקודת עצירה: ניתן לשמור על סופרנטנט תרבית התאים בטמפרטורה של -20 מעלות צלזיוס; עם זאת, מומלץ כי יש לבצע את התזה של התא מיד לאחר איסוף הכדורים בתאים כדי למנוע פירוק חלבונים. סופרנאטים משמשים בשלב 3, שלב 4 ושלב 5, בעוד שכדורי התא משמשים בשלב 6.
3. כימות וטיהור IgG
- מדוד את ריכוז ה- IgG באמצעות אינטרפרומטריה ביו-שכבתית או שיטה אחרת של בחירה.
- לחות חלבון A ביוסנסור טיפים בדילול מדגם במשך 10-30 דקות. בינתיים, מעבירים את תרחיפי התאים לצינורות צנטריפוגה של 15 מ"ל ותאי כדוריות ב-100 x גרם למשך 5 דקות או מסירים תאים על ידי סינון דרך מסנן ניטרוצלולוז של 0.45 מיקרומטר.
- מבלי להפריע לכדור, העבירו בזהירות את הסופרנאטנט המבודד המכיל IgG לתוך צינור צנטריפוגה נקי.
- השתמש בהגדרות הבאות עבור אינטרפרומטריה ביו-שכבתית: מהירות שייקר, 2200 סל"ד; זמן ריצה, 60 שניות. פרמטרים אלה ישמשו למדידת כל הדגימות והפקדים.
- לאחר התייבשות קצות הביוזנסור, צרו עקומה סטנדרטית באמצעות תקן IgG (4 μL מכל ריכוז).
- ריכוזי דגימה כמותיים על ידי טעינת 4 μL של סופרנאטנט התא. נקו את המנגנון עם מגבונים נטולי מוך בין כל דגימה.
- קשר את העקומה הסטנדרטית לדגימות הלא ידועות כדי לבצע אינטרפולציה של קצב הקישור של הדגימות הלא ידועות. שמור את הנתונים וייצוא כקובץ csv או PDF.
- טיהור IgG
- מכינים חיץ אלוטיון המכיל 0.2 M גליצין (pH 2.5) ומעקרים על ידי מעבר דרך מסנן של 0.22 מיקרומטר.
- סנן 1 מ"ל של הסופרנטנט המבודד בטמפרטורת החדר באמצעות צינורות מסנן מיקרוצנטריפוג' של 0.22 מיקרומטר עד שכל הסופרנטנט זורם דרכו.
- גלולה 150-200 μL של חלבון A חרוזי אגרוז בצינורות צנטריפוגה 1.5 מ"ל ב 100 x g במשך 3 דקות להשליך את supernatant. לאחר מכן, שטפו את חרוזי החלבון A עם 150-200 μL של מדיום תרביות תאים וחזור על צנטריפוגה. השליכו את הסופרנאטנט.
- בצעו החייאה של חרוזי החלבון A המשוזנים עם 1 מ"ל של הסופרנאטים המוכנים משלב 3.2.3. ולהעמיס לתוך צינור פוליפרופילן 1 מ"ל. הצמידו את צינור הפוליפרופילן למיקסר סיבובי (מסלול 15 מ"מ) וסובבו ב-30 סל"ד למשך 60-90 דקות בטמפרטורת החדר או למשך הלילה ב-4 מעלות צלזיוס.
- לאחר השלמת הדגירה, אספו את הזרימה ושטפו את החרוזים ב-1 מ"ל של 1x PBS כדי להסיר חלבונים לא מאוגדים. אספו גם את חלק הכביסה.
- Elute IgG מהחלבון A חרוזים על ידי הוספת 3 מ"ל של חיץ אלוטיון לעמודת הפוליפרופילן. אסוף שברים רציפים המתנקזים מהעמודה (500 μL כל אחד) לצינורות מסומנים.
- אופציונלי: אם יש לאחסן את הנוגדן המטוהר, נטרל את מאגר האלוטיון על ידי הוספת 25 μL של 1 M Tris pH 9.5. דלג על שלב זה אם הנוגדן יעובד באופן מיידי באמצעות החלפת חיץ וכו'.
הערה: יש לשמור על כל חלקי הטיהור (זרימה דרך, שטיפות וכל שברי ההמלטה) כדי להבטיח שחלבון המטרה לא יאבד. דוגמאות אלה יכולות גם לעזור במהלך פתרון בעיות אם הטיהור אינו מוצלח. - השתמש באלוטיון הראשון (elution A) לעיבוד במורד הזרם, אך שמור את כל השברים האחרים אם יידרשו בעתיד.
4. חילופי מאגרים וריכוז דגימות
- החלף מאגר IgG elution עם 1x PBS.
- טען elution A על רכז צנטריפוגלי חתך משקל מולקולרי של 3 kDa. עיין במדריך היצרן בעת בחירת עמודת MWCO מתאימה. בניסוי זה, גודל נקבוביות קטן יותר מבטיח שמירה מקסימלית של חלבון מופרש, אך גם מגדיל את זמן הצנטריפוגה.
- צנטריפוגה ב 13,300 x g במשך 40-50 דקות ב 4 מעלות צלזיוס. צנטריפוגה הושלמה ברגע שהנפח השיורי שווה או קטן מ-50 מיקרול'.
- השליכו את הזרימה והוסיפו 500 μL של 1x PBS מקדים (4 °C) כדי לדלל את שאריות ה-supernatant. צנטריפוגה הדגימה שוב באמצעות אותם תנאים (13,300 x g במשך 40-50 דקות ב 4 °C ) עד 50 μL של שאריות supernatant נשאר.
- הוסף 500 μL של prechilled (4 °C) 1x PBS כדי לדלל את הסופרנאטנט השיורי ולחזור על תהליך הצנטריפוגה שוב כדי לקבל דילול של 100x של הסופרנאטנט.
- ריכז את הסופרנט לריכוז סופי של ~2.5 גרם· L-1 ב 40 μL או פחות כדי להבטיח תאימות עם שיטת ניתוח הגליקן.
הערה: יש לטעון 100 מיקרוגרם לצורך ניתוח גליקאן.
נקודת עצירה: ניתן לאחסן את ה-IgG המרוכז (ב-1x PBS) בטמפרטורה של 20 מעלות צלזיוס ולהפשיר אותו לפני ניתוח הגליקן.
5. ניתוח גליקאן
- בצע ניתוח גליקאן באמצעות אלקטרופורזה של ג'ל נימי על פי הוראות היצרן.
- מעבירים 200 μL של תמיסת החרוז המגנטי לצינור PCR של 0.2 מ"ל ומניחים על המעמד המגנטי כדי להפריד את החרוזים מהסופרנטנט.
- הסר בזהירות את ה- supernatant והסר את הצינורות מהמעמד המגנטי. הוסיפו את דגימת החלבון המטוהר ואת המערבולת כדי להבטיח ערבוב מלא.
- הוסף חיץ דנטורציה (מסופק) לצינור הדגימה ודגירה למשך 8 דקות בטמפרטורה של 60 מעלות צלזיוס. שמור על צינורות הדגימה פתוחים לביצועי תגובה אופטימליים.
- הוסיפו PNGase F (500 יחידות לדגימה) ודגרו במשך 20 דקות בטמפרטורה של 60 מעלות צלזיוס כדי לבקע את הגליקנים מהנוגדנים המטוהרים.
- לאחר שחרור N-glycans, סגור את צינור הדגימה ואת המערבולת. מוסיפים אצטוניטריל, מערבולת ודגירה בטמפרטורת החדר למשך דקה אחת.
- מקם את צינורות הדגימה במעמד המגנטי כדי להפריד בין החרוזים לתמיסה. השתמשו בפיפטה כדי להסיר בזהירות את ה-supernatant מבלי לגעת בחרוזים.
- במכסה אדים, הוסיפו לדגימה את תמיסת התוויית הגליקן המכילה פלואורופור. מערבולת כדי להבטיח ערבוב מספיק דגירה ב 60 °C (60 °C) במשך 20 דקות (מכסים פתוחים).
- לשטוף את הדגימה 3x באצטוניטריל כדי להסיר צבע עודף. לאחר מכן, הקפידו על הגליקנים המסומנים במי DDI (מסופקים).
- הניחו את צינור הדגימה במעמד המגנטי כדי להפריד בין החרוזים לבין ה-supernatant המכילים גליקנים מטוהרים ומסומנים.
- הכן וטען את תקן סולם הגלוקוז, תקני סוגריים ודגימות למיקומי המגש המיועדים. הפעל את פרוטוקול ניתוח הגליקן.
- השתמש בתוכנה מתאימה כדי לנתח ולזהות את הגליקנים הקיימים בדגימה.
הערה: ודא שהטמפרטורה בבלוק החום מדויקת לדגירה יעילה.
6. כתם מערבי
- כימתו את יעילות ההדחה באמצעות ניתוח כתמים מערביים עם נוגדן נגד α-1,6-fucosyltransferase. ג'לים פוליאקרילאמיד ומתכוני חיץ זמינים מספקים מסחריים38,39.
- בשעה 48 שעות לאחר הטרנספקציה, ספרו את התאים באמצעות המוציטומטר או מונה תאים אוטומטי וקבעו את נפח תרחיף התאים השווה ל-5 x 10⁶ תאים.
- העבר את הנפח המתאים של תרחיף התא מכל מצב ניסיוני לצינור צנטריפוגה סטרילי של 1.5 מ"ל וכדור ב-13,200 x גרם למשך 10 דקות ב-4 מעלות צלזיוס. השליכו את הסופרנאטנט.
- Lyse התאים עם 200 μL של חיץ lysis (מתאים למיצוי של חלבונים מתאי יונקים) המכיל 1% v/v קוקטייל מעכב פרוטאז בטמפרטורת החדר במשך 10 דקות. יש לנער את התערובת בעדינות במהלך הדגירה (50 סל"ד, מסלול של 16 מ"מ).
- כדי להסיר את הפסולת התאית, צנטריפוגה של הליזאט ברזולוציה של 13,200 x g למשך 10 דקות ולאחר מכן העבר את הליזאט המפונה לצינור סטרילי של 1.5 מ"ל.
- מדוד את ריכוז החלבון של כל ליזאט באמצעות ספקטרופוטומטר ב-280 ננומטר. לאחר מכן, להכין aliquots של כל דגימה מותאם יש את אותו ריכוז חלבון.
- דנטורציה של דגימות החלבון על ידי דגירה בטמפרטורה של 100 מעלות צלזיוס למשך 10-15 דקות בדגימת DTT-SDS טעינת צבע; ריכוז הצבע הסופי הוא פי 1.
- טענו 15 μL מהדגימות שעברו דנטורציה ו-5 μL של סולם חלבון מוכתם מראש לתוך ג'ל SDS-PAGE עם 12.5% ג'ל פתרון להפרדה יעילה. הפעל את הדגימות במהירות של 25 mA לכל ג'ל למשך 90 דקות או עד שחזית הצבע מגיעה לקצה הג'ל.
- יש להסיר בזהירות את הג'ל מהקלטת ולדגום ב-1x מאגר העברה המכיל מתנול.
- הכן את מערכת ההעברה הרטובה והפעל קרום PVDF עם מתנול. הרכיבו את הג'ל ואת קרום ה-PVDF להעברה רטובה, הניחו גוש קרח במיכל ההעברה והטביעו את המיכל כולו בקרח כדי להבטיח שתנאי ההעברה יישארו קרים. לרוץ ב 350 mA / 100 V במשך 60 דקות.
- חסום את הממברנה על ידי דגירה בתמיסת חסימה למשך 30 דקות בטמפרטורת החדר תוך כדי רעד עדין על שייקר מסלולי ב-50 סל"ד (מסלול 16 מ"מ).
- יש לשטוף את הקרום במים סטריליים למשך 5 דקות ולחזור על הפעולה. לאחר מכן, השתמש באזמל נקי כדי לחתוך בזהירות את הממברנה אופקית במהירות של כ-50 kDa, תוך שימוש בסולם החלבון הנראה לעין כמדריך.
- דגירה של הממברנה המכילה חלבונים הגדולים מ-50 kDa עם נוגדן נוגדן נגד α-1,6-fucosyltransferase בשעה 1:1000 במאגר בדילול נוגדנים. דגירה של הממברנה עם חלבונים משותקים בפחות מ-50 kDa עם anti-GAPDH ב-1:10,000 במאגר מדולל. ממברנות עשויות להיות דגירה במשך שעה אחת בטמפרטורת החדר או לילה ב 4 °C (74 °F).
- שטפו את הממברנות במשך 5 דקות (x3) ולאחר מכן דגירו עם נוגדן משני מתאים למשך 30 דקות לפחות בטמפרטורת החדר.
- בצע 3x שטיפות עם חיץ שטיפה למשך 5 דקות, ולאחר מכן 3x שטיפות עם מים. לאחר מכן, לפתח את הממברנה עם מצע כרומוגני (או מגיב זיהוי מתאים) עד להופעת רצועות (1-60 דקות).
- לשטוף את הממברנה 2x עם מים, ולאחר מכן לאפשר לו להתייבש. צלם תמונה של הממברנה ובצע ניתוח צפיפות40.
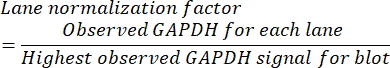
- כדי לחשב את ביטוי החלבון היחסי בכל דגימה, תחילה חישבו את היחס בין אות GAPDH בדגימות. זהו גורם הנורמליזציה עבור כל דגימה שמתקן עבור אי התאמות בטעינת הדגימה.
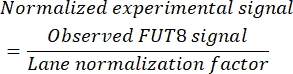
- חלק את עוצמת האות FUT8 (עבור כל נתיב) בגורם הנורמליזציה של הנתיב המתאים כדי לקבל את ביטוי החלבון FUT8 היחסי.
תוצאות
ניתוח כתמים מערביים הראה ביטוי מופחת של חלבון FUT8 בתאים שעברו טרנספקטציה עם תערובת של שלושה מבני Fut8 DsiRNA. בדגימות בקרה שעברו טרנספקציה עם DsiRNA שאינו מכוון, FUT8 הופיע כפס כפול ב-~65 ו-70 kDa. מאחר שהמשקל המולקולרי החזוי של FUT8 הוא 66 kDa, ירידה בעוצמת האות של רצועת המשקל המולקולרית הנמוכה יותר מעידה על השתקת גנים. כדי לאשר ולכמת השתקת גנים, רמת החלבון FUT8 נורמלה לרמת החלבון GAPDH היחסית. ניתוח כתמים מערבי זיהה שני פסים עבור GAPDH ב~37 ו-35 kDa. רצועת המשקל המולקולרית הגבוהה יותר מתאימה לגודל החלבון החזוי ולכן משמשת בחישובי הנורמליזציה. כאשר מנורמלים כנגד רמות חלבון GAPDH, ביטוי חלבון FUT8 הופחת בעד 60% (איור 1).
בהתאם לתצפית של פגיעה בגנים ב-48 שעות לאחר הטרנספקציה, דגימות mAb תואמות עובדו לניתוח על ידי CGE- LIF. מבנים של גליקנים מתאי נוק-דאון הראו ירידה בפוקוסילציה. מגמה זו בלטה בעיקר במבנים אגלקטוזיליים (G0F) ונצפתה במידה פחותה במבנים גלקטוזיליים (G1F, G1F' ו-G2F). מתוך מערך נתונים זה, סך הפוקוסילציה של ליבת ה-IgG ירד לכ-75%, לעומת כ-95% פוקוסילציה של הליבה שנצפתה עבור מצב הבקרה השלילית (איור 2). צפויה ירידה גדולה יותר בפוקוסילציה של הליבה בהתחשב בירידה של כ-60% ברמות החלבון FUT8. לאחר הרהור, ראוי לציין כי הגליקופרופיל מייצג mAbs גליקוזיליים שהצטברו במשך תקופה של 48 שעות מאז הטרנספקציה, בעוד שהשתקת גנים מייצגת את רמות החלבון הקיימות בזמן הקציר בלבד.
בחינה נוספת של שיטת ההפלה הזו כללה שינוי של ריכוז ה-DsiRNA, זמן הקציר ותנאי האלקטרופורציה. כל גורם נבדק בנפרד כדי לקבוע את הרלוונטיות שלו. ההשפעה של תנאי פולס האלקטרופורציה על הפוקוסילציה של הליבה ועל יכולת הקיום של התאים נלכדת בניסויים B, C, D ו-E. תוצאות אלה מדגימות הפחתה של פי שניים בפוקוסילציה של הליבה מאלקטרופורציה באמצעות שני פולסים של גלים מרובעים (ניסוי C) בהשוואה לפולס גל ריבועי יחיד (ניסוי B), ללא הבדלים משמעותיים בכדאיות התא (טבלה 2). תנאי אלקטרופורציה e3 (ניסוי D) הוביל לכדאיות התאים הנמוכה ביותר (כ-90%) ולתפוקת ה-IgG בנקודת זמן זו. עם זאת, תאים ששרדו את אירוע האלקטרופורציה עברו טרנספקציה מתונה, כפי שמעידה הירידה של כ-10% בפוקוסילציה הליבתית (טבלה 2). באופן מעניין, ניסוי D השתמש בתנאי אלקטרופורציה שסיפקו את ההפחתה הגדולה ביותר בפוקוסילציה של הליבה (14.7%) אך ככל הנראה פגעו בכדאיות התאים (91%-93% בכדאיות). סדרה מוגבלת זו של ניסויים ממחישה את הצורך לקבוע הגדרות אלקטרופורציה המאפשרות חדירה מספקת של קרום התא מבלי לגרום לנזק בלתי הפיך. מעניין גם לציין את התפקיד של ריכוז siRNA וזמן קציר על fucosylation הליבה. באופן כללי, לעלייה בריכוז ה-siRNA יש השפעה גדולה יותר על פוקוסילציה של הליבה מאשר הגדלת זמן הקציר (ניסויים B, F, G לעומת ניסויים A, B, H). בניסויים עתידיים, יהיה מעניין לדרג את ריכוזי ה-siRNA המועברים בשיטת האלקטרופורציה e2.
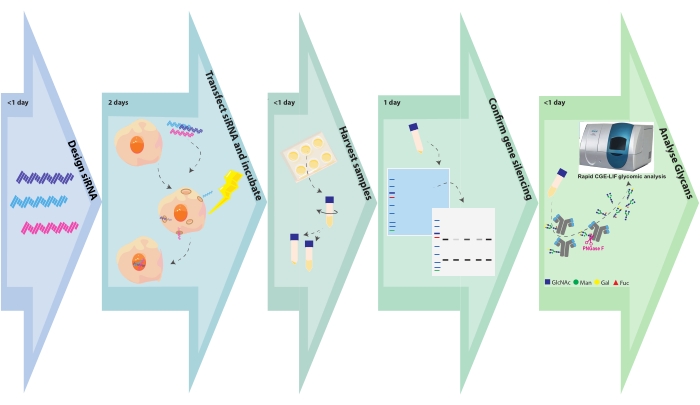
איור 1. תרשים זרימה ניסיוני. שלבי הגליקו-הנדסה וניתוח הדגימה מתוארים עם הזמן המשויך הנדרש לכל שלב. תכנון SiRNA אורך מספר שעות, בהתאם למספר המטרות או המבנים של הגנים לכל מטרה גנטית. טרנספקציה של תאי CHO עם siRNA הושלמה תוך מספר שעות, ותאים שעברו טרנספורמציה נותרים לגדול במשך 48 שעות. כדוריות תאים וסופרנאטים נקצרים תוך מספר שעות. כדורי התאים נשחקים, והחלבונים התוך-תאיים מופרדים בדף SDS ולאחר מכן מוכתמים ונבחנים עם נוגדנים נגד גן המטרה. הגליקנים נבקעים מנוגדנים מטוהרים ומנותחים על ידי CGE-LIF. מבחנים אלה עשויים לדרוש יום אחד כל אחד. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
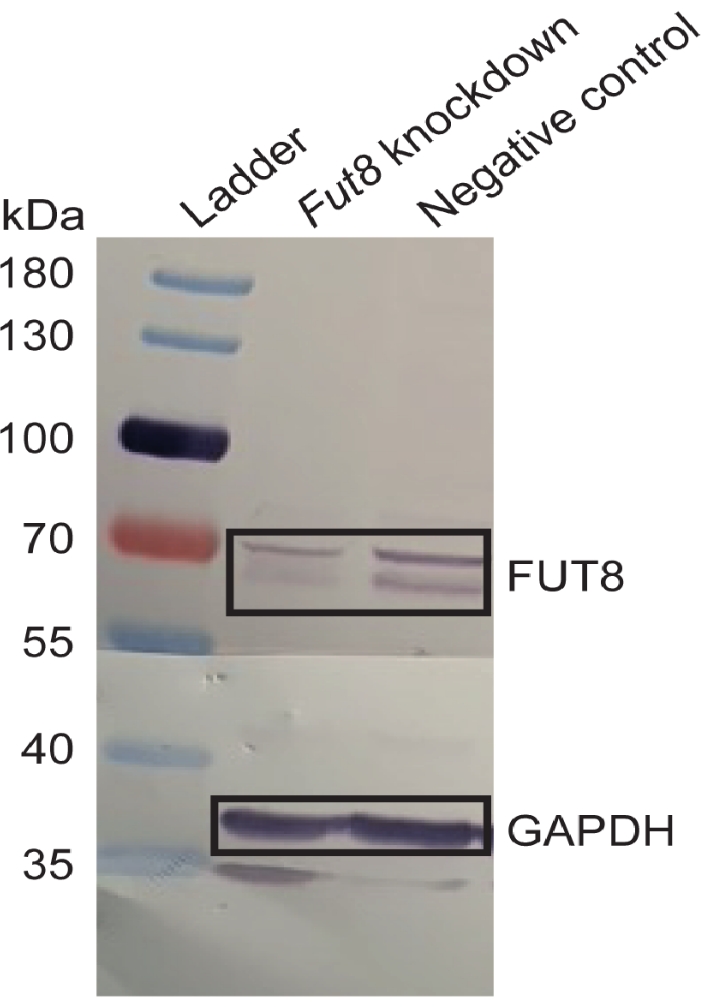
איור 2. אישור של הפרעת RNA. זיהוי כתמים מערביים של רמות חלבון α-1,6-fucosyltransferase (FUT8) בדגימות שטופלו ב-Fut8 או ב-DsiRNA בקרה שאינה ממוקדת מטרה. רצועות המתאימות ל- FUT8 הן בעלות שליטה אינטנסיבית יותר מאשר דגימות פירוק Fut8. רמת החלבון GAPDH הוערכה גם על מנת לנרמל את ביטוי גני המטרה. כל הדגימות נלקחו מניסוי G (ראו טבלה 2). נדפס מחדש מתוך Kotidis et al. 52. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
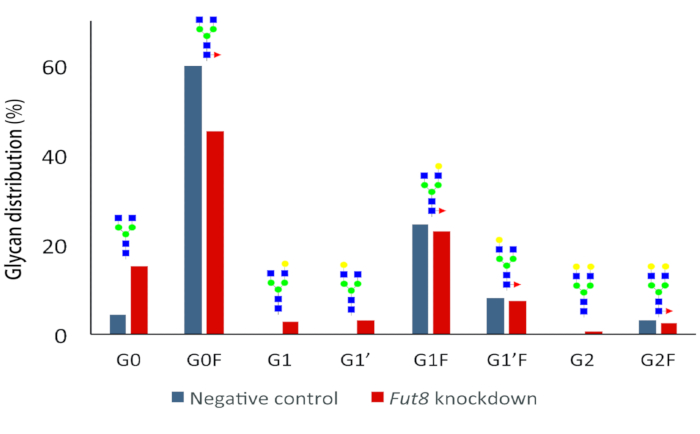
איור 3. ההשפעה של ההדחה של Fut8 על הגליקוזילציה המצטברת של IgG ב-48 שעות. שינוי בהתפלגות הגליקנים מזוהה בדגימות נוק-דאון. בפרט, השפע היחסי של המבנים העיקריים של הליבה-fucosylated (G0F) מצטמצם בעוד המינים afucosylated גדלים בניסוי knockdown. המדידות בוצעו מדגימות ניסוי G (ראו טבלה 2). טריפלקטים ביולוגיים שבוצעו עבור כל ניסוי היו מעורבים לאחר הקציר כדי להפחית את הנטל של ניתוח במורד הזרם. נדפס מחדש מתוך Kotidis et al. 52. אנא לחץ כאן כדי להציג גרסה גדולה יותר של נתון זה.
| שם הניסוי | שיטת אלקטרופורציה | ריכוז DsiRNA (nΜ) | זמן הקציר (ח) | כדאיות (%) | Xv (106 תאים·mL-1) | IgG titer (mg· ל-1) | הבדל בליבה-פוקוסילציה (%) | ||||||
| ExpA_Negative | ה1 | 500 | 24 | 98.3 | 4.71 | 122.5 | - | ||||||
| ExpA_Knockdown | ה1 | 500 | 24 | 98.3 | 4.9 | 110.3 | 4.08 | ||||||
| ExpB_Negative | ה1 | 500 | 48 | 95.6 | 9.55 | 453.3 | - | ||||||
| ExpB_Knockdown | ה1 | 500 | 48 | 96.7 | 9.61 | 469 | 5.38 | ||||||
| ExpC_Negative | ה2 | 500 | 48 | 96.3 | 9.91 | 449.3 | - | ||||||
| ExpC_Knockdown | ה2 | 500 | 48 | 96.7 | 11 | 454.6 | 11.42 | ||||||
| ExpD_Negative | ה3 | 500 | 48 | 90.6 | 6.25 | 318.5 | - | ||||||
| ExpD_Knockdown | ה3 | 500 | 48 | 89.1 | 6.09 | 311.85 | 9.71 | ||||||
| ExpE_Negative | ה4 | 500 | 48 | 91.1 | 7.2 | 380.3 | - | ||||||
| ExpE_Knockdown | ה4 | 500 | 48 | 93.3 | 7.79 | 422.8 | 14.7 | ||||||
| ExpF_Negative | ה1 | 750 | 48 | 96.2 | 9.7 | 501 | - | ||||||
| ExpF_Knockdown | ה1 | 750 | 48 | 95.7 | 9.76 | 504.6 | 9.9 | ||||||
| ExpG_Negative | ה1 | 1000 | 48 | 96.1 | 11.1 | 422.6 | - | ||||||
| ExpG_Knockdown | ה1 | 1000 | 48 | 95.9 | 9.73 | 499.3 | 17.26 | ||||||
| ExpH_Negative | ה1 | 500 | 72 | 94.4 | 14.3 | 925.8 | - | ||||||
| ExpH_Knockdown | ה1 | 500 | 72 | 95 | 13.5 | 1018.4 | 7.37 | ||||||
טבלה 2. אופטימיזציה של טרנספקציה. שינויים איטרטיביים בשיטת האלקטרופורציה, ריכוז ה-DsiRNA וזמן הקציר הובילו לשינויים בכדאיות התאים, בצפיפות התאים הקיימת, בטיטר IgG בזמן הקציר ובהבדלים בפוקוסילציה של הליבה. כל ניסוי השווה את ההדחה ואת הבקרה השלילית המתאימה כדי לקבוע אם השינוי מייצר את האפקט הרצוי (כלומר, ירידה בפוקוסילציה). הגדרות האלקטרופורציה היו כדלקמן: e1: 1200 V, 0.1 ms, צורת גל ריבועית; e2: 1200 V, 2x 0.1 ms, 5 s בין פולסים, צורת גל מרובעת; e3: 150 V, 20 אלפיות השנייה, צורת גל מרובעת; e4: 250 V, 500 μF, דעיכה מעריכית. נדפס מחדש מתוך Kotidis et al. 52.
דיון
מסלולי הגליקוזילציה כוללים רשת מטבולית מורכבת של אנזימים וחלבוני עזר. ניתוח תפקידם של מרכיבי המסלול מרתיע אם מסתמכים על נוקאאוט קונבנציונלי או על אסטרטגיות הנדסה גנטית נוקבות בלבד. גישה חלופית היא סינון ראשוני של חברי מסלול באמצעות בדיקת אובדן תפקוד חולפת. לשם כך, שולבו שני פרוטוקולים מהירים, זיהוי RNAi ו- CGE-LIF, כדי ליצור דרך יעילה יותר לאפיין גנים של גליקוזילציה. השיטה המתוארת דורשת 5-7 ימים להשלמתה בהשוואה לשיטות קונבנציונליות שעשויות להימשך מספר שבועות עד להשלמתן. יתר על כן, סביבות מחקר עם יכולות אוטומציה יכולות לנצל שיטה זו כדי לסנן יותר מועמדים לגנים מאשר אפשרי עם טיפול ידני.
הצלחתו של קמפיין גליקו-הנדסה חולף תלויה במידה רבה בתכנון siRNA. עיצובי DsiRNA מותאמים אישית חייבים לעקוב אחר הכללים שתוארו קודם לכן, או כדי להקל על המשתמשים לבחור ברצפים שתוכננו מראש הזמינים באופן מסחרי. בדומה לאסטרטגיות אחרות לשינוי גנים, ל-RNAi יש פוטנציאל להשפעות מחוץ למטרה. לכן, משתמשים מוזמנים להעריך מיקוד גנים לא מכוון בשיטות חישוביות41. בחירות תכנון ניסיוניות יכולות גם לעזור להגביל אפקטים מחוץ למטרה. Kittler et al. הראו כי אספקה מרובבת של siRNA הובילה לירידה בהשפעות מחוץ למטרה42. למרות שזה נראה מנוגד לאינטואיציה, מוצע כי תערובת מאסטר מפחיתה את הריכוז של כל מבנה siRNA, ובכך מגבילה את ההזדמנות להשתקת גנים מחוץ למטרה. יתרון נוסף הוא שהטרנספקציה הסימולטנית של מבני siRNA המכוונים לאותו גן מגדילה את הסבירות ל-RNAi מוצלח. השימוש בתערובת ראשית גם מבטיח עקביות בין דגימות ומשכפלים ומאיץ את תהליך ההעברה. לאחר סינון ראשוני של מבני siRNA מעורבים, ניתן לערוך ניסוי נוסף באמצעות מבנים בודדים כדי לוודא את יעילות ה-RNAi של כל רצף. במחקר זה ובמחקרים אחרים, עד שלושה siRNA רוכזו ונמסרו לתאים 43,44,45. עם זאת, ייתכן שרצוי לסנן יותר משלושה siRNA בו זמנית כדי להתמקד ביעילות בגן יחיד או להתמקד בכמה גנים. ואכן, מחקר אחד הדגים השתקה מרובבת בתיווך siRNA של עד שישה גנים ברמות דומות להשתקה של גנים בודדים46. עם זאת, נדרשים מחקרים נוספים כדי לקבוע את המספר המרבי של מבני siRNA שניתן להשתמש בהם בבריכה מבלי להתפשר על יעילות ההשתקה. אסטרטגיית המולטיפלקס הוצעה על ידי Martin et al. כדי לשפר את הקצב של ניסויי הסינון בספריית RNAi46, ורעיון דומה עשוי להתגלות כמועיל לסינון גנים של גליקוסילציה.
הפרוטוקול המתואר כאן משמש כהוכחת היתכנות מתוך ציפייה שהניסויים הבאים יבוצעו כדי לאמת גנים אחרים של גליקוזילציה. גנים חדשים בעלי עניין עשויים להיות לא אופייניים או פחות פופולריים מ-Fut8, ונוגדנים ראשוניים לזיהוי השתקת גנים עשויים להיות גרועים או לא זמינים. בתרחיש זה, ניתן להשתמש בשיטות חלופיות כגון RT-PCR כדי לכמת השתקת גנים47, אך יש לציין כי RT-PCR מזהה mRNA ולא חלבון. כאשר נוגדנים לכתמים מערביים זמינים, בעיה נפוצה היא זיהוי לקוי או נוכחות של רצועות לא ספציפיות. קיימים מדריכים לפתרון בעיות שיעזרו למשתמשים לפתור בעיות נפוצות, ואלה נוטים לכלול מגוון פתרונות כגון טיטרציה ראשונית של נוגדנים, חסימה חלופית ותנאי זיהוי48,49. במחקר זה, FUT8 הופיע באופן בלתי צפוי כלהקה כפולה ב~ 65 ו ~ 70 kDa. ייתכן כי רצועת ~70 kDa מייצגת FUT8 גליקוזילציה. עדויות ספרותיות מקווי תאים אנושיים מתארות גליקוזילציה המקושרת ל-O ב-Thr 564 50,51, אתר שנשמר באוגר סיני, ורצפי CHO K1 FUT8.
כאמור, מסלולי הגליקוזילציה כוללים לעתים קרובות מערך מורכב של אנזימים. הפרוטוקול הנוכחי פותח, עבר אופטימיזציה והוכח באמצעות תגובת גליקוזילציה מונוגנית הנשלטת על ידי Fut8. לכן, נדרשים מחקרים נוספים כדי לאשר את החוסן של שיטה זו כאשר גן המטרה מקודד אנזים עם קינטיקה חלופית ורמות ביטוי או מסלול המווסת על ידי איזו-אנזימים עם פונקציות יתירות.
יחד, היכולת להשתיק במהירות גנים ולזהות גליקופרופילים IgG שעברו שינוי היא כלי שימושי במאמץ לעבר נוגדנים גליקו-הנדסיים מותאמים אישית. ניתן ליישם תובנות ממחקרים קצרי טווח דומים כדי ליצור תאים גליקו-הנדסיים יציבים לשימוש במבחנים ארוכי טווח כמו תרבית אצווה של מזון. מחוץ להקשר התרופתי, שיטה זו תורמת לחקר הביולוגיה של הגליקנים ומדגישה את הפונקציה החשובה של הגליקנים בהתפתחות, בבריאות ובמחלות.
גילויים
למחברים אין מה לחשוף.
תודות
PK מודה למחלקה להנדסה כימית, אימפריאל קולג 'בלונדון, על המלגה שלו. RD מודה למועצת המחקר לביוטכנולוגיה ומדעים ביולוגיים בבריטניה על לימודיו. MM ממומן על ידי המועצה הבריטית למחקר בתחום הביוטכנולוגיה והמדעים הביולוגיים (הפניה למענק: BB/S006206/1). IAG מודה למועצת המחקר האירית (מלגה מס' GOIPG/2017/1049) ו-CONACyT (מלגה מס' 438330).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| תוכנת 32 קראט | SCIEX | צור קשר | עם יצרן תוכנה לאיסוף וניתוח נתוני גליקן באמצעות פרוטוקול ניתוח גליקן מהיר ושיטת הפרדה. |
| אצטוניטריל, HPLC כיתה | סיגמא אולדריץ' | 34851 | ממס. |
| נוגדן נגד FUT8 | AbCam | ab198741 | ארנב פוליקלונקלי ל-FUT8. השתמש בנוגדנים אלה כדי לכמת את ביטוי החלבון Fut8; החלף נוגדן זה אם משתמשים ב-siRNA המכוון לגן אחר. |
| נוגדן נגד GAPDH | AbCam | ab181602 | ארנב חד שבטי ל-GAPDH. קיימים גנים חלופיים לניקיון משק בית ועשויים להיות מועדפים על ידי המשתמש. |
| ספקטרופוטומטר BioDrop | Biochrom | 80 3006 55 | מכשיר המשמש לכימות ריכוז החלבון. |
| מכשיר BLItz | ForteBio | 45 5000 | . מערכת ניתוח חלבון ללא תוויות. |
| מותג המוציטומטר | Sigma Alrich | BR717810 | מכשיר תא ספירה |
| מחסנית נימית | SCIEX | A55625 | מחסנית נימית מורכבת מראש עם חלון (30 ס"מ אורך כולל, 375 ומיקרו; m קוטר חיצוני (OD), x 50 ומיקרו; m קוטר פנימי (תעודת זהות). |
| ניתוח גליקן C100HT— אלקטרופורזה נימית | יצרנית מגע | SCIEX | מכשיר אלקטרופורזה ג'ל נימי, מכשיר CESI 8000 Plus משמש כעת. |
| CD CHO Medium | Thermo Fisher Scientific | 10743029 | החלף את זה במדיום תרבית המתאים לקו התאים הנבחר. |
| צינורות צנטריפוגה, 15 מ"ל | גריינר ביו | 188261 | צינור פוליפרופילן סטרילי. |
| צינורות צנטריפוגה, 50 מ"ל | Greiner Bio | 227270 | צינור פוליפרופילן סטרילי. |
| CHO IgG | MedImmune | Gift | תאי שחלה של אוגר סיני המבטאים נוגדן חד שבטי IgG (CHO T127). נוצר באמצעות מערכת GS. |
| תמיסת מלח עם חומצת פוספט (DPBS) | Gibco | של | 14190144 1x PBS, ללא סידן או מגנזיום. |
| צלוחיות ארלנמאייר עם מכסה אוורור, 125 מ"ל | קורנינג | 431143 | החלף זאת בכלי תרבית המתאים לגידול קו התאים הנבחר. |
| צלוחיות ארלנמאייר עם מכסה אוורור, 250 מ"ל | קורנינג | 431144 | החלף זאת בכלי תרבית המתאים לגידול קו התאים הנבחר. |
| ערכת תיוג וניתוח מהיר | של גליקן SCIEX | B94499PTO | Labels N-גליקנים עם APTS ולאחר מכן משתמשת במערכת ניקוי מבוססת חרוזים מגנטיים כדי להסיר APTS עודפים. |
| Fut8 DsiRNA | IDT | מותאם אישית | מעוצב בהתאמה אישית DsiRNA מתמקד ב-Fut8. |
| קובטות Gene Pulser, קובטה | 1652088 ביו-ראד | ||
| Gene Pulser Xcell Eukaryotic System | Bio-Rad | 165 2661 | Insturment. יחידה ראשית של Xcell עם Mocdule מאריך קיבול (CE) ו-ShockPod. |
| Immobilon-FL PVDF ממברנה | Merck-Millipore | IPFL00010 | ממברנת העברת אימונובלוט, רקע נמוך. |
| L-מתיונין סולפוקסימין (MSX) | Sigma Aldrich | M5379 | נחוץ רק עבור קווי תאי CHO המשתמשים במערכת הבחירה של גלוטמין סינתטאז (GS). |
| Kimwipes | Thermo Fisher Scientific | 10623111 | מגבונים בעלי מוך נמוך, ספיגה גבוהה ואינרטיים כימית. |
| M-PER מגיב למיצוי חלבון יונקים | Thermo Fisher Scientific | 78505 | חוצצי ליזה חלופיים כגון RIPA מתאימים גם הם. |
| מתנול, ממס | פישר סיינטיפיק | 10365710 | . |
| צינורות מיקרוצנטריפוגה, 1.5 מ"ל | Eppendorf | 616201 | צינורות הניתנים לחיטוי. |
| Mini-PROTEAN Tetra מערכת תאים אלקטרופורזה אנכית | Bio-Rad | 1658035FC | מכשיר. קיבולת 4 ג'ל, עבור ג'לים יצוקים ביד בעובי 1.0 מ"מ, עם מודול Mini Trans-Blot וספק כוח PowerPac HC. |
| NC-Slide A8 | ChemoMetec | 942 0003 | שקופית 8 חדרים לשימוש עם NucleoCounter NC 250. |
| DsiRNA בקרה שלילית, 5 ננומול | IDT | 51 01 14 04 | DsiRNA לא ממוקד. |
| מאגר דופלקס נטול נוקלאז | IDT | 11-01-03-01 | מאגר בנייה מחדש עבור DsiRNA. |
| NucleoCounter NC-250 | Chemometec | יצרן קשר | מכשיר קשר. סולם Page-Ruler של מנתח תאים אוטומטי |
| , 10 עד 180 kDa | Thermo Fisher Scientific | 26616 | תקני חלבון מעורבים בכחול, כתום וירוק עבור SDS PAGE וכתמים מערביים. |
| צינורות PCR | Greiner Bio | 608281 | צינורות הניתנים לחיטוי עבור אליקוטים של DsiRNA והכנת גליקן. |
| קצות מסנן פיפטות מעוקרים (10, 200, 1000 ומיקרו; L) | Gibson | F171203, F171503 F171703 | טיפים למסנן סטרילי כדי למנוע זיהום RNA. |
| אנזים PNGase F | אינגלנד Biolabs | P0704S | מחשוף אנזימטי של גליקנים מגליקופרוטאינים. |
| עמודי פוליפרופילן, 1 מ"ל | Qiagen | 34924 | עמודים לכרומטוגרפיה של זרימת כבידה. |
| קוקטייל מעכב פרוטאז | Sigma Aldrich | P8340 | עיכוב של סרין, ציסטאין, פרוטאזות אספרטיות ואמינו-פפטידאזות |
| חלבון-A חרוזי אגרוז | Merck-Millipore | 16 125 | לטיהור אימונוגלובולינים של בני אדם, עכברים וארנבים. |
| חיישן ביולוגי חלבון-A | ForteBio | 18 5010 | טיפים מתפקדים עם חלבון A לכימות נוגדנים מהיר. |
| RNaseZap | Invitrogen | AM9780 | מסיר זיהום RNAse. |
| דגימה מדוללת | ForteBio | 18 1104 | <חזק>הפעל קצות חלבון A. |
| צנרת סרולוגית (5, 10, 25 מ"ל) | קורנינג | 4487, 4488, 4489 | משמש לטכניקות תרבית תאים סטריליות. |
| תמיסת נתרן ציאנובורוהידריד 1 M בחומר | מפחית | סיגמא אולדריץ' | 296813 |
| פתרון 18 | ChemoMetec | 910-3018 | מגיב צביעה המכיל תפוז אקרידין (AO) ו-4',6-דיאמידינו-2-פנילינדול (DAPI) |
| מסנני צינור צנטריפוגה Spin-X | קורנינג | 8161 | 0.22 ומיקרו; m נקבוביות, קרום אצטט תאית. |
| צלחת מתלה עם מכסה, 6 בארות | Greiner Bio | 657 185 | צלחת תרבית הידרופובית לגידול תרביות השעיה. |
| מסנני מזרק, 0.22 μ m | Sartorius | 514 7011 | אצטט תאית נטול פעילי שטח (SFCA) |
| מזרקים עם קצה נעילת Luer, 20 מ"ל | Fisher Scientific | 10569215 | לחיבור מאובטח עם מסנן מזרק. |
| תמיסת Trypan Blue | Gibco | 15250061 | מכתים תאים מתים וגוססים. |
| Vivaspin 500, 3,000 MWCO | Sartorius | VS0191 | Polyethersulfone |
| WesternBreeze ערכה כרומוגנית, | Thermo Fisher Scientific | WB7105 | חוצצים חוסמים חלופיים ומדללי נוגדנים יכולים להיעשות על ידי המשתמש באמצעות מתכונים הזמינים באינטרנט. |
מקורות
- Jefferis, R. Glycosylation as a strategy to improve antibody-based therapeutics. Nature Reviews Drug Discovery. 8 (3), 226-234 (2009).
- Rathore, A. S., Winkle, H. Quality by design for biopharmaceuticals. Nature Biotechnology. 27 (1), 26-34 (2009).
- Eon-Duval, A., Broly, H., Gleixner, R. Quality attributes of recombinant therapeutic proteins: An assessment of impact on safety and efficacy as part of a quality by design development approach. Biotechnology Progress. 28 (3), 608-622 (2012).
- Lalonde, M. -E., Durocher, Y. Therapeutic glycoprotein production in mammalian cells. Journal of Biotechnology. 251, 128-140 (2017).
- Mimura, Y., et al. Glycosylation engineering of therapeutic IgG antibodies: challenges for the safety, functionality and efficacy. Protein & Cell. 9 (1), 47-62 (2018).
- Walsh, G. Biopharmaceutical benchmarks 2018. Nature Biotechnology. 36 (12), 1136-1145 (2018).
- Zhang, M., Koskie, K., Ross, J. S., Kayser, K. J., Caple, M. V. Enhancing glycoprotein sialylation by targeted gene silencing in mammalian cells. Biotechnology and Bioengineering. , (2010).
- Kanda, Y., et al. et al. of a GDP-mannose 4,6-dehydratase (GMD) knockout host cell line: a new strategy for generating completely non-fucosylated recombinant therapeutics. Journal of Biotechnology. 130 (3), 300-310 (2007).
- Umaña, P., Jean-Mairet, J., Moudry, R., Amstutz, H., Bailey, J. E. Engineered glycoforms of an antineuroblastoma IgG1 with optimized antibody-dependent cellular cytotoxic activity. Nature Biotechnology. 17 (2), 176-180 (1999).
- Xu, X., et al. et al. genomic sequence of the Chinese hamster ovary (CHO)-K1 cell line. Nature Biotechnology. 29 (8), 735-741 (2011).
- Chan, K. F., et al. et al. of GDP-fucose transporter gene (Slc35c1) in CHO cells by ZFNs, TALENs and CRISPR-Cas9 for production of fucose-free antibodies. Biotechnology Journal. 11 (3), 399-414 (2016).
- Zhang, P., et al. Identification of functional elements of the GDP-fucose transporter SLC35C1 using a novel Chinese hamster ovary mutant. Glycobiology. 22 (7), 897-911 (2012).
- Amann, T., et al. Genetic engineering approaches to improve posttranslational modification of biopharmaceuticals in different production platforms. Biotechnology and Bioengineering. 116 (10), 2778-2796 (2019).
- Karottki, K. J., et al. Awakening dormant glycosyltransferases in CHO cells with CRISPRa. Biotechnology and Bioengineering. 117 (2), 593-598 (2020).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Hammond, S. M., Bernstein, E., Beach, D., Hannon, G. J. An RNA-directed nuclease mediates post-transcriptional gene silencing in Drosophila cells. Nature. 404 (6775), 293-296 (2000).
- Bernstein, E., Caudy, A. A., Hammond, S. M., Hannon, G. J. Role for a bidentate ribonuclease in the initiation step of RNA interference. Nature. 409 (6818), 363-366 (2001).
- Shields, R. L., et al. et al. of fucose on human IgG1 N-linked oligosaccharide improves binding to human FcγRIII and antibody-dependent cellular toxicity. Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. et al. Absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Mori, K., et al. Engineering Chinese hamster ovary cells to maximize effector function of produced antibodies using FUT8 siRNA. Biotechnology and Bioengineering. 88 (7), 901-908 (2004).
- Imai-Nishiya, H., et al. Double knockdown of alpha1,6-fucosyltransferase (FUT8) and GDP-mannose 4,6-dehydratase (GMD) in antibody-producing cells: a new strategy for generating fully non-fucosylated therapeutic antibodies with enhanced ADCC. BMC Biotechnology. 7, 84(2007).
- Beuger, V., et al. et al. silencing of fucosyltransferase 8 in Chinese-hamster ovary cells for the production of antibodies with enhanced antibody immune effector function. Biotechnology and Applied Biochemistry. 53 (1), 31(2009).
- Templeton, N., Dean, J., Reddy, P., Young, J. D. Peak antibody production is associated with increased oxidative metabolism in an industrially relevant fed-batch CHO cell culture. Biotechnology and Bioengineering. 110 (7), 2013-2024 (2013).
- Hussain, H., et al. A comparative analysis of recombinant Fab and full-length antibody production in Chinese hamster ovary cells. Biotechnology and Bioengineering. 118 (12), 4815-4828 (2021).
- Shimoyama, H., et al. Partial silencing of fucosyltransferase 8 gene expression inhibits proliferation of Ishikawa cells, a cell line of endometrial cancer. Biochemistry and Biophysics Reports. 22, 100740(2020).
- Tummala, S., et al. Evaluation of exogenous siRNA addition as a metabolic engineering tool for modifying biopharmaceuticals. Biotechnology Progress. 29 (2), 415-424 (2013).
- Carillo, S., et al. Comparing different domains of analysis for the characterisation of N-glycans on monoclonal antibodies. Journal of Pharmaceutical Analysis. 10 (1), 23-34 (2020).
- Reusch, D., et al. Comparison of methods for the analysis of therapeutic immunoglobulin G Fc-glycosylation profiles-Part 2: Mass spectrometric methods. mAbs. 7 (4), 732-742 (2015).
- Donini, R., Haslam, S. M., Kontoravdi, C. Glycoengineering Chinese hamster ovary cells: a short history. Biochemical Society Transactions. 49 (2), 915-931 (2021).
- Szigeti, M., Chapman, J., Borza, B., Guttman, A. Quantitative assessment of mAb Fc glycosylation of CQA importance by capillary electrophoresis. ELECTROPHORESIS. 39 (18), 2340-2343 (2018).
- Ruhaak, L. R., et al. Optimized workflow for preparation of APTS-labeled N-glycans allowing high-throughput analysis of human plasma glycomes using 48-channel multiplexed CGE-LIF. Journal of Proteome Research. 9 (12), 6655-6664 (2010).
- Patenaude, A. -M., et al. N-glycosylation analysis of mouse immunoglobulin G isolated from dried blood spots. Electrophoresis. 42 (24), 2615-2618 (2021).
- Karst, D. J., et al. Modulation and modeling of monoclonal antibody N-linked glycosylation in mammalian cell perfusion reactors. Biotechnology and Bioengineering. 114 (9), 1978-1990 (2017).
- Dadouch, M., Ladner, Y., Perrin, C. Analysis of monoclonal antibodies by capillary electrophoresis: sample preparation, separation, and detection. Separations. 8 (1), 4(2021).
- Fakhr, E., Zare, F., Teimoori-Toolabi, L. Precise and efficient siRNA design: a key point in competent gene silencing. Cancer Gene Therapy. 23 (4), 73-82 (2016).
- Birmingham, A., et al. A protocol for designing siRNAs with high functionality and specificity. Nature Protocols. 2 (9), 2068-2078 (2007).
- Makrydaki, E., et al. Immobilised enzyme cascade for targeted glycosylation. , (2022).
- Bulletin_6201.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6201.pdf (2022).
- Bulletin_6376.pdf. , Available from: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_6376.pdf (2022).
- Dot Blot Analysis. , Available from: https://imagej.nih.gov/ij/docs/examples/dot-blot/index.html (2022).
- Yilmazel, B., et al. Online GESS: prediction of miRNA-like off-target effects in large-scale RNAi screen data by seed region analysis. BMC Bioinformatics. 15 (1), 192(2014).
- Kittler, R., et al. Genome-wide resources of endoribonuclease-prepared short interfering RNAs for specific loss-of-function studies. Nature Methods. 4 (4), 337-344 (2007).
- Stec, E., et al. A multiplexed siRNA screening strategy to identify genes in the PARP pathway. Journal of Biomolecular Screening. 17 (10), 1316-1328 (2012).
- Brown, J. M., et al. Ligand conjugated multimeric siRNAs enable enhanced uptake and multiplexed gene silencing. Nucleic Acid Therapeutics. 29 (5), 231-244 (2019).
- Parsons, B. D., Schindler, A., Evans, D. H., Foley, E. A direct phenotypic comparison of siRNA pools and multiple individual duplexes in a functional assay. PLoS One. 4 (12), 8471(2009).
- Martin, S. E., et al. Multiplexing siRNAs to compress RNAi-based screen size in human cells. Nucleic Acids Research. 35 (8), 57(2007).
- Popp, O., Moser, S., Zielonka, J., Rüger, P., Hansen, S., Plöttner, O. Development of a pre-glycoengineered CHO-K1 host cell line for the expression of antibodies with enhanced Fc mediated effector function. mAbs. 10 (2), 290-303 (2018).
- Yang, P. -C., Mahmood, T. Western blot: Technique, theory, and trouble shooting. North American Journal of Medical Sciences. 4 (9), 429(2012).
- Troubleshooting Western Blots with the Western Blot Doctor. Bio-Rad Laboratories. , Available from: https://www.bio-rad.com/en-uk/applications-technologies/troubleshooting-western-blots-with-western-blot-doctor?ID=MIW4HR15 (2022).
- Steentoft, C., et al. Precision mapping of the human O-GalNAc glycoproteome through SimpleCell technology. EMBO. 32 (10), 1478-1488 (2013).
- FUT8 - Alpha-(1,6)-fucosyltransferase - Proteomics. , Available from: https://www.nextprot.org/entry/NX_Q9BYC5/proteomics (2022).
- Kotidis, P., et al. Rapid antibody glycoengineering in CHO cells via RNA interference and CGE-LIF N-glycomics. Methods in Molecular Biology. 2370, 147-167 (2022).
הדפסות חוזרות והרשאות
