פרוטוקול זה מתאר הליכים לבידוד גרעינים באיכות גבוהה מאיי לבלב פרימטים קפואים שאינם אנושיים לשימוש בריצוף RNA סימולטני של גרעין יחיד וריצוף ATAC תוך שמירה על החלק הציטוסולי בתפזורת לניתוחים מטבוליים מאותן דגימות.
מאמר שיטה
הכנת איים עובריים פרימטים קפואים שאינם אנושיים לריצוף RNA משולב של גרעינים בודדים וריצוף ATAC, ומטבולומיקה בתפזורת
במאמר זה
סיכום
תקציר
אחד האתגרים במחקרים המשתמשים ברקמה שנאספה מקבוצות מרובות הוא הימנעות מהשפעות אצווה בעת הכנה לניסויים רב-אומיים בקנה מידה גדול, כגון ריצוף RNA משולב של תא בודד ומטבוליקה. השיטה במחקר הנוכחי משתמשת באיי לבלב קפואים מפרימטים עובריים לא אנושיים שנאספו במשך שנתיים לקלט לריצוף RNA של גרעין יחיד ולמבחני ריצוף ATAC. החלק הציטוסולי שנוצר במהלך ההפקה הגרעינית נשמר עבור ספקטרומטריית מסה אלקטרופורזה נימית במורד הזרם וכימות מטבוליטים לאחר מכן. שיטה זו מאפשרת ניתוח בתפזורת של מטבוליטים התורמים לנופים הטרנסקריפטומיים והאפיגנומיים המשתנים בתנאי ניסוי. הוא ישים לסוגי רקמות רבים וממקסם את כמות המידע שניתן לחלץ מדגימות שאינן זמינות. ככל שתרומת חילוף החומרים להקמת זהות תאית באמצעות שינויים אפיגנטיים הופכת מוערכת יותר, טכניקות המאפשרות לזהות את תרומתם של מטבוליטים בסוגי תאים ספציפיים הן בזמן והכרחי.
מבוא
איי הלבלב של לנגרהנס הם קריטיים לניהול סבילות לגלוקוז לאורך כל החיים. כישלון לכוונן כראוי את רמות הגלוקוז בדם באמצעות הורמון להורדת גלוקוז, אינסולין, או הורמון העלאת גלוקוז, גלוקגון גורם סוכרת1. גורמי סיכון הניתנים לשינוי כדי למזער את הסיכון לסוכרת כוללים פעילות גופנית ודיאטה. בנוסף, מתברר כי לתזונה אימהית במהלך ההריון יש השפעה גם על רגישות הצאצאים לסוכרת בבגרות 2,3. לפיכך, יש צורך בשיטות לנתח את ההשפעות של תזונה אימהית וחשיפות אחרות, כגון תרופות המשמשות במהלך ההריון, על תאי בטא מייצרי אינסולין באורגניזמים מודל במהלך ההתפתחות. לדוגמה, ניתן להעריך איים מצאצאים של פרימטים עובריים שאינם אנושיים (NHP) עבור ההשפעות של חשיפות התפתחותיות. בדומה לבני אדם, NHPs בדרך כלל עוברים לידות סינגלטון ונבדלים זה מזה בתגובה הפיזיולוגית שלהם לתזונה בסגנון מערבי4. בעוד שההיריון וההתפתחות העוברית של NHPs חולקים קווי דמיון רבים עם בני אדם, מה שהופך אותם למין רלוונטי ביותר למחקרי תכנות מטבוליים, אתגרים בביצוע בדיקות ביואינפורמטיות השוואתיות על צאצאי NHP כוללים עונת הזדווגות מוגבלת ואיסוף דגימות לסירוגין. לכן, גישות המאפשרות אחסון לטווח ארוך לפני עיבוד וניתוח הדגימה הן אידיאליות. פרוטוקול זה מתאר את הכנת הדגימות לריצוף RNA של גרעין יחיד, ריצוף ATAC ומטבוליקה ציטופלזמית בתפזורת.
מחקרים שנערכו על ידי אחרים בתחום הביולוגיה של האיונים הדגימו חפיפה בחתימות הגנטיות שנצפו בדגימות שהוכנו באמצעות ריצוף RNA חד-תאי וריצוף RNA של גרעין יחיד 5,6. שתי השיטות מאפשרות זיהוי של תעתיקים התורמים להבחנה בין סוגי תאים שונים באוכלוסיית האיונים. באמצעות שימוש בדטרגנטים עדינים על רקמות קפואות פלאש, ניתן להשתמש בו זמנית בגרעינים שלמים לריצוף ATAC, המאפשר קביעת אזורי כרומטין נגישים. שילוב ריצוף RNA של גרעין יחיד עם ריצוף ATAC מאפשר אפיון טוב יותר של רשתות בקרת גנים7.
הכנת דגימות למטבולומיקה הוגבלה באופן מסורתי על ידי הצורך בקלט נפח מדגם גבוה עבור כרומטוגרפיה נוזלית. בנוסף, יש לתת את הדעת בזהירות על המאגרים המשמשים במהלך הכנת הדגימה כדי למנוע שיאי NMR שגויים בנתונים ספקטרומטריים מסה. בהתחשב במספר הנמוך של דגימות מאתגרות ויקרות לרכוש במחקרי פרימטים, הקצאת איים מצאצאים שונים לניסויים טרנסקריפטומיים לעומת מטבוליים יכולה להיות קשה. לפיכך, פרוטוקול זה עושה שימוש במקטע הציטוסולי המושלך בדרך כלל שנוצר במהלך שבירה תאית לניסויים בגרעין יחיד. שיטה זו מאפשרת אפיון סימולטני של תעתיקים ואזורי כרומטין פתוחים המגדירים תת-קבוצות תאיות באיים עובריים, תוך מדידה כמותית של המטבוליטים המיוצרים בתוך איים (איור 1). פרוטוקול זה מעובד מפרוטוקול מוכח שפורסם על ידי 10x genomics לבידוד גרעינים מרקמת מוח עכבר עוברית קפואה במהירות הבזק (גרסה CG000366 Rev D8)7.
פרוטוקול
שאיבת האיים בוצעה בהתאם להנחיות הוועדה המוסדית לטיפול ושימוש בבעלי חיים (IACUC) של המרכז הלאומי לחקר פרימטים באורגון (ONPRC) ואוניברסיטת אורגון לבריאות ומדע ואושרה על ידי ONPRC IACUC. ONPRC מצייתת לחוק רווחת בעלי החיים ולתקנות הנאכפות על ידי משרד החקלאות של ארצות הברית (USDA) ולמדיניות שירותי בריאות הציבור בנושא טיפול אנושי ושימוש במעבדה. הפרוטוקול כאן הוחל על איים מקופי מקוק רזוס עובריים שנקרופסי ביום ההריון 145 (הריון רזוס מקוק הוא בדרך כלל 173-175 ימים). פרטי הריאגנטים והציוד ששימש למחקר זה מפורטים בטבלת החומרים.
1. בידוד האי
- מוציאים את הלבלב העוברי מהרקמות הסובבות אותו9 ומניחים אותו במי מלח חוצצים פוספט קר כקרח.
- הסר את הלבלב מ- PBS וניפח אותו עם collagenase P (0.6 מ"ג / מ"ל) באמצעות קנולציה של צינור הלבלב באמצעות מזרק צינורית מוח מכרסם 33 גרם.
- מחלקים את הלבלב לשישה חלקים בעזרת מספריים כירורגיים סטריליים ומעכלים במשך 27-30 דקות ב-37°C בתמיסת collagenase.
- הכן מדיה RT על ידי שילוב 10% FBS ו 100 U/mL פניצילין/סטרפטומיצין לתוך RPMI 1640.
- יוצקים את collagenase ולהוסיף 10 מ"ל של מדיה RT.
- נערו בעדינות במשך דקה אחת כדי לשבש את רקמת החיבור שנותרה.
- יש להסיר חומר לא מעוכל על-ידי מאמץ דרך מסנן של 500 מיקרומטר.
- לשטוף את האיים פעמיים עם 50 מ"ל של מדיה RT.
- לדגור על האיים ב- DNase I של בקר (0.8 U / mL) באמבט מים של 37 מעלות צלזיוס למשך 10 דקות.
- תרבית את האיים לילה במדיה RT עם DNase בקר I (0.4 U / mL) ב 37 ° C עם 5% CO2.
- אוניית איים באריזה מיוחדת בטמפרטורת הסביבה עם חבילות ג'ל לבקרת טמפרטורה.
2. בנקאות לדוגמה לאחסון לטווח ארוך
- להעריך איים עבור גודל באמצעות reticle בקנה מידה ולציין את מידת acinar ורקמה ductal בהכנה.
- קטיף ידני של איים עם פיפטה אוטומטית לתוך צלחת 60 מ"מ המכילה 5 מ"ל של 2.8 mM גלוקוז DMEM.
הערה: חובה למזער את כמות הרקמה האצינארית והרקמה הצינורית שתיאגר בהכנת האיון הסופי. פרטים על איים אידיאליים לשימוש מדווחים בפרוטוקול קודם9. - בחר איים לתוך צינור 1.5 מ"ל וסחרור ב~ 300 x גרם במשך 5 דקות ב 4 ° C.
- השהה מחדש את האיים ב- PBS 1x ללא סידן ומגנזיום.
- סחרור במשך 5 דקות ב~ 300 x גרם ב- 4 ° C. השליכו את הסופרנטנט.
- חזור על שלבים 2.3-2.5 פעמיים נוספות.
- הבזק להקפיא את האיים בצינור 1.5 מ"ל עבור 10 s בחנקן נוזלי.
- יש לאחסן את הגלולה בטמפרטורה של -80°C עד ליום הבידוד הגרעיני.
3. שבר תאי לבידוד גרעינים ושבר ציטופלזמי
- הכנת מאגרים למיצוי גרעינים (טבלה 1).
- ודא כי הספסל, פיפטות וריאגנטים הם ללא RNase.
- הכינו את השטיפה, הליזה המרוכזת, דילול הליזיס ומאגרי הגרעינים המדוללים לפי טבלה 1.
- הכן חיץ ליזה 0.1x בצינור 5 מ"ל באמצעות מאגר דילול הליזה כדי לדלל את מאגר הליזה המרוכז.
- הומוגניזציה של רקמות
- הוציאו את הדגימות מהמקפיא בטמפרטורה של -80°C והניחו אותן מיד על קרח.
- מוסיפים 500 μL של חיץ ליזיס 0.1x לכדורי הרקמה ודגורים במשך 3 דקות על קרח.
- באמצעות מזיק גלולה חד פעמי ללא RNase, הומוגני בעדינות את הרקמה 15 פעמים על קרח.
- לדגור את הדגימות על קרח במשך 10 דקות.
- מוסיפים 500 μL של חיץ כביסה להומוגנט ופיפטה עדינה על קרח.
- צרו מסנן קדם-הפרדה של 30 מיקרומטר על ידי הוספת 300 מ"ל של חיץ שטיפה למסנן מעל צינור של 5 מ"ל.
- סנן את ההומוגנט התאי של 1 מ"ל באמצעות מסנן קדם-הפרדה של 30 מיקרומטר לתוך הצינור של 5 מ"ל.
- סובב את ההומוגנט המסונן ב 500 x גרם במשך 5 דקות בצנטריפוגת דלי מתנדנד ב 4 ° C.
- איסוף ואחסון סופרנטנט למטבולומיקה
- הסר 1 מ"ל של supernatant משלב 3.2.8 עם פיפטה ולהוסיף 1.5 מ"ל cryovial על קרח.
- מיד להקפיא את supernatant ב -80 מעלות צלזיוס. סופרנאטנט זה ישמש למטבולומיקה.
- הכנת גרעינים לריצוף RNA ו-ATAC של גרעין בודד
- השהה מחדש בעדינות את גלולת הגרעינים על ידי הוספת 1 מ"ל של חיץ כביסה לטיפה של הכדור. פיפטה לאט 5 פעמים.
- סובבו את הגלולה שטופה ב 1000 x גרם במשך 5 דקות בצנטריפוגת דלי מתנדנדת ב 4 °C.
- חזור על שלבים 3.4.1 ו- 3.4.2 פעם נוספת.
- לאחר השטיפה הסופית, השהה מחדש את הגרעינים ב 1 מ"ל של חיץ שטיפה. שמור על הכנה גרעינית על קרח.
- יש לשאוף 10 μL של תרחיף גרעינים עם פיפטה ולערבב עם 10 μL של 0.4% Trypan blue על ידי פיפטינג עדין.
- הוסף 10 μL של גרעיני הגרעינים ותערובת כחול טריפאן לשקופית מונה תאים אוטומטית עם פיפטה ומניחים אותו במכשיר.
- קביעת ריכוז גרעינים בגרעינים/μL.
הערה: בניגוד להכנות תאיות לריצוף רנ"א חד-תאי, מוני תאים אוטומטיים יזהו גרעינים כתאים מתים. לא יותר מ 95% של הכנה זו צריך להיות חי על מוני תאים אוטומטיים. אם יותר מ -5% מהאוכלוסייה הגרעינית חיה, ניתן לסנן את תרחיף הגרעינים זמן נוסף דרך מסנן קדם-הפרדה של 30 מיקרומטר ולסובב במשך 5 דקות ב 1000 x גרם ב 4 ° C. לאחר מכן ניתן לחשב מחדש את ריכוז הגרעינים כמתואר בשלב 3.4.6. - בהתבסס על התאוששות הגרעינים הממוקדת הרצויה, יש להשעות מחדש את הגרעינים לריכוז הדרוש באמצעות מאגר גרעינים 1x ולהמשיך להכנת ספריית RNA וריצוף ATAC של גרעין יחיד10.
4. הכנת מקטע ציטוסולי לאלקטרופורזה נימית- ספקטרומטריית מסה (CE-MS)
- שלב 80 μL של מקטע ציטוסולי שנאסף בשלב 3.3.1 עם 20 μL של מים ננו-טהורים המכילים תקנים מופנמים.
- המשך עם CE-MS וניתוח כפי שתואר קודם לכן 11,12,13.
תוצאות
איכות תפוקות הריצוף תלויה מאוד באיכות הקלט הגרעיני. פיצוץ גרעיני ופגיעה בקרום הגרעין החיצוני יגרמו לזיהום RNA ו-DNA סביבתי בניתוח, מה שיכניס רעש לנתונים. לתמצית גרעינית טהורה תהיה עדות מינימלית לגרעינים עטופים ברכיבים ציטופלזמיים (איור 2A) או לעיכול יתר, כפי שמעידים גרעינים מתפוצצים (איור 2B). קלט גרעיני אידיאלי יכיל גרעינים שלמים (איור 2C).
פרטים על ניתוח נתוני ריצוף RNA ו-ATAC של גרעין יחיד ניתנים בהרחבה במקומות אחרים 5,14. אשכולות מייצגים של אוכלוסיות תאים מהכנה גרעינית עוברית מסוג NHP מודגמים באמצעות UMAP באיור 3A. נתוני מטבולומיקה מנותחים בקלות באמצעות תוכנת קוד פתוח, כפי שתואר קודם לכן15. ניתן להמחיש ספקטרום שנוצר, וניתן להשוות מטבוליטים מועשרים באיים של עובר מסכר הניזון מ-WSD לאלה שמקורם בסכר הניזון מ-CD (איור 3B-F).
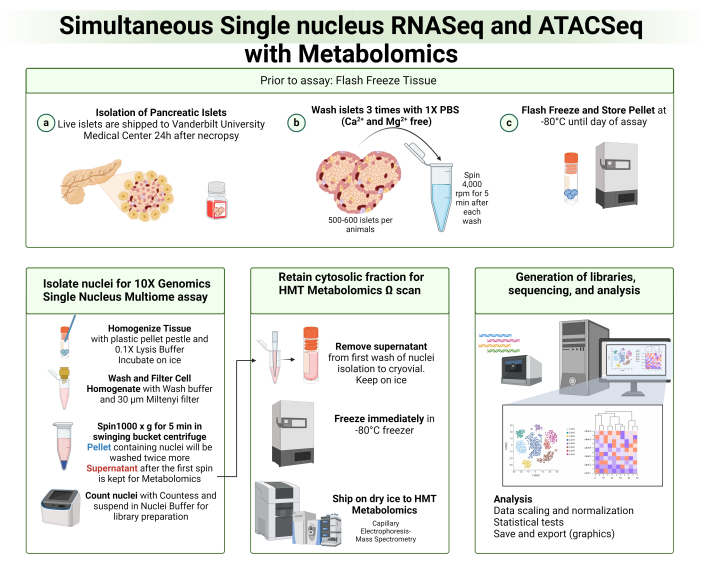
איור 1: סקירה כללית של פרוטוקול בידוד גרעינים ושבר ציטוסולי. איי לבלב עובריים נשמרו ואוחסנו ב -80 מעלות צלזיוס עד יום הבדיקה. גרעינים בודדו ונוצלו לריצוף RNA ו-ATAC של גרעין יחיד. החלק הציטוסולי לאחר השטיפה הראשונה של בידוד גרעינים נשמר עבור ספקטרומטריית אלקטרופורזה-מסה נימית. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
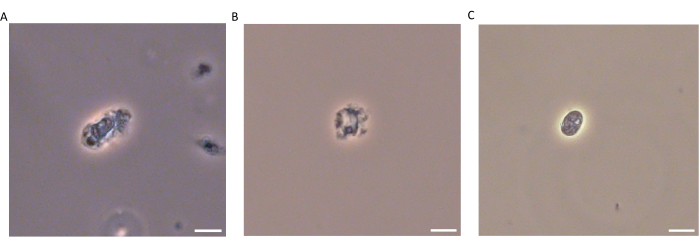
איור 2: הדגמה של קלט גרעינים תקין בבדיקת מולטיומיקה של גרעין יחיד. דוגמאות ל-(A) גרעין עטוף בציטופלסמה, (B) גרעין מתפרץ עם קרום גרעיני פגוע, ו-(C) גרעין שלם עם מורפולוגיה מעוגלת. פסי קנה מידה: 10 מיקרומטר. לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
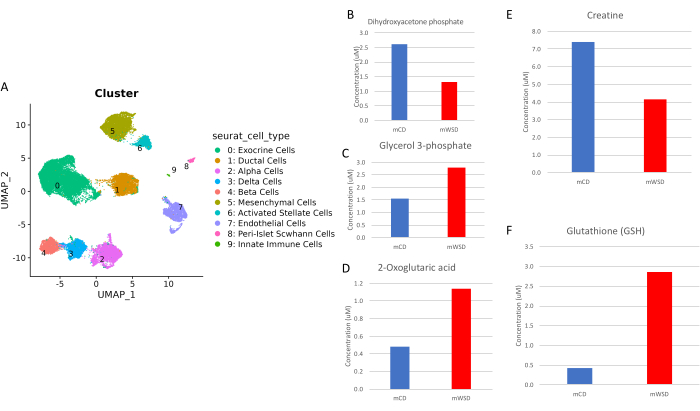
איור 3: נתונים מייצגים ממולטיומיקה משולבת של גרעין יחיד ומטבולומיקה בתפזורת. (א) אשכולות UMAP של תת-סוגים תאיים בתוך איי NHP עובריים מבודדים בהתבסס על ביטוי גנים. הערכה כמותית של המטבוליטים הגליקוליטיים, (B) פוספט דיהידרוקסיאצטון ו-(C) גליצרול-3-פוספט בחלק הציטוסולי מאיי NHP עובריים מבודדים כאשר הסכר הוזן ב-WSD (mWSD) או בתקליטור (mCD). תזונה אימהית עשויה גם לווסת באופן דיפרנציאלי את חילוף החומרים באמצעות (D) מחזור חומצת לימון (2-oxoglutarate), (E) מטבוליזם של חומצות אמינו (קריאטין), ועל ידי שינוי (F) מצב חמצון-חיזור תאי (גלוטתיון) באיים עובריים. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
טבלה 1: נוסחאות חיץ לבידוד גרעינים. מוצגים רכיבים מפורטים של גרעינים, ליזיס, דילול ליזיס ומאגרי שטיפה. במידת הצורך, יש לדלל ריאגנטים לריכוז המלאי לפני הכנת החיץ. אנא לחץ כאן כדי להוריד טבלה זו.
דיון
מבחינה היסטורית, שיטות הבידוד הגרעיני עבור ריצוף RNA ו-ATAC של גרעין יחיד השתמשו במאגרים המכילים דטרגנטים שאינם תואמים לספקטרומטריית מסות כרומטוגרפיה נוזלית (LC-MS), טכניקה נפוצה המשמשת לכימות מטבוליטים16,17. הפרוטוקול הנוכחי מאפשר שילוב של טכניקות שעתוק ומטבוליזם מאותה הכנת דגימה על ידי שימוש בדטרגנט עדין לשבירה תאית, ולאחר שבר זה עם אלקטרופורזה נימית, טכניקה הדורשת קלט דגימה קטן יותר ביחס לכרומטוגרפיה נוזלית להפרדת מטבוליטים18.
ההיבט הקריטי ביותר של פרוטוקול זה הוא שימור קרום הגרעין במהלך בידוד גרעיני כדי למנוע התפרקות של חומר גנטי ולהפחית זיהום על ידי נוקלאוטידים ומקרומולקולות סביבתיות. ניתן לווסת את זמני החשיפה לדוגמה לחיץ ליזה כדי למנוע עיכול יתר של רקמות ונזק לגרעינים. בנוסף, הקפאה מהירה של האיים במהלך בנק הדגימות והסופרנאטנט המכיל את החלק הציטוסולי היא הכרחית כדי למנוע התפרקות של חומר גנטי ומטבוליטים. יש לאסוף את כל הדגימות מאותה פורמולציית מדיה (2.8 מילימטר גלוקוז DMEM במחקר זה) כדי למנוע את ההשפעה המבלבלת של שינוי חילוף החומרים עקב זמינות החומרים המזינים במדיה התרבותית.
מגבלה של גישה מטבולית משולבת זו היא שחלק מהמטבוליטים עשויים שלא להילכד בגלל חומר הניקוי המשמש לבידוד גרעינים. לכן, לניתוח מטבוליטים מלא יותר, ניתן להשלים גישה זו עם ניתוחים מרקמות קפואות ובידוד מטבוליטים באמצעות מאגרי שטיפה לא אורגניים ו- LC-MS. גישה משלימה מומלצת היא מטבולומיקה מרחבית ממוקדת באמצעות MALDI-MS כדי למקם שינויים מטבוליים בתוך איברים19. בנוסף, הטכנולוגיות הנוכחיות להערכת השתנות התעתיק ונגישות הכרומטין באותו גרעין מוגבלות בשל עומק ריצוף רדוד לריצוף ATAC. בניתוחי נתונים, החוקרים יוכלו להעריך רק אזורי כרומטין פתוחים בתוך צבירי תאים רחבים ולא תת-אשכולות ספציפיים בתוך מערך הנתונים.
ככל שהשימוש ברקמות שאינן זמינות, במיוחד אלה של בני אדם ופרימטים שאינם אנושיים, הופך תכוף יותר, זה הכרחי למקסם את כמות המידע שניתן לחלץ משכפל ביולוגי. הגישה הרב-אומית שתוארה לעיל מאפשרת לחוקרים לקשר בין חתימות גנטיות לזמינות שיא סביב מניעים מרכזיים של זהות תאית, תוך התחשבות באופן שבו חילוף החומרים התאי עשוי היה לתרום לשינויים כאלה. זיהוי המטבוליטים הנפוצים יותר בתכשירים התאיים ייתן רמזים לשינויים אפיגנטיים ספציפיים שיניעו את האפיון של תת-סוגים תאיים לשושלת מסוימת. ואכן, נקבעו פרוטוקולים חדשים לשילוב ממצאי ניסויים שעתוק ומטבולי, אם כי ממקורות רקמה שונים20. המשמעות של פרוטוקול זה היא שניתן להעריך את נגישות הכרומטין, שינויי שעתוק והעשרת מטבוליטים מתוך קלט דגימה יחיד. יישומים עתידיים של טכניקה זו יאפשרו אפיון טוב יותר של מצבי מחלה ברקמות הנרכשות מאוכלוסיות מדגם דלילות, כגון רקמות מחולים במחלות נדירות. בתחום הביולוגיה של האיונים, אפיון רשתות הבקרה של גנים והחתימות המטבוליות המתואמות יכול לספק תובנה קריטית לגבי מנגנונים של שימור הזהות והתפקוד של תאי בטא כדי למנוע את הופעת הסוכרת.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
המחברים רוצים להודות לכל הצוות באוניברסיטת אורגון למדעי הבריאות על הטיפול במושבת הפרימטים הלא אנושית ועל רכישת רקמות. בנוסף, Vanderbilt Technologies for Advanced Genomics סיפקה מומחיות טכנית וייעוץ בתכנון ניסויים. DTC נתמך על ידי מלגת קדם-דוקטורט F31 מה-NIH/NIDK (1F31DK135164). PK נתמך על ידי NIH/NIDDK (1R01DK128187). MG נתמכה על ידי פרס VA Merit (I01 BX005399), NIH/NIDDK (1R01DK135032, 1R01DK128187) וה- JDRF (2-SRA-2024-1455-S-B). העבודה במרכז הלאומי לחקר פרימטים באורגון (ONPRC) נתמכה על ידי P51OD011092 לתמיכה תפעולית של המרכז.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרק צינורית מוח עכברוש 33 גרם | Protech International | 8IC315IS5SPC | עבור קנולציה של צינורות וניפוח לבלב |
| פניצילין/סטרפטומיצין | פישר | 15-140-122 | עבור מדיה |
| RT FBS | Millipore/Sigma | F4135-500ML | עבור מדיה |
| RT RPMI 1640 | תרמו פישר מדעי | 11-875-135 | עבור מדיה RT |
| קולגנאז P | סיגמא אולדריץ' | 11213865001 | לעיכול לבלב |
| בקר Dnase I | Sigma Aldrich | 11284932001 | למדיה RT ובידוד |
| דקסטרוז | פישר | D16-1 | הריכוז הסופי יהיה 2.8 מ"מ |
| סידן כלוריד | פישר | C4901-500G | הריכוז הסופי יהיה 0.5 מ"מ |
| HEPES | Gibco | 15630-080 | סופי הריכוז יהיה 10 מ"מ |
| סרום בקר אלבומין (BSA) Fraction 5 | Research Products International | A30075100 | הריכוז הסופי יהיה 0.5 מ"ג/מ"ל |
| Dulbecco's Modified Eagle Medium | Gibco | 11966025 | לקטיף ידני של איים |
| 20x Nuclei Buffer | 10X Genomics | 2000153/2000207 | |
| Digitonin (5%) | Thermo Fisher Scientific | BN2006 | ייתכן שיהיה צורך לחמם את הדיגיטונין ל-65 מעלות; C להמסת משקעים לבנים |
| MACS SmartStrainers (30 ומיקרו; M) | Miltenyi Biotec | 130-098-458 | |
| MACS BSA תמיסת מלאי (10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | הכן מלאי של 10% באמצעות |
| תמיסת טריזמה הידרוכלוריד מי MilliQ, pH 7.5 | Sigma Aldrich | T2319-1L | |
| תמיסת נתרן כלוריד, 5 M | Sigma Aldrich | S6546-1L | |
| תמיסת מגנזיום כלוריד, 1 M | סיגמא אולדריץ' | M1028-100 מ"ל | |
| מעכב סיגמא מגן רנאז | סיגמא אולדריץ' | 3335402001 | |
| DTT | Research Products International | D11000-5.0 | |
| עלי גלולה חד פעמיים ללא רנז | פישר סיינטיפיק | 12-141-368 | |
| טווין 20 | פישר ביוריאגנטים | BP337-500 | הכן מלאי של 20% באמצעות |
| מים ללא נוקלאז | MilliQ Promega | PR-P1193 | |
| DNA LoBind (5 מ"ל) | Eppendorf | 30108310 | |
| Cryovials (1.5 מ"ל) | VWR | 20170-225 | |
| Posi-Click Tubes (0.6 מ"ל) | דנוויל | C-2177 | |
| טריפאן כחול (0.4%) | Thermo Fisher Scientific | T-10282 | |
| שקופיות ספירת תאים כפולות | Bio-Rad | 1450011 | |
| MiiliQ מערכת מים אולטרה-טהורים | Millipore/Sigma | 7003/05/10/15 | |
| מסנן חיתוך 5 kDa | HMT Metabolome Technologies | ||
| תקנים פנימיים | HMT Metabolome Technologies | ||
| P10, P20, P200 ו-P1000 פיפטות | Eppendorf | 2231000602 | |
| קצות פיפטות, 10 ומיקרו; L | VWR | 76322-528 | |
| קצות פיפטה, 1000 ומיקרו; L | תרמו פישר סיינטיפיק | 21-236-2A | |
| טיפים לפיפטה, 20 ומיקרו; L | Genesee Scientific | 23-404 | |
| טיפים לפיפטה, 200 ומיקרו; L | ארה"ב מדעי | 1120-8810 | |
| מיקרוסקופ ניגודיות פאזה | אולימפוס | BX41-PH-B | |
| רוזנת II מונה תאים אוטומטי | תרמו פישר AMQAX1000 | ||
| מדעי DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R | בקמן-קולטר | B06315 | |
| RNase-ZAP | סיגמא אולדריץ' | R2020 |
מקורות
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
הדפסות חוזרות והרשאות
