Questo protocollo descrive le procedure per isolare nuclei di alta qualità da isole pancreatiche congelate di primati non umani per l'uso nel sequenziamento simultaneo di RNA a singolo nucleo e nel sequenziamento ATAC, preservando la frazione citosolica di massa per le analisi metabolomiche dagli stessi campioni.
Articolo metodologico
Preparazione di isole fetali di primati non umani congelate per il sequenziamento combinato di RNA a nuclei singoli e il sequenziamento ATAC e la metabolomica di massa
In questo articolo
Sommario
Abstract
Una sfida negli studi che utilizzano tessuti raccolti da più coorti è evitare gli effetti batch quando ci si prepara per esperimenti multi-omici su larga scala, come il sequenziamento combinato dell'RNA a singola cellula e la metabolomica. Il metodo del presente studio utilizza isole pancreatiche congelate da primati fetali non umani raccolti nell'arco di due anni per l'input nel sequenziamento dell'RNA a nucleo singolo e nei saggi di sequenziamento ATAC. La frazione citosolica generata durante l'estrazione nucleare è stata conservata per l'elettroforesi capillare a valle-spettrometria di massa e la successiva quantificazione dei metaboliti. Questo metodo consente l'analisi di massa dei metaboliti che contribuiscono al cambiamento dei paesaggi trascrittomici ed epigenomici in condizioni sperimentali. È applicabile a molti tipi di tessuto e massimizza la quantità di informazioni che possono essere estratte da campioni che non sono prontamente disponibili. Man mano che il contributo del metabolismo alla creazione dell'identità cellulare attraverso modifiche epigenetiche diventa più apprezzato, le tecniche che consentono di identificare il contributo dei metaboliti in specifici tipi di cellule sono tempestive e necessarie.
Introduzione
Le isole pancreatiche di Langerhans sono fondamentali per la gestione della tolleranza al glucosio per tutta la durata della vita. L'incapacità di regolare correttamente i livelli di glucosio nel sangue tramite l'ormone ipoglicemizzante, l'insulina o l'ormone che aumenta il glucosio, il glucagone, provoca il diabete mellito1. I fattori di rischio modificabili per ridurre al minimo il rischio di diabete includono l'esercizio fisico e la dieta. Inoltre, sta diventando chiaro che la dieta materna durante la gravidanza ha anche un effetto sulla suscettibilità della prole al diabete in età adulta 2,3. Pertanto, sono necessari metodi per analizzare gli effetti della dieta materna e di altre esposizioni, come i farmaci usati durante la gravidanza, sulle cellule beta produttrici di insulina negli organismi modello durante lo sviluppo. Ad esempio, le isole della prole fetale di primati non umani (NHP) possono essere valutate per gli effetti delle esposizioni allo sviluppo. Analogamente agli esseri umani, gli NHP hanno tipicamente nascite singole e variano nella loro risposta fisiologica all'alimentazione dietetica in stile occidentale4. Sebbene la gestazione e lo sviluppo fetale delle NHP condividano molte somiglianze con gli esseri umani, rendendoli una specie altamente rilevante per gli studi di programmazione metabolica, le sfide per l'esecuzione di saggi bioinformatici comparativi sulla prole NHP includono una stagione degli amori limitata e la raccolta intermittente dei campioni. Pertanto, gli approcci che consentono la conservazione a lungo termine prima dell'elaborazione e dell'analisi dei campioni sono ideali. Questo protocollo descrive la preparazione di campioni per il sequenziamento dell'RNA a nucleo singolo, il sequenziamento ATAC e la metabolomica citoplasmatica di massa.
Studi condotti da altri nel campo della biologia delle isole hanno dimostrato una sovrapposizione nelle firme genetiche osservate in campioni preparati tramite sequenziamento dell'RNA a singola cellula e sequenziamento dell'RNA a singolo nucleo 5,6. Entrambi i metodi consentono l'identificazione di trascritti che contribuiscono a distinguere le caratteristiche tra i vari tipi di cellule all'interno della popolazione delle isole. Attraverso l'uso di detergenti delicati su tessuti congelati all'istante, i nuclei intatti possono essere utilizzati contemporaneamente per il sequenziamento ATAC, che consente la determinazione delle regioni della cromatina accessibili. La combinazione del sequenziamento dell'RNA a nucleo singolo con il sequenziamento ATAC consente una migliore caratterizzazione delle reti di regolazione genica7.
La preparazione dei campioni per la metabolomica è stata tradizionalmente limitata dalla necessità di un elevato volume di campione in ingresso per la cromatografia liquida. Inoltre, è necessario prestare particolare attenzione ai tamponi utilizzati durante la preparazione del campione per evitare falsi picchi di NMR nei dati della spettrometria di massa. Dato il basso numero di campioni che sono difficili e costosi da acquisire negli studi sui primati, l'assegnazione di isole da diversi discendenti verso esperimenti trascrittomici rispetto a quelli metabolomici può essere difficile. Pertanto, questo protocollo utilizza la frazione citosolica normalmente scartata generata durante il frazionamento cellulare per esperimenti a singolo nucleo. Questo metodo consente la caratterizzazione simultanea dei trascritti e delle regioni aperte della cromatina che definiscono i sottoinsiemi cellulari nelle isole fetali, misurando quantitativamente i metaboliti prodotti all'interno delle isole (Figura 1). Questo protocollo è adattato da un protocollo dimostrato pubblicato da 10x genomics per l'isolamento di nuclei da tessuto cerebrale embrionale di topo congelato in un lampo (versione CG000366 Rev D8)7.
Protocollo
Il prelievo delle isole è stato condotto in conformità con le linee guida dell'Institutional Animal Care and Use Committee (IACUC) dell'Oregon National Primate Research Center (ONPRC) e dell'Oregon Health and Science University ed è stato approvato dall'ONPRC IACUC. L'ONPRC rispetta l'Animal Welfare Act e i regolamenti applicati dal Dipartimento dell'Agricoltura degli Stati Uniti (USDA) e la politica del servizio sanitario pubblico sulla cura umana e l'uso del laboratorio. Il protocollo qui contenuto è stato applicato alle isole di macachi fetali Rhesus che sono stati sottoposti a necroscopia il giorno gestazionale 145 (la gestazione del macaco Rhesus è tipicamente di 173-175 giorni). I dettagli dei reagenti e delle attrezzature utilizzate per questo studio sono elencati nella Tabella dei Materiali.
1. Isolamento delle isole
- Asportare il pancreato fetale dai tessuti circostanti9 e metterlo in soluzione salina ghiacciata tamponata con fosfato.
- Rimuovere il pancreas dalla PBS e gonfiarlo con collagenasi P (0,6 mg/mL) tramite incannulamento del dotto pancreatico utilizzando un iniettore di cannula cerebrale per roditori da 33 G.
- Dividere il pancreas in sei sezioni con forbici chirurgiche sterili e digerire per 27-30 minuti a 37 °C in soluzione di collagenasi.
- Preparare i terreni RT combinando il 10% di FBS e 100 U/mL di penicillina/streptomicina in RPMI 1640.
- Versare la collagenasi e aggiungere 10 ml di terreno RT.
- Agitare delicatamente per 1 minuto per interrompere il tessuto connettivo rimanente.
- Rimuovere il materiale non digerito filtrandolo con un filtro da 500 μm.
- Lavare le isole due volte con 50 ml di terreno RT.
- Incubare le isole in DNasi I bovina (0,8 U/mL) in un bagno d'acqua a 37 °C per 10 minuti.
- Coltura delle isole per una notte in terreno RT con DNasi I bovina (0,4 U/mL) a 37 °C con CO2 al 5%.
- Spedisci le isole in imballaggi specializzati a temperatura ambiente con confezioni di gel per il controllo della temperatura.
2. Sample banking per l'archiviazione a lungo termine
- Valutare le dimensioni delle isole utilizzando un reticolo scalato e annotare il grado di tessuto acinaro e duttale in preparazione.
- Prelievo manuale delle isole con una pipetta automatica in una piastra da 60 mm contenente 5 mL di DMEM di glucosio da 2,8 mM.
NOTA: È imperativo ridurre al minimo la quantità di tessuto acinare e tessuto duttale che verrà immagazzinato nella preparazione finale delle isole. I dettagli delle isole ideali per l'uso sono riportati in un precedente protocollo9. - Raccogliere le isole in una provetta da 1,5 ml e centrifugare a ~300 x g per 5 minuti a 4 °C.
- Risospendere le isole in 1x PBS privo di calcio e magnesio.
- Centrifugare per 5 minuti a ~300 x g a 4 °C. Scartare il surnatante.
- Ripetere i passaggi 2.3-2.5 altre due volte.
- Congelare le isole in una provetta da 1,5 mL per 10 s in azoto liquido.
- Conservare il pellet a -80 °C fino al giorno dell'isolamento nucleare.
3. Frazionamento cellulare per l'isolamento di nuclei e frazione citoplasmatica
- Preparazione di tamponi per l'estrazione dei nuclei (Tabella 1).
- Assicurarsi che il banco, le pipette e i reagenti siano privi di RNasi.
- Preparare il lavaggio, la lisi concentrata, la diluizione della lisi e i tamponi nuclei diluiti secondo la Tabella 1.
- Preparare il tampone di lisi 0,1x in una provetta da 5 mL utilizzando il tampone di diluizione della lisi per diluire il tampone di lisi concentrato.
- Omogeneizzazione tissutale
- Togliere i campioni dal congelatore a -80 °C e metterli immediatamente sul ghiaccio.
- Aggiungere 500 μl di tampone di lisi 0,1x ai pellet di tessuto e incubare per 3 minuti con ghiaccio.
- Utilizzando un pestello a pellet monouso senza RNasi, omogeneizzare delicatamente il tessuto 15 volte sul ghiaccio.
- Incubare i campioni su ghiaccio per 10 minuti.
- Aggiungere 500 μl di tampone di lavaggio all'omogeneizzato e pipettare delicatamente con ghiaccio.
- Adescare un filtro di pre-separazione da 30 μm aggiungendo 300 mL di tampone di lavaggio al filtro su una provetta da 5 mL.
- Filtrare l'omogeneizzato cellulare da 1 mL utilizzando il filtro di pre-separazione da 30 μM nella provetta da 5 mL.
- Centrifugare l'omogeneizzato filtrato a 500 x g per 5 minuti in una centrifuga a secchiello oscillante a 4 °C.
- Raccolta e conservazione del surnatante per la metabolomica
- Rimuovere 1 mL di surnatante dal passaggio 3.2.8 con una pipetta e aggiungere a 1,5 mL di crioviale su ghiaccio.
- Congelare immediatamente il surnatante a -80 °C. Questo surnatante sarà utilizzato per la metabolomica.
- Preparazione di nuclei per il sequenziamento di RNA e ATAC a nucleo singolo
- Risospendere delicatamente il pellet di nuclei aggiungendo 1 mL di tampone di lavaggio al pellet goccia a goccia. Pipettare lentamente 5 volte.
- Centrifugare il pellet lavato a 1000 x g per 5 minuti in una centrifuga a secchio oscillante a 4 °C.
- Ripetere ancora una volta i passaggi 3.4.1 e 3.4.2.
- Dopo il lavaggio finale, risospendere i nuclei in 1 mL di tampone di lavaggio. Mantenere la preparazione nucleare sul ghiaccio.
- Aspirare 10 μl di sospensione di nuclei con una pipetta e miscelare con 10 μl di blu di tripano allo 0,4% pipettando delicatamente.
- Aggiungere 10 μl di nuclei e la miscela di blu di tripano a un vetrino contatore di cellule automatizzato con una pipetta e inserirlo nello strumento.
- Determinare la concentrazione di nuclei in nuclei/μL.
NOTA: A differenza delle preparazioni cellulari per il sequenziamento dell'RNA a singola cellula, i contatori cellulari automatizzati rileveranno i nuclei come cellule morte. Non più del 95% di questa preparazione deve essere attiva su contatori di cellule automatizzati. Se più del 5% della popolazione nucleare è in tensione, la sospensione dei nuclei può essere filtrata per un tempo aggiuntivo attraverso il filtro di pre-separazione da 30 μm e fatta girare per 5 minuti a 1000 x g a 4 °C. La concentrazione dei nuclei può quindi essere ricalcolata come descritto nel passaggio 3.4.6. - Sulla base del recupero mirato dei nuclei desiderato, risospendere i nuclei alla concentrazione necessaria utilizzando il tampone 1x nuclei e procedere alla preparazione della libreria di sequenziamento dell'RNA a nucleo singolo e dell'ATAC10.
4. Preparazione della frazione citosolica per elettroforesi capillare - spettrometria di massa (CE-MS)
- Combinare 80 μL di frazione citosolica raccolti nella fase 3.3.1 con 20 μL di acqua nanopura contenente standard internalizzati.
- Procedere con CE-MS e analisi come precedentemente descritto 11,12,13.
Risultati
La qualità dei risultati del sequenziamento dipende fortemente dalla qualità dell'input nucleare. Il blebbing nucleare e il danneggiamento della membrana nucleare esterna provocheranno una contaminazione dell'RNA e del DNA nell'analisi, che introdurrà rumore nei dati. Un estratto nucleare puro avrà un'evidenza minima di nuclei incapsulati con componenti citoplasmatici (Figura 2A) o di sovradigestione, evidenziata dallo scoppio dei nuclei (Figura 2B). Un input nucleare ideale conterrà nuclei intatti (Figura 2C).
I dettagli dell'analisi dei dati di sequenziamento dell'RNA e dell'ATAC a nucleo singolo sono ampiamente forniti altrove 5,14. Cluster rappresentativi di popolazioni cellulari da una preparazione nucleare fetale di NHP sono illustrati tramite UMAP nella Figura 3A. I dati di metabolomica vengono prontamente analizzati utilizzando software open source, come descritto in precedenza15. Gli spettri generati possono essere visualizzati e i metaboliti arricchiti nelle isole di un feto provenienti da una madre alimentata con WSD possono essere confrontati con quelli di una madre alimentata con CD (Figura 3B-F).
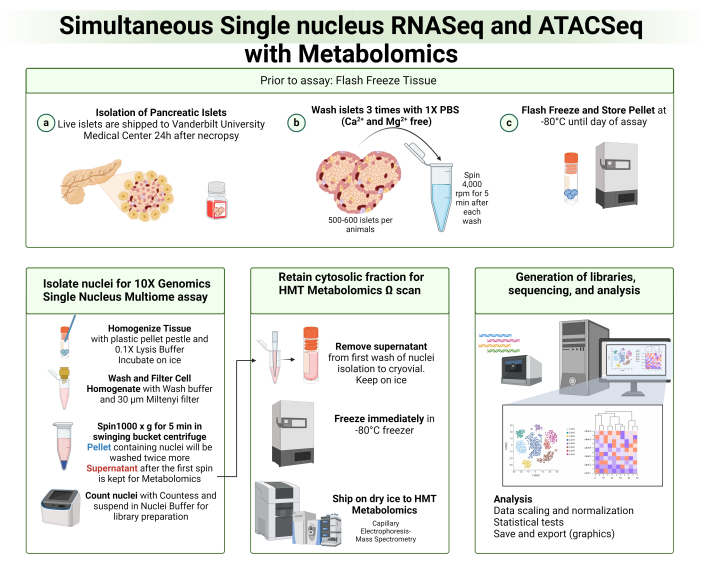
Figura 1: Panoramica del protocollo per l'isolamento dei nuclei e della frazione citosolica. Le isole pancreatiche fetali sono state conservate a -80 °C fino al giorno del test. I nuclei sono stati isolati e utilizzati per il sequenziamento di RNA e ATAC a nucleo singolo. La frazione citosolica dopo il primo lavaggio di isolamento dei nuclei è stata mantenuta per l'elettroforesi capillare-spettrometria di massa. Clicca qui per visualizzare una versione più grande di questa figura.
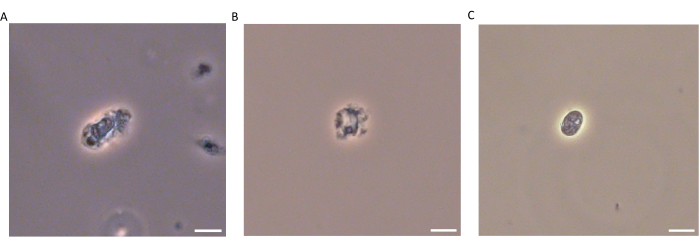
Figura 2: Dimostrazione dell'input corretto dei nuclei nel saggio multiomico a nucleo singolo. Esempi di (A) Nucleo incapsulato dal citoplasma, (B) Nucleo esplosivo con membrana nucleare compromessa e (C) Nucleo intatto con morfologia arrotondata. Barre di scala: 10 μm. Fare clic qui per visualizzare una versione più grande di questa figura.
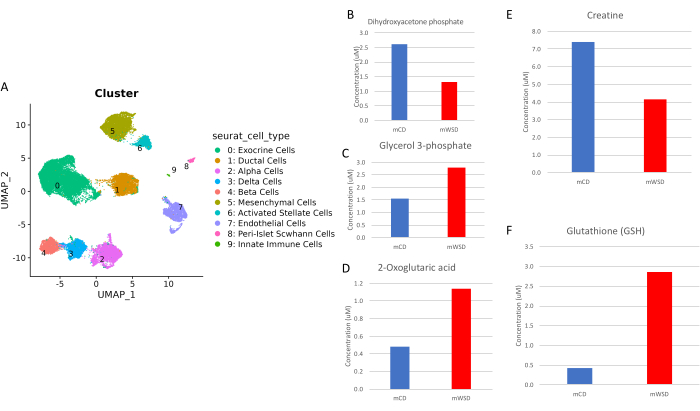
Figura 3: Dati rappresentativi dalla multiomica combinata a nucleo singolo e dalla metabolomica di massa. (A) Clustering UMAP di sottotipi cellulari all'interno di isole NHP fetali isolate in base all'espressione genica. Stima quantitativa dei metaboliti glicolitici, (B) diidrossiacetone fosfato e (C) glicerolo-3-fosfato nella frazione citosolica da isole fetali isolate di NHP quando la madre è stata alimentata con una WSD (mWSD) o una CD (mCD). La dieta materna può anche regolare in modo differenziale il metabolismo attraverso il ciclo dell'acido citrico (D) (2-ossoglutarato), il metabolismo degli aminoacidi (creatina) (E) e alterando lo stato redox cellulare (Glutatione) nelle isole fetali. Clicca qui per visualizzare una versione più grande di questa figura.
Tabella 1: Formulazioni tampone per l'isolamento dei nuclei. Vengono mostrati i componenti dettagliati dei nuclei, della lisi, della diluizione della lisi e dei tamponi di lavaggio. Se necessario, diluire i reagenti alla concentrazione madre prima di preparare il tampone. Clicca qui per scaricare questa tabella.
Discussione
Storicamente, i metodi di isolamento nucleare per il sequenziamento di RNA e ATAC a nucleo singolo hanno utilizzato tamponi contenenti detergenti incompatibili con la cromatografia liquida-spettrometria di massa (LC-MS), una tecnica comune utilizzata per la quantificazione dei metaboliti16,17. L'attuale protocollo consente la combinazione di tecniche trascrittomiche e metabolomiche dalla stessa preparazione del campione utilizzando un detergente delicato per il frazionamento cellulare e seguendo questo frazionamento con elettroforesi capillare, una tecnica che richiede un input di campione più piccolo rispetto alla cromatografia liquida per la separazione dei metaboliti18.
L'aspetto più critico di questo protocollo è la conservazione della membrana nucleare durante l'isolamento nucleare per evitare la degradazione del materiale genetico e ridurre la contaminazione da nucleotidi e macromolecole ambientali. I tempi di esposizione del campione al tampone di lisi possono essere modulati per evitare la sovradigestione dei tessuti e il danneggiamento dei nuclei. Inoltre, il congelamento rapido delle isole durante la conservazione del campione e del surnatante contenente la frazione citosolica è indispensabile per evitare la degradazione del materiale genetico e dei metaboliti. Tutti i campioni devono essere raccolti dalla stessa formulazione del terreno (2,8 mM di glucosio DMEM in questo studio) per evitare l'effetto confondente dell'alterazione del metabolismo dovuta alla disponibilità di nutrienti nei terreni di coltura.
Una limitazione di questo approccio metabolomico combinato è che alcuni metaboliti potrebbero non essere catturati a causa del detergente utilizzato per l'isolamento dei nuclei. Pertanto, per un'analisi più completa dei metaboliti, questo approccio potrebbe essere integrato con analisi da tessuti congelati e isolamento dei metaboliti utilizzando tamponi di lavaggio non organici e LC-MS. Un approccio supplementare raccomandato è la metabolomica spaziale mirata tramite MALDI-MS per localizzare i cambiamenti metabolici all'interno degli organi19. Inoltre, le attuali tecnologie per valutare la variabilità del trascritto e l'accessibilità della cromatina all'interno dello stesso nucleo sono limitate a causa della ridotta profondità di sequenziamento per il sequenziamento ATAC. Nell'analisi dei dati, i ricercatori saranno in grado di valutare solo le regioni aperte della cromatina all'interno di ampi cluster cellulari piuttosto che specifici sottocluster all'interno del set di dati.
Poiché l'uso di tessuti che non sono prontamente disponibili, in particolare quelli provenienti dall'uomo e dai primati non umani, diventa più frequente, è imperativo massimizzare la quantità di informazioni che possono essere estratte da una replica biologica. L'approccio multi-omico sopra descritto consente ai ricercatori di correlare le firme genetiche con la disponibilità di picco intorno ai promotori chiave dell'identità cellulare, considerando anche come il metabolismo cellulare possa aver contribuito a tali cambiamenti. L'identificazione dei metaboliti che sono più abbondanti all'interno dei preparati cellulari fornirà indizi sulle specifiche modifiche epigenetiche che guiderebbero la specificazione dei sottotipi cellulari in un particolare lignaggio. Infatti, sono stati stabiliti nuovi protocolli per integrare i risultati di esperimenti trascrittomici e metabolomici, anche se provenienti da diverse fonti tissutali20. L'importanza di questo protocollo è che l'accessibilità della cromatina, i cambiamenti trascrizionali e l'arricchimento dei metaboliti possono essere valutati da un singolo input di campione. Le future applicazioni di questa tecnica consentiranno una migliore caratterizzazione degli stati patologici nei tessuti acquisiti da popolazioni campione sparse, come i tessuti di pazienti con malattie rare. Nel campo della biologia delle isole motrici, la caratterizzazione delle reti di regolazione genica e delle firme metaboliche che si correlano possono fornire informazioni critiche sui meccanismi di conservazione dell'identità e della funzione delle cellule beta per evitare l'insorgenza del diabete.
Dichiarazioni
Gli autori dichiarano di non avere conflitti di interesse.
Ringraziamenti
Gli autori desiderano ringraziare l'intero team dell'Oregon Health Sciences University per essersi preso cura della colonia di primati non umani e per l'acquisizione dei tessuti. Inoltre, Vanderbilt Technologies for Advanced Genomics ha fornito competenze tecniche e consulenza sulla progettazione sperimentale. Il DTC è stato supportato da una borsa di studio pre-dottorato F31 del NIH/NIDK (1F31DK135164). La PK è stata supportata dal NIH/NIDDK (1R01DK128187). MG è stato supportato da un premio VA Merit (I01 BX005399), NIH/NIDDK (1R01DK135032, 1R01DK128187) e JDRF (2-SRA-2024-1455-S-B). Il lavoro presso l'Oregon National Primate Research Center (ONPRC) è stato supportato da P51OD011092 per il supporto operativo del Centro.
Materiali
| Nome | Azienda | Numero di catalogo | Commenti |
|---|---|---|---|
| 33 G iniettore di cannula cerebrale di ratto | Protech International | 8IC315IS5SPC | Per incannulamento del dotto e gonfiaggio del pancreas |
| Penicillina/Streptomicina | Fisher | 15-140-122 | Per terreni RT |
| FBS | Millipore/Sigma | F4135-500ML | Per supporti RT |
| RPMI 1640 | Thermo Fisher Scientific | 11-875-135 | Per terreni RT |
| Collagenasi P | Sigma Aldrich | 11213865001 | Per la digestione del pancreas |
| Dnasi bovina I | Sigma Aldrich | 11284932001 | Per terreni RT e isolamento |
| Destrosio | Fisher | D16-1 | concentrazione finale sarà di 2,8 mM |
| Cloruro di calcio | Fisher | C4901-500G | La concentrazione finale sarà 0,5 mM |
| HEPES | Gibco | 15630-080 | Final la concentrazione sarà di 10 mM |
| Frazione di albumina sierica bovina (BSA) 5 | Prodotti di ricerca International | A30075100 | La concentrazione finale sarà di 0,5 mg/mL |
| Dulbecco's Modified Eagle | Medium Gibco | 11966025 | Per la raccolta manuale delle isole |
| 20x Nuclei Buffer | 10X Genomics | 2000153/2000207 | |
| Digitonin (5%) | Thermo Fisher Scientific | BN2006 | Potrebbe essere necessario riscaldare la digitonina a 65 gradi C per sciogliere il precipitato bianco |
| MACS SmartStrainers (30 &; micro; M) | Miltenyi Biotec | 130-098-458 | |
| MACS BSA Soluzione madre (10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | Preparare un brodo al 10% utilizzando acqua MilliQ |
| Soluzione di cloridrato Trizma, pH 7,5 | Sigma Aldrich | T2319-1L | |
| Soluzione di cloruro di sodio, 5 M | Sigma Aldrich | S6546-1L | |
| Soluzione di cloruro di magnesio, 1 M | Sigma Aldrich | M1028-100mL | |
| Sigma Protector Inibitore della RNASI | Sigma Aldrich | 3335402001 | |
| DTT | Research Products International | D11000-5.0 | |
| Pestelli monouso per pellet senza RNASI | Fisher Scientific | 12-141-368 | |
| Tween 20 | Fisher Bioreagents | BP337-500 | Preparare una riserva al 20% utilizzando acqua MilliQ |
| acqua priva di nucleasi | Promega | PR-P1193 | |
| DNA LoBind Tubes (5 mL) | Eppendorf | 30108310 | |
| Cryovials (1,5 mL) | VWR | 20170-225 | |
| Posi-Click Tubes (0,6 mL) | Denville | C-2177 | |
| Trypan Blue (0,4%) | Thermo Fisher Scientific | T-10282 | |
| Vetrini per conteggio cellulare a doppia camera | Bio-Rad | 1450011 | |
| Sistema per acqua ultrapura MiiliQ | Millipore/Sigma | 7003/05/10/15 | |
| Filtro di cut-off da 5 kDa | HMT Metabolome Technologies | ||
| Standard interni | HMT Metabolome Technologies | ||
| Pipette P10, P20, P200 e P1000 | Eppendorf | 2231000602 | |
| Puntali per pipette, 10 &; L | VWR | 76322-528 | |
| Puntali per pipette, 1000 &; L | Thermo Fisher Scientific | 21-236-2A | |
| Puntali per pipette, 20 & micro; L | Genesee Scientific | 23-404 | |
| Puntali per pipette, 200 &; micro; L | USA Scientific | 1120-8810 | |
| Microscopio a contrasto di fase | Olympus | BX41-PH-B | |
| Countess II Contatore di cellule automatizzato | Thermo Fisher Scientific | AMQAX1000 | |
| DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R | Centrifuga Beckman-Coulter | B06315 | |
| RNase-ZAP | Sigma Aldrich | R2020 |
Riferimenti
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
Ristampe e permessi
