ここでは、抗生物質活性を有する天然物の識別、(B)化合物の精製、(C)は、その生合成の最初のモデル、(D)ゲノムシーケンシング/ -miningと((A)の詳細なプロトコルを提示しますE)生合成遺伝子クラスターの検証。
方法論記事
からPolyketomycinを使用したデモンストレーション:天然物からの生合成遺伝子クラスターへストレプトミセスdiastatochromogenesTü6028
この記事について
サマリー
要約
ストレプトミセス株は、様々な生理活性を有する異なる化合物の多くを生成する能力のために知られています。異なる条件下での栽培は、多くの場合、新規化合物の生成をもたらします。したがって、株の産生培養物を酢酸エチルで抽出し、粗抽出物をHPLCにより分析します。さらに、抽出物を異なるアッセイによって、それらの生物活性について試験します。構造解明のための関心対象の化合物は、様々なクロマトグラフィー法の組合せにより精製されます。
ゲノムマイニングに結合されたゲノム配列は、別のコンピュータープログラムを使用して天然物の生合成遺伝子クラスターの同定を可能にします。正しい遺伝子クラスターが同定されたことを確認するために、遺伝子不活性化実験を実行しなければなりません。得られた変異体は、特定の天然産物の生産のために分析されます。正しい遺伝子クラスターは、不活性化されると、株は、化合物を生成するために失敗する必要があります。
ワークフローは、 ストレプトミセスdiastatochromogenesTü6028によって生成される抗菌性化合物のpolyketomycinのために示されています。約10年前、ゲノム配列決定はまだ非常に高価だったときに、遺伝子クラスターのクローニングおよび同定は非常に時間のかかるプロセスでした。ゲノムマイニングと組み合わせた高速ゲノムシーケンシングは、クラスタ識別の裁判を加速し、生合成を探索する遺伝的方法によって、新規な天然物を生成するための新しい方法を開きます。この論文に記載されているプロトコルは、Streptomyces株または他の微生物に由来する任意の他の化合物に割り当てることができます。
概要
植物や微生物由来の天然物は、常に臨床薬剤開発や研究のための重要な源となっています。最初の抗生物質ペニシリンは、アレクサンダー・フレミング1によって菌から1928年に発見されました。今日、より多くの天然物は、臨床治療に使用されます。
異なる生物活性との二次代謝産物の様々な種類を生産する能力のために知られている一つの属は、Streptomycesです。 ストレプトマイセスは、グラム陽性菌であり、放線菌のクラスと放線菌目に属します。臨床的に使用される抗生物質のほぼ三分の二は、3またはテトラサイクリン4ダプトマイシン、アムホテリシン2のように、主にストレプトミセスから、放線菌由来しています。二つのノーベル賞は、 ストレプトミセス抗生物質研究の分野で授与されています。第1は、ストレプトマイシンの発見、最初のANのためセルマン・ワクスマンに行ってきました結核に対して有効tibiotic。 5 2015年、医学生理学でのノーベル賞の一環として、S。アベルミチリスからのアベルメクチンの発見は、同様に授与されました。アベルメクチンは、寄生虫疾患6,7の治療のために使用されます。
そのようなストレプトマイセスなどの微生物で天然物の発見のための伝統的なアプローチは、一般に、異なる増殖条件下で菌株の栽培だけでなく、二次代謝産物の抽出と分析を含みます。生物活性アッセイ(抗菌および抗癌活性についてのアッセイなど )は、化合物の活性を検出するために行われます。最後に、目的の化合物を単離し、化学構造が解明されています。
天然産物の構造は、多くの場合、複雑な分子を形成している単一の部分から構成されています。圏の構築につながるいくつかが、限られた、主要な生合成経路があります。天然物の生合成のために使用されるKS、。主要な生合成経路は、糖部分に至るポリケチド経路、アミノ酸を用いテルペノイドおよびアルカロイド、経路に至る経路、および経路です。各経路は、特定の酵素8のセットによって特徴付けられます。化合物の構造に基づいて、これらの生合成酵素を予測することができます。
最近では、次世代シーケンシングとバイオインフォマティクス解析と組み合わせた化合物の詳細な構造解析が責任を生合成遺伝子クラスターを識別するのに役立ちます。クラスタ情報は、さらに、天然物の研究のための新しい方法を開きます。これは、天然の生成物の収率を増加させるための異種発現を含む、遺伝子欠失もしくは改変、および他の経路からの遺伝子と組み合わせ生合成により化合物の修飾を標的。
Polyketomycinは、培養ブロスから独立して単離しました。2株、 ストレプトミセス・エスピー。 MK277-AF1 9およびストレプトミセスdiastatochromogenesTü602810。構造は、NMRおよびX線分析によって明らかにされました。 Polyketomycinは、β-D-amicetoseおよびα-L-axenose 2デオキシ糖部分によってリンクされ、四環decaketidとジメチルサリチル酸で構成されています。それも、そのようなMRSA 11などのグラム陽性多剤耐性株に対して、細胞傷害性および抗菌活性を表示します。
S. diastatochromogenesTü6028のゲノムコスミドライブラリーが生成され、何年も前にスクリーニングしました。 41遺伝子を含む、52.2キロバイトのサイズでpolyketomycin遺伝子クラスターを特定の遺伝子をプローブ使用して、強烈なワーク12の数ヶ月後に同定されました。最近、 エス・diastatochromogenesのドラフトゲノム配列はpolyketomycin生合成遺伝子クラスターの高速同定につながる得ました。この概要では、この方法は、iDENはに貢献します天然物をtify、その生合成遺伝子クラスターは、一例としてpolyketomycin用いて、説明する明らかにする。
ここでは、 ストレプトミセスdiastatochromogenesTü6028によって生成polyketomycinのために示され、その生合成遺伝子クラスターに天然物から導く単一の手順を説明します。プロトコルは、抗生物質特性を有する天然産物の同定および精製を含みます。また、構造解析および生合成遺伝子クラスターの同定ゲノムマイニングリードからの結果との比較。この手順は、Streptomyces株または他の微生物に由来する任意の他の化合物にも適用することができます。
プロトコル
抗生物質プロパティを持つ天然物の1識別
- 「OSMAC(1株-多くの化合物)アプローチ」13以下の異なる条件( 例えば、時間、温度、pH、メディア)の下で微生物を養います。化合物の産生が観察されたものでメディアを選択します。
- 以下の条件でストレプトミセスdiastatochromogenesTü6028の育成
- MSプレート上のストレプトミセスdiastatochromogenesTü6026株成長(大豆粉を20グラム、D-マンニトール20グラム、のMgCl 2 10mMの、1.5%寒天、水道水1 L)。スパイラルとの三角フラスコ中の、小さな20mLの液体TSB培地にこの株の胞子のループ(前培養培地トリプシン大豆培養液30グラム、水道水1リットル、pHは7.2)を接種します。ロータリーシェーカー(28℃、180 rpmで、2日)にフラスコを振ります。
- 100 mLのHA培地で本培養を接種(グルコース4 gの酵母エキス4 gの麦芽前培養の2 mLで10グラム、水道水1リットル、pHは7.2)を抽出。文化180 rpmでロータリーシェーカー上で6日間28℃で歪み。
- 粗抽出物の調製
- 遠心分離により細胞を回収し(10分、3,000×gで)。
- 次の手順については、ヒュームフードの下で有機溶剤を扱います。
- 菌糸体からの化合物の抽出のために、アセトンの二倍の体積で細胞を再懸濁し、30分間、180 rpmでのためにチューブに振ります。商業用ろ紙を通過する液体を濾過し、40℃、550バールで、ロータリーエバポレーターでアセトンを蒸発させます。 20 mLの水で抽出物を溶解:酢酸エチル(1:1)、180rpmで30分間分液漏斗中で振っ。
- 培地から化合物を抽出するため、1 M HClの添加によりpHを4.0に培養液を調整します。 100 mLの酢酸エチルを加え、30分、180 rpmでのための分液漏斗にそれを振ります。
- 酢酸エチル相を収集し、腐敗によって蒸発 40℃、240バールで進蒸発。
- HPLCによる粗抽出物の分析
- 1mLのMeOH中の抽出物を溶解し、0.45μmの孔サイズのフィルターを介してそれらをフィルタリングし、高速液体クロマトグラフィー(HPLC)14を実行します 。
- polyketomycinの場合には、C18プレカラム(4.6×20 mm 2)とし、C18カラム(4.6×100 mm 2)とを備えたHPLCシステムを装備。 H中の20%から95%までのアセトニトリル+ 0.5%酢酸の直線勾配を使用して2 O + 0.5%酢酸(流速:0.5 mLの分-1)。
注:Polyketomycinは25.9分の保持時間を有している( 図1Aを参照)。 UV /可視スペクトルは、262 nmおよび359 nmで242 nmで、282 nmの、446 nmおよび最小値で最大値を有している( 図1B参照)。負の手口863.2 [MH]の質量に- ( 図1Cを参照)検出可能です。
"SRC =" /ファイル/ ftp_upload / 54952 / 54952fig1.jpg "/>
図1:PolyketomycinのLC / MS分析。 6日間ストレプトミセスdiastatochromogenesTü6028の培養後の粗抽出物の(A)のHPLCクロマトグラム(λ= 430 nm)を。 Polyketomycinは/ VisスペクトルPolyketomycinの25.9分(B)UVの保持時間を有します。 (C)負の様式でPolyketomycinの質量スペクトル。 m / z 863.2 [MH]でメインピーク- 。 この図の拡大版をご覧になるにはこちらをクリックしてください。
- ディスク拡散アッセイを使用して抗生物質活性の同定
- グラム陽性細菌の枯草菌のような試験菌株を接種(LB培地中で、LB 20 gの水道水1リットル、pH7.4)で、およびTSB培地中の他のストレプトマイセス株(;トリプシン大豆ブロス30 gの水道水1 L、pHが7.2)、グラム陰性菌をLB培地中で大腸菌 ()および真菌株(例えば、YPD培地などの培地中で、酵母エキス10 gのペプトン20 gのグルコース20 gの水道水1リットル、pH7.4中)。試験株の前培養の100μLを取り、それぞれの寒天プレート上にそれらを広げました。
- 滅菌ペーパーディスク上にメタノール(あるいは水またはDMSO)およびピペット20-50μLの500μL中の粗抽出物または精製された化合物を溶解させます。ワークベンチの下で30分間乾燥したペーパーディスクおよび試験培養物とのプレート上にそれらを置きます。陰性対照(溶媒)および陽性対照を準備し(抗生物質、 例えばアプラマイシン[1ミリグラム])。
- 試験株が目に見えて成長されるまで、適切な条件下で培養すると、見かけの場合、阻害ゾーンを決定します。 大腸菌及びバチルスをインキュベートします。 16時間、37℃、 ストレプトミセス種で。 2-4日間28℃で、真菌株(正確な試験株に主に依存)AT 2日間30℃で)。
2.大規模抽出、精製及び化合物の構造解明
- 5 L HA培地中のS. diastatochromogenesを育成(グルコース4グラム、酵母エキス4グラム、麦芽エキス10グラム、水1リットル、pH7.2のをタップします)。 150 mLのHA培地を含む30×500 mLの三角フラスコ中の予備培養の2ミリリットルを接種します。 180 rpmでロータリーシェーカー上で6日間、28℃で歪みをインキュベートします。
- 酢酸エチルを用いて、遠心分離(10分、15,000×gで、RT)と抽出化合物による収穫細胞(セクション1.3を参照)。
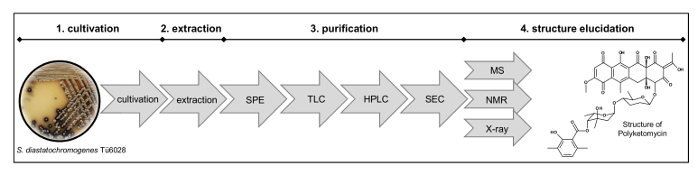
図2:構造解析のワークフロー。プロセス含む固相抽出(SPE)によって(1)菌株の培養、(2)抽出、(3)精製、薄層クロマトグラフィー(TLC)、分取高速液体クロマトグラフィー(HPLC)、サイズ質量分析(MS)、核磁気共鳴(NMR)およびX線測定によって排除クロマトグラフィー(SEC)及び(4)の構造解明。 この図の拡大版をご覧になるにはこちらをクリックしてください。
- Polyketomycinの精製
注:精製および構造解明の過程は、図2に示されています。- mLを各条件について100、H 2 O中の30%から100%のMeOHまでの範囲の10%-stepwise MeOH勾配を用いたC18固相抽出(SPE)カラムにより、粗抽出物を分画します。
- 溶出系として:(1 7) の CH 2 Cl 2 /メタノールを用いて分取薄層クロマトグラフィー(TLC)15によりさらに化合物を含有する画分を精製します。
- 分取HPLC 16によって化合物を精製します。そして、C18プレカラム(9.4 X 20ミリメートル5μm)を用いたHPLCシステムを装備メインカラム(5ミクロン、9.4×150 mm)です。 H中の20%から95%まで2 O + 0.5%酢酸の範囲のアセトニトリル+ 0.5%酢酸の勾配を使用し(流速:2.0 ml /分)。
- 溶媒および他の小さな不純物を除去し、MeOHを17カラムを用いたサイズ排除クロマトグラフィーによる最終精製工程を行います。最終的に純粋な化合物を収集し、40℃、240バールで回転蒸発によりメタノールを蒸発させます。
- 構造解明
- DMSO-dの6の(マシン依存)600-700μLで純粋な化合物(以上2 mg)を、記録1D NMR(1 H、13 C)、および2D NMR(HSQC、HMBC、1 H- 1 Hを溶かしますNMR分光計18にCOSY)スペクトル。 DMSO-dの6を使用してδ値(ppm)で、化学シフトを表現します。
- 高解像度を使用して高分解能マススペクトル(HRESI-MS)polyketomycin 19を記録します質量分析計。
- NMR及びMSデータ解析10の結果を解釈することにより構造を解明します。
3.新規単離された化合物の生合成モデルを提案します
- 単離された化合物の構造を分析し、その生合成に関与している可能性がある酵素を、予測します。ポリケチド(タイプI、IIまたはIII)、非リボソームペプチド合成、lantipeptide、テルペノイド、又は糖代謝経路8に割り当てます。
- 例polyketomycin
- 四環部分、2単糖およびジメチルサリチル酸:明らかな単一の部分に構造を細分化。
- 四環部分ポリケチド合成酵素II型から派生している可能性があり、ジメチルサリチル酸部分は、反復ポリケチド合成酵素I型によって6 - デオキシ糖である2糖部分を、導出されることがあります。部分が由来する可能性がある場合には、見つけます、synthesiかもしれません生合成中にTDP-グルコース-4,6-デヒドラターゼを含むグルコースからZEDと2のグリコシルトランスフェラーゼによって、おそらく添付( 図3を参照)8。
- クラスタ内の推定遺伝子を予測します。ユニットを接続する際に、同様に変更し、分子を調整するには、単一成分の合成に関与する酵素を考えます。 Polyketomycinの生合成遺伝子クラスターは、おそらく(エクステンダーユニットを接続するため、したがって、最小ACP、KSαウントKSβ)ポリケチド合成酵素II型をコードする遺伝子を、含まれている反復ポリケチド合成酵素I型(少なくともACP、AT、KS)、 TDP-グルコース-4,6-デヒドラターゼ(ステップのために必要なグルコース→デオキシグルコース)と2つのグリコシルトランスフェラーゼ(アグリコンへの2つの糖モノマーを取り付ける)8。
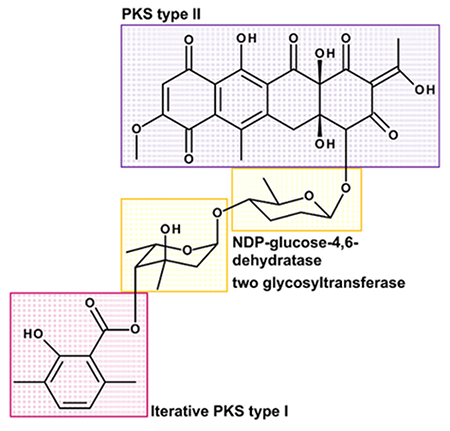
図3:Polyketomycin divIdはの構造シングル・ビルディング・ブロックの中に編。 Polyketomycinは、β-D-amicetoseおよびα-L-axenose(NDP-グルコース-4,6- 2デオキシ糖部分によってリンクされ、四環decaketid(PKS II型)とジメチルサリチル酸(反復PKS I型)で構成されていますデヒドラターゼ及び必要な2つのグリコシルトランスフェラーゼ)。 この図の拡大版をご覧になるにはこちらをクリックしてください。
4.ゲノムシーケンシング/マイニング
- 次世代シーケンシング
- イルミナ、454パイロシーケンシングまたは固体20のような次世代シーケンシング技術によるゲノムDNAの配列を決定。単一揃え参照配列に読み取りまたはデノボ組み立てます。
注:S. diastatochromogenesTü6028のゲノムはビーレフェルト大学バイオテクノロジーセンター(CeBiTec)で配列決定しました。すべてはドラフトゲノムに組み立てた読み込み7.9 Mbのの。
- イルミナ、454パイロシーケンシングまたは固体20のような次世代シーケンシング技術によるゲノムDNAの配列を決定。単一揃え参照配列に読み取りまたはデノボ組み立てます。
- ゲノムマイニング
- 例えばNCBI原核生物ゲノム注釈パイプライン21,22のため、RAST(サブシステムテクノロジを使用して迅速な注釈)23,24,25、Prokka(急速な原核生物のゲノムアノテーション)26またはGenDB 27の使用によって、オープンリーディングフレーム(ORF)を検索します。これらのプログラムはまた、それらの機能を提案します。 S. diastatochromogenesTü6028のドラフトゲノム配列の分析は、7,000人以上のORFの同定につながりました。
- 他の類似の遺伝子および触媒ドメイン28,29,30とのアラインメントなどのようなより多くの情報を得るために特定のBLAST(基本的なローカル配列検索ツール)解析を実行します。
- antiSMASH 31,32,33、NaPDoS 34とNRPSpredictor 35,36のような二次代謝遺伝子クラスターの実行プログラムの同定のため。 ストレプトミセスdiastatochromogenes antiSMASH 31,32,33同定のドラフトゲノム中22遺伝子クラスターをfiedが。
- それらの酵素経路(複数可)(ポリケチド合成酵素(タイプI、IIまたはIII)、非リボソームペプチド合成酵素、lanthipeptide、テルペノイド、糖代謝...)のための推定遺伝子クラスターを分析します。化合物の合成に関与している可能性がある遺伝子を含むクラスター(複数可)を検索する(セクション3を参照)。 S.のdiastatochromogenesで注釈付きクラスター2は、ポリケチド合成酵素II型遺伝子、3ポリケチドシンターゼI型遺伝子、TDP-グルコース-4,6-デヒドラターゼ遺伝子と2糖転移酵素遺伝子を( 図4を参照)が含まれています。
- クラスタ内の単一の遺伝子に焦点を当てています。 PKS I型およびNRPSアシルトランスフェラーゼ及びアデニル化ドメインの特異性、及び従って単一エクステンダー単位の取り込みのために、予測することができます。また、分子と組み込まれた拡張装置ユニットの順序を比較します。 antiSMASH 31,32,33も MIBiGデータベース37へのリンクを、すでに知られている化合物の類似のクラスタを示しています。 これらの他の化合物と化合物の構造を比較し、類似点を確認してください。
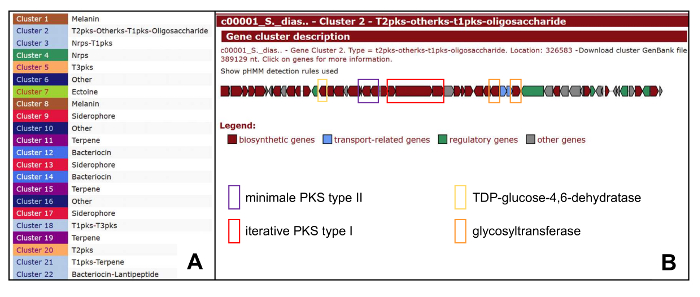
図4:S. diastatochromogenesTü6028で他のクラスタのPolyketomycin生合成遺伝子クラスターと概要のantiSMASH出力。 (A)は Sのゲノムにおける予測生合成遺伝子クラスターの概要Tü6028はdiastatochromogenes。標的遺伝子と(B)クラスタ2 Polyketomycin生合成遺伝子クラスター。 この図の拡大版をご覧になるにはこちらをクリックしてください。
生合成遺伝子クラスターの5検証
- 化合物の生合成のための明白かつ重要な(必須の)機能を持つ遺伝子を検索します。 polyketoの検証のためPKS II型からのケトシンターゼαをコードする遺伝子pokPIマイシン遺伝子クラスターは、 フレーム -deletion のうち ( 図5Bを参照)によって選択され、不活性化しました。また、内部断片をクローニングすることによって遺伝子を中断し( 図5Cを参照してください)。
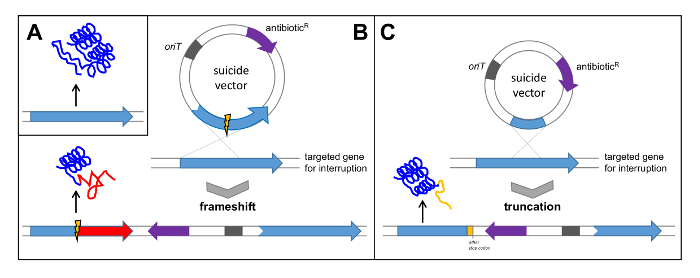
図5:シングルクロスオーバーによる遺伝子クラスターの検証。 (A)天然遺伝子は、機能的タンパク質の翻訳につながります。自殺ベクターに内部欠失を有する(B)遺伝子のクローニングは、標的遺伝子と非機能性タンパク質のその後の翻訳におけるフレームシフトをもたらす単一のクロスオーバーをもたらします。自殺ベクターへの遺伝子の内部断片の(C)のクローニング遺伝子および非機能的なタンパク質のその後の翻訳の切断をもたらします。 oriT:トンの起源ransfer。抗生R:抗生物質耐性。 この図の拡大版をご覧になるにはこちらをクリックしてください。
- シングルクロスオーバー構築物のクローニング
- プライマーpokPI_forとpokPI_revでPCR 38によってpokPIを含む断片を増幅します。
- 自殺ベクターへのクローンのPCR産物は、pKC1132 39(Rアプラマイシン[50 mg / mlで])。自殺ベクターは、 ストレプトミセス株において複製することができないので、アプラマイシン抵抗性を提供するために、相同組換えにより標的遺伝子に統合しなければなりません。熱ショック変換40によってクローニング宿主大腸菌にベクトルを転送します。
- アルカリ溶解41によってベクトルを分離します。
- フラグメント内で切断する単一のカッター制限酵素でベクターDNAを消化。 pokPI GENeを用いて消化しました。 酵素のKpn I.
- 5 '→3'ポリメラーゼ活性および3 '→5'エキソヌクレアーゼ活性を有する大規模なDNAポリメラーゼI(クレノウ)フラグメント、で消化されたベクターDNAを扱います。粘着末端の平滑化とその後の再連結は、4つの塩基の損失につながります。 、単一のコロニーを摘み、それらのプラスミドDNA、41を単離し、制限消化および配列決定によってさらに分析し、 大腸菌 XL1 Blueにステップ変換によってこれらの塩基の損失を確認してください。
- シングルクロスオーバーの結合は、 ストレプトミセスに構築します
- 熱ショック変換40によって大腸菌 ET12567 pUZ8002 42(カナマイシンR)に欠失を有するpokPI遺伝子 (pKC1132_ pokPIデル)を含む自殺ベクターを転送します。 100 mLのLB培地中で細胞をインキュベート(カナマイシンを50μgmLの-1、アプラマイシンを50μgmLの-1
- ミックス500μL 大腸菌 pUZ8002 pKC1132_ pokPIデル500μL ストレプトミセスdiastatochromogenes文化を持つ(あるいは胞子を使用します)。 (1.5%、水道水1 L寒天、大豆粉20グラム、D-マンニトール20グラム、のMgCl 2 10mMの)MSプレート上で混合物を広げます。 28℃で20時間プレートをインキュベートします。
- アプラマイシン(1.25 mg)を水1mLに溶解ホスホマイシン(5 mg)を持つ各プレートをオーバーレイし、それらを乾燥させてください。接合完了体が表示されるまで28℃で数日間培養します。
- シングルクロスオーバー突然変異体をチェック
- 20mLのTSB培地(50ミリグラムmLのアプラマイシン-1)で、単一の接合完了体を接種し、3日間、180 rpmで28℃でそれらをインキュベートします。
- ゲノムDNA 43を単離し、PCRによりpokPI遺伝子の中断を確認してください。
- 100 mLのHA媒体で検証遺伝子中断およびストレプト野生型株を持つ単一のクローンを植菌し、28℃、180rpmで6日間のためにそれらをインキュベートします。 (セクション1.3を参照)粗抽出物を抽出します。 HPLC-MS分析によって、化合物の生成を確認してください(1.4節を参照)。 HPLCクロマトグラムにおける対応するピークと化合物の質量は、任意の複数の検出可能であってはならない( 図6を参照)。
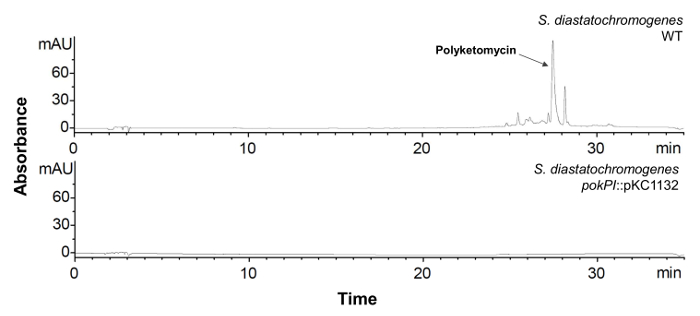
図6:S.のHPLC分析は、不活化pokPIジーンとdiastatochromogenes。 S.の粗抽出物のHPLCクロマトグラム(λ= 430 nm)を中断pokPI -Gen(下記)とWT(上)と変異株をdiastatochromogenes。変異株はもうpolyketomycin生成されません。この図の拡大版をご覧になるにはこちらをクリックしてください。
結果
この概要では、その生合成遺伝子クラスターにつながる抗生物質の同定から単一の手順を説明します。何年も前に私たちは、 大腸菌宿主細胞を形質導入し、ファージにそれらをパッケージ化、コスミドライブラリーをクローニングし、polyketomycinクラスタの重複領域を有するクローンを同定するためにコロニーの数千人を選別しなければなりませんでした。コスミドの配列決定も困難と高価なプロセス12でした。
株にさらなる研究を行うために、我々は、 ストレプトミセスdiastatochromogenesTü6028の全ゲノム配列を決定しました。ドラフトゲノム配列で、私たちは簡単にpolyketomycinと有望な化合物をコードする他のクラスターの生合成遺伝子クラスターを同定しました。 図7は、コスミドライブラリーと精巧スクリーニングのクローニングにより生合成クラスターを識別する「古い」方法を比較し、粗い時間スケールで、その後のゲノムマイニングと全ゲノム配列決定による「新しい」方法。新しいシーケンシング技術や新ゲノムマイニングプログラムは、全体のプロセスをスピードアップします。
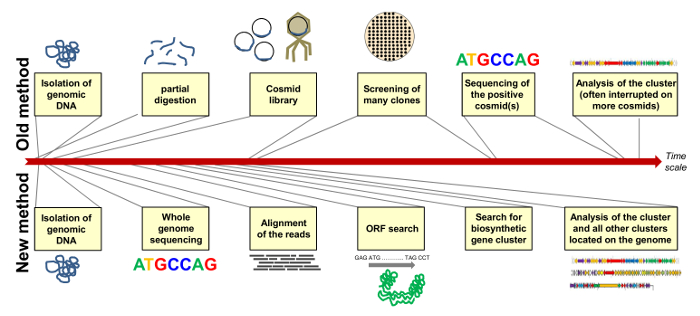
図7:生合成遺伝子クラスターの割り当ての「古い」と「新」法の比較。 「古い」方法は、それぞれのコスミド(複数可)(上記)の陽性クローン及び配列の選択とコスミドライブラリーのクローニングを含み、 「新しい」メソッドは、全ゲノム配列決定および系統(以下)のゲノム上に位置する全ての二次代謝産物の遺伝子クラスターを同定するために-miningを含みます。単一ステップの所要時間は大まかな時間スケールで示されています。 この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
このラボでは、ストレプトミセスdiastatochromogenesのゲノムコスミドライブラリーが生成され、非常に時間のかかるプロセスを経てpolyketomycin遺伝子クラスターの同定、その結果、何年も前にスクリーニングしました。単一の遺伝子の特徴付けは、標的遺伝子の欠失と、得られた変異体12の分析を使用して可能でした。最近、 エス・diastatochromogenesのドラフトゲノム配列はpolyketomycin生合成遺伝子クラスターの高速同定を可能に得られました。ドラフトゲノム配列は、まだ多くのコンティグが含まれていますが、我々は簡単に、生合成遺伝子を検出することができました。記載された方法はヶ月以内に達成することができます。しかし、この手順は多くのステップを含みます。シングルステップは、その後の工程への進行を防止、数回失敗することがあります。
ストレプトマイセス属の生物活性化合物を生成するその能力のために知られています。彼らはしばしば20以上の経歴を運ぶながら、ynthetic遺伝子クラスターは、通常、1つまたは2つの化合物は、実験室条件下で製造されます。サイレント遺伝子クラスターをウェイクアップするOSMACアプローチ(さまざまな条件の下で1株の栽培)の適用は、時には十分ではありません。このような多面的な調節遺伝子ADPA 44とbldA 45,46などの調節遺伝子の遺伝子操作は、他の二次代謝産物の産生を活性化するための有効な方法です。
NMR分析により、例えば 、化合物の構造の解明については、精製された化合物の通常以上の2mgが必要です。そのため、10以上のL培養液の発酵はしばしば必要とされます。酸素、pHおよび温度条件を維持することができる発酵槽がなければ、文化やその後の抽出のこの量を処理するために、小さな研究室で挑戦されることがあります。精製中に、化合物は、酸化による、放射線や温度に変化させてもよいです。また、多くの精製工程が高く、分解の可能性を使用しています。
天然物の構造、およびゲノム内のクラスタを分析するとき、時には適切なクラスタを識別することは容易ではありません。唯一のドラフトゲノム配列がある場合はまず、クラスタの一部が失われることがあります。第二に、生合成に必要とされていない全ての遺伝子は、クラスタ内にあります。第三に、時々クラスタは、多くのキロベースにより互いに分離2つの部分に分割されます。第四に、適切な遺伝子クラスターであるかを決定することは困難です。モジュールの数に基づいて、延長部の数を計算し、あるいは、選択領域の解析によって、単一のエクステンダー単位を特定することができる大型PKS I型またはNRPS系の場合には簡単になります。しかし、反復作業酵素の場合に合成した化合物の予測は、特にストラ場合、しばしば不可能です中には40以上の遺伝子クラスターを持っています。第五に、自然は非常に複雑で、まだ未知の化合物がいっぱいです。多くの場合、生合成は、異なる経路の混合物です。新規化合物はまだ同定、またはしない他の化合物に関連していない場合には、クラスタを識別するために生合成のモデルを提案し、それを証明することは困難です。
クラスタが識別されると、単一のクロスオーバー技術は、仮説を検証するために良いと迅速な方法です。 PCRは、自殺ベクター、抱合、陽性クローンの選択、産生アッセイへのクローニングに必要な唯一のステップです。この技術の一つの欠点は、染色体へのベクターの組込みを伴うさらなる組換え事象に安定していないということです。したがって、さらなる単一の遺伝子を分析するために、正確な遺伝子欠失が必要です。また、遺伝子レベルでストレプトミセス株を操作するためにトリッキーなことがあります。
記載された手順は、Tを割り当てることができストレプトミセス株または他の微生物によって産生される任意の他の化合物O。生合成遺伝子クラスターとその合成された化合物についての知識は、私たちに多剤耐性病原体との戦いのためにそれらを改善する目的で、既存の分子を修飾するためのさらなる機会を提供します。
開示事項
著者らは開示するものは何もない。
謝辞
S. Zhang は、China Scholarship Council によって資金提供を受けています。著者らは、この研究室でポリケトマイシンプロジェクトに携わった元方々、そしてポリケトマイシン生産者を提供してくださったテュービンゲン大学のHans-Peter Fiedler教授に大変感謝しています。この研究はDFG(RTG 1976)の支援を受けました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| agar | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 5210.4 | |
| agarose | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 6352.4 | |
| D-マンニトール | Carl Roth GmbH + Co. KG、カールスルーエ、ドイツ | 4175.1 | |
| グルコース | Carl Roth GmbH + Co. KG, カールスルーエ, ドイツ | 6780.1 | |
| LB | Carl Roth GmbH + Co. KG、カールスルーエ、ドイツ | X964.3 | |
| 麦芽エキス | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | X976.2 | |
| MgCl2 | >Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 2189.1 | |
| Peptone | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | ||
| 大豆粉 | W.Schoenemberger GmbH, Magstadt, Germany | Hensec-Vollsoja | |
| トリプシン大豆ブロス | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | X938.3 | Caso-Bouillon |
| yeast extract | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 2363.2 | |
| Solvents | |||
| Acetic acid | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 3738.5 | |
| アセトン | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 9372.2 | |
| Acetonitrile | Avantor Performance Materials B.V., Deventer, The Netherlands | JT-9012-03 | |
| Dichlorofrom | Fisher Scientific GmbH, Schwerte, Germany | 1530754 | |
| DMSO (Dimethyl sulfoxide) | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 4720.1 | |
| DMSO-d6 (Dimethyl sulfoxide-d6) 99.9 atom% D | ARMAR Chemicals, Döttingen, Switzerland | 15200.204 | |
| Ethyl acetate | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 6784.4 | |
| Hydrochloric | acid Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 6331.4 | |
| Methanol | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 7342.1 | |
| Enzymes | |||
| 制限酵素 | New England Biolabs GmbH, Frankfurt am Main, Germany | ||
| ポリメラーゼ | New England Biolabs GmbH, Frankfurt am Main, Germany | ||
| DNA Polymerase I Large (Klenow) Fragment | Promega GmbH, Mannheim, Germany | ||
| Antibiotics | |||
| apramycin | AppliChem GmbH, Darmstadt, Germany | A7682.0005 | |
| fosfomycin | Sigma-Aldrich Chemie GmbH, Taufkirchen, Germany | P5396-50G | |
| kanamycin | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | T832.2 | |
| Plasmid/Vectors | |||
| pKC1132 | Bierman et al. 1992 | ||
| Primer | |||
| pokPI_for | TGATGGTGCCGCTGGCCATGG PGCGTGTGCCCccatgg | ||
| pokPI_rev | AGCGTTCACTGTTCCCCCCGAC | ||
| Bacterial strains | |||
| Bacillus subtilis COHN ATCC6051 | グラム陽性試験株 | ||
| Escherichia coli ET12567 pUZ8002 | MacNeil et al. 1992 | strain for conjugation | |
| Escherichia coli XL1 Blue | Agilient Technologies, Santa Clara, USA | グラム陰性試験株+クローニングホスト | |
| Streptomyces diastatochromogenes Tü6028 | Paululat et al., 1999 | Polyketomycin producer | |
| Online services | |||
| antismash (Antibiotics and Secondary Metabolite Analysis Shell) | http://antismash.secondarymetabolites.org/ | Detection of secondary metabolite gene cluster | |
| BLAST (Basic Local Alignment Search Tool) | http://blast.ncbi.nlm.nih.gov/Blast.cgi | 生物学的配列 | |
| GenDB | https://www.uni-giessen.de/fbz/fb08/Inst/bioinformatik/software/gendb | ORFs | |
| MiBIG (Minimum Information about a Biosynthetic Gene cluster) | http://mibig.secondarymetabolites.org/ | Database of biosyntetic gene clusters | |
| NaPDoS | http://napdos.ucsd.edu/ | Detection of seconary metabolite gene cluster | |
| NCBI Prokaryotic Genome Annotation Pipeline | http://www.ncbi.nlm.nih.gov/genome/annotation_prok/ | Annotation of ORFs | |
| NRPSpredictor | http://nrps.informatik.uni-tuebingen.de/ | NRPSドメイン | |
| Prokka (rapid prokaryotic genome annotation) | http://www.vicbioinformatics.com/software.prokka.shtml | ORFsのアノテーション | |
| RAST(高速アノテーション・システム技術) | http://rast.nmpdr.org/ | ORFのアノテーション | |
| その他のプログラム | |||
| Chem Station Rev. A.09.03 | Agilent Technologies, Waldbronn, Germany | HPLCの取り扱いプログラム | |
| Clone Manager Suite 7 | 科学および教育用ソフトウェア、米国ケーリー | クローニング実験の設計 | |
| Newbler v2.8 | Roche Diagnostics | シーケンシングリードのアライメント reads | |
| Machines | |||
| Centrifuge Avanti J-6000, Rotor JA-10 | Beckman Coulter GmbH, Krefeld, Germany | ||
| HPLC/MS | Agilent Technologies, Waldbronn, Germany | ||
| _Autosampler: G1313A | Agilent Technologies, Waldbronn, Germany | ||
| _Pre-column: XBridge C18 (20 mm x 4.6 mm;粒子サイズ:3.5 & マイクロ;m) | Agilent Technologies, Waldbronn, Germany | ||
| _Column:Xbridge C18 (100 mm × 4.6 mm;粒子サイズ:3.5 μm) | Agilent Technologies, Waldbronn, Germany | ||
| _semi-prep Pre-Column: Zorbax B-C18 (9.4 x 150 mm;粒子サイズ:5 & マイクロ;m) | Agilent Technologies, Waldbronn, Germany | ||
| _semi-prep カラム: Zorbax B-C18 (9.4 x 20 mm;粒子サイズ:5 & マイクロ;m) | Agilent Technologies, Waldbronn, Germany | ||
| _Degasser: G1322A | Agilent Technologies、ヴァルトブロン、ドイツ | ||
| _Quarternaryポンプ:G1311A | Agilent Technologies、ヴァルトブロン、ドイツ | ||
| _Diodeアレイ検出器(DAD)G1315B(λ = 254 nmおよび400 nm) | Agilent Technologies、ヴァルトブロン、ドイツ | ||
| _Quadrupole質量検出器(MSD)G1946D(2-3000 m / z) | Agilent Technologies、ヴァルトブロン、ドイツ | ||
| ロータリーエバポレーター | |||
| _heatingバス Hei-VAP Value/G3 | Heidolph Instruments GmbH & Co.KG, Schwabach, Germany | ||
| _vacuum pump system SC 920 G | KNF グローバル戦略 AG, Sursee, Switzerland | ||
| その他の素材 | |||
| Sephadex LH20 | GE Healthcare, | ||
| クロマフィルPVDF-45 / 15MS(細孔サイズ0.45 & micro;m;フィルター&オスラッシュ;15 mm) | MACHEREY-NAGEL GmbH & Co. KG, Düren, ドイツ | ||
| SPE カラム Oasis HLB 20 35 cc (6g) | Waters GmbH, Eschborn, Germany | ||
| 大腸菌 | Carl Roth GmbH + Co. KG, カールスルーエ, | ドイツ 媒体: LB, 組成: LB, 1 L H2O: 20 g | |
| Bacillus | Carl Roth GmbH + Co. KG, カールスルーエ, | ドイツ 媒体: LB, 組成: LB, 1 L H2O: 20 g | |
| Streptomyces sp. | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 媒体: TSB, 組成: CASO Boullion, 1 L H2O: 30 g | |
| 菌類 | Carl Roth GmbH + Co. KG、カールスルーエ、ドイツ | 媒体:YPD、組成:酵母抽出物、1 L H2O:10 g | |
| 菌 | Carl Roth GmbH + Co. KG, Karlsruhe, Germany | 媒体: YPD, 組成: ペプトン, 1 L H2O: 20 g | |
| 菌類 | Carl Roth GmbH + Co. KG、カールスルーエ、ドイツ | 媒体:YPD、組成:グルコース、1 L H2Oへの量:20 g | |
| 寒天プレートの場合、2%寒天を追加します |
参考文献
- Fleming, A. On the antibacterial action of cultures of a penicillin, with special reference to their use in isolation of B. influenzae. Br J Exp Pathol. 10 (3), 226-236 (1929).
- Lemke, A., Kiderlen, A. F., Kayser, O. Amphotericin B. Appl. Microbiol. Biotechnol. 68 (2), 151-162 (2005).
- Kirkpatrick, P., Raja, A., LaBonte, J., Lebbos, J. Daptomycin. Nat. Rev. Drug Discov. 2 (12), 943-944 (2003).
- Zakeri, B., Wright, G. D. Chemical biology of tetracycline antibiotics. Biochem. cell Biol. 86 (2), 124-136 (2008).
- Schatz, A., Bugle, E., Waksman, S. A. Streptomycin, a Substance Exhibiting Antibiotic Activity Against Gram-Positive and Gram-Negative Bacteria. Exp. Biol. Med. 55 (1), 66-69 (1944).
- Burg, R. W., et al. Avermectins, new family of potent anthelmintic agents: producing organism and fermentation. Antimicrob. Agents Chemother. 15 (3), 361-367 (1979).
- Egerton, J. R., Ostlind, D. A., et al. Avermectins, new family of potent anthelmintic agents: efficacy of the B1a component. Antimicrob. Agents Chemother. 15 (3), 372-378 (1979).
- Walsh, C. T., Fischbach, M. A. Natural products version 2.0: connecting genes to molecules. J. Am. Chem. Soc. 132 (8), 2469-2493 (2010).
- Momose, I., et al. Polyketomycin, a new antibiotic from Streptomyces sp. MK277-AF1. II. Structure determination. J. Antibiot. (Tokyo). 51 (1), 26-32 (1998).
- Paululat, T., Zeeck, A., Gutterer, J. M., Fiedler, H. P. Biosynthesis of polyketomycin produced by Streptomyces diastatochromogenes.Tü6028. J. Antibiot. (Tokyo). 52 (2), 96-101 (1999).
- Momose, I., et al. Polyketomycin, a new antibiotic from Streptomyces. sp. MK277-AF1. I. Taxonomy, production, isolation, physico-chemical properties and biological activities. J. Antibiot. (Tokyo). 51 (1), 21-25 (1998).
- Daum, M., et al. Organisation of the biosynthetic gene cluster and tailoring enzymes in the biosynthesis of the tetracyclic quinone glycoside antibiotic polyketomycin. Chembiochem. 10 (6), 1073-1083 (2009).
- Bode, H. B., Bethe, B., Höfs, R., Zeeck, A. Big effects from small changes: possible ways to explore nature's chemical diversity. Chembiochem. 3 (7), 619-627 (2002).
- Wolfender, J. -L. HPLC in Natural Product Analysis: The Detection Issue. Planta Med. 75 (07), 719-734 (2009).
- Stahl, E. Thin-layer chromatography. A laboratory handbook. , 2nd edition (1967).
- Snyder, L. R., Kirkland, J. J., Glajch, J. L. Preparative HPLC Separation. Pract. HPLC Method Dev. , 616-642 (2012).
- Granath, K. A., Kvist, B. E. Molecular weight distribution analysis by gel chromatography on sephadex. J. Chromatogr. A. 28, 69-81 (1967).
- Jackman, L. M., Sternhell, S. Application of Nuclear Magnetic Resonance Spectroscopy in Organic Chemistry. Int. Ser. Org. Chem. , (1969).
- Xian, F., Hendrickson, C. L., Marshall, A. G. High resolution mass spectrometry. Anal. Chem. 84 (2), 708-719 (2012).
- Metzker, M. L. Sequencing technologies - the next generation. Nat. Rev. Genet. 11 (1), 31-46 (2010).
- Tatusova, T., et al. Prokaryotic Genome Annotation Pipeline. NCBI Handb. 2nd Ed. , (2013).
- Angiuoli, S. V., et al. Toward an online repository of Standard Operating Procedures (SOPs) for (meta)genomic annotation. OMICS. 12 (2), 137-141 (2008).
- Aziz, R. K., et al. The RAST Server: rapid annotations using subsystems technology. BMC Genomics. 9, 75(2008).
- Overbeek, R., et al. The SEED and the Rapid Annotation of microbial genomes using Subsystems Technology (RAST). Nucleic Acids Res. 42, 206-214 (2014).
- Brettin, T., et al. RASTtk: a modular and extensible implementation of the RAST algorithm for building custom annotation pipelines and annotating batches of genomes. Sci. Rep. 5, 8365(2015).
- Seemann, T. Prokka: rapid prokaryotic genome annotation. Bioinformatics. 30 (14), 2068-2069 (2014).
- Meyer, F. GenDB--an open source genome annotation system for prokaryote genomes. Nucleic Acids Res. 31 (8), 2187-2195 (2003).
- Altschul, S. F., Gish, W., Miller, W., Myers, E. W., Lipman, D. J. Basic local alignment search tool. J. Mol. Biol. 215 (3), 403-410 (1990).
- Madden, T. The BLAST Sequence Analysis Tool. NCBI Handb. 2nd Ed. , Chapter 16 (2003).
- Marchler-Bauer, A., et al. CDD: NCBI's conserved domain database. Nucleic Acids Res. 43, (Database issue) 222-226 (2014).
- Medema, M. H., et al. antiSMASH: rapid identification, annotation and analysis of secondary metabolite biosynthesis gene clusters in bacterial and fungal genome sequences. Nucleic Acids Res. 39, (Web Server issue) 339-346 (2011).
- Blin, K., et al. antiSMASH 2.0--a versatile platform for genome mining of secondary metabolite producers. Nucleic Acids Res. 41, (Web Server issue) 204-212 (2013).
- Weber, T., et al. antiSMASH 3.0 - a comprehensive resource for the genome mining of biosynthetic gene clusters. Nucleic Acids Res. 43, (W1) 237-243 (2015).
- Ziemert, N., et al. The natural product domain seeker NaPDoS: a phylogeny based bioinformatic tool to classify secondary metabolite gene diversity. PLoS One. 7 (3), 34064(2012).
- Rausch, C., Weber, T., Kohlbacher, O., Wohlleben, W., Huson, D. H. Specificity prediction of adenylation domains in nonribosomal peptide synthetases (NRPS) using transductive support vector machines (TSVMs). Nucleic Acids Res. 33 (18), 5799-5808 (2005).
- Röttig, M., et al. NRPSSpredictor2--a web server for predicting NRPS adenylation domain specificity. Nucleic Acids Res. 39, (Web Server issue) 362-367 (2011).
- Medema, M. H., et al. Minimum Information about a Biosynthetic Gene cluster. Nat. Chem. Biol. 11 (9), 625-631 (2015).
- Mullis, K., et al. Specific enzymatic amplification of DNA in vitro: the polymerase chain reaction. Cold Spring Harb. Symp. Quant. Biol. 51, Pt 1 263-273 (1986).
- Bierman, M., et al. Plasmid cloning vectors for the conjugal transfer of DNA from Escherichia coli to Streptomyces spp. Gene. 116 (1), 43-49 (1992).
- Froger, A., Hall, J. E. Transformation of plasmid DNA into E. coli.using the heat shock method. J. Vis. Exp. (6), e253(2007).
- Bimboim, H. C., Doly, J. A rapid alkaline extraction procedure for screening recombinant plasmid DNA. Nucleic Acids Res. 7 (6), 1513-1523 (1979).
- MacNeil, D. J., et al. Analysis of Streptomyces avermitilis. genes required for avermectin biosynthesis utilizing a novel integration vector. Gene. 111 (1), 61-68 (1992).
- Pospiech, A., Neumann, B. A versatile quick-prep of genomic DNA from Gram-positive bacteria. Trends Genet. 11 (6), 217-218 (1995).
- Makitrynskyy, R., et al. Pleiotropic regulatory genes bldA, adpA and absB are implicated in production of phosphoglycolipid antibiotic moenomycin. Open Biol. 3 (10), 130121(2013).
- Kalan, L., et al. A cryptic polyene biosynthetic gene cluster in Streptomyces calvus is expressed upon complementation with a functional bldA gene. Chem. Biol. 20 (10), 1214-1224 (2013).
- Gessner, A., et al. Changing Biosynthetic Profiles by Expressing bldA in Streptomyces Strains. ChemBioChem. 16 (15), 2244-2252 (2015).
再版と許可
