このプロトコルは、凍結した非ヒト霊長類膵島から高品質の核を単離し、単一核同時RNAシーケンシングおよびATACシーケンシングで使用すると同時に、同じサンプルからのメタボローム分析のためのバルク細胞質画分を保持する手順を説明しています。
方法論記事
単一核RNAシーケンシングとATACシーケンシングの組み合わせ、およびバルクメタボロミクスのための凍結非ヒト霊長類胎児膵島の調製
この記事について
サマリー
要約
複数のコホートから採取した組織を用いた研究における課題の1つは、シングルセルRNAシーケンシングやメタボロミクスを組み合わせた大規模なマルチオミクス実験の準備において、バッチ効果を回避することです。現在の研究では、2年間にわたって収集された胎児の非ヒト霊長類からの瞬間凍結膵島を利用して、単一核RNAシーケンシングおよびATACシーケンシングアッセイにインプットします。核抽出中に生成された細胞質画分は、下流のキャピラリー電気泳動-質量分析およびその後の代謝物定量のために保持されました。この方法により、実験条件内のトランスクリプトームおよびエピゲノムのランドスケープの変化に寄与する代謝物のバルク分析が可能になります。多くの組織タイプに適用でき、容易に入手できないサンプルから抽出できる情報量を最大化します。エピジェネティックな修飾 による 細胞同一性の確立に対する代謝の寄与がますます評価されるようになるにつれて、特定の細胞タイプにおける代謝産物の寄与を同定することを可能にする技術はタイムリーかつ必要とされています。
概要
ランゲルハンスの膵島は、生涯を通じて耐糖能の管理に重要です。グルコース低下ホルモン、インスリン、またはグルコース上昇ホルモンであるグルカゴンを介して血糖値を適切に調整しないと、1型糖尿病が発生します。糖尿病のリスクを最小限に抑えるための修正可能な危険因子には、運動と食事が含まれます。また、妊娠中の母親の食事も、成人期の子孫の糖尿病に対する感受性に影響を与えることが明らかになりつつあります2,3。したがって、母親の食事や妊娠中に使用される薬などの他の曝露が、発生中のモデル生物のインスリン産生ベータ細胞に及ぼす影響を分析する方法が必要です。例えば、胎児の非ヒト霊長類(NHP)の子孫の膵島は、発生曝露の影響について評価することができる。人間と同様に、NHPは通常、シングルトン出産をしており、西洋式の食事摂食に対する生理学的反応が異なります4。NHPの妊娠と胎児の発育はヒトと多くの類似点を共有しており、代謝プログラミング研究に非常に関連性の高い種となっていますが、NHPの子孫に対して比較バイオインフォマティクスアッセイを実施する際の課題には、交配期間の制限と断続的なサンプル収集が含まれます。したがって、サンプルの処理と分析の前に長期保存できるアプローチが理想的です。このプロトコルでは、単一核RNAシーケンシング、ATACシーケンシング、およびバルク細胞質メタボロミクスのためのサンプル調製について説明します。
膵島生物学分野の他の研究者による研究では、単一細胞RNAシーケンシングと単一核RNAシーケンシングによって調製されたサンプルで観察された遺伝的シグネチャーに重複があることが実証されています5,6。どちらの方法も、膵島集団内のさまざまな細胞タイプ間の特徴を区別するのに役立つ転写産物の同定を可能にします。瞬間凍結組織に中性洗剤を使用することで、無傷の核を同時にATACシーケンシングに使用できるため、アクセス可能なクロマチン領域を決定できます。単一核RNAシーケンシングとATACシーケンシングを組み合わせることで、遺伝子制御ネットワークの特性評価を向上させることができます7。
メタボロミクス用のサンプル調製は、従来、液体クロマトグラフィーのための大容量サンプルインプットの必要性によって制限されてきました。さらに、質量分析データに誤ったNMRピークが生じないように、サンプル調製中に使用するバッファーを慎重に検討する必要があります。霊長類の研究で取得するのが困難で費用がかかるサンプルの数が少ないことを考えると、トランスクリプトーム実験とメタボローム実験に対する異なる子孫の膵島の割り当ては困難になる可能性があります。したがって、このプロトコルは、細胞分画中に生成される通常は廃棄される細胞質分画を単一核実験に利用します。この方法により、膵島内で産生される代謝産物を定量的に測定しながら、胎児膵島の細胞サブセットを定義する転写産物とオープンクロマチン領域の同時特性評価が可能になります(図1)。このプロトコルは、10x genomicsによって発表された、瞬間凍結胚性マウス脳組織からの核の単離に関する実証済みのプロトコル(バージョンCG000366 Rev D8)7から適応されています。
プロトコル
膵島の回収は、オレゴン国立霊長類研究センター(ONPRC)およびオレゴン健康科学大学の動物管理および使用委員会(IACUC)のガイドラインに従って実施され、ONPRC IACUCによって承認されました。ONPRCは、動物福祉法および米国農務省(USDA)が施行する規制、および人道的なケアと実験室の使用に関する公衆衛生サービスポリシーを遵守しています。本明細書のプロトコルは、妊娠145日目(アカゲザルの妊娠期間は典型的には173〜175日)に剖検された胎児のアカゲザルからの膵島に適用した。本試験に使用した試薬および機器の詳細は、 資料表に記載されています。
1.膵島の分離
- 周囲の組織9 から胎児の膵臓を切除し、氷冷リン酸塩緩衝生理食塩水に入れる。
- PBSから膵臓を取り出し、33Gのげっ歯類脳カニューレ注射器を使用して膵管のカニューレ挿入 を介して コラゲナーゼP(0.6 mg / mL)で膨らませます。.
- 滅菌手術用ハサミで膵臓を6つのセクションに分け、コラゲナーゼ溶液中で37°Cで27〜30分間消化します。
- 10% FBS と 100 U/mL のペニシリン/ストレプトマイシンを RPMI 1640 に組み合わせて RT 培地を調製します。
- コラゲナーゼを流し込み、10 mLのRT培地を加えます。
- 1分間静かに振とうして、残りの結合組織を破壊します。
- 未消化の物質は、500 μmのフィルターで濾して除去します。
- 膵島を50mLのRT培地で2回洗浄します。
- ウシDNase I(0.8 U/mL)の膵島を37°Cの水浴で10分間インキュベートします。
- 膵島をRT培地で一晩、ウシDNase I(0.4 U/mL)を37°C、5%CO2で培養します。
- 膵島を周囲温度で専用包装し、温度制御ゲルパックで出荷します。
2.長期保管用のサンプルバンキング
- スケーリングされたレチクルを使用して膵島のサイズを評価し、準備中の腺房組織と管組織の程度に注意してください。.
- 自動ピペットで膵島を5 mLの2.8 mMグルコースDMEMが入った60 mmディッシュにハンドピックします。
注:最終的な膵島の準備に貯蔵される腺房組織と乳管組織の量を最小限に抑えることが不可欠です。理想的な使用島の詳細は、以前のプロトコル9で報告されている。 - 膵島を1.5 mLチューブにピッキングし、~300 x g で4°Cで5分間遠心します。
- カルシウムおよびマグネシウムを含まない1x PBSで膵島を再懸濁しました。
- 4°Cで~300 x g で5分間遠心します。 上清を捨てます。
- 手順2.3〜2.5をさらに2回繰り返します。
- 膵島を1.5mLチューブに入れ、液体窒素中で10秒間急速凍結します。
- ペレットは、核分離の日まで-80°Cで保管してください。
3. 核および細胞質画分を単離するための細胞分画
- 核抽出用バッファーの調製(表1)。
- ベンチ、ピペット、および試薬がRNaseフリーであることを確認してください。
- 表1に従って、洗浄液、濃縮溶解液、溶解希釈液、および希釈した核緩衝液を調製します。
- 5 mLチューブに0.1x溶解バッファーを調製し、溶解希釈バッファーを使用して濃縮溶解バッファーを希釈します。
- 組織の均質化
- サンプルを-80°Cの冷凍庫から取り出し、すぐに氷の上に置きます。
- 500 μLの0.1x溶解バッファーを組織ペレットに加え、氷上で3分間インキュベートします。
- 使い捨てのRNaseフリーペレット乳棒を使用して、氷上で組織を15回穏やかに均質化します。
- サンプルを氷上で10分間インキュベートします。
- ホモジネートに500 μLの洗浄バッファーを加え、氷上で静かにピペットで泳ぎます。
- 30 μmのプレセパレーションフィルターをプライミングするには、5 mLチューブ上に300 mLの洗浄バッファーをフィルターに加えます。
- 30 μMのプレセパレーションフィルターを使用して、1 mLの細胞ホモジネートを5 mLチューブにろ過します。
- ろ過したホモジネートを500 x g で5分間、スイングバケット遠心分離機で4°Cで遠心します。
- メタボロミクスのための上清の収集と保管
- ステップ3.2.8の上清1 mLをピペットで取り除き、氷上の1.5 mLのクライオバイアルに加えます。
- 上清を直ちに-80°Cで凍結します。 この上清はメタボロミクスに使用されます。
- 単一核RNAおよびATACシーケンシングのための核の調製
- 1 mLの洗浄バッファーをペレットに滴下して、核ペレットを穏やかに再懸濁します。ゆっくりと5回ピペットで挟みます。
- 洗浄したペレットを1000 x g で5分間、スイングバケット遠心分離機で4°Cで回転させます。
- 手順 3.4.1 と 3.4.2 をもう一度繰り返します。
- 最終洗浄後、核を1 mLの洗浄バッファーに再懸濁します。核の準備は氷の上に置いてください。
- 10 μLの核懸濁液をピペットで吸引し、10 μLの0.4% Trypan blueと穏やかにピペッティングして混合します。
- 核とトリパンブルーの混合物10μLをピペットで自動セルカウンタースライドに加え、装置に入れます。
- 核濃度を核/μLで測定します。
注:シングルセルRNAシーケンシング用の細胞調製物とは異なり、自動セルカウンターは核を死細胞として検出します。この調製物の95%以下が自動セルカウンターでライブ化されるべきです。核集団の5%以上が生きている場合、核懸濁液を30μmのプレセパレーションフィルターでさらに時間をろ過し、1000 x g 、4°Cで5分間遠心することができます。 その後、ステップ3.4.6で概説したように核濃度を再計算できます。 - 所望の標的核回収率に基づいて、1x nuclei bufferを用いて核を必要な濃度に再懸濁し、単一核RNAおよびATACシーケンシングライブラリー調製10に進む。
4. キャピラリー電気泳動-質量分析(CE-MS)のための細胞質画分の調製
- ステップ 3.3.1 で収集した 80 μL の細胞質画分と、内部化された標準物質を含む 20 μL のナノ純水とを組み合わせます。
- CE-MSと分析は、前述の11,12,13に従って進めます。
結果
シーケンシング出力の品質は、核入力の品質に大きく依存します。核のブレブや外側の核膜の損傷により、分析中に周囲のRNAとDNAが汚染され、データにノイズが入ります。純粋な核抽出物は、細胞質成分でカプセル化された核の証拠が最小限であること(図2A)または核の破裂によって証明される過剰消化(図2B)の証拠が少なくなります。理想的な核インプットには、無傷の原子核が含まれます(図2C)。
単一核のRNAおよびATACシーケンシングデータの解析の詳細は、他の場所で広く提供されている5,14。胎児のNHP核調製物からの細胞集団の代表的なクラスターは、図3AのUMAPを介して示されています。メタボロミクスのデータは、前述の15のように、オープンソースのソフトウェアを用いて容易に解析することができる。生成されたスペクトルを視覚化し、WSD給水ダムからの胎児膵島内の濃縮代謝物をCD給餌ダムからの代謝物と比較できます(図3B-F)。
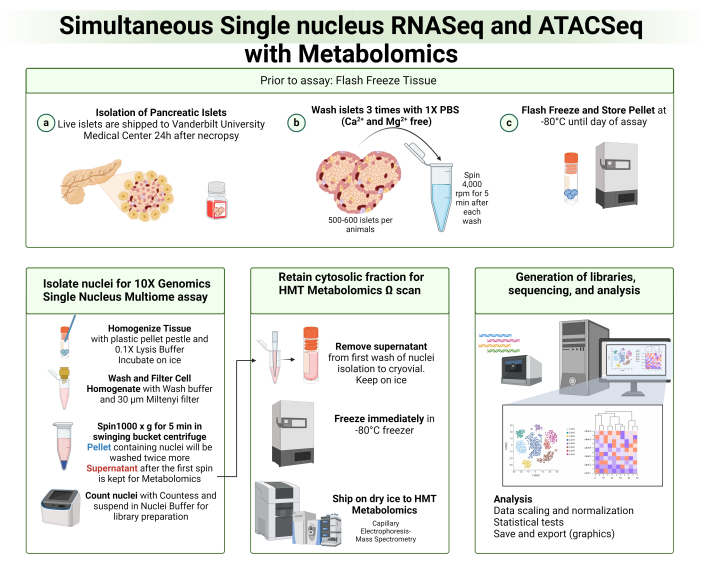
図1:核および細胞質画分の単離のためのプロトコールの概要。 胎児の膵島は、アッセイの日まで-80°Cでバンクされ、保存されました。核を単離し、単一核RNAおよびATACシーケンシングに利用しました。核単離の最初の洗浄後の細胞質画分は、キャピラリー電気泳動-質量分析のために保持されました。 この図の拡大版を表示するには、ここをクリックしてください。
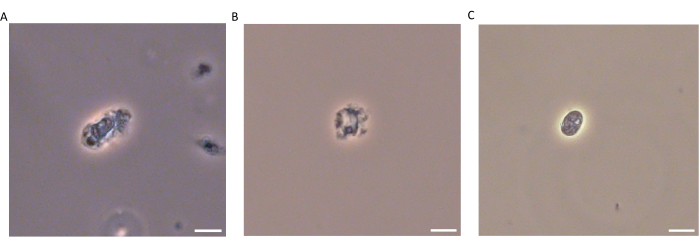
図2:単一核マルチオミクスアッセイへの適切な核インプットのデモンストレーション。 (A)細胞質によってカプセル化された核、(B)核膜が損なわれた破裂性核、および(C)丸みを帯びた形態の無傷の核の例。スケールバー:10μmこの 図の拡大版を表示するには、ここをクリックしてください。
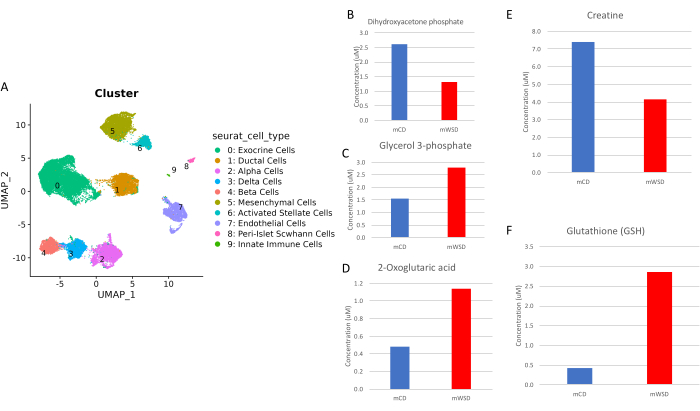
図3:単一核マルチオミクスとバルクメタボロミクスを組み合わせた代表的なデータ。 (ア) 遺伝子発現に基づく単離された胎児NHP膵島内の細胞サブタイプのUMAPクラスタリング。単離された胎児NHP島からの細胞質画分中の解糖代謝産物、(B)ジヒドロキシアセトンリン酸および(C)グリセロール-3-リン酸の定量的推定 ダムにWSD(mWSD)またはCD(mCD)が供給された場合。母親の食事療法はまた、(D)クエン酸回路(2-オキソグルタル酸)、(E)アミノ酸代謝(クレアチン)、および(F)胎児膵島の細胞酸化還元状態(グルタチオン)を変更することにより、代謝を異なる方法で調節する可能性があります。この図の拡大版を表示するには、ここをクリックしてください。
表1:核を単離するための緩衝液の組成。 核、溶解、溶解希釈、および洗浄バッファーの詳細な成分が示されています。必要に応じて、バッファーを調製する前に試薬をストック濃度まで希釈してください。 この表をダウンロードするには、ここをクリックしてください。
ディスカッション
歴史的に、単一核のRNAおよびATACシーケンシングのための核単離の方法は、代謝物定量に使用される一般的な技術である液体クロマトグラフィー質量分析(LC-MS)と互換性のない界面活性剤を含むバッファーを利用してきた16,17。現在のプロトコルでは、細胞分画に穏やかな界面活性剤を使用し、この分画に続いてキャピラリー電気泳動でこの分画を行うことにより、同じサンプル調製からトランスクリプトーム技術とメタボローム技術を組み合わせることができます。この技術は、代謝産物の分離のために液体クロマトグラフィーと比較してより少ないサンプルインプットを必要とする技術です18。
このプロトコルの最も重要な側面は、遺伝物質の劣化を回避し、周囲のヌクレオチドや高分子による汚染を減らすために、核単離中に核膜を保存することです。溶解バッファーへのサンプル曝露時間を調整して、組織の過剰消化や核の損傷を回避できます。さらに、遺伝物質や代謝産物の分解を避けるためには、サンプルバンク中の膵島や細胞質画分を含む上清の急速凍結が不可欠です。すべてのサンプルは、培養培地中の栄養素の利用可能性による代謝の変化による交絡効果を避けるために、同じ培地製剤(この研究では2.8 mMグルコースDMEM)から収集する必要があります。
この複合メタボロームアプローチの限界は、核の単離に使用される界面活性剤のために、一部の代謝物が捕捉されない可能性があることです。したがって、より完全な代謝物分析のために、このアプローチは、凍結組織からの分析と、非有機洗浄バッファーと LC-MS を使用した単離代謝物で補完できます。推奨される補足的アプローチは、臓器内の代謝変化を特定するためのMALDI-MS を介した 標的空間メタボロミクスです19。さらに、同じ核内の転写産物の変動性とクロマチンアクセシビリティを評価するための現在の技術は、ATACシーケンシングのシーケンシング深度が浅いために制限されています。データ解析では、研究者はデータセット内の特定のサブクラスターではなく、広範な細胞クラスター内のオープンクロマチン領域のみを評価できます。
容易に入手できない組織、特にヒトやヒト以外の霊長類の組織の使用が頻繁に行われるようになると、生物学的複製から抽出できる情報量を最大化することが不可欠になります。上記のマルチオミクスアプローチにより、研究者は、細胞代謝がそのような変化にどのように寄与したかを考慮しながら、細胞同一性の主要なプロモーター周辺のピーク可用性と遺伝的シグネチャを関連付けることができます。細胞調製物に多く存在する代謝物を特定することで、細胞サブタイプの特定を特定の系統に推進する特定のエピジェネティックな修飾の手がかりが得られます。実際、トランスクリプトーム実験とメタボローム実験の知見を統合するための新しいプロトコルが確立されているが、それは異なる組織源からのものである20。このプロトコルの重要性は、クロマチンアクセシビリティ、転写変化、および代謝物濃縮を単一のサンプルインプットから評価できることです。この手法の将来の応用により、希少疾患の患者からの組織など、まばらなサンプル集団から取得した組織の疾患状態をより適切に特徴付けることができます。膵島生物学の分野では、遺伝子制御ネットワークの特性評価と相関する代謝シグネチャーは、ベータ細胞の同一性と機能を維持して糖尿病の発症を回避するメカニズムに関する重要な洞察を提供することができます。
開示事項
著者は、利益相反を宣言しません。
謝辞
著者らは、オレゴン健康科学大学のチーム全員に、非ヒト霊長類のコロニーの世話をし、組織を取得してくれたことに感謝したいと思います。さらに、Vanderbilt Technologies for Advanced Genomicsは、技術的な専門知識と実験デザインのアドバイスを提供しました。DTCは、NIH/NIDKのF31博士課程前フェローシップ(1F31DK135164)の支援を受けました。PKはNIH/NIDDK(1R01DK128187)によってサポートされました。MGは、VA Merit Award(I01 BX005399)、NIH/NIDDK(1R01DK135032、1R01DK128187)、JDRF(2-SRA-2024-1455-S-B)の支援を受けました。オレゴン国立霊長類研究センター(ONPRC)での作業は、センターの運営支援のためにP51OD011092によって支援されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 33 G ラット脳カニューレ注射器 | プロテック インターナショナル | 8IC315IS5SPC | 管カニューレ挿入および膵臓拡張用 |
| ペニシリン/ストレプトマイシン | フィッシャー | 15-140-122 | RT メディア用 |
| FBS | ミリポア/シグマ | F4135-500ML | RT メディア用 |
| RPMI 1640 | サーモフィッシャーサイエンティフィック | 11-875-135 | RT メディア用 |
| コラゲナーゼ P | シグマ・アルドリッチ | 11213865001 | 膵臓の消化用 |
| ウシ Dnase I | シグマ・アルドリッチ | 11284932001 | RT培地および単離用 |
| デキストロース | フィッシャー | D16-1 | 最終濃度は2.8 mM |
| 塩化カルシウム | フィッシャー | C4901-500G | 最終濃度は0.5 mM |
| HEPES | Gibco | 15630-080 | 最終濃度は 10 mM |
| ウシ血清アルブミン (BSA) フラクション 5 | 研究製品 国際 | A30075100 | 最終濃度は 0.5 mg/mL |
| ダルベッコのモディファイド イーグル ミディアム | ギブコ | 11966025 | ハンドピッキング用 膵島 |
| 20x Nuclei バッファー | 10X Genomics | 2000153/2000207 | |
| ジジトニン (5%) | モフィッシャーサイエンティフィック | BN2006 | ジギトニンは65°Cに温める必要があるかもしれません。Cは、白い沈殿物 |
| MACS SmartStrainers(30µM) | Miltenyi Biotec | 130-098-458 | |
| MACS BSAストック溶液(10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | |
| 塩化ナトリウム溶液、5 M | Sigma Aldrich | S6546-1L | |
| 塩化マグネシウム溶液、1 M | Sigma Aldrich | M1028-100mL | |
| Sigma Protector Rnase 阻害剤 | Sigma Aldrich | 3335402001 | |
| DTT | Research Products International | D11000-5.0 | |
| Rnase-Free 使い捨てペレット乳棒 | Fisher Scientific | 12-141-368 | |
| Tween 20 | Fisher Bioreagents | BP337-500 | MilliQ ウォーター |
| クレアーゼフリーウォーター | Promega | PR-P1193 | |
| DNA LoBind チューブ (5 mL) | Eppendorf | 30108310 | |
| Cryovials (1.5 mL) | VWR | 20170-225 | |
| Posi-Click Tubes (0.6 mL) | Denville | C-2177 | |
| Trypan Blue (0.4%) | サーモフィッシャーサイエンティフィック | T-10282 | |
| デュアルチャンバーセルカウンティングスライド | バイオ・ラッド | 1450011 | |
| MiiliQ 超純水システム | ミリポア/シグマ | 7003/05/10/15 | |
| 5 kDa カットオフフィルター | HMT メタボロームテクノロジー | ||
| ズ 内部標準 | HMT メタボロームテクノロジー | ||
| P10、P20、P200、P1000 ピペット | エッペンドルフ | 2231000602 | |
| ピペットチップ、10 & マイクロ;L | VWR | 76322-528 | |
| ピペットチップ、1000 µL | サーモフィッシャーサイエンティフィック | 21-236-2A | |
| ピペットチップ、20 & マイクロ;L | Genesee Scientific | 23-404 | |
| ピペットチップ、200 & マイクロ;L | USA Scientific | 1120-8810 | |
| 位相差顕微鏡 | Olympus | BX41-PH-B | |
| Countess II 自動セルカウンター | Thermo Fisher Scientific | AMQAX1000 | |
| DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R 遠心分離機 | Beckman-Coulter | B06315 | |
| RNase-ZAP | Sigma Aldrich | R2020 |
参考文献
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
再版と許可
