이 프로토콜은 단일 핵 동시 RNA 염기서열 분석 및 ATAC 염기서열 분석에 사용하기 위해 냉동된 비인간 영장류 췌장 섬에서 고품질 핵을 분리하는 동시에 동일한 샘플의 대사체 분석을 위한 벌크 세포질 분획을 보존하는 절차를 설명합니다.
방법 논문
단핵 RNA 염기서열분석 및 ATAC-염기서열분석, 벌크 대사체학을 결합하기 위한 냉동 비인간 영장류 태아 섬의 준비
이 논문에서
요약
초록
여러 코호트에서 수집된 조직을 사용하는 연구의 한 가지 과제는 결합된 단일 세포 RNA 염기서열 분석 및 대사체학과 같은 대규모 다중 오믹 실험을 준비할 때 배치 효과를 피하는 것입니다. 현재 연구의 방법은 단핵 RNA 염기서열 분석 및 ATAC 염기서열 분석 분석에 입력하기 위해 2년 동안 수집된 인간 외 태아 영장류의 급속 냉동 췌장 섬을 활용합니다. 핵 추출 중에 생성된 세포질 분획은 다운스트림 모세관 전기영동-질량 분석법 및 후속 대사 산물 정량화를 위해 유지되었습니다. 이 방법을 사용하면 실험 조건 내에서 변화하는 전사체 및 후성유전체학 환경에 기여하는 대사 산물의 대량 분석을 수행할 수 있습니다. 많은 조직 유형에 적용할 수 있으며 쉽게 구할 수 없는 샘플에서 추출할 수 있는 정보의 양을 최대화합니다. 후성유전학적 변형을 통한 세포 정체성 확립에 대한 대사의 기여가 더욱 높이 평가됨에 따라, 특정 세포 유형에서 대사 산물의 기여를 식별할 수 있는 기술이 시의적절하고 필요합니다.
서론
랑게르한스(Langerhans)의 췌장 섬은 일생 동안 포도당 내성을 관리하는 데 중요합니다. 포도당 저하 호르몬, 인슐린 또는 포도당 상승 호르몬을 통해 혈당 수치를 적절하게 조정하지 못하면 글루카곤은 진성 당뇨병1을 유발합니다. 당뇨병 위험을 최소화하기 위해 수정할 수 있는 위험 요인에는 운동과 식이요법이 포함됩니다. 또한, 임신 중 산모의 식단이 성인기에 자손이 당뇨병에 걸릴 가능성에 영향을 미친다는 것이 분명해지고있습니다 2,3. 따라서, 산모의 식단 및 임신 중 사용된 약물과 같은 기타 노출이 발달 중 모델 유기체의 인슐린 생산 베타 세포에 미치는 영향을 분석하기 위한 방법이 필요합니다. 예를 들어, 태아 비인간 영장류(NHP) 자손의 섬은 발달 노출의 영향에 대해 평가할 수 있습니다. 인간과 마찬가지로 NHP는 일반적으로 단태아로 태어나며 서양식 식단에 대한 생리적 반응이 다양하다4. NHP의 임신 및 태아 발달은 인간과 많은 유사점을 공유하여 대사 프로그래밍 연구에 매우 관련성이 높은 종이지만, NHP 자손에 대한 비교 생물정보학 분석을 수행하는 데 있어 제한된 짝짓기 시즌과 간헐적인 샘플 수집이 과제입니다. 따라서 시료 처리 및 분석 전에 장기간 보관할 수 있는 접근 방식이 이상적입니다. 이 프로토콜은 단핵 RNA 염기서열분석, ATAC-염기서열분석 및 벌크 세포질 대사체학을 위한 시료 준비에 대해 설명합니다.
섬 생물학 분야의 다른 사람들에 의한 연구는 단일 세포 RNA 시퀀싱 및 단일 핵 RNA 시퀀싱 5,6을 통해 준비된 샘플에서 관찰 된 유전 적 서명이 중복되는 것을 보여주었습니다. 두 방법 모두 섬 집단 내의 다양한 세포 유형 간의 특징을 구별하는 데 기여하는 전사체를 식별할 수 있습니다. 급속 동결 조직에 순한 세제를 사용하면 온전한 핵을 ATAC 염기서열분석에 동시에 사용할 수 있으며, 이를 통해 접근 가능한 염색질 영역을 측정할 수 있습니다. 단핵 RNA 염기서열분석과 ATAC-염기서열분석을 결합하면 유전자 조절 네트워크의 특성을 더 잘 분석할 수 있다7.
대사체학을 위한 시료 준비는 전통적으로 액체 크로마토그래피를 위한 높은 양의 시료 투입이 필요했기 때문에 제한되어 왔습니다. 또한 질량 분석 데이터에서 잘못된 NMR 피크를 피하기 위해 샘플 준비 중에 사용되는 완충액을 신중하게 고려해야 합니다. 영장류 연구에서 획득하기 어렵고 비용이 많이 드는 샘플의 수가 적다는 점을 감안할 때, 전사체 대 대사체 실험에 대해 서로 다른 자손의 섬을 할당하는 것은 어려울 수 있습니다. 따라서 이 프로토콜은 단일 핵 실험을 위해 세포 분획 중에 생성된 일반적으로 폐기되는 세포질 분획을 사용합니다. 이 방법을 사용하면 태아 섬에서 세포 subset을 정의하는 전사체와 개방 염색질 영역의 동시 특성 분석을 수행하는 동시에 섬 내에서 생성된 대사 산물을 정량적으로 측정할 수 있습니다(그림 1). 이 프로토콜은 급속 냉동 배아 마우스 뇌 조직에서 핵을 분리하기 위해 10x Genomics에서 발표한 입증된 프로토콜(버전 CG000366 Rev D8)7에서 채택한 것입니다.
프로토콜
섬 회수는 오레곤 국립 영장류 연구 센터(ONPRC) 및 오레곤 보건 과학 대학의 IACUC(Institutional Animal Care and Use Committee)의 지침에 따라 수행되었으며 ONPRC IACUC의 승인을 받았습니다. ONPRC는 미국 농무부(USDA)에서 시행하는 동물 복지법 및 규정과 인도적 관리 및 실험실 사용에 대한 공중 보건 서비스 정책을 준수합니다. 본 명세서의 프로토콜은 임신 145일(붉은털 원숭이 임신 기간은 일반적으로 173-175일)에 부사된 태아 붉은털원숭이의 섬에 적용되었다. 이 연구에 사용된 시약 및 장비의 세부 사항은 재료 표에 나열되어 있습니다.
1. 섬 고립
- 주위 조직9 에서 태아의 췌장을 절제하고 얼음처럼 차가운 인산염 완충 식염수에 넣는다.
- PBS에서 췌장을 제거하고 33G 설치류 뇌 캐뉼라 주입기를 사용하여 췌관의 캐뉼레이션을 통해 콜라겐분해효소 P(0.6mg/mL)로 팽창시킵니다.
- 멸균 수술용 가위로 췌장을 6개 부분으로 나누고 콜라겐분해효소 용액에서 37°C에서 27-30분 동안 소화합니다.
- 10% FBS와 100U/mL 페니실린/스트렙토마이신을 RPMI 1640에 결합하여 RT 매체를 준비합니다.
- 콜라겐분해효소를 붓고 10mL의 RT 배지를 추가합니다.
- 1분 동안 부드럽게 흔들어 나머지 결합 조직을 파괴합니다.
- 500μm 필터를 통해 걸러내어 소화되지 않은 물질을 제거합니다.
- 50mL의 RT 매체로 섬을 두 번 세척합니다.
- 소 DNase I(0.8 U/mL)의 작은 섬을 37°C 수조에서 10분 동안 배양합니다.
- 5 % CO2 로 37 ° C에서 소 DNase I (0.4 U / mL)를 사용하여 RT 매체에서 밤새 섬을 배양합니다.
- 온도 조절 젤 팩을 사용하여 주변 온도에서 특수 포장된 선박 섬을 배송하십시오.
2. 장기 저장을 위한 샘플 뱅킹
- 스케일링된 레티클을 사용하여 섬의 크기를 평가하고 준비 중인 침구 및 유관 조직의 정도를 확인합니다.
- 자동 피펫을 사용하여 5mL의 2.8mM 포도당 DMEM이 포함된 60mm 접시에 작은 섬을 직접 선택합니다.
알림: 최종 섬 준비에 저장될 침상 조직과 유관 조직의 양을 최소화하는 것이 필수적입니다. 사용하기에 이상적인 섬에 대한 자세한 내용은 이전 프로토콜9에 보고되어 있다. - 1.5mL 튜브에 작은 섬을 집어넣고 4°C에서 5분 동안 ~300 x g 으로 회전시킵니다.
- 칼슘과 마그네슘이 없는 1x PBS로 섬을 재현탁했습니다.
- 4°C에서 ~300 x g 에서 5분 동안 회전합니다. 상층액을 버리십시오.
- 2.3-2.5단계를 두 번 더 반복합니다.
- 액체 질소에서 1.5mL 튜브의 섬을 10초 동안 급속 얼립니다.
- 핵 격리 날까지 펠릿을 -80 °C에서 보관하십시오.
3. 핵과 세포질 분획의 분리를 위한 세포 분획
- 핵 추출을 위한 완충액의 준비(표 1).
- 벤치, 피펫 및 시약에 RNase가 없는지 확인하십시오.
- 표 1에 따라 세척, 농축 용해, 용해 희석 및 희석된 핵 완충액을 준비합니다.
- 용해 희석 완충액을 사용하여 5mL 튜브에 0.1x 용해 완충액을 준비하여 농축된 용해 완충액을 희석합니다.
- 조직 균질화
- -80 °C 냉동고에서 샘플을 제거하고 즉시 얼음 위에 놓습니다.
- 500μL의 0.1x 용해 완충액을 조직 펠릿에 넣고 얼음에서 3분 동안 배양합니다.
- 일회용 RNase-free 펠릿 유봉을 사용하여 얼음 위에서 조직을 15회 부드럽게 균질화합니다.
- 샘플을 얼음 위에서 10분 동안 배양합니다.
- 500 μL의 세척 버퍼를 균질액에 추가하고 얼음에 부드럽게 피펫팅합니다.
- 5mL 튜브를 통해 300mL의 세척 완충액을 필터에 추가하여 30μm 사전 분리 필터를 프라이밍합니다.
- 30μM 사전 분리 필터를 사용하여 1mL 세포 균질액을 5mL 튜브에 여과합니다.
- 여과된 균질액을 500 x g 에서 4°C의 스윙 버킷 원심분리기에서 5분 동안 회전시킵니다.
- 대사체학을 위한 상층액의 수집 및 보관
- 피펫으로 3.2.8단계에서 상층액 1mL를 제거하고 얼음 위의 1.5mL 냉동 고온에 추가합니다.
- 상층액을 -80 °C에서 즉시 동결하십시오. 이 상층액은 대사체학에 사용됩니다.
- 단일핵 RNA 및 ATAC 염기서열분석을 위한 핵 준비
- 펠릿에 세척 완충액 1mL를 적하에 첨가하여 핵 펠릿을 부드럽게 재현탁시킵니다. 천천히 피펫팅을 5회 합니다.
- 세척된 펠릿을 1000 x g 에서 4°C의 스윙 버킷 원심분리기에서 5분 동안 회전시킵니다.
- 3.4.1 및 3.4.2 단계를 한 번 더 반복합니다.
- 최종 세척 후 핵을 1mL의 세척 완충액에 재현탁시킵니다. 핵 준비를 얼음 위에 두십시오.
- 피펫으로 10μL의 핵 현탁액을 흡입하고 부드럽게 피펫팅하여 10μL의 0.4% Trypan blue와 혼합합니다.
- 10μL의 핵과 Trypan blue 혼합물을 피펫이 있는 자동 세포 카운터 슬라이드에 넣고 기기에 넣습니다.
- 핵/μL에서 핵 농도를 측정합니다.
참고: 단일 세포 RNA 염기서열 분석을 위한 세포 제제와 달리 자동 세포 카운터는 핵을 죽은 세포로 검출합니다. 이 제제의 95% 이상이 자동 세포 카운터에서 활성화되어야 합니다. 핵 개체군의 5% 이상이 살아있는 경우 핵 현탁액을 30μm 사전 분리 필터를 통해 추가로 여과하고 4°C에서 1000 x g 에서 5분 동안 회전시킬 수 있습니다. 그런 다음 3.4.6단계에 설명된 대로 핵 농도를 다시 계산할 수 있습니다. - 원하는 표적 핵 회수에 따라 1x nuclei buffer를 사용하여 핵을 필요한 농도로 재현탁시키고 single nucleus RNA 및 ATAC sequencing library preparation10을 진행합니다.
4. 모세관 전기영동-질량분석법(CE-MS)을 위한 세포질 분획의 제조
- 3.3.1단계에서 수집된 80μL의 세포질 분획을 내부화된 표준물질을 함유한 20μL의 나노순수와 결합합니다.
- 앞서 설명한 대로 CE-MS 및 분석을 진행합니다 11,12,13.
결과
시퀀싱 출력의 품질은 핵 입력의 품질에 크게 좌우됩니다. 핵 블레빙 및 외부 핵막의 손상은 분석에서 주변 RNA 및 DNA 오염을 초래하여 데이터에 노이즈를 유발합니다. 순수한 핵 추출물은 세포질 성분으로 캡슐화된 핵(그림 2A) 또는 핵 파열(그림 2B)로 입증되는 과소화의 증거를 최소화합니다. 이상적인 핵 입력은 손상되지 않은 핵을 포함할 것입니다(그림 2C).
단핵 RNA 및 ATAC 염기서열분석 데이터의 분석에 대한 자세한 내용은 다른 곳에도 광범위하게 제공되어 있다 5,14. 태아 NHP 핵 제제의 대표적인 세포 집단군집은 그림 3A의 UMAP를 통해 설명되어 있습니다. 대사체학 데이터는 앞서 설명한 바와 같이 오픈 소스 소프트웨어를 사용하여 쉽게 분석됩니다15. 생성된 스펙트럼을 시각화할 수 있으며, WSD 공급 댐의 태아 섬에 있는 농축된 대사 산물을 CD 공급 댐의 대사 산물과 비교할 수 있습니다(그림 3B-F).
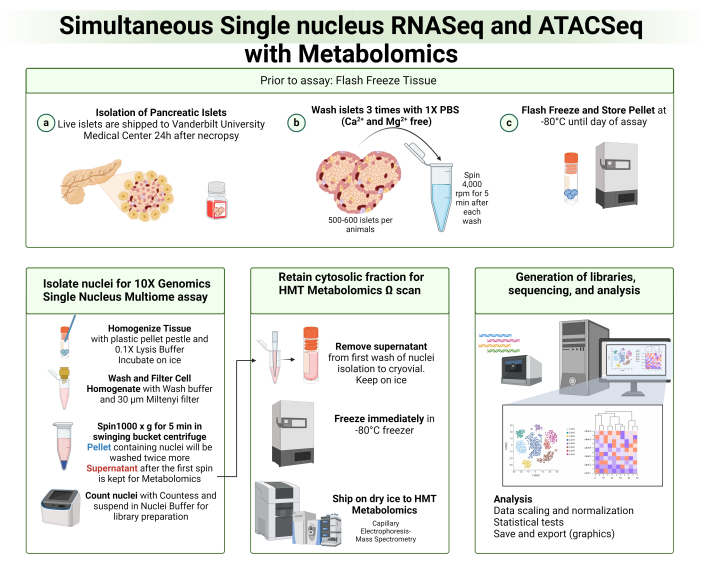
그림 1: 핵 및 세포질 분획 분리를 위한 프로토콜 개요. 태아 췌장 섬은 분석 당일까지 -80 °C에서 보관하고 보관했습니다. 핵을 분리하여 단일 핵 RNA 및 ATAC 시퀀싱에 활용했습니다. 핵 분리의 첫 번째 세척 후 세포질 분획은 모세관 전기영동-질량 분석법을 위해 유지되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
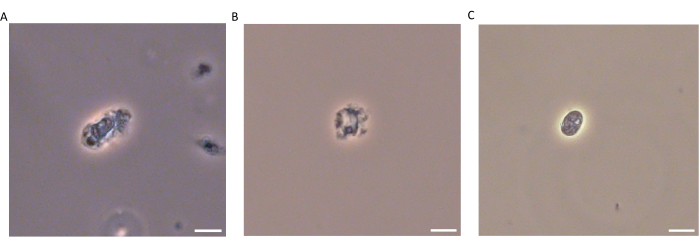
그림 2: 단일 핵 다중오믹스 분석에 대한 적절한 핵 입력의 시연. (A) 세포질에 의해 캡슐화된 핵, (B) 손상된 핵이 있는 파열 핵, (C) 둥근 형태를 가진 온전한 핵의 예. 스케일 바: 10 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
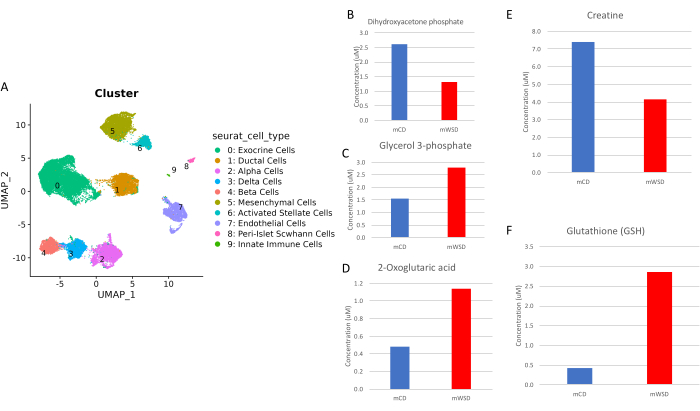
그림 3: 단일핵 다중체학(single nucleus multiomics)과 벌크 대사체학(bulk metabolomics)이 결합된 대표 데이터. (ᅡ) 유전자 발현을 기반으로 한 고립된 태아 NHP 섬 내 세포 아형의 UMAP 클러스터링. 댐에 WSD(mWSD) 또는 CD(mCD)를 공급했을 때 분리된 태아 NHP 섬의 세포질 분획에서 해당작용 대사산물, (B) 디하이드록시아세톤 포스페이트 및 (C) 글리세롤-3-포스페이트의 정량적 추정. 산모의 식단은 또한 (D) 구연산 회로(2-옥소글루타레이트), (E) 아미노산 대사(크레아틴) 및 (F) 태아 섬의 세포 산화 환원 상태(글루타티온)를 변화시킴으로써 신진대사를 차별적으로 조절할 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1: 핵 분리를 위한 완충액 제형. 핵, 용해, 용해 희석 및 세척 완충액의 자세한 구성 요소가 표시됩니다. 필요한 경우 완충액을 준비하기 전에 시약을 스톡 농도로 희석하십시오. 이 표를 다운로드하려면 여기를 클릭하십시오.
토론
역사적으로 단일핵 RNA 및 ATAC 염기서열분석을 위한 핵 분리 방법은 대사체 정량화에 사용되는 일반적인 기술인 액체 크로마토그래피-질량 분석법(LC-MS)과 호환되지 않는 세제가 포함된 완충액을 사용했습니다16,17. 현재 프로토콜은 세포 분획을 위해 순한 세제를 사용하여 동일한 시료 전처리에서 전사체 및 대사체학 기술을 결합할 수 있으며, 이 분획 후에는 대사체 분리를 위해 액체 크로마토그래피에 비해 더 적은 시료 입력이 필요한 기술인 모세관 전기영동을 사용하여 분획할 수 있습니다18.
이 프로토콜의 가장 중요한 측면은 유전 물질의 분해를 피하고 주변 뉴클레오티드 및 거대분자에 의한 오염을 줄이기 위해 핵 격리 중에 핵막을 보존하는 것입니다. lysis buffer에 대한 시료 노출 시간을 조절하여 조직의 과분해 및 핵 손상을 방지할 수 있습니다. 또한, 유전 물질과 대사 산물의 분해를 피하기 위해 시료 뱅킹 중 섬과 세포질 분획을 함유한 상층액을 급속 동결하는 것이 필수적입니다. 배양 배지의 영양소 가용성으로 인한 변화된 대사의 교란 효과를 피하기 위해 모든 샘플을 동일한 배지 제형(이 연구에서는 2.8mM 포도당 DMEM)에서 수집해야 합니다.
이 결합된 대사체 접근법의 한계는 핵 분리에 사용되는 세제로 인해 일부 대사체가 포획되지 않을 수 있다는 것입니다. 따라서 보다 완전한 대사 산물 분석을 위해 이 접근법은 비유기 세척 완충액 및 LC-MS를 사용하여 동결 조직 및 분리 대사 산물 분석으로 보완될 수 있습니다. 권장되는 보충 접근법은 장기 내 대사 변화를 국소화하기 위해 MALDI-MS 를 통한 표적 공간 대사체학이다19. 또한, 동일한 핵 내에서 전사체 변동성 및 염색질 접근성을 평가하기 위한 현재 기술은 ATAC 염기서열분석을 위한 얕은 염기서열분석 깊이로 인해 제한적입니다. 데이터 분석에서 조사관은 데이터 세트 내의 특정 하위 클러스터가 아닌 광범위한 세포 클러스터 내의 열린 염색질 영역만 평가할 수 있습니다.
쉽게 구할 수 없는 조직, 특히 인간과 비인간 영장류의 조직을 사용하는 일이 점점 더 빈번해짐에 따라 생물학적 복제에서 추출할 수 있는 정보의 양을 최대화하는 것이 필수적입니다. 위에서 설명한 다중 오믹 접근법을 통해 연구자는 세포 정체성의 주요 프로모터 주변에서 유전적 서명과 피크 가용성의 상관 관계를 파악하는 동시에 세포 대사가 이러한 변화에 어떻게 기여했는지 고려할 수 있습니다. 세포 제제 내에서 더 풍부한 대사 산물을 식별하는 것은 특정 계통에 대한 세포 아형의 사양을 유도할 수 있는 특정 후성유전학적 변형에 대한 단서를 제공할 것입니다. 실제로, 전사체학 및 대사체학 실험의 결과를 통합하기 위한 새로운 프로토콜이 확립되었지만, 이는 서로 다른 조직 공급원에서 나온 것임에도 불구하고20. 이 프로토콜의 의의는 단일 시료 입력에서 염색질 접근성, 전사 변화 및 대사 산물 농축을 평가할 수 있다는 것입니다. 이 기술의 향후 응용 분야는 희귀 질환 환자의 조직과 같이 희박한 샘플 집단에서 얻은 조직의 질병 상태를 더 잘 특성화할 수 있도록 할 것입니다. 섬 생물학 분야에서, 유전자 조절 네트워크의 특성화와 상관 관계가 있는 대사 서명은 당뇨병의 발병을 피하기 위해 베타 세포의 정체성과 기능을 보존하는 메커니즘에 대한 중요한 통찰력을 제공할 수 있습니다.
공개 사항
저자는 이해 상충이 없음을 선언합니다.
감사의 글
저자들은 인간이 아닌 영장류 군체를 돌보고 조직을 획득하기 위해 노력한 Oregon Health Sciences University의 전체 팀에게 감사를 표하고 싶습니다. 또한 Vanderbilt Technologies for Advanced Genomics는 기술 전문 지식과 실험 설계 조언을 제공했습니다. DTC는 NIH/NIDK(1F31DK135164)의 F31 박사 전 펠로우십의 지원을 받았습니다. PK는 NIH/NIDDK(1R01DK128187)의 지원을 받았습니다. MG는 VA Merit Award(I01 BX005399), NIH/NIDDK(1R01DK135032, 1R01DK128187) 및 JDRF(2-SRA-2024-1455-S-B)의 지원을 받았습니다. 오레곤 국립 영장류 연구 센터(Oregon National Primate Research Center, ONPRC)에서의 작업은 센터의 운영 지원을 위해 P51OD011092의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 33 G 쥐 뇌 캐뉼라 주입기 | Protech International | 8IC315IS5SPC | 덕트 캐뉼레이션 및 췌장 팽창 |
| 페니실린 / 스트렙토 마이신 | Fisher | 15-140-122 | RT 미디어 |
| FBS | Millipore / Sigma | F4135-500ML | RT 미디어 |
| RPMI 1640 | Thermo Fisher Scientific | 11-875-135 | RT 미디어 |
| 콜라겐 분해 효소 P | Sigma Aldrich | 11213865001 | 췌장 소화용 |
| Bovine Dnase I | Sigma Aldrich | 11284932001 | RT 매체 및 분리용 |
| Dextrose | Fisher | D16-1 | 최종 농도는 2.8mM |
| 염화칼슘 | Fisher | C4901-500G | 최종 농도는 0.5mM |
| HEPES | Gibco | 15630-080 | Final입니다. 농도는 10mM |
| 소 혈청 알부민(BSA) 분획 5 | Research Products International | A30075100 | 최종 농도는 0.5mg/mL |
| Dulbecco의 Modified Eagle Medium | Gibco | 11966025 | 손으로 섬을 선별하는 경우 |
| 20x 핵 완충액 | 10X 게놈 | 2000153/2000207 | |
| 디지토닌(5%) | Thermo Fisher Scientific | BN2006 | 디지토닌은 65°C로 예열해야 할 수도 있습니다. 백색 침전물을 용해시키는 |
| C MACS SmartStrainers (30 µ M) | Miltenyi Biotec | 130-098-458 | |
| MACS BSA 스톡 솔루션 (10%) | Miltenyi Biotec | 130-091-376 | |
| IGEPAL CA-630 | Sigma Aldrich | i8896 | |
| Sodium Chloride Solution, 5 M | Sigma Aldrich | S6546-1L | |
| 염화마그네슘 용액, 1m | Sigma Aldrich | M1028-100mL | |
| 시그마 보호기 Rnase 억제제 | Sigma Aldrich | 3335402001 | |
| DTT | Research Products International | D11000-5.0 | |
| RNASE-Free 일회용 펠렛 유봉 | Fisher Scientific | 12-141-368 | |
| 트윈 20 | Fisher 생물 시약 | BP337-500 | MilliQ water |
| Nuclease-Free Water | Promega | PR-P1193 | |
| DNA LoBind Tubes(5 mL) | Eppendorf | 30108310 | |
| Cryovials(1.5 mL), | VWR | 20170-225 | |
| Posi-Click Tubes(0.6 mL), | Denville | C-2177 | |
| Trypan Blue(0.4%) | , Thermo Fisher Scientific | T-10282 | |
| 이중 챔버 세포 계수 슬라이드 | Bio-Rad | 1450011 | |
| MiiliQ 초순수 시스템 | Millipore/Sigma | 7003/05/10/15 | |
| 5 kDa 컷오프 필터 | HMT Metabolome Technologies | ||
| 내부 표준 | HMT Metabolome Technologies | ||
| P10, P20, P200 및 P1000 피펫 | Eppendorf | 2231000602 | |
| 피펫 팁, 10 µ L | VWR | 76322-528 | |
| 피펫 팁, 1000 &마이크로; L | Thermo Fisher Scientific | 21-236-2A | |
| 피펫 팁, 20 &마이크로; L | Genesee Scientific | 23-404 | |
| 피펫 팁, 200 &마이크로; L | USA Scientific | 1120-8810 | |
| 위상차 현미경 | Olympus | BX41-PH-B | |
| Countess II 자동 세포 계수기 | Thermo Fisher Scientific AMQAX1000 | ||
| DPBS (1x) | Gibco | 14190-144 | |
| Allegra X-30R 원심분리기 | Beckman-Coulter | B06315 | |
| RNase-ZAP | 시그마 Aldrich | R2020 |
참고문헌
- Christensen, A. A., Gannon, M. The beta cell in type 2 diabetes. Curr Diab Rep. 19 (9), 81(2019).
- Elsakr, J. M., Gannon, M. Developmental programming of the pancreatic islet by. Trends Dev Biol. 10, 79-95 (2017).
- Salzberg, L. Risk factors and lifestyle interventions. Prim Care. 49 (2), 201-212 (2022).
- Pound, L. D., Kievit, P., Grove, K. L. The non-human primate as a model for type 2 diabetes. Curr Opin Endocrinol Diabetes Obes. 21 (2), 89-94 (2014).
- Kang, R. B., et al. Single-nucleus RNA sequencing of human pancreatic islets identifies novel gene sets and distinguishes β-cell subpopulations with dynamic transcriptome profiles. Genome Med. 15 (1), 30(2023).
- Basile, G., et al. Using single-nucleus RNA-sequencing to interrogate transcriptomic profiles of archived human pancreatic islets. Genome Med. 13 (1), 128(2021).
- Cabé, C. M., et al. High-quality brain and bone marrow nuclei preparation for single nuclei multiome assays. J Vis Exp. (202), e65715(2023).
- Nuclei from embryonic mouse brain for single cell multiome ATAC + gex sequencing. , Available from: https://www.10xgenomics.com (2022).
- Elsakr, J. M., Deeter, C., Ricciardi, V., Gannon, M. Analysis of non-human primate pancreatic islet oxygen consumption. J Vis Exp. (154), e60696(2019).
- Chromium next gem single cell multiome ATAC + gene expression reagent kits user guide. , Available from: https://www.10xgenomics.com (2022).
- Maruyama, A., et al. Extraction of aqueous metabolites from cultured adherent cells for metabolomic analysis by capillary electrophoresis-mass spectrometry. J Vis Exp. (148), e59551(2019).
- Ooga, T., et al. Metabolomic anatomy of an animal model revealing homeostatic imbalances in dyslipidaemia. Mol Biosyst. 7 (4), 1217-1223 (2011).
- Ohashi, Y., et al. Depiction of metabolome changes in histidine-starved Escherichia coli by CE-TOFMS. Mol Biosyst. 4 (2), 135-147 (2008).
- Chiou, J., et al. Single-cell chromatin accessibility identifies pancreatic islet cell type– and state-specific regulatory programs of diabetes risk. Nat Genetics. 53 (4), 455-466 (2021).
- Pang, Z., et al. Metaboanalyst 6.0: Towards a unified platform for metabolomics data processing, analysis and interpretation. Nucleic Acids Res. , 253(2024).
- Willency, J. A., Lin, Y., Pirro, V. Targeted metabolomics in human and animal biofluids and tissues using liquid chromatography coupled with tandem mass spectrometry. STAR Protoc. 5 (1), 102884(2024).
- Behnke, J. -S., Urner, L. H. Emergence of mass spectrometry detergents for membrane proteomics. Anal Bioanal Chem. 415 (18), 3897-3909 (2023).
- Ouimet, C. M., D'amico, C. I., Kennedy, R. T. Advances in capillary electrophoresis and the implications for drug discovery. Expert Opin Drug Discov. 12 (2), 213-224 (2017).
- Alexandrov, T. Spatial metabolomics and imaging mass spectrometry in the age of artificial intelligence. Annu Rev Biomed Data Sci. 3, 61-87 (2020).
- Ewald, J. D., et al. Web-based multi-omics integration using the analyst software suite. Nat Protoc. 19, 1467-1497 (2024).
재인쇄 및 허가
